بحثت هذه الدراسة in silico فيما إذا كان استعادة ارتباط HNF4α عند محفز F7 يمكن أن يحسن عملية نسخ F7 الم modeled في حالات نقص FVII الوراثي. حددت التحليلات الحاسوبية أنماطاً تنظيمية رئيسية وارتباطات قوية في التعبير الجيني. وتوقعت عمليات المحاكاة أن استهداف CRISPRa قد يستعيد نسخ F7 إلى ما يقرب من 87% من المستويات الطبيعية، مما يستوجب التحقق التجريبي.
مقالة بحثية
استعادة نشاط محفز F7 باستخدام تقنية CRISPR عبر المحاكاة الحاسوبية In Silico في حالات نقص العامل السابع الوراثي
في هذه المقالة
ملخص
الملخص
يرتبط نقص العامل السابع (FVII) الوراثي بانخفاض تعبير جين F7 واختلال عملية التجلط، ولا تزال الآليات التنظيمية التي تتحكم في نسخ F7 غير موضحة بشكل كامل. هدفت هذه الدراسة إلى استكشاف ما إذا كان استعادة ارتباط HNF4α المتوقع في محفز F7، من خلال تعديل عوامل النسخ، أو تصحيح زخارف المحفز، أو التنظيم فوق الجيني بوساطة تنشيط CRISPR (CRISPRa)، يمكن أن يعزز نظرياً نسخ F7 المتوقع في حالات نقص FVII الوراثي، وذلك باستخدام الحوسبة. تم تطوير مسار عمل كامل in silico لتوصيف المشهد التنظيمي لمحفز F7 من خلال تحديد زخارف ارتباط عوامل النسخ المحفوظة باستخدام مجموعات بيانات JASPAR وFIMO وUCSC Genome Browser. كما تم تقييم ارتباطات التعبير في الكبد باستخدام بيانات GTEx الترانسكريبتومية، بينما تم تقييم إمكانية وصول الكروماتين والسياق التنظيمي باستخدام توصيفات ENCODE ChIP-seq وATAC-seq وChromHMM/Segway. وتم بناء شبكة تنظيمية كبدية في برنامج CellDesigner لمحاكاة التأثيرات المتوقعة لفقدان HNF4α على نسخ F7 على مدار فترة 24 ساعة. تم تحديد ست زخارف ارتباط HNF4α عالية الثقة داخل المحفز القريب لـ F7، بما في ذلك ثلاث مناطق تتداخل مع متغيرات معروفة مرتبطة بالمرض. وأظهرت تحليلات التعبير الكبدي ارتباطات إيجابية بين F7 وHNF4A (r = 0.68) وHNF1A (r = 0.61). وتوقعت النمذجة الحوسبية أن استهداف CRISPRa للمناطق التنظيمية المرتبطة بـ HNF4α يمكن أن يزيد من نسخ F7 المحاكى ليصل إلى حوالي 87% من مستويات النوع البري في ظل الظروف المنمذجة، مع خصوصية مستهدفة متوقعة. وبشكل عام، تقدم هذه الدراسة الحوسبية البحتة إطاراً متكاملاً متعدد الأوميكيات لتحديد أولويات الاستراتيجيات التنظيمية التي تستهدف المحفز في نقص FVII الوراثي. ومن خلال الجمع بين تحليل زخارف عوامل النسخ، وتوصيف الكروماتين، والارتباط الترانسكريبتومي، ونمذجة الشبكة التنظيمية، وتحديد أولويات أدلة CRISPR ضمن مسار عمل موحد، تولد هذه الدراسة فرضيات يمكن اختبارها تجريبياً مع توفير نهج منهجي يتجاوز التحليلات التجريبية السابقة التي ركزت على متغير واحد أو تحليلات معزولة.
المقدمة
يعد العامل السابع (FVII) بروتياز سيرين يعتمد على فيتامين K، وهو الذي يبدأ شلال التخثر عبر المسار الخارجي. ففي أعقاب الإصابة الوعائية، يتكون معقد من العامل السابع المنشط (FVIIa) مع عامل النسيج لتحفيز توليد الثرومبين وتكوين جلطة الفيبرين. يقوم جين F7، الموجود على الكروموسوم 13q34، بتشفير FVII ويتم التعبير عنه بشكل أساسي في الخلايا الكبدية1. وتسبب المتغيرات الممرضة في جين F7 نقص العامل السابع الوراثي، وهو اضطراب نزفي نادر ينتقل كصفة متنحية ويقدر معدل حدوثه بنحو 1 من كل 500,000 فرد حول العالم2. وتتفاوت المظاهر السريرية بشكل كبير، وترتبط عموماً بنشاط FVII المتبقي في الدورة الدموية3.
على الرغم من أن معظم الحالات تُعزى إلى طفرات مغلطة (missense)، أو طفرات غير منطقية (nonsense)، أو طفرات في مواقع الربط (splice-site mutations) ضمن المنطقة المشفرة لجين F7، فقد تم الإبلاغ أيضاً عن وجود متغيرات في المحفز تؤدي إلى تقليل التعبير الجيني دون تغيير بنية البروتين4. على سبيل المثال، يؤدي متغير المحفز c.-94C>G إلى تعطيل موقع ارتباط Sp1 بالغ الأهمية ضمن المحفز القريب لـ F7، مما يعيق ارتباط عوامل النسخ ويقلل بشكل ملحوظ من نسخ F7. بالإضافة إلى ذلك، أظهرت طفرات المحفز التي تؤثر على مواقع ارتباط HNF-4 انخفاضاً في نشاط المحفز، مما يسلط الضوء على أهمية سلامة ارتباط عوامل النسخ للتعبير الطبيعي عن F75. وقد ورد أن المتغير c.-61T>G يؤدي إلى تعطيل موقع ارتباط HNF4، مما يوضح أن متغيرات المحفز المتميزة يمكن أن تعيق نسخ F7 من خلال آليات مختلفة تعتمد على عوامل النسخ6.
يتم التحكم في تعبير F7 بدقة بواسطة عوامل نسخ غنية في الخلايا الكبدية، لا سيما العامل النووي الكبدي 4 ألفا (HNF4α) والعامل الكبدي A1 (HNF1α)7,8,9. ويُعد HNF4α مستقبلًا نوويًا يرتبط بالحمض النووي DNA على هيئة متجانس ثنائي (homodimer) وينظم العديد من الجينات الكبدية المشاركة في عمليات التمثيل الغذائي والتخثر10. كما أن HNF4α هو عامل نسخ نووي ينشط الجينات النوعية للكبد من خلال التفاعلات مع المنشطات المساعدة ومعقدات إعادة تشكيل الكروماتين11. وتشير الدراسات التجريبية، بما في ذلك نماذج التعطيل الجيني في الفئران (knockout models)، إلى أن فقدان HNF4α يؤدي إلى خلل وظيفي كبدي واسع النطاق وانخفاض في تعبير العديد من عوامل التخثر، بما في ذلك FVII12. بالإضافة إلى ذلك، أفادت التقارير بأن النشاط التعاوني لـ HNF4α يعزز نشاط المحفز في العديد من الجينات التي يتم التعبير عنها في الكبد13. ومجتمعة، تشير هذه الملاحظات إلى أن ضعف ارتباط عوامل النسخ قد يساهم في انخفاض تعبير F7 لدى حاملي المتغيرات في المحفز.
ظهرت منهجيات تعديل الإبيجينوم، مثل تنشيط CRISPR (CRISPRa)، كأدوات محتملة لزيادة التعبير الجيني الداخلي دون تغيير تسلسل DNA. يعتمد نظام CRISPRa على حمض نووي ريبوزي موجه (gRNAs) محدد التسلسل يوجه بروتين Cas9 غير النشط تحفيزياً (dCas9) إلى مواقع جينومية مختارة. يرتبط بروتين dCas9 بنطاقات تنشيط نسخية مثل VP64، وهو نطاق تنشيط VP16 رباعي القسيمات من فيروس الهربس البسيط، أو p300، وهو إنزيم أسيتيل ترانسفيراز للهيستون الذي يعزز عملية النسخ من خلال إعادة تشكيل الكروماتين14. وتدعم الأعمال الحديثة، بما في ذلك عمل Belali وآخرون، الدور التنظيمي المركزي لـ HNF4α في الشبكات الجينية المرتبطة بالتخثر، مما يعزز الاهتمام باستراتيجيات التعديل الموجهة بعوامل النسخ15. وقد أثبتت الدراسات السابقة أن استعادة نشاط محفز F7 المتضرر كانت ممكنة باستخدام تقنيات تعتمد على المؤثرات الشبيهة بمنشط النسخ (TALE) أو بوساطة CRISPRa16,17,18. ومع ذلك، فقد قيمت هذه الدراسات استراتيجيات فردية لاستهداف المحفز، بينما يدمج العمل الحالي تنبؤ الزخارف، وتوصيف الكروماتين، والارتباط النسخي، وتحليل الشبكة التنظيمية، وتحديد أولويات gRNA ضمن إطار حوسبي واحد لتوليد الفرضيات. ومع ذلك، لا تزال الأهمية العلاجية لـ HNF4α في تنظيم محفز F7 غير موصوفة بشكل كامل، لا سيما من منظور النظم التكاملية.
خلافاً للدراسات السابقة التي ركزت على متغيرات فردية في المحفز أو ملاحظات تجريبية معزولة، يدمج الإطار الحالي بين التنبؤ بنمط عوامل النسخ، والارتباط النسخي، وإمكانية وصول الكروماتين، وتحليل الشبكة التنظيمية، وتصميم دليل CRISPR، وتقييم الخصوصية على نطاق الجينوم بالكامل ضمن سير عمل حاسوبي واحد. وتتيح هذه الاستراتيجية المتكاملة تحديد الأولويات المنهجية للتدخلات التنظيمية المرشحة قبل التحقق التجريبي، مما يوفر منصة أكثر شمولاً لتوليد الفرضيات مقارنة بالتحليلات القائمة على نوع واحد من البيانات وحده.
البروتوكول
توجد قواعد البيانات المستخدمة مدرجة في جدول المواد.
استرجاع تسلسل المحفز والتعليق التوضيحي الحاسوبي
تم استرداد منطقة محفز F7 البشرية (رقم التسجيل في GenBank: NG_009262.1) من NCBI باستخدام تجميع المرجع الجينومي GRCh38/hg38. أُجريت جميع التحليلات in silico ضمن إطار حاسوبي قابل للتكرار. حُدد المحفز من −1000 إلى +100 bp بالنسبة لموقع بدء النسخ (TSS) الموصوف والمستخرج من متصفح جينوم UCSC (توصيف RefSeq). تم استخراج التسلسل بتنسيق FASTA وتم التحقق من صحته مقابل إصدار Ensembl 109 لضمان اتساق الإحداثيات. تم توصيف تسلسل المحفز حاسوبياً لتحديد مواقع ارتباط عوامل النسخ (TFBS)، والمتغيرات المعروفة، ومحتوى CpG، وتركيب GC باستخدام برامج Python مخصصة (v3.10) وBiopython (v1.81). تمثل جميع التوصيفات تنبؤات حاسوبية ولم يتم التحقق من صحتها تجريبياً.
تحليل مواقع ارتباط عوامل النسخ (TFBS)
تَم تحديد أنماط ارتباط HNF4α و HNF1α المتوقعة باستخدام قاعدة بيانات JASPAR 2022 CORE للفقاريات مع مصفوفات الوزن الموضعي MA0114.4 (HNF4A) و MA0046.2 (HNF1A). أُجري مسح الأنماط باستخدام FIMO (MEME Suite v5.5.0). شمل سير العمل رفع ملفات FASTA للمحفزات، واختيار مصفوفة الوزن الموضعي PWM، ونمذجة الخلفية النيوكليوتيدية الخاصة بالمحفز، ومسح كلا شريطي DNA. تم تقييم دلالة الأنماط باستخدام عتبة p ≤ 1 × 10⁻4، متبوعة بتصحيح Benjamini–Hochberg. صُدّرت مخرجات FIMO كملفات TSV، وتم الاحتفاظ بالأنماط المتوقعة التي كانت قيم q المعدلة فيها <0.05. تَم تقاطع إحداثيات TFBS المتوقعة مع المتغيرات المرتبطة بالأمراض من الإصدار 155 لـ dbSNP و HGMD Professional (2023.2) باستخدام BEDTools (v2.30). تم تقييم متغير المحفز المرتبط بالمرض c.-61T>G في سياق قربه المبلغ عنه من موقع ارتباط HNF4α، مما يشير إلى دور تنظيمي محتمل في نشاط محفز F7. فُسّر تداخل الأنماط الحسابي على أنه توقع ولم يُعتبر دليلاً على تعطل TF المؤكد تجريبياً. تمثل الأنماط المحددة إمكانية ارتباط عوامل النسخ المتوقعة بدلاً من الإشغال المؤكد تجريبياً.
الحفظ التطوري والتوصيف الإبيجينومي
تم تقييم الحفظ التطوري للمناطق التنظيمية المتوقعة باستخدام درجات PhyloP وPhastCons من محاذاة 100 فقاري من UCSC (hg38). وقد تم إعطاء الأولوية للمناطق التي حصلت على درجات PhastCons ≥0.7 كعناصر تنظيمية محفوظة.
تم تقييم سياق الكروماتين التنظيمي باستخدام متصفح الجينوم UCSC ومجموعات بيانات ENCODE. استُخدم تجميع hg38 مع تفعيل مجموعات المسارات ذات الصلة، بما في ذلك ChIP-seq لعوامل النسخ من ENCODE، وH3K27ac، وH3K4me3، وفرط الحساسية لـ DNase I، وATAC-seq، وتوصيفات ChromHMM وSegway. تم تصدير مسارات الإشارة كملفات BED وbigWig حيثما كان ذلك متاحاً. تمت معالجة مجموعات بيانات bigWig من ENCODE باستخدام deepTools (v3.5.1)، وتم حساب متوسط إشارات المكررات قبل إجراء التحليلات اللاحقة. قورنت مواقع ارتباط عوامل النسخ المتوقعة مع قمم HNF4α/HNF1α ChIP-seq المتاحة باستخدام نافذة تداخل قدرها ±50 bp. استُخدمت هذه التحليلات لاستنتاج القدرة التنظيمية ولا تثبت الارتباط الوظيفي in vivo.
تحليل ارتباط التعبير الجيني
تم الحصول على بيانات تعبير RNA-seq للكبد من GTEx v8 (226 عينة كبد). وقد تم تحويل قيم التعبير الموحدة وفقاً لـ TPM لكل من F7 و HNF4A و HNF1A باستخدام تحويل log2(TPM+1). أُجري تحليل ارتباط بيرسون في برنامج R (v4.3.1) باستخدام دالة cor.test مع اختبار ثنائي الذيل. وتم تصحيح المقارنات المتعددة باستخدام طريقة Benjamini–Hochberg حيثما كان ذلك مناسباً. فُسرت الارتباطات على أنها علاقات ترابطية وليست دليلاً على سببية تنظيمية مباشرة.
بناء الشبكة التنظيمية
تم استرجاع معلومات تفاعل البروتينات وشبكة التنظيم من STRING v11.5 باستخدام الحد الأدنى لدرجة الثقة في التفاعل 0.7. ومن ثم استوردت ملفات التفاعل بصيغة TSV الناتجة عن STRING إلى برنامج Cytoscape v3.9.1 لإنشاء الشبكة وتصورها. كما تم تحديد وحدات الشبكة باستخدام ملحق MCODE وفقاً للمعايير التالية: حد درجة الاتصال = 2؛ حد درجة العقدة = 0.2؛ K-core = 2؛ والعمق الأقصى = 100.
تم تصدير المجموعات ذات الدلالة الإحصائية من أجل التفسير اللاحق. وأجري الإثراء الوظيفي باستخدام تحليل الإثراء STRING بمعدل اكتشاف خاطئ (FDR) <0.05. وتمثل تحليلات الشبكة العلاقات البيولوجية المتوقعة والمنقحة، واستُخدمت لتوليد الفرضيات.
النمذجة الحاسوبية للتنشيط النسخي
تم بناء نموذج تنظيمي ديناميكي باستخدام CellDesigner v4.4 لمحاكاة التأثيرات المتوقعة لتعديل HNF4α على نسخ F7. تم تمثيل النموذج بتنسيق SBML ومحاكاته باستخدام محلل يعتمد على المعادلات التفاضلية العادية (ODE) الحتمية. تضمنت مدخلات النموذج ما يلي: (1) قيم تعبير HNF4A وHNF1A وF7 المعيرة والمستمدة من بيانات الكبد في GTEx؛ (2) تقاربات الارتباط النسبية لعوامل النسخ والمستمدة من درجات FIMO motif (بمقياس 0–1)؛ (3) أوزان إمكانية الوصول إلى الكروماتين والمستمدة من كثافة إشارة ENCODE ATAC-seq وDNase-seq؛ (4) بارامترات الكروماتين النشط التي تدمج ملفات H3K27ac وH3K4me3.
أُجريت عمليات المحاكاة على مدار 24 h باستخدام التكامل العددي التكيفي، مع تسجيل المخرجات في فترات زمنية محددة مسبقاً. وتمت نمذجة ظروف التعطيل الجيني (Knockout) عن طريق ضبط نشاط عامل النسخ على 0%. وشملت متغيرات المخرج وفرة نسخة F7 المعيارية، وحالة تنشيط المحفز النسبية، ونشاط عامل النسخ. وقد جرى معايرة جميع مخرجات التعبير نسبةً إلى نموذج الخط المرجعي غير المضطرب (100%). أما المعلمات التي لم تكن متوفرة في مجموعات البيانات العامة فقد قُدرت باستخدام الضبط الموجه بالحساسية وهي موضحة في الجدول التكميلي 1. تمثل جميع مخرجات النموذج تنبؤات حاسوبية بناءً على افتراضات محددة ولا تمثل استجابات بيولوجية مقاسة تجريبياً.
تصميم CRISPRa gRNA لزخارف HNF4α
تم تصميم أهداف تنشيط CRISPR (CRISPRa) حاسوبياً بالكامل باستخدام Benchling (إصدار 2024) وCRISPOR. تم فحص منطقة محفز F7 (من -500 إلى +100 زوج قاعدي بالنسبة لـ TSS) بحثاً عن مواقع SpCas9 NGG PAM ضمن نطاق ±200 زوج قاعدي من أنماط HNF4α عالية الثقة. تم تصفية الأدلة المرشحة وفقاً للمعايير التالية: (1) درجة Doench 2016 للاستهداف المباشر ≥50؛ (2) درجة CFD للاستهداف غير المباشر ≥70؛ (3) محتوى GC بنسبة 40%–60%؛ (4) غياب تسلسلات poly-T التي تصل طولها إلى ≥4 زوج قاعدي.
تَمَّ دمج إمكانية وصول الكروماتين المتوقعة من ATAC-seq وتقديرات إشغال النيوكليوسومات من NuPoP لتحديد أولويات المناطق التنظيمية المتاحة. كما تَمَّ نمذجة استجابات CRISPRa المحتملة باستخدام بنيات dCas9-VP64 و dCas9-p300 حاسوبياً، وفُسِّرت على أنها إمكانية تنشيط متوقعة فقط.
تصميم تحرير CRISPR-Cas9 لاستعادة التتابع التحفيزي
لتقييم الجدوى النظرية لتصحيح متغير في المحفز مرتبط بتعطل التعرف على HNF4α، تم اختيار المتغير c.-61T>G كمتغير تنظيمي ممثل مرتبط بـ HNF4α. تم تصميم اثنين من الحمض النووي الريبوزي الموجه لـ SpCas9، واللذان سُميا gRNA-L وgRNA-R، ليحيطا بالمتغير c.-61T>G، وتم تقييمهما بشكل مستقل وكتهيئة مزدوجة التوجيه مدمجة. تم نمذجة قوالب إصلاح HDR أحادية السلسلة تحتوي على تسلسل المحفز المرجعي عند موقع المتغير بأذرع تماثل بطول 100-bp. تم تقييم الأدلة المرشحة حاسوبياً باستخدام CRISPOR وCas-OFFinder للتنبؤ بالخصوصية، بينما استُخدم CRISPRscan لتقدير نشاط القطع المتوقع. استُخدمت بعد ذلك النمذجة القائمة على ICE لتقدير نتائج التحرير النظرية لتهيئات الأدلة الفردية والمدمجة. تم التعامل مع تهيئة gRNA-L/gRNA-R المدمجة كاستراتيجية توجيه مزدوج وليس كدليل ثالث مستقل. تمثل جميع كفاءات ونتائج التحرير المتوقعة تقديرات حاسوبية ولا تثبت كفاءة HDR التجريبية، أو استعادة ارتباط HNF4α، أو تصحيح تسلسل المحفز في الخلايا، أو استعادة نسخ F7.
محاكاة التعديل فوق الجيني ونمذجة إمكانية الوصول إلى الكروماتين
تم تقييم إمكانية وصول الكروماتين المحيط بمواقع CRISPRa المرشحة باستخدام مجموعات بيانات ENCODE ATAC-seq وDNase-seq من خلايا HepG2. وتم قياس شدة الإشارة ضمن نوافذ بحجم 100 bp متمركزة على كل تسلسل دليل مرشح. كما استُخدمت تعليقات ChromHMM (نموذج مكون من 15 حالة) وSegway لتصنيف حالات الكروماتين التنظيمية المحلية.
تم حساب درجة تنشيط مركبة تدمج كل من (1) تقارب الزخرفة (motif proximity)، و(2) إمكانية الوصول في ATAC-seq، و(3) فرط الحساسية لـ DNase I، و(4) إثراء H3K27ac، و(5) إثراء H3K4me3، وذلك لتصنيف أهداف CRISPRa المرشحة. كما تمت محاكاة الاستجابات النسخية المتوقعة في ظل ظروف الكروماتين الممثلة، وفُسرت على أنها تقديرات نظرية.
تقييم مخاطر التأثيرات خارج الهدف لاستراتيجيات CRISPRa و HDR
أُجري تقييم الخصوصية على مستوى الجينوم باستخدام تسجيل CFD الخاص بـ CRISPOR، وتعداد Cas-OFFinder، وتوقعات CRISPRscan. وقد تم تصفية الأدلة المرشحة لتقليل التفاعلات المتوقعة خارج الهدف، لا سيما ضمن المناطق النشطة نسخياً.
شملت معايير الاستبعاد الإضافية ما يلي: (1) المواقع المتوقع استهدافها خارج الهدف ضمن نطاق ±1 kb من مناطق TSS المحددة، (2) التداخل مع مناطق المحفزات المشتركة، (3) التداخل مع عناصر المعززات، (4) المناطق التنظيمية المرتبطة بالجينات المجاورة التي يتم التعبير عنها في الكبد بناءً على تعليقات ChromHMM وSegway التوضيحية.
تم حساب درجات نوعية مركبة تدمج كفاءة الدليل، وعبء الأهداف غير المحددة المتوقعة، وسياق الكروماتين لتحديد أولويات التصميمات المرشحة. تقدر استراتيجية الفحص الحاسوبي متعددة الطبقات هذه النوعية النظرية ولا تحل محل التحقق التجريبي من الأهداف غير المحددة على مستوى الجينوم بالكامل. ويرد ملخص لسير العمل الحاسوبي، بما في ذلك مجموعات البيانات المدخلة، والأدوات التحليلية، ومعايير التصفية، ونقاط التحقق من المخرجات، في الجدول التكميلي 2.
المعايير الحسابية الحرجة
اعتمد الأداء الموثوق لسلسلة المعالجة الحسابية على عدة إعدادات مسبقة للمعلمات. تم تحسين الكشف عن الزخارف (motifs) باستخدام FIMO (p < 1 × 10⁻4; q < 0.05) مع مصفوفات أوزان الموضع HNF4A وHNF1A من JASPAR. تطلب دمج الكروماتين إحداثيات hg38 متسقة وأدلة متوافقة من مجموعات بيانات ENCODE ATAC-seq وDNase-seq وH3K27ac وH3K4me3. تم إنشاء الشبكات التنظيمية باستخدام تفاعلات STRING (درجة الثقة ≥0.70) وتجميع MCODE في برنامج Cytoscape. أجريت عمليات المحاكاة الديناميكية في برنامج CellDesigner باستخدام حلّال ODE حتمي مع قيم تعبير مستمدة من GTEx، ودرجات زخارف FIMO، وأوزان إمكانية الوصول للكروماتين من ENCODE. تم تحديد أولويات الرنا الدليل (gRNAs) المرشحة لـ CRISPRa بناءً على درجة الاستهداف Doench 2016 (≥50)، ودرجة خصوصية CFD (≥70)، ومحتوى GC (40%–60%)، وأدنى حد متوقع من الأهداف غير المحددة، والتمركز ضمن الكروماتين المتاح. تم التحقق من اكتمال سير العمل من خلال التحديد الناجح للزخارف، وإنشاء الشبكة، وتوصيف الكروماتين، واختيار gRNA، ومخرجات المحاكاة المستقرة.
النتائج
التنبؤ بزخارف الارتباط الوظيفية لـ HNF4α و HNF1α في محفز F7
توقع المسح الحاسوبي للموتيفات (Motif scanning) باستخدام FIMO وقاعدة بيانات JASPAR 2022 وجود ثلاثة موتيفات ارتباط عالية الثقة لـ HNF4α وثلاثة لـ HNF1α ضمن منطقة المحفز (promoter region) التي تسبق جين F7 بمسافة 1 kb. وقد وقعت الموتيفات المتوقعة ضمن مناطق محفز محفوظة، وتطابقت مع تسلسلات التعرف الخاصة بالعوامل النووية الكبدية (p < 1 × 10⁻4). ومن الجدير بالذكر أن اثنين من هذه الموتيفات المتوقعة وقعا بالقرب من طفرات تم الإبلاغ عنها سابقاً وترتبط بنقص عامل VII الوراثي. حيث وقع الموتيف المرتبط بـ HNF4α بالقرب من متغير المحفز c.-61T>G. وأظهرت مسارات ChIP-seq من ENCODE (HepG2) إثراءً في إشارات ارتباط HNF4α وHNF1α في مناطق المحفز هذه، مما يدعم أهميتها التنظيمية المفترضة ضمن هذا الإطار الحاسوبي (الشكل 1).
الارتباط بين F7 وتعبير عوامل النسخ الكبدية
كشفت بيانات النسخ المتساخية (Transcriptomic data) المأخوذة من عينات أنسجة الكبد من مشروع GTEx (العدد = 226) عن وجود ارتباط إيجابي ملحوظ بين تعبير F7 و HNF4A (معامل ارتباط بيرسون r = 0.68، و p < 0.001)، وبين تعبير F7 و HNF1A (r = 0.61، و p < 0.01). وتعيد هذه الارتباطات صياغة العلاقات التنظيمية المعروفة بين F7 و HNF4α و HNF1A17,18. وضمن الإطار الحسابي، تعمل هذه النتائج كخطوة تحقق داخلية، مما يدعم أن مسار العمل يعكس البيولوجيا الراسخة قبل توسيعه ليشمل سياقات المتغيرات في المحفز (الشكل 2).
تحليل الشبكة التنظيمية والمشهد الكروماتيني
توقع نمذجة الشبكة باستخدام STRING وCytoscape أن HNF4α وHNF1α تعمل كعُقد مركزية ضمن شبكة نسخ كبدية غنية بجينات التخثر. وقد أكدت البيانات الإبيجينومية من مشروع ENCODE أن محفز F7 في خلايا HepG2 وعينات الكبد الأولية يتداخل مع مناطق تتميز بتعديلات هيستون نشطة (H3K4me3 وH3K27ac) وكروماتين مفتوح (الجدول التكميلي 3 و الشكل 1أظهرت مجموعات بيانات النسخ المقارنة أن F7 وHNF4A وHNF1A يتم التعبير عنها بشكل مشترك في HepG2 وHuh7 وHep3B، وإن كانت بمستويات تعبير متفاوتة عبر الخطوط الخلوية. وفي الحالات التي توفرت فيها البيانات، كانت إمكانية الوصول إلى المحفز وملفات الهيستون في Huh7 وHep3B متوافقة بشكل عام مع HepG2، مما يدعم اتساق مشهد كروماتين المحفز النشط عبر الخطوط الخلوية المشتقة من الخلايا الكبدية.الشكل التكميلي 1)، بينما أظهرت الخطوط الخلوية غير الكبدية (على سبيل المثال، K562 وHeLa) انخفاضاً كبيراً في إمكانية الوصول إلى الكروماتين. وتدعم هذه النتائج التنظيم النوعي للكبد لـ F7، مع تسليط الضوء في الوقت ذاته على التباين بين النماذج الكبدية (الشكل 3).
تصميم gRNA لنظام CRISPRa والمحاكاة الحاسوبية لإعادة تنشيط النسخ
تم تصميم أربعة gRNAs لاستهداف محفز F7 القريب بالقرب من أنماط HNF4α ذات الدرجات العالية (الجدول التكميلي 4). وقد استوفت جميعها المعايير المحددة مسبقاً للنشاط العالي على الهدف (>60) والحد الأدنى من التأثيرات المتوقعة خارج الهدف. وتوقعت المحاكاة أن dCas9-VP64 وdCas9-p300 قد زادا بشكل فردي من التعبير المتوقع لـ F7 إلى 68% و76% من المرجع البري، على التوالي، بينما أدى التنشيط المشترك dCas9-VP64+p300 إلى زيادة التعبير المتوقع إلى 87% من مستويات النوع البري (الشكل 4B؛ الجدول التكميلي 5). وهنا، تم تعريف نشاط المحفز من النوع البري بنسبة 100% (1.0)، وتم تطبيع جميع القيم المحاكات وفقاً لهذا المرجع. وتشير هذه النتائج إلى أن تنشيط CRISPRa المشترك يمكن أن يعوض potentially الكبح النسخي الناجم عن طفرات المحفز، على الرغم من أن القيم تمثل تنبؤات حاسوبية بدلاً من التعبير المقاس تجريبياً. ومن المهم ملاحظة أن اعتماد استعادة F7 بوساطة CRISPRa على نشاط HNF4A الداخلي قد تم تقييمه صراحةً من خلال عمليات محاكاة تنظيمية ديناميكية. وقد عزز CRISPRa نسخ F7 ولكنه ظل معتمداً على HNF4A الوظيفي؛ وبناءً عليه، انخفضت الاستعادة المتوقعة بشكل كبير في ظل ظروف ضعف توافر HNF4A أو قصور وظيفته (الشكل 4).
In silico استراتيجية CRISPR-Cas9 HDR لاستعادة الزخرفة الجينية
بالنسبة لمتغيرات المحفز التي أُفيد بأنها تؤثر على التعرف على HNF4α، تم اختيار المتغير c.-61T>G كمتغير ممثل مرتبط بـ HNF4α، بينما تم التعامل مع c.-94C>G بشكل منفصل كمتغير معروف في موقع Sp1 بدلاً من اعتباره طفرة مؤكدة تؤدي إلى تعطيل HNF4α. وقد صُممت استراتيجيات تصحيح HDR باستخدام CRISPR-Cas9 عبر الحاسوب in silico للمتغير المرتبط بـ HNF4α. تم اختيار اثنين من الـ gRNAs، أُطلق عليهما gRNA-L وgRNA-R، ليحيطا بموقع المتغير، وتم تقييمهما بشكل فردي ومجتمعين. وقد تضمن قالب إصلاح HDR أحادي السلسلة المقابل تسلسل المحفز المرجعي الذي يحتوي على موقع ارتباط HNF4α التقليدي، مع أذرع تماثل بطول 100-bp. استُخدم التقييم in silico باستخدام Cas-OFFinder وCRISPRscan لتقييم خصوصية الدليل المتوقعة ونشاط القطع، بينما استُخدمت النمذجة القائمة على ICE لتقدير نتائج التعديل النظرية. تباينت كفاءات التعديل المتوقعة وفقاً لتكوين الدليل، حيث تم تقييم تصميم gRNA-L/gRNA-R المشترك كاستراتيجية دليل مزدوج وليس كـ gRNA ثالث مستقل. وبالرغم من الإبقاء على c.-94C>G في تحليل المحفز الأوسع نظراً لأهميته التنظيمية المؤكدة، إلا أنه لم يتم تفسيره كمتغير يعطل موتيف HNF4α في نموذج HDR. تمثل هذه النتائج تنبؤات حاسوبية لتصحيح تسلسل المحفز المحتمل، ولا تثبت كفاءة HDR تجريبياً، أو استعادة ارتباط HNF4α، أو استعادة نشاط محفز F7 من النوع البري (الشكل 5).
إمكانية الوصول إلى الكروماتين وقدرة التنشيط فوق الجيني
أدى تحليل بيانات ATAC-seq وفرط الحساسية لإنزيم DNase I في خلايا HepG2 إلى التنبؤ بأن جميع مواقع استهداف CRISPRa تقع ضمن مناطق ذات إمكانية وصول عالية للكروماتين. وقد دعّم دمج هذه النتائج مع بيانات HNF4α ChIP-seq وإثراء H3K27ac إمكانية تنشيط هذه المواقع. كما توقعت محاكاة التحرير فوق الجيني نتائج إيجابية لإعادة تشكيل الكروماتين، وتوقعت تعزيز استقطاب عوامل النسخ عند التنشيط بوساطة CRISPRa (الشكل 6).
تقييم النوعية على نطاق الجينوم لتصميمات gRNA
In silico كشف فحص gRNA الخاص بـ CRISPRa عن نوعية تسلسل عالية عبر كل من نهجي CRISPRa وHDR (الجدول التكميلي 6). وقد استبعد تحليل CRISPOR وBenchling أي gRNAs ذات احتمالية عالية للاستهداف غير المحدد (off-targets) ضمن مناطق المحفز النشطة نسخياً. وبالنسبة لتصميمات CRISPRa، أشارت بيانات ATAC-seq وH3K27ac المشتقة من ENCODE إلى أن جميع المواقع المستهدفة المختارة تقع ضمن كروماتين مفتوح خاص بـ F7. ولم تتداخل أي gRNAs مرشحة مع مناطق المعززات أو عناصر المحفز المشتركة. كما دعمت تعليقات حالة الكروماتين من ChromHMM وSegway تصنيف هذه المناطق كمحفزات نشطة خاصة بالخلايا الكبدية، دون تداخل مع محفزات الجينات المجاورة ذات التنظيم المشترك. وتوقع تسجيل نقاط النوعية الحسابية المركبة، التي تدمج تشابه تسلسل الاستهداف غير المحدد، وإمكانية الوصول إلى الكروماتين، والتعليقات التنظيمية، احتمالية منخفضة للتنشيط النسخي غير المقصود (0.4%–0.6%) للأدلة المختارة لـ CRISPRa (الشكل 7). ولتسهيل إمكانية التكرار والتنفيذ المتسق، تم تلخيص مشكلات سير العمل الحسابي الشائعة، وأسبابها المحتملة، والإجراءات التصحيحية الموصى بها في الجدول التكميلي 7.
توافر البيانات:
يؤكد المؤلفون أن جميع البيانات التي تدعم نتائج هذه الدراسة مقدمة ضمن المقال ومتاحة في Zenodo عبر الرابط: https://doi.org/10.5281/zenodo.21735831
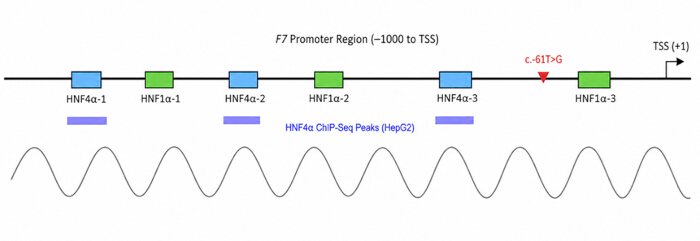
الشكل 1: أنماط ربط HNF4α و HNF1α المتوقعة في محفز F7. تمثيل تخطيطي لمنطقة المحفز التي تسبق جين F7 بطول 1 kb، حيث تظهر ستة أنماط ربط متوقعة لـ HNF4α و HNF1α (المربعات الملونة). وتتراكب هذه الأنماط مع درجات الحفظ في الفقاريات (PhyloP) وموضحة بالمتغيرات المعروفة المرتبطة بالأمراض (العلامة الحمراء)، بما في ذلك الطفرة المسببة للمرض c.-61T>G. تشير قمم HNF4α ChIP-seq من خلايا HepG2 إلى وجود إثراء. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
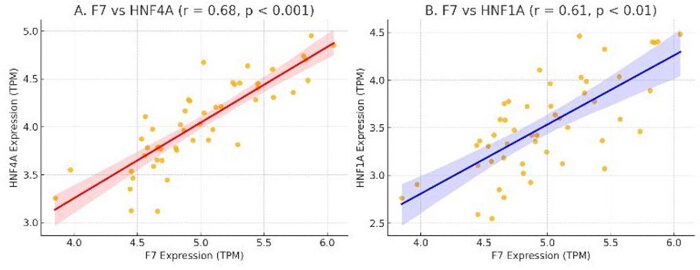
الشكل 2: الارتباط بين F7 وعوامل النسخ الكبدية. (أ) يُظهر تعبير F7 ارتباطاً إيجابياً قوياً مع HNF4A (r = 0.68, p < 0.001). (ب) يرتبط تعبير F7 أيضاً بشكل إيجابي مع HNF1A (r = 0.61, p < 0.01). تمثل كل نقطة عينة كبد من مجموعة بيانات GTEx. تظهر خطوط الانحدار مع فترات ثقة 95%. هذه الارتباطات تلازمية ولا تثبت وجود علاقة سببية تنظيمية مباشرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
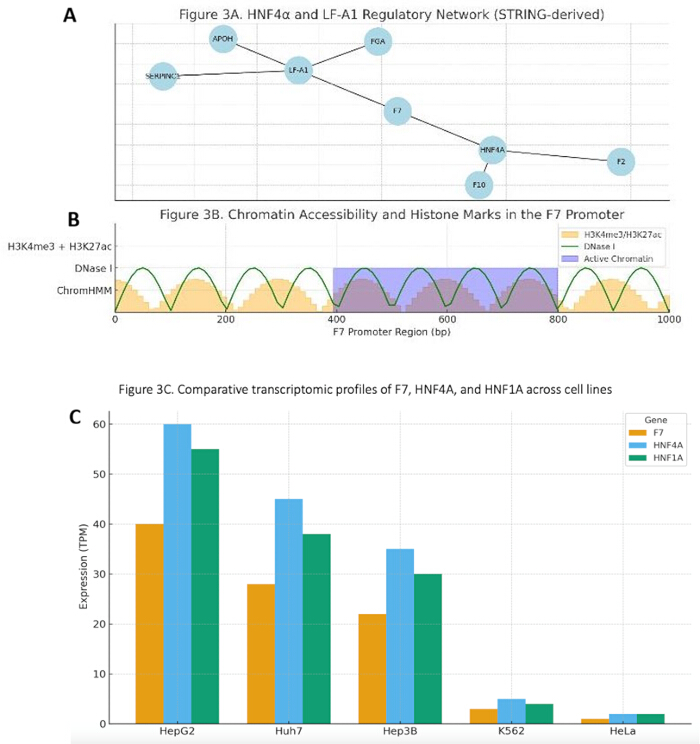
الشكل 3: إثراء الشبكة التنظيمية الكبدية والمشهد الكروماتيني. (A) تُظهر الشبكة النسخية المشتقة من STRING والمتمركزة حول HNF4α ارتباطات تنظيمية متوقعة مع F7 وجينات أخرى مرتبطة بالتخثر. (B) توضح مسارات المتصفح بنمط UCSC الكروماتين المفتوح (DNase I)، وتعديلات الهيستون (H3K4me3/H3K27ac)، وتجزئة حالة الكروماتين (ChromHMM) حول محفز F7 في خلايا HepG2، وهو ما يتفق مع كونها منطقة نشطة نسخياً. (C) يُظهر تحليل النسخ المقارن تعبيراً مشتركاً لـ F7 وHNF4A وHNF1A في خطوط الخلايا الكبدية (HepG2، Huh7، Hep3B) بمستويات متغيرة، بينما تظهر الخطوط غير الكبدية (K562، HeLa) تعبيراً منخفضاً. وكانت إمكانية الوصول إلى المحفز وملفات الهيستون في Huh7 وHep3B متوافقة بشكل عام مع HepG2. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
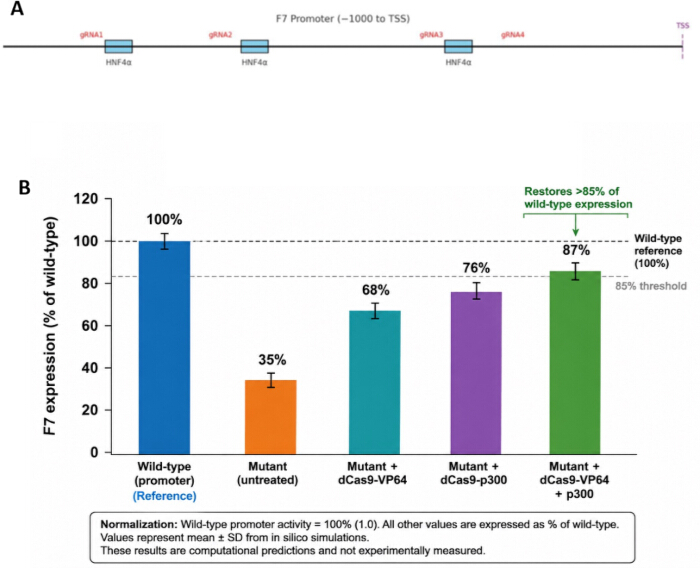
الشكل 4: تصميم gRNA لتقنية CRISPRa ومحاكاة التنشيط النسخي. (A) مخطط يوضح المواقع المتوقعة للحمض النووي الريبوزي الموجه لتقنية CRISPRa (gRNA1–gRNA4) بالنسبة لزخارف ربط HNF4α وموقع بدء النسخ (TSS) للجين F7. (B) المخرج النسخي المحاكى لـ F7 في ظل استراتيجيات CRISPRa المختلفة في سياقات المحفز من النوع البري والمحفز الطافر. تم تطبيع تعبير F7 بالنسبة للمحفز من النوع البري، والذي حُدد بنسبة 100% (1.0). وفي نموذج المحفز الطافر، كان التعبير المتوقع 35% من النوع البري، وارتفع إلى 68% باستخدام dCas9-VP64، و76% باستخدام dCas9-p300، و87% مع التنشيط المشترك لـ dCas9-VP64+p300، وبذلك تجاوز عتبة الـ 85%. تضمنت عمليات المحاكاة in silico مدخلات إبيجينومية وترانسكريبتومية من خلايا HepG2، وهي تمثل تنبؤات حوسبية بدلاً من تعبير مقاس تجريبياً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
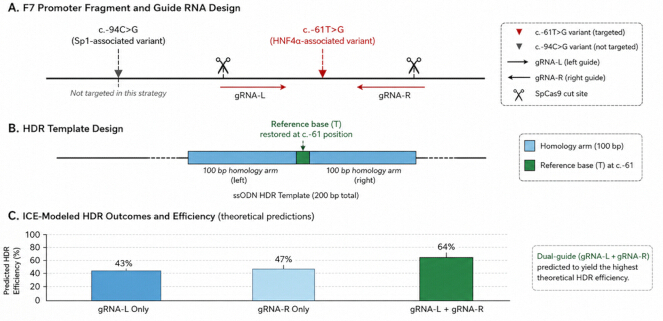
الشكل 5: استراتيجية HDR باستخدام CRISPR-Cas9 لتصحيح العتيبة (motif). (A) مخطط لمنطقة المحفز F7 يوضح المتغير c.-61T>G (المرتبط بـ HNFa) المستهدف للتصحيح. تمت الإشارة إلى المتغير c.-94C>G (المرتبط بـ Sp1) كمرجع، حيث لم يتم استهدافه في هذه الاستراتيجية. تم تصميم اثنين من الحمض النووي الريبي الموجه SpCas9 (gRNA-L و gRNA-R) ليحيطا بموقع c.-61T>G. (B) قالب إصلاح HDR أحادي السلسلة (sODN) يحتوي على القاعدة المرجعية (T) في الموضع c.-61، وتحيط به أذرع تماثل بطول 100-bp. (C) تنبؤات نموذج ICE لكفاءة التعديل للموجهات الفردية وتكوين الموجه المزدوج (gRNA-L + gRNA-R). من المتوقع أن تحقق استراتيجية الموجه المزدوج أعلى كفاءة نظرية لـ HDR. تمثل جميع النتائج تنبؤات حاسوبية ولا تثبت نجاح HDR، أو استعادة ارتباط HNF4a، أو استعادة عملية نسخ F7. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
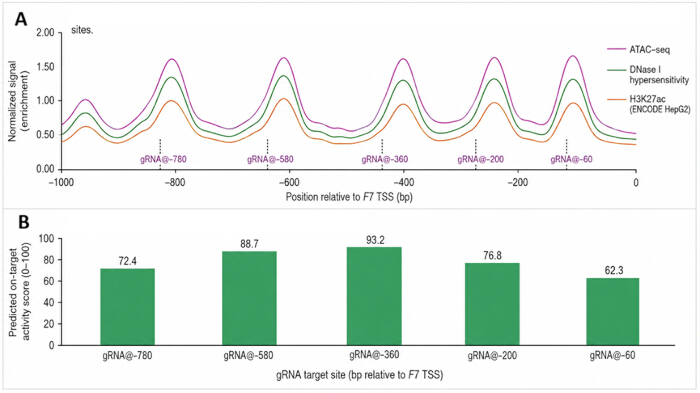
الشكل 6: إمكانية الوصول إلى الكروماتين وقدرة تنشيط موقع استهداف CRISPRa. (A) توضح مسارات ATAC-seq، والحساسية المفرطة لـ DNase I، وإثراء H3K27ac عبر المنطقة الواقعة في المنبع بطول 1-kb من محفز F7 المناطق التي تزداد فيها إمكانية الوصول إلى الكروماتين والكروماتين التنظيمي النشط. تشير الخطوط المتقطعة الرأسية إلى مواقع استهداف gRNA الخمسة لـ CRISPRa (gRNA@−780، وgRNA@−740، وgRNA@−580، وgRNA@−360، وgRNA@−200). (B) تشير درجات التنشيط النسخي المتوقعة لكل gRNA إلى أن استهداف المناطق التي يسهل الوصول إليها والغنية بـ H3K27ac قد يؤدي إلى تنشيط أكبر لـ F7، مع أعلى نشاط متوقع عند gRNA@−580. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
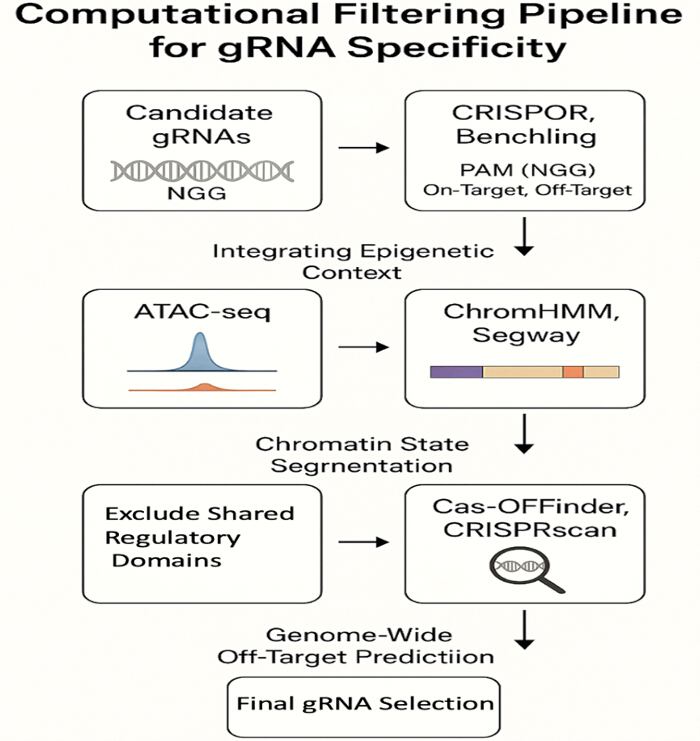
الشكل 7: مسار الترشيح الحسابي لخصوصية gRNA. نظرة عامة تخطيطية على مسار in silico المستخدم لتحديد gRNAs ذات الخصوصية العالية لـ CRISPRa و HDR. تدمج هذه العملية الترشيح القائم على التسلسل (CRISPOR، Benchling)، والسياق فوق الجيني (ATAC-seq، H3K27ac)، وتجزئة حالة الكروماتين (ChromHMM، Segway)، وأدوات التنبؤ بالأهداف غير المحددة على مستوى الجينوم (Cas-OFFinder، CRISPRscan) لتقليل مخاطر التنشيط الانتقالي والقطع المتوقعة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: مقارنة لمجالات وصول الكروماتين وملفات تعديل الهيستون المرتبطة بالمحفز عند محفز F7 في خلايا HepG2 وHuh7 وHep3B. تُظهر إمكانية الوصول في تسلسل ATAC-seq المعياري (A) جنباً إلى جنب مع إثراء H3K27ac (B) وH3K4me3 (C) وجود كروماتين نشط للمحفز بشكل متسق وموسع عبر الخطوط الخلوية الثلاثة المشتقة من الخلايا الكبدية (D)، مما يدعم استخدامها كنماذج حوسبية لتحليلات تنظيم F7.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 1: المعاملات المستخدمة في النموذج النسخي الحسابي. ملخص لقيم المعاملات المستخدمة في محاكاة تنظيم نسخ F7 القائمة على برنامج CellDesigner. تتضمن المعاملات معاملات نشاط عوامل النسخ لـ HNF4α وHNF1α، ومعدلات إمكانية الوصول للمروج المشتقة من مجموعات بيانات الكروماتين الخاصة بـ ENCODE، وثوابت معدل النسخ، ومعاملات تحلل mRNA.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 2: نقاط تفتيش سير العمل الحسابي. ملخص لمسار تحليل in silico، بما في ذلك الأدوات الحسابية، ومجموعات البيانات المدخلة، ومعايير التصفية الرئيسية، والمخرجات المتوقعة في كل مرحلة من مراحل توصيف المحفزات، والتنبؤ بمواقع ارتباط عوامل النسخ، واختيار أدلة CRISPRa، وتقييم إمكانية الوصول إلى الكروماتين، وتقييم التأثيرات خارج الهدف، وتحليلات تحرير الجينوم المحاكية. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 3: مقارنة ملامح إمكانية الوصول إلى الكروماتين وتعديلات الهيستون المرتبطة بالمحفز المستمدة من مشروع ENCODE عند محفز F7 في خلايا HepG2 وHuh7 وHep3B. تُظهر إمكانية الوصول المقيسة بتقنية ATAC-seq، وإثراء H3K27ac وH3K4me3، وتصنيفات حالة المحفز وفقًا لـ ChromHMM بنية محفز نشطة متسقة بشكل عام عبر الخطوط الخلوية الثلاثة المشتقة من الخلايا الكبدية. تمثل القيم ملخصات مستمدة حاسوبيًا تُستخدم لدعم التحليلات المقارنة in silico.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 4: تحليل كامل للنوعية والأهداف غير المقصودة لـ CRISPRa guide RNAs المرشحة التي تستهدف محفز F7. يلخص الجدول تسلسلات الدليل، والكفاءة المتوقعة لاستهداف الهدف، ودرجات النوعية، وتوقعات الأهداف غير المقصودة، وإمكانية الوصول إلى الكروماتين، والتوصيفات التنظيمية، والتصنيف المركب المستخدم للاختيار الحاسوبي للدليل. تمثل جميع القيم تنبؤات in silico.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 5: تم إنشاء درجات تنظيمية متوقعة باستخدام الإطار الحسابي الذي يدمج إمكانية الوصول للمحفز، وإشغال عوامل النسخ، ومعلمات تنشيط CRISPRa. تمثل القيم تقديرات in silico معيارية بالنسبة لمحفز F7 من النوع البري (الذي تم تعيينه كـ 1.0؛ 100% تعبير). هذه المحاكاة تهدف إلى توليد الفرضيات ولا تمثل نشاط النسخ التجريبي المقاس لـ F7.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 6: تحليل التأثيرات خارج الهدف على مستوى الجينوم ودرجات الخصوصية المركبة لـ RNA موجه مختار لـ CRISPRa وHDR يستهدف المحفز F7. يلخص الجدول الأداء المتوقع على الهدف، ومقاييس الخصوصية، وملفات التأثيرات خارج الهدف، وسياق الكروماتين، ودرجات المخاطر المركبة المستخدمة لتقييم خصوصية الدليل وتقدير مخاطر التنشيط النسخي عبر الجينوم in silico.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 7: ملخص لمشكلات سير العمل الحسابية الشائعة التي تمت مواجهتها أثناء تحليل محفز F7 والإجراءات التصحيحية الموصى بها لضمان القابلية للتكرار، واتساق البيانات، ونتائج النمذجة الموثوقة in silico.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تقدم هذه الدراسة إطار عمل حوسبي بحت لتوليد الفرضيات، يهدف إلى فحص التنظيم النسخي لجين F7 وتحديد أولويات استراتيجيات استهداف المحفز المرشحة في حالات نقص العامل السابع الوراثي (FVII deficiency). ومن خلال دمج تحليل الزخارف (motif analysis)، والارتباطات النسخية، وتوصيفات الكروماتين، وتحديد أولويات gRNA، يتنبأ هذا المسار بالعلاقات التنظيمية وجدوى التدخل بدلاً من إثبات الاستعادة الوظيفية. وتتمثل المساهمة الرئيسية لهذا العمل في التضييق المنهجي للأهداف القابلة للاختبار تجريبياً ضمن محفز جين F7.
من الناحية الميكانيكية، تدعم النتائج نموذجاً تكون فيه عوامل النسخ الغنية في الخلايا الكبدية HNF4α وHNF1α يتعاون للحفاظ على المستوى الأساسي F7 النسخ. تحديد مواقع الارتباط عالية الألفة والمحفوظة لـ HNF4α يشير تداخل الزخارف مع المتغيرات الممرضة في المحفز إلى أن فقدان قدرة الارتباط التنظيمي المقترن (cis-regulatory binding) يعد مساهماً آلياً محتملاً في الحد من F7 نسخ جيني4,5,10في الشبكات الجينية الكبدية، يعمل HNF4α يعمل كمستقبل نووي شبيه بالبروتين الرائد يقوم بتثبيت إمكانية الوصول إلى المحفز واستقطاب معقدات المنشط المساعد، بينما يقوم HNF1α غالبًا ما تعمل بشكل تآزري لتعزيز الناتج النسخي7,11,12في إطار قيود الـ عبر الحاسوب أدى النموذج، أو انخفاض ألفة الزخرفة، أو المحاكاة لنضوب عامل النسخ (TF) إلى انخفاض القيمة المتوقعة لـ F7 النسخ، بما يتفق مع هذه البنية التنظيمية التعاونية.
إن الارتباط القوي المحدد للكبد والملاحظ بين تعبير F7 و HNF4A و HNF1A يدعم، رغم أنه لا يثبت، وجود برنامج تنظيمي مشترك. ومن المهم الإشارة إلى أن هذه الارتباطات هي ارتباطات تلازمية ولا يمكنها إثبات تحكم نسخ مباشر. ومع ذلك، فإن طوبولوجيا الشبكة التي تضع HNF4α/HNF1α في عقد مركزية للوحدات المرتبطة بالتخثر تتفق ميكانيكياً مع الأدبيات التجريبية السابقة وتدعم منحها الأولوية في الدراسات المستقبلية19,20.
يوفر التكامل فوق الجينومي طبقة آلية إضافية. ويشير التداخل بين زخارف HNF4α المتوقعة وعلامات الكروماتين النشطة (H3K4me3، H3K27ac) إلى أن المحفز القريب لـ F7 يقع في بيئة كروماتينية ميسرة في مجموعات البيانات المشتقة من الخلايا الكبدية21,22. وفي السياق الحسابي، تدعم هذه الإمكانية الوصول الفرضية النظرية بأن استراتيجيات التنظيم التصاعدي للنسخ، مثل CRISPRa، يمكن أن تستهدف هذا الموضع. ومع ذلك، فإن حالة الكروماتين تعتمد بشكل كبير على نوع الخلية والسياق، وقد لا تمثل الإشارات المشتقة من ENCODE الخلايا الكبدية للمرضى أو الحالات المرضية بشكل كامل23,24.
يوفر نمذجة استراتيجيات CRISPRa و HDR رؤية تنبؤية حول نقاط الارتكاز التنظيمية المحتملة. وتشير المحاكاة إلى أن استهداف زخارف HNF4α ذات الألفة العالية قد يؤدي إلى زيادة نسخ F7 الممنمذج تحت ظروف معينة من المعاملات، بينما يمكن لتصحيح الزخارف القائم على HDR نظرياً استعادة بنية الارتباط الكنسية. ومن الناحية الميكانيكية، يُتوقع أن تعمل CRISPRa من خلال التوظيف المحلي للمنشطات المرافقة للنسخ (مثل VP64 أو p300)، والتي قد تعمل بالتآزر مع عوامل النسخ الكبدية الداخلية عند وجودها10,12,16.
توقع النموذج انخفاض الاستجابة لتقنية CRISPRa عند تراجع نشاط HNF4α، مما يشير إلى الاعتماد على الدوائر التنظيمية الداخلية السليمة. ومن المتوقع أن تعتمد فعالية CRISPRa على سلامة آليات النسخ الكبدي. قد تكون استجابة المرضى الذين يعانون من متغيرات ممرضة في HNF4A ضعيفة تجاه CRISPRa لأن هذه التقنية تعمل على تعزيز النسخ الداخلي بدلاً من استبداله. وبناءً على ذلك، فإن هذا الإطار هو الأكثر قابلية للتطبيق على المرضى الذين لديهم متغيرات في محفز F7 مع نشاط سليم لـ HNF4A.
لا تؤكد تنبؤات الزخارف (motif predictions) ارتباط عوامل النسخ in vivo، كما أن تعليقات الكروماتين المستمدة من مجموعات البيانات العامة قد لا تعكس الحالة التنظيمية لدى المرضى الذين لديهم متغيرات في محفز F7. وبالمثل، لا يمكن لتحليلات الارتباط التمييز بين العلاقات التنظيمية المباشرة وغير المباشرة.
يعتمد النموذج النسخي الديناميكي على تقدير المعاملات وافتراضات تبسيطية فيما يتعلق بتعاون عوامل النسخ (TF)، ووزن الكروماتين، وحركية النسخ. وبالرغم من تطبيق الضبط الموجه بالحساسية، يظل النموذج تجريداً للتنظيم الجيني الكبدي وقد لا يستوعب السلوكيات التنظيمية غير الخطية أو النوعية للسياق. ومن شأن التغييرات الطفيفة في تحديد المعاملات أن تغير من أحجام الإنقاذ المتوقعة. ولتحسين متانة النموذج، تم اختيار معاملات نشاط عوامل النسخ وأوزان إمكانية وصول الكروماتين المقدرة، كلما أمكن ذلك، من مجموعات بيانات بيولوجية متاحة علناً وتم تنقيحها via الضبط الموجه للمعاملات بناءً على الحساسية. وعلى الرغم من أن التصنيف النوعي لاستراتيجيات التنظيم المرشحة ظل مستقراً عبر نطاقات المعاملات المعقولة بيولوجياً، إلا أنه يجب تفسير التوقعات الكمية للإنقاذ النسخي بحذر لأنها لا تزال تعتمد على افتراضات النموذج. وبناءً على ذلك، فإن نسب الإنقاذ المتوقعة مخصصة في المقام الأول لتحديد الأولويات المقارنة وليس كتقديرات دقيقة للفعالية البيولوجية.
اعتمد ترتيب أولويات أدلة CRISPR على خوارزميات تسجيل in silico التي تتنبأ بشكل غير كامل بكفاءة التحرير أو التنشيط في الواقع. ولا يمكن لتقييم مخاطر التأثيرات خارج الهدف، رغم تعدد مستوياته، أن يكون بديلاً عن المقاييس التجريبية على مستوى الجينوم بأكمله مثل GUIDE-seq أو Digenome-seq25,26. علاوة على ذلك، فإن التنبؤ الحسابي بالتأثيرات خارج الهدف وحده غير كافٍ لإثبات السلامة الحيوية لتحرير الجينوم سريرياً. ورغم دمج أدوات تنبؤ متعددة لترتيب أولويات حمض RNA الموجه، فإن السلامة الحيوية القاطعة تتطلب مقاييس للتأثيرات خارج الهدف على مستوى الجينوم، وتوصيفاً ترانسكريبتومياً، وتحققاً وظيفياً طويل الأمد. كما ينبغي أن يتضمن التطوير الانتقالي المستقبلي أنظمة توصيل CRISPR عابرة، وتحسيناً للجرعات، وتقييماً سمياً شاملاً لتقليل التأثيرات الجينومية أو الإبيجينومية غير المقصودة. وبالمثل، تكون كفاءة HDR في الخلايا الكبدية منخفضة عادةً in vivo، ولا تقوم المحاكاة الحالية بنمذجة التنافس بين مسارات إصلاح DNA أو تأثيرات الدورة الخلوية.
لا تزال الجدوى الانتقالية غير مؤكدة، حيث يمثل التوصيل الفعال والآمن للأنظمة القائمة على تقنية CRISPR إلى الخلايا الكبدية عائقاً رئيسياً. وتواجه نواقل AAV قيوداً تتعلق بسعة الحمولة والاستجابة المناعية، بينما تتطلب أنظمة الجسيمات النانوية الدهنية مزيداً من التحسين لضمان الخصوصية الكبدية والديمومة27,28. ولم يتم نمذجة هذه الاعتبارات العملية بشكل صريح، وقد تؤثر بشكل جوهري على إمكانية التطبيق في العالم الحقيقي. وبالمثل، يجب النظر إلى استراتيجية تصحيح المحفز القائمة على إصلاح الموجه بالتماثل (HDR) كإثبات مفهوم حاسوبي بدلاً من كونها نهجاً علاجياً محسناً سريرياً. وعلى الرغم من أن كفاءات التحرير المتوقعة التي تتراوح بين 45%–65% مشجعة ضمن الإطار الحاسوبي، إلا أن كفاءة HDR الفعلية في الخلايا الكبدية الناضجة محدودة بشكل عام لأن الإصلاح الموجه بالتماثل غير فعال نسبياً في الخلايا غير المنقسمة. وبناءً على ذلك، قد توفر التقنيات الناشئة مثل التحرير الأولي (prime editing) أو تحرير القواعد (base editing) في نهاية المطاف مناهج أكثر عملية من الناحية السريرية لتصحيح متغيرات المحفز in vivo. ورغم أن مجموعات بيانات ENCODE المشتقة من خلايا HepG2 توفر تعليقات توضيحية كبدية شاملة، إلا أنها لا يمكن أن تحاكي الخلايا الكبدية البشرية الأولية بشكل كامل. لذا، يجب اعتبار التحليلات الحالية إطاراً أولياً لتحديد الأولويات حاسوبياً يتطلب التحقق من صحته في الخلايا الكبدية الأولية، والعضويات الكبدية، والنماذج الحيوانية المناسبة قبل التفكير في الانتقال السريري. وتظل الأهمية السريرية للزيادة الجزئية في تعبير F7 تخمينية في هذا السياق؛ فعلى الرغم من أن الملاحظات السريرية السابقة تشير إلى أن الزيادات الطفيفة في FVII في البلازما يمكن أن تقلل من مخاطر النزيف، إلا أن الدراسة الحالية لا تثبت أن التغيرات النسخية المتوقعة ستترجم إلى تصحيح وظيفي للبروتين أو فائدة سريرية16,17.
وعلى الرغم من هذه القيود، فإن لهذا الإطار قيمة مفاهيمية أوسع؛ حيث يوضح خط المعالجة التكاملي كيفية تحليل بنية المحفز، والاعتماد على عوامل النسخ، وسياق الكروماتين بشكل مشترك لتحديد أولويات التدخلات التنظيمية للجينات التي يتم التعبير عنها في الكبد والتي تتأثر بالمتغيرات غير المشفرة29,30,31.
بالإضافة إلى HNF4α وHNF1α، يمثل SP1 منظمًا نسخياً هاماً يتعاون مع العوامل الغنية في الخلايا الكبدية لإنشاء إمكانية الوصول إلى الكروماتين والنشاط النسخي الخاص بالكبد. وبناءً على ذلك، من المرجح أن النشاط التنظيمي للمحفز F7 يتم بوساطة شبكة منسقة من عوامل النسخ تشمل HNF4α وHNF1α وSP1، بدلاً من الاعتماد على أحداث ارتباط عوامل فردية بمفردها. وبينما سبق وصف المناطق التنظيمية المرتبطة بـ HNF4α، فإن الإطار الحسابي الحالي يعيد تحديد هذه العناصر التنظيمية ويقيم إمكانية استعادتها المستهدفة باستخدام نهج CRISPR.
يوجه هذا الإطار عملية التصميم العلاجي من خلال دمج التنبؤ بنمط عامل النسخ مع الاستهداف القائم على تقنية CRISPR. وقد استُخدمت أنماط HNF4α التنظيمية المتنبأ بها كمنطاق مرشحة لتصميم حمض نووي ريبوزي موجه (gRNA) للتنشيط بواسطة CRISPR (CRISPRa)، وذلك بهدف تعزيز نسخ F7 الداخلي دون تغيير التسلسل الجينومي. علاوة على ذلك، يمكن تحديد أولويات الأنماط التنظيمية المختلة أو غير المثالية لإجراء تصحيح للتسلسل بوساطة CRISPR-Cas9 لاستعادة قدرتها المتنبأ بها على الارتباط بعامل النسخ. وتبرز هذه التطبيقات فائدة النموذج كمنصة فحص دقيقة للتنظيم الجينومي، بينما يظل التحقق التجريبي ضرورياً لتأكيد النشاط التنظيمي والجدوى العلاجية. هذا المسار مخصص لمتغيرات محفز F7 المتنبأ بأنها تعطل ارتباط HNF4α أو HNF1α. كما يدمج سير العمل تسلسلات المحفز مع مجموعات البيانات العامة للترانسكريبتوم، والإبيجينوم، وChIP-seq. ونظراً لأن هذا الإطار يعتمد على البنية التنظيمية الخاصة بالكبد، فإنه يكون أكثر قابلية للتطبيق على الخلايا الكبدية أو الأنظمة التجريبية المشتقة من الخلايا الكبدية، ولا ينبغي تعميمه على الأنسجة غير الكبدية. علاوة على ذلك، يعتمد الأداء التنبئي لهذا المسار على جودة مجموعات البيانات العامة المتاحة، وبالتالي، قد لا يشمل بشكل كامل التباين الإبيجينومي الخاص بالمريض أو إعادة تشكيل الكروماتين المرتبطة بالمرض.
ينبغي أن تشمل الدراسات المستقبلية تقنية ChIP-qPCR أو تقنية CUT&؛ إجراء التشغيل للتأكد من HNF4α/HNF1α الإشغال في الزخارف ذات الأولوية، والمقايسات الوظيفية لتقنية CRISPRa في الخلايا المشتقة من الخلايا الكبدية، وقياسات مستوى البروتين لنشاط العامل السابع (FVII). بالإضافة إلى ذلك، النماذج المحددة للأليلات لمتغيرات المحفز مثل c.-61T>سيكون من الضروري إجراء G لتحديد ما إذا كانت الآليات التنظيمية المتوقعة تعمل بطريقة تعتمد على الطفرة.
مقارنةً باستراتيجيات استبدال الجينات التقليدية، التي تعتمد على التوصيل الخارجي للتسلسل المشفر لـ F7، يسعى إطار عمل CRISPRa المقترح إلى تعزيز نسخ موقع F7 الداخلي مع الحفاظ على التنظيم الجينومي الأصلي. وقد أظهرت دراسات سابقة إمكانية استعادة نشاط محفز F7 بواسطة TALE وCRISPRa16,17. وفي المقابل، تقدم الدراسة الحالية إطار عمل حوسبي متكامل لتحديد أولويات استراتيجيات استهداف المحفز قبل التحقق التجريبي. ومن الناحية النظرية، يعمل تصحيح المحفز بوساطة HDR على استعادة تسلسل DNA الأصلي، ولكنه يعتمد على الإصلاح الموجه بالتماثل الذي يتسم بعدم الكفاءة نسبياً، خاصة في الخلايا الكبدية الساكنة. وبناءً على ذلك، يضع إطار العمل الحوسبي الحالي CRISPRa كاستراتيجية تنظيمية تكميلية قد تكون مفيدة لمتغيرات المحفز التي يُتوقع أن تعيق ارتباط عوامل النسخ، مع تجنب التعديل الدائم في التسلسل الجينومي. وتهدف هذه المقارنات إلى تحديد أولويات النهج المرشحة للتقييم التجريبي المستقبلي بدلاً من إثبات التفوق العلاجي.
على الرغم من هذه الرؤى الآلية، يجب التأكيد على عدة قيود مهمة. أولاً، وبشكل أكثر أهمية، فإن جميع النتائج مستمدة من تحليلات حاسوبية ونماذج محاكاة؛ ولم يتم إجراء أي تحقق تجريبي. ويمثل غياب التحقق التجريبي القيد الرئيسي لهذه الدراسة. إن جميع أحداث ارتباط عوامل النسخ المتوقعة، والتنشيط النسخي بوساطة CRISPRa، وكفاءات الإصلاح الموجه بالتناظر (HDR)، وتقييمات التأثيرات خارج الهدف هي تنبؤات حاسوبية، وبالتالي يجب تفسيرها كفرضيات قابلة للاختبار وليس كظواهر بيولوجية مثبتة تجريبياً. ويجب أن تعمل الدراسات المستقبلية على التحقق من هذه النتائج باستخدام مقايسات لوسيفيراز للمروج المبلّغ (luciferase promoter-reporter assays)، أو تقنية ChIP-qPCR، أو CUT&؛ إجراء تجارب لتأكيد HNF4α/HNF1α الإشغال، ودراسات تنشيط CRISPRa في الخطوط الخلوية المشتقة من الخلايا الكبدية أو الخلايا الكبدية الأولية، وتحليلات PCR الكمية واللطخة الغربية للتعبير عن F7، ومقايسات التخثر لتحديد استعادة نشاط FVII الوظيفي.
وفي الختام، تقدم هذه الدراسة إطاراً مستمداً حسابياً ومبنياً على الآليات الجزيئية يشير إلى أن خلل البنية التنظيمية لـ HNF4α/HNF1α قد يساهم في تقليل نسخ F7، وأن التعديل المستهدف للمحفز يمكن أن يعزز نشاط الجين الممنذج من الناحية النظرية. ومع ذلك، تظل جميع الاستنتاجات تنبؤية ورهناً بالتحقق التجريبي. ومن الأفضل تفسير هذا العمل كجهد منهجي لتوليد الفرضيات بدلاً من كونه دليلاً على الفعالية العلاجية.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
يعرب المؤلفون عن امتنانهم لعمادة الدراسات العليا والبحث العلمي بجامعة بيشة لدعم هذا العمل من خلال برنامج دعم البحث السريع. علاوة على ذلك، تحظى هذه الدراسة بدعم عبر تمويل من جامعة الأمير سطام بن عبد العزيز، مشروع رقم (PSAU/2026/R/1448)
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Benchling | Benchling Inc. | منصة إلكترونية | تُستخدم لتصميم الحمض النووي الريبوزي الموجه لتقنية CRISPR وتحليل تسلسل المحفز. |
| Cas-OFFinder | مركز هندسة الجينوم | الإصدار الحالي | تُستخدم للتنبؤ بمواقع القطع غير المستهدفة لتقنية CRISPR-Cas9 على مستوى الجينوم كاملاً. |
| CellDesigner | معهد بيولوجيا الأنظمة | الإصدار 4.4 | تُستخدم في النمذجة الحاسوبية للتنظيم النسخي ومحاكاة تقنية CRISPRa. |
| ChromHMM | معهد برود (Broad Institute) | الإصدار الحالي | تُستخدم لتقسيم حالة الكروماتين وتوصيفها. |
| CRISPOR | فريق CRISPOR | إصدار الويب الحالي | تُستخدم لتقييم كفاءة الحمض النووي الريبي الموجه والنشاط المتوقع خارج الهدف. |
| CRISPRscan | فريق تطوير CRISPRscan | الإصدار الحالي | تُستخدم لتقدير كفاءة القطع المتوقعة لتقنية CRISPR-Cas9. |
| سيتوسكيب (Cytoscape) | اتحاد سيتوسكيب (Cytoscape Consortium) | v3.9.1 | منصة تحليل وتصور الشبكات. |
| قاعدة بيانات dbSNP | NCBI | الإصدار الحالي | تُستخدم لتحديد تعدد أشكال النوكليوتيدات المفردة المعروفة داخل محفز F7. |
| نظام dCas9-p300 CRISPRa (نموذج حوسبي) | غير قابل للتطبيق | غير قابل للتطبيق | منشط فوق جيني مصمم حاسوبياً مستخدم للمحاكاة فقط؛ لم يتم استخدام أي كاشف تجريبي. |
| نظام dCas9-VP64 CRISPRa (نموذج حاسوبي) | غير قابل للتطبيق | غير قابل للتطبيق | منشط نسخ مُنمذج حاسوبياً مستخدم للمحاكاة فقط؛ لم يتم استخدام أي كاشف تجريبي. |
| قاعدة بيانات مشروع ENCODE | اتحاد ENCODE | الإصدار الحالي | مصدر مجموعات بيانات الترسيب المناعي للكروماتين متبوعاً بالتسلسل (ChIP-seq)، وتيسير الوصول للكروماتين متبوعاً بالتسلسل (ATAC-seq)، وفرط الحساسية لإنزيم DNase I، وتعديلات الهيستون. |
| تسلسل محفز F7 (GenBank) | المركز الوطني لمعلومات التقانة الحيوية (NCBI) | NG_009262.1 | التسلسل المرجعي لجين F7 البشري المستخدم لاسترجاع المحفز وتوصيفه. |
| FIMO (البحث عن حدوثات العتيبة الفردية) | مجموعة أدوات MEME | v5.5.0 | أداة حوسبية تُستخدم لمسح محفز F7 بحثاً عن مواقع ارتباط عوامل النسخ المتوقعة. |
| بوابة GTEx | اتحاد GTEx | الإصدار 8 (v8) | مصدر بيانات الترانسكريبتوميات للكبد (TPM) لتحليلات الارتباط. |
| قاعدة بيانات طفرات الجينات البشرية (HGMD) | HGMD Professional | الإصدار الحالي | تُستخدم لتحديد المتغيرات في المحفز المرتبطة بالمرض. |
| ICE (استنتاج تعديلات CRISPR) | شركة Synthego | الإصدار الحالي على الويب | تُستخدم لنمذجة نتائج تحرير CRISPR المتوقعة حاسوبياً. |
| قاعدة بيانات JASPAR | اتحاد JASPAR | إصدار 2022 | قاعدة بيانات لملفات ربط عوامل النسخ المستخدمة لتحديد HNF4α ونمطوطات ارتباط HNF1A. |
| إضافة MCODE | سيتوسكيب (Cytoscape) | الإصدار الحالي | تُستخدم لتحديد وحدات الشبكة التنظيمية شديدة الترابط. |
| حزمة MEME | فريق تطوير مجموعة MEME | v5.5.0 | حزمة برمجية تدعم اكتشاف الزخارف (motifs) وتحليل تكرار حدوثها. |
| تحليل ارتباط بيرسون | خوارزمية إحصائية | غير قابل للتطبيق | تُستخدم لتقييم الارتباطات بين تعبير F7 وHNF4A وHNF1A. |
| مسار الحفظ PhastCons | متصفح الجينوم بجامعة كاليفورنيا في سانتا كروز (UCSC Genome Browser) | 100-محاذاة الفقاريات | تُستخدم لتقييم العناصر الجينومية المحفوظة. |
| مسار الحفظ PhyloP | متصفح جينوم جامعة كاليفورنيا في سانتا كروز (UCSC Genome Browser) | 100-محاذاة الفقاريات | تُستخدم لتقييم الحفظ التطوري على مستوى النوكليوتيدات. |
| سيجواي | مختبر هوفمان | الإصدار الحالي | تُستخدم لتقسيم الجينوم والتوصيف التنظيمي. |
| قالب إصلاح التوجيه بالتماثل أحادي السلسلة (تصميم حاسوبي) | غير قابل للتطبيق | غير قابل للتطبيق | صُمم حاسوبياً لاستعادة موتيف المحفز؛ ولم يتم تخليقه تجريبياً. |
| SpCas9 (نموذج حاسوبي) | غير قابل للتطبيق | غير قابل للتطبيق | نموذج حاسوبي مستخدم لتصميم الحمض النووي الريبوزي الموجه للإصلاح الموجه بالتوالى (HDR) ومحاكاة التحرير. |
| قاعدة بيانات STRING | اتحاد STRING | الإصدار 11.5 | تُستخدم لبناء البروتين–تفاعلات البروتين وشبكات التنظيم الجيني. |
| متصفح جينوم جامعة كاليفورنيا في سانتا كروز (UCSC Genome Browser) | جامعة كاليفورنيا، سانتا كروز | الإصدار الحالي | تُستخدم لتقييم حفظ المحفز، وتوصيف الجينوم، والمسارات فوق الجينية. |
المراجع
- Peyvandi F, Duga S, Akhavan S, Mannucci PM. Rare coagulation deficiencies. Haemophilia. 2002;8(3):308-321.
- Mariani G, Bernardi F. Factor VII deficiency. Semin Thromb Hemost. 2009;35(4):400-6. doi:10.1055/s-0029-1225762.
- Napolitano M, Siragusa S, Mariani G. Factor VII deficiency: clinical phenotype, genotype and therapy. J Clin Med. 2017;6(4):38.
- Tourbih H, Harrach A, Bencharef H, Dehbi H, Oukkache B. Molecular aspects of rare coagulation factor deficiencies. Cureus. 2025;17(7):e89102.
- Carew JA, Pollak ES, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting an Sp1 binding site in the factor VII promoter. Blood. 1998;92(5):1639-1645.
- Shahbazi S, Mahdian R. Factor VII Gene Defects: Review of Functional Studies and Their Clinical Implications. Iran Biomed J 2019 May;23(3):165–174.
- Sladek FM. What are nuclear receptor ligands? Mol Cell Endocrinol. 2011;334(1-2):3-13.
- Garrison WD, Battle MA, Yang C, Kaestner KH, Sladek FM, Duncan SA. Hepatocyte nuclear factor 4 alpha is essential for embryonic development of the mouse colon. Gastroenterology. 2006;130(4):1207-1220.
- Bolotin E et al. Integrated approach for the identification of human hepatocyte nuclear factor 4alpha target genes using protein binding microarrays. Hepatology. 2010;51(2):642-653.
- Walesky C, Apte U. Role of hepatocyte nuclear factor 4α (HNF4α) in cell proliferation and cancer. Gene Expr. 2015;16(3):101-108.
- Parviz F, Matullo C, Garrison WD, Savatski L, Adamson JW, Ning G, et al. Hepatocyte nuclear factor 4alpha controls the development of a hepatic epithelium and liver morphogenesis. Nat Genet. 2003;34(3):292-296.
- Odom DT et al. Control of pancreas and liver gene expression by HNF transcription factors. Science. 2004;303(5662):1378-1381.
- Rowley CW, Staloch LJ, Divine JK, McCaul SP, Simon TC. Mechanisms of mutual functional interactions between HNF-4alpha and HNF-1alpha revealed by mutations that cause maturity onset diabetes of the young. Am J Physiol Gastrointest Liver Physiol. 2006;290(3):G466-475.
- Hirakawa MP, Krishnakumar R, Timlin JA, Carney JP, Butler KS. Gene editing and CRISPR in the clinic: current and future perspectives. Biosci Rep. 2020;40(4):BSR20200127.
- Belali T, Abomughaid M, Alhujaily M. The transcription factor HNF-4α: a key player in haematological disorders. Arch Med Sci. 2021;19(6):1646-1652.
- Barbon E, Pignani S, Branchini A, Bernardi F, Pinotti M, Bovolenta M. An engineered TALE-transcription factor rescues transcription of factor VII impaired by promoter mutations and enhances its endogenous expression in hepatocytes. Sci Rep. 2016;6:28304.
- Pignani S et al. Tailoring the CRISPR system to transactivate coagulation gene promoters in normal and mutated contexts. Biochim Biophys Acta Gene Regul Mech. 2019;1862(6):619-624.
- Arbini AA, Pollak ES, Bayleran JK, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting a hepatocyte nuclear factor 4 binding site in the factor VII promoter. Blood. 1997;89(1):176-182.
- Greenberg D, Miao CH, Ho WT, Chung DW, Davie EW. Liver-specific expression of the human factor VII gene. Proc Natl Acad Sci U S A. 1995;92(26):12347-12351.
- Andersson R, Sandelin A. Determinants of enhancer and promoter activities of regulatory elements. Nat Rev Genet. 2020;21(2):71-87.
- Birnbaum RY, Clowney EJ, Agamy O, Kim MJ, Zhao J, Yamanaka T, et al. Coding exons function as tissue-specific enhancers of nearby genes. Genome Res. 2012;22(6):1059-1068.
- Fulco CP et al. Activity-by-contact model of enhancer-promoter regulation from thousands of CRISPR perturbations. Nat Genet. 2019;51(12):1664-1669.
- Yin H et al. Therapeutic genome editing by combined viral and non-viral delivery of CRISPR system components in vivo. Nat Biotechnol. 2016;34(3):328-333.
- Chen Y et al. Chromatin accessibility: biological functions, molecular mechanisms and therapeutic application. Signal Transduct Target Ther. 2024;9(1):340.
- Deans JR et al. HNF4α isoforms regulate the circadian balance between carbohydrate and lipid metabolism in the liver. Front Endocrinol (Lausanne). 2023;14:1266527.
- Jones C, Avino M, Giroux V, Boudreau F. HNF4α acts as upstream functional regulator of intestinal Wnt3 and Paneth cell fate. Cell Mol Gastroenterol Hepatol. 2023;15(3):593-612.
- Taha EA, Lee J, Hotta A. Delivery of CRISPR-Cas tools for in vivo genome editing therapy: trends and challenges. J Control Release. 2022;342:345-361.
- Qiu S, Pan Y, Cui Y, et al. HNF4α improves hepatocyte regeneration by upregulating PXR. FASEB J. 2024;38(14):e23830.
- Avsec Ž et al. Effective gene expression prediction from sequence by integrating long-range interactions. Nat Methods. 2021;18(10):1196-1203.
- Zahraei M et al. CRISPR/dCas9-TET1-mediated epigenetic editing reactivates miR-200c in breast cancer cells. Sci Rep. 2025;15(1):31739.
- Mariani G, Herrmann FH, Bernardi F, Schved JF, Auerswald G, Ingerslev J. Clinical manifestations, management, and molecular genetics in congenital factor VII deficiency: the International Registry on Congenital Factor VII Deficiency (IRF7). Blood. 2000;96(1):374.