نعمل على تطوير نموذج للخلايا النجمية الأولية في الجرذان يوفر نظاماً ذا صلة فسيولوجياً لدراسة مرض ألكسندر (AxD)، مما يتيح استقصاء تجمع بروتين GFAP، والتعديل المرضي، والخلل الوظيفي في الخلايا النجمية. ويربط هذا النظام بين الدراسات in vitro والدراسات in vivo، مما يوفر منصة قوية لاستكشاف باثولوجيا مرض AxD وتحديد الأهداف العلاجية للأمراض التنكسية العصبية.
مقالة منهجية
نماذج خلوية لدراسة مرض ألكسندر: التحليل الوظيفي للخلايا النجمية الأولية في الجرذان
في هذه المقالة
ملخص
الملخص
تلعب الخلايا النجمية دوراً حيوياً في الحفاظ على التوازن الداخلي للجهاز العصبي المركزي، ودعم الوظائف العصبية، والاستجابة للإصابات أو الأمراض. ويُنظر بشكل متزايد إلى الخلل الوظيفي في نشاط الخلايا النجمية كعامل رئيسي مساهم في الاضطرابات التنكسية العصبية، بما في ذلك مرض ألكسندر (AxD)، وهو حالة نادرة ومميتة تنتج عن طفرات في البروتين الحمضي الليفي الدبقي (GFAP). تؤدي هذه الطفرات إلى تجمع بروتين GFAP، وتكوين ألياف روزنتال، وخلل وظيفي تدريجي في الخلايا النجمية. وبينما توفر النماذج الحيوانية in vivo بيئة خلوية معقدة، فإن النماذج الحالية سواء in vitro أو in vivo تواجه قيوداً في محاكاة السياق الخلوي والوظائف المعقدة للخلايا النجمية بدقة. ولمعالجة ذلك، قمنا بتطوير نموذج خلوي باستخدام خلايا نجمية أولية من جرذان من النوع البري (WT) وجرذان نموذج مرض AxD لدراسة التأثيرات الوظيفية لطفرات GFAP. يتيح هذا النظام ذو الصلة الفسيولوجية إجراء استقصاء مفصل للآليات الخاصة بالخلايا النجمية، بما في ذلك تجمع GFAP، واستجابات الإجهاد التأكسدي، والتعديلات المرضية. وبالنسبة للباحثين الذين لا تتوفر لديهم جرذان نموذج AxD، يوفر ترنسدكشن الفيروسات البطيئة (lentiviral transduction) طريقة بديلة لإدخال طفرات GFAP المرتبطة بمرض AxD في الخلايا النجمية المشتقة من جرذان طبيعية، مما يوسع نطاق تطبيق هذا النهج. ومقارنة بخطوط الخلايا النجمية المخلدة أو الدراسات in vitro التي تستخدم البروتينات المؤشبة، تحافظ الخلايا النجمية الأولية بشكل أفضل على البنية الخلوية الأصلية والملفات الجزيئية، مما يوفر منصة قوية لدراسة ديناميكيات GFAP، وقابليته للذوبان، واستجابات الخلايا النجمية للمجهدات مثل التلف التأكسدي والتعديلات المرضية. يسد هذا النموذج الخلوي الفجوة بين الدراسات الجزيئية والنظامية، ويوفر إطاراً تجريبياً مضبوطاً لاستكشاف الخلل الوظيفي للخلايا النجمية في مرض AxD. ومن خلال استكمال المنهجيات الحالية، تعزز مزارع الخلايا النجمية الأولية فهمنا لباثولوجيا مرض AxD وتمثل أداة قيمة لتحديد الأهداف العلاجية المحتملة للأمراض التنكسية العصبية.
المقدمة
تعد الخلايا النجمية خلايا دبقية متخصصة تمتد عبر الجهاز العصبي المركزي (CNS) بأكمله، وتلعب أدواراً حاسمة في الحفاظ على التوازن الداخلي للدماغ، وتنظيم النشاط العصبي، والاستجابة للإصابة أو المرض1. وتشمل وظائفها إزالة النواقل العصبية وإعادة تدويرها، والحفاظ على التوازن الداخلي للأيونات والمياه خارج الخلية، ودعم وظيفة الدوائر العصبية. وتعتبر الجزيئات التي تفرزها الخلايا النجمية أساسية لتطور المشابك العصبية واللدونة المشبكية في دماغ البالغين2. واستجابةً لإصابة أو مرض في الجهاز العصبي المركزي، تخضع الخلايا النجمية لتغيرات تفاعلية يمكن أن تتوسط إشارات محفزة أو مضادة للالتهابات، مما يتيح وظائف الحماية العصبية ولكن قد يساهم في أمراض الجهاز العصبي المركزي اعتماداً على السياق3. ويُعترف بشكل متزايد بأن خلل تنظيم وظيفة الخلايا النجمية يمثل عاملاً رئيسياً في صحة وأمراض الجهاز العصبي المركزي4,5.
يُعد البروتين الحمضي الليفي الدبقي (GFAP)، وهو بروتين من خيوط متوسطة (IF) من النوع الثالث، مكوناً هيكلياً رئيسياً للخلايا النجمية، حيث يتم التعبير عنه بواسطة معظم الخلايا النجمية ولكن ليس جميعها. يزداد تنظيم GFAP استجابةً لإصابات الجهاز العصبي المركزي، مما يجعله بمثابة مؤشر لشدة تلف الأنسجة6. وعلى الرغم من أن GFAP يرتبط تقليدياً بأدوار هيكلية7، إلا أن تداعياته الوظيفية لا تزال غير مستكشفة بشكل كافٍ. تسبب الطفرات في GFAP مرض ألكسندر (AxD)8، وهو اضطراب تنكس عصبي نادر يتميز بتجمع GFAP، وتكوين ألياف روزنتال، وخلل وظيفي تدريجي في الخلايا النجمية. وبينما قدمت الدراسات الكيميائية الحيوية in vitro9,10,11 والنماذج الحيوانية in vivo12,13 رؤى حول باثولوجيا مرض AxD، إلا أنها تفشل في محاكاة السياق الخلوي المعقد لوظيفة الخلايا النجمية14.
وللتغلب على هذه القيود، قمنا بتطوير نموذج خلوي باستخدام الخلايا النجمية الأولية للفئران المشتقة من فئران النوع البري (WT) وفئران نموذج AxD13. يحافظ هذا النظام على البنية الخلوية الأصلية والملفات الجزيئية للخلايا النجمية، مما يتيح دراسة تجمع GFAP، واستجابات الإجهاد التأكسدي، والتعديلات المرضية المرتبطة بمرض AxD. وبالنسبة للباحثين الذين لا يتوفر لديهم الوصول إلى فئران نموذج AxD، يوفر نقل الفيروسات البطيئة طريقة بديلة لإدخال طفرات GFAP المرتبطة بـ AxD في الخلايا النجمية المشتقة من الفئران الطبيعية10.
بالمقارنة مع الخطوط الخلوية الخالدة، تحافظ الخلايا النجمية الأولية على التباين والتعقيد لمجموعات الخلايا النجمية in vivo، مما يوفر منصة ذات صلة فسيولوجياً لاستقصاء الآليات الخاصة بالخلايا النجمية15. وعلى عكس الدراسات in vitro التي تستخدم البروتينات المؤتلفة9، تعبر الخلايا النجمية الأولية بشكل طبيعي عن GFAP وغيرها من الواسمات الخاصة بالخلايا النجمية، مما يسمح بدراسة المتغيرات المرتبطة بالأمراض ضمن بيئة خلوية أصلية10,16,17. علاوة على ذلك، تسهل الخلايا النجمية الأولية البحث في الاستجابات الوظيفية لمحفزات الإجهاد، مثل التلف التأكسدي18 والالتهاب19، والتي يصعب محاكاتها في الأنظمة المبسطة in vitro.
في أبحاث مرض ألكسندر (AxD)، تكمل الخلايا النجمية الأولية النهج الكيميائية الحيوية والنهج in vivo من خلال سد الفجوة بين الدراسات الجزيئية والدراسات الجهازية. وبينما تركز المقاييس الكيميائية الحيوية على الخصائص الجزيئية لطفرات البروتين الحمضي الدبقي (GFAP)، فإنها تفتقر إلى التعقيد الخلوي، في حين أن نماذج in vivo ترصد التأثيرات الجهازية ولكنها أقل ملاءمة للدراسات الخلوية الآلية. توفر الخلايا النجمية الأولية نظاماً وسيطاً يتميز بالتعقيد الخلوي والتحكم التجريبي، مما يتماشى مع التوجهات الحالية في أبحاث الأمراض التنكسية العصبية التي تؤكد على أهمية النماذج الخلوية لفهم آليات المرض وتحديد الأهداف العلاجية20.
تقدم هذه المخطوطة تطوير وتطبيق الخلايا النجمية الأولية للجرذان كنموذج خلوي لأبحاث مرض AxD. ومن خلال تمكين المقارنة المباشرة بين الخلايا النجمية من النوع WT وتلك المصابة بـ AxD، يعالج هذا النهج القيود الرئيسية للتقنيات البديلة ويزيد من إمكانية الوصول إليها عبر التنصيلة الفيروسية البطيئة. تساهم هذه النتائج في تعميق فهم الخلل الوظيفي للخلايا النجمية في مرض AxD وتوفر أداة قيمة للدفع بالاكتشافات العلاجية في الأمراض التنكسية العصبية.
البروتوكول
تمت الموافقة على استخدام الحيوانات في هذا البروتوكول من قبل لجنة الرعاية والاستخدام المؤسسي للحيوان في كلية علوم الحياة والطب بجامعة تسينغ هوا الوطنية (رقم موافقة NTHU IACUC 109088 و 111060) ووفقاً للإرشادات الواردة في دليل الزراعة لرعاية واستخدام حيوانات المختبر.
1. تحضير الأوساط والغطاءات الزجاجية والأطباق والصفائح
- قبل البدء، تأكد من تحضير المحاليل التالية (الجدول 1) وجاهزيتها للاستخدام.
- عقم المقصات والملاقط باستخدام الموصدة (autoclaving) قبل الاستخدام لضمان التعقيم.
- حضّر محلول poly-L-lysine (PLL) بتركيز 0.02 mg/mL في محلول منظم من حمض البوريك.
- أضف كمية كافية من محلول PLL لتغطية سطح غطاء الشريحة (coverslip) أو قاع طبق/صينية الزرع بالكامل. تأكد من أن عملية الطلاء متساوية.
- اترك أغطية الشرائح والأطباق المطلية بـ PLL لتحضن طوال الليل في درجة حرارة الغرفة داخل كبينة التدفق الصفحي (laminar flow hood).
- في اليوم التالي، قم بإزالة محلول PLL بعناية. اشطف أغطية الشرائح أو الطبق/الصينية المطلية ثلاث مرات بماء معقم جديد لإزالة أي بقايا من PLL.
ملاحظة: من الضروري شطف القارورة/الصينية أو أغطية الشرائح المطلية بـ PLL جيداً لإزالة بقايا PLL التي قد تؤثر سلباً على حيوية الخلايا.
2. تحضير مستنبت الخلايا النجمية الأولية
ملاحظة: يظهر مخطط توضيحي عام في الشكل 1.
- بعد تحفيز انخفاض درجة الحرارة عن طريق وضع الجراء على الثلج، يتم فصل رأس جرو الجرذ في اليوم 1-3 بعد الولادة عن جسده.
- ضع الرأس في طبق سعة 60-mm وثبّت الجانبين باستخدام ملقط. وباستخدام مقص دقيق، قم بتشريح الجلد الموجود أعلى الرأس برفق.
- أحدث شقًا عند قمة الرأس باستخدام مقص دقيق لفتح الجمجمة بعناية. افصل نصفي الجمجمة وأزلهما برفق.
- باستخدام ملقط، افصل الدماغ عن القاعدة وانقله إلى طبق سعة 60-mm يحتوي على وسط التشريح.
- ضع كل نصف كرة مخية بحيث يكون السطح الإنسي متجهًا للأعلى للكشف عن تراكيب الخط المتوسط.
- تحت مجهر التشريح، أزل أنسجة الدماغ المتوسط وجذع الدماغ برفق، مع ترك نصفي الكرة المخية اللذين يحتويان على القشرة والحصين سليمين.
- استخدم ملقطًا دقيقًا لإزالة السحايا برفق، ويفضل أن تكون كقطعة واحدة. افحص بعناية أي سحايا متبقية ومخفية في الشقوق وأزلها تمامًا.
- انقل نسيج الدماغ المشرح إلى غطاء تدفق صفائحي. اشفط وسط التشريح باستخدام ماصة سعة 1 mL وأضف وسط تشريح جديدًا.
- قطع النسيج فرمًا ناعمًا باستخدام شفرة مشرط معقمة.
- انقل النسيج المقطع إلى 5 mL من وسط التفكيك في أنبوب سعة 15 mL. حضّن الأنبوب في حمام مائي بدرجة حرارة 37ºC لمدة 15 min، مع رج الأنبوب برفق كل 5 min لضمان التفاعل المناسب بين الإنزيم والنسيج.
- بعد التحضين، اترك النسيج يترسب في قاع الأنبوب. اشفط السائل الطافي وأضف 5 mL من وسط التشريح.
- اقلب الأنبوب 5 مرات لغسل النسيج. اترك الأنبوب لمدة 3 min ليترسب النسيج، ثم كرر عملية الغسل ثلاث مرات باستخدام وسط تشريح جديد.
- بعد الغسلة النهائية، أزل السائل الطافي وأضف 2.5 mL من وسط التشريح و 2.5 mL من وسط الصيانة.
- قم بتفتيت النسيج عن طريق تمرير المحلول للأعلى وللأسفل 10–15 مرة باستخدام ماصة سعة 10-mL.
- اترك الأنبوب لمدة 3 min ليترسب النسيج. انقل السائل الطافي (الذي يحتوي على الخلايا) إلى أنبوب مخروطي جديد سعة 50 mL.
- أضف 5 mL من وسط MEM إلى الأنبوب الأصلي الذي يحتوي على النسيج المترسب. قم بالتفتيت مرة أخرى 10–15 مرة باستخدام ماصة 10-mL حتى تختفي معظم الكتل.
- مرر معلق الخلايا عبر مصفاة خلايا معقمة بمسامية 40 µm إلى أنبوب مخروطي نظيف سعة 50 mL يحتوي على 5 mL من وسط الصيانة.
- قم بطرد مركزي لمعلق الخلايا المصفى عند 200 × g لمدة 5 min في درجة حرارة الغرفة.
- أزل السائل الطافي، ثم قم بتفكيك كتلة الخلايا برفق عن طريق النقر على الأنبوب.
- أضف 5 mL من وسط MEM وقم بالماصة للأعلى وللأسفل 10 مرات لإعادة تعليق الكتلة. حافظ على معلق الخلايا في حمام مائي بدرجة حرارة 37ºC أثناء عد الخلايا.
- خفف 10 μL من معلق الخلايا باستخدام 90 µL من وسط MEM. اخلط جيدًا باستخدام رأس ماصة سعة 200 µL.
- أضف 20 μL من معلق الخلايا المخفف إلى 20 µL من صبغة trypan blue. قم بعد الخلايا باستخدام مقياس كرات الدم (hemocytometer).
- وزع الخلايا في أوعية الزرع كما يلي: بالنسبة للطبق ذو 24 بئرًا، ازرع 2 × 10⁵ خلية لكل بئر؛ وللطبق ذو 6 آبار، ازرع 5 × 10⁵ خلية لكل بئر؛ وللطبق سعة 6-cm، ازرع 1 × 10⁶ خلية لكل طبق.
- ضع الأطباق في حضانة زراعة الأنسجة. تجنب ترك الخلايا في درجة حرارة الغرفة لفترات طويلة.
- افحص الخلايا تحت المجهر للتأكد من التصاقها بالركيزة بعد 4 h من الزرع.
- بعد 24 h من الزرع، استبدل وسط الزرع بوسط صيانة جديد.
- غذِّ المزرعة كل 2–3 أيام عن طريق استبدال نصف الوسط بوسط صيانة جديد.
- بعد 7 أيام، يجب أن تصل الخلايا إلى نسبة تلاقي تقارب 80% وتصبح جاهزة للتجارب.
ملاحظة: لضمان الظروف المثالية لمزارع الخلايا النجمية، قم بتنفيذ جميع الخطوات في بيئة معقمة، ويفضل أن يكون ذلك داخل غطاء تدفق صفائحي لتجنب التلوث. بالإضافة إلى ذلك، تأكد من تسخين جميع الكواشف مسبقًا إلى 37°C حيثما كان ذلك مناسبًا. كن دقيقًا عند إزالة السحايا، حيث يمكن لأي نسيج سحائي متبقٍ أن يتداخل مع المزارع. علاوة على ذلك، تجنب ترك الخلايا في درجة حرارة الغرفة لفترات طويلة أثناء الزرع والعد للحفاظ على حيوية الخلايا وسلامتها.
3. إنتاج الجسيمات الفيروسية البطيئة والترانسدكشن
ملاحظة: يتم عرض نظرة عامة تخطيطية في الشكل 2.
- يتم استزراع خلايا HEK293T في طبق بتري بمساحة 10 cm2 يحتوي على وسط استزراع طازج (الجدول 1).
- تُنمى الخلايا طوال الليل في حضانة عند 37ºC حتى تصل نسبة التلاقي إلى 50%–60%.
- في 1 mL من Opti-MEM، أضف 20 µg من البلازميد الفيروسي البطيء (lentiviral plasmid) الذي يشفر GFAP أو متغيراته، و5.6 µg من ناقل التعبئة (packaging vector)، و1.8 µg من ناقل الغلاف (envelope vector).
- أضف 45 µL من كاشف عفن الخلايا (transfection reagent) إلى المحلول المحتوي على DNA.
- يُخلط المزيج برفق ويُحضن في درجة حرارة الغرفة لمدة 15 دقيقة.
- أضف محلول عفن الخلايا مباشرة إلى خلايا HEK293T واحضنها في حضانة استزراع الخلايا عند 37°C لمدة 4 ساعات.
- يُسحب محلول عفن الخلايا ويُستبدل بوسط استزراع طازج.
- يستمر استزراع الخلايا لمدة يومين.
- يُجمع السائل الطافي من مستنبت الخلايا ويُستبدل بوسط استزراع طازج.
- في اليوم التالي، يُجمع السائل الطافي من مستنبت الخلايا مرة أخرى ويُستبدل بوسط استزراع طازج.
- في اليوم التالي، يُجمع السائل الطافي النهائي من مستنبت الخلايا.
- تُجمع السوائل الطافية من الخطوات 3.9–3.11 في أنبوب مخروطي سعة 50-mL.
- يُرشح السائل الطافي المجمع عبر مرشح بمسامية 0.45 µm باستخدام حقنة سعة 60 mL لإزالة الحطام الخلوي.
- يُفصل السائل الطافي المُرشح بجهاز الطرد المركزي عند 1,400 × g لمدة 5 دقائق في درجة حرارة الغرفة لإزالة الخلايا الميتة.
- يُنقل السائل الطافي الرائق إلى أنابيب جهاز الطرد المركزي الفائق (ultracentrifuge).
- يُفصل بجهاز الطرد المركزي عند 100,000 × g لمدة 70 دقيقة عند 4°C لترسيب الجسيمات الفيروسية البطيئة.
- يُزال السائل الطافي بعناية دون تحريك الراسب الموجود في قاع الأنبوب.
- يُعاد تعليق الراسب في 600 µL من وسط Opti-MEM عن طريق السحب والضخ اللطيف بالماصة.
- تُقسم الجسيمات الفيروسية البطيئة المعاد تعليقها إلى حصص حجم كل منها 50 μL وتُخزن عند -80°C حتى وقت الحاجة.
- تُستزرع الخلايا النجمية الأولية (primary astrocytes) في طبق بـ 6 آبار وتُترك حتى تصل نسبة التلاقي إلى 50%–70% (القسم 2).
- تُذاب الكميات المطلوبة من الجسيمات الفيروسية البطيئة على الثلج.
- أضف 50 µL من الجسيمات الفيروسية البطيئة إلى كل بئر، مع تدعيمها بـ 8 µg/mL من Polybrene.
- يُرج الطبق برفق لضمان التوزيع المتساوي للفيروس وPolybrene. تُحضن الخلايا في حضانة استزراع الخلايا عند 37ºC لمدة 4–8 ساعات.
- يُسحب الوسط المحتوي على الفيروس بعناية لتجنب تعريض الخلايا للاضطراب.
- يُستبدل الوسط بوسط استزراع طازج ويستمر الاستزراع لمدة 2–3 أيام.
- تُجرى التحاليل اللاحقة على الخلايا المنقولة (transduced cells) باستخدام مجهر التألق المناعي لتصوير تشكل شبكة الخيوط المتوسطة، أو باستخدام لطخة ويسترن (immunoblotting) لتقييم تعبير GFAP.
ملاحظة: عند التعامل مع الجسيمات الفيروسية البطيئة، من الضروري استخدام معدات الوقاية الشخصية (PPE) المناسبة لضمان السلامة. بالإضافة إلى ذلك، وللحفاظ على سلامة الجسيمات الفيروسية، يجب تجنب دورات التجميد والإذابة المتكررة.
4. مجهر الفلورة المناعية
- اشفط وسط المزرعة برفق من الآبار التي تحتوي على شرائح التغطية ذات الخلايا المزروعة، مع تجنب تحريك الخلايا.
- ثبّت الخلايا بإضافة أحد محلولَي التثبيت التاليين: بالنسبة للخلايا النجمية الأولية، استخدم paraformaldehyde بتركيز 3.2% (وزن/حجم)؛ وبالنسبة لمزرعة الخلايا النجمية والعصبية، استخدم paraformaldehyde بتركيز 3.2% (وزن/حجم) وسكروز بتركيز 4% (وزن/حجم).
- احضن شرائح التغطية في محلول التثبيت لمدة 15 min في درجة حرارة الغرفة. ما لم يذكر خلاف ذلك، تُجرى جميع الخطوات اللاحقة في درجة حرارة الغرفة.
- اشطف الخلايا المثبتة ثلاث مرات باستخدام المحلول الملحي المنظم بالفوسفات (PBS) لإزالة محلول التثبيت.
- اجعل الخلايا نفوذة عن طريق حضنها في Triton X-100 بتركيز 0.2% (حجم/حجم) مُحضّر في محلول الحجب (مصل ماعز طبيعي بتركيز 5% (حجم/حجم) في PBS) لمدة 15 min.
- اشطف الخلايا النفوذة ثلاث مرات باستخدام PBS.
- حضّر محلول الأجسام المضادة الأولية عن طريق تخفيف الجسم المضاد في محلول الحجب وفقاً للتركيز الموصى به من قِبل الشركة المصنعة.
- احضن شرائح التغطية في محلول الأجسام المضادة الأولية لمدة ساعة واحدة (1 h) على الأقل في درجة حرارة الغرفة.
- اشطف شرائح التغطية ثلاث مرات باستخدام PBS لإزالة الأجسام المضادة الأولية غير المرتبطة.
- حضّر محلول الأجسام المضادة الثانوية عن طريق تخفيف الأجسام المضادة الثانوية goat anti-mouse و goat anti-rabbit المقترنة بالفلوروفورات في محلول الحجب بنسبة تخفيف 1:500.
- احضن شرائح التغطية في محلول الأجسام المضادة الثانوية لمدة 1 h في درجة حرارة الغرفة.
- اشطف شرائح التغطية ثلاث مرات باستخدام PBS لإزالة الأجسام المضادة الثانوية غير المرتبطة.
- انقل شرائح التغطية بعناية إلى شرائح زجاجية باستخدام الملقط.
- ثبّت شرائح التغطية باستخدام وسط التثبيت للحفاظ على الفلورة.
- أغلق حواف شريحة التغطية برفق باستخدام طلاء أظافر شفاف لمنع الحركة والتبخر.
- اترك طلاء الأظافر ليجف تماماً قبل الانتقال إلى التصوير.
- تصبح الشرائح المُحضرة جاهزة للتصوير باستخدام مجهر التألق المناعي أو مجهر بؤري (confocal microscope).
ملاحظة: لضمان نجاح التجارب، حضّر جميع الكواشف، مثل PBS ومحلول الحجب والأجسام المضادة، طازجة وحافظ على التعقيم. تعامل مع شرائح التغطية بحذر لتجنب إتلاف الخلايا أو خدش السطح الزجاجي. احمِ العينات من الضوء أثناء حضن الأجسام المضادة وبعد التثبيت لمنع التبييض الضوئي لإشارات الفلورة. بالإضافة إلى ذلك، قم بتحسين تركيزات الأجسام المضادة وأوقات الحضن وفقاً للإعداد التجريبي المحدد.
5. اللطخة المناعية (Immunoblotting)
- اشطف الخلايا النجمية مرتين باستخدام PBS لإزالة بقايا الوسط والشوائب.
- ضع الطبق أو الوعاء على الثلج لتقليل تحلل البروتين. قم بسحب PBS بالكامل، مع العمل على بئر واحد في كل مرة.
- أضف منظم RIPA (radioimmunoprecipitation assay) المبرد بالثلج والذي يحتوي على مثبطات البروتياز والفوسفاتاز. بالنسبة للطبق المكون من 6 آبار، أضف 250 µL لكل بئر؛ وبالنسبة للطبق بقطر 6 cm، أضف 500 µL لكل طبق.
- استخدم كاشطة خلايا لكشط جميع الخلايا النجمية بدقة في منظم RIPA (50 mM Tris، pH 8.0، 150 mM NaCl، 1% (wt/vol) NP-40، 5 mM ethylenediaminetetraacetic acid (EDTA)، 0.5% (wt/vol) sodium deoxycholate، و0.1% (wt/vol) SDS، 1 mM phenylmethylsulfonyl fluoride [PMSF]).
- انقل الخلايا المكشوطة إلى مجانس Dounce بحجم 1 mL موضوع على الثلج. قم بتجانس الخلايا عن طريق طحنها برفق باستخدام المدقة.
- حضن نواتج تحلل الخلايا المتجانسة على الثلج لمدة 10 min لضمان التحلل الكامل. احتفظ بـ 20 µL من إجمالي نواتج التحلل لتحديد تركيز البروتين بواسطة مقايسة حمض البيسينكونينيك (BCA).
- قم بطرد نواتج تحلل الخلايا مركزياً عند 13,500 × g في درجة حرارة 4ºC لمدة 10 min لترسيب البروتينات غير الذائبة.
- انقل الراشح بعناية إلى أنبوب نظيف. احتفظ بـ 20 µL من الراشح لتحديد تركيز البروتين بواسطة مقايسة BCA.
- ركز الراشح عن طريق إجراء ترسيب الميثانول/الكلوروفورم.
- أعد تعليق الراسب الناتج في 0.1 mL من منظم عينات Laemmli (25 mM Tris-HCl (pH 6.8)، 1% (w/v) SDS، 12.5% (v/v) glycerol، 0.01% (w/v) bromophenol blue، 355 mM β-mercaptoethanol).
- أعد تعليق الراسب في منظم عينات Laemmli وقم بتشتيته عن طريق الموجات فوق الصوتية (sonication).
- قم بإجراء ثلاث دورات من الموجات فوق الصوتية بنبضات مدتها 0.5 s وبقدرة 10%. حافظ على طرف المسبار باتجاه قاع الأنبوب لتجنب الترغي.
- أجرِ مقايسة بروتين حمض البيسينكونينيك (BCA) على كل من راشح RIPA وإجمالي نواتج تحلل الخلايا.
- حمّل عينات البروتين على هلام الفصل الكهربائي لبروتينات بولي أكريلاميد بنسبة 12% أو 15% مع كبريتات دوديسيل الصوديوم (SDS-PAGE). قم بتشغيل الهلام بجهد ثابت قدره 200 V لمدة 45 min.
- انقل البروتينات من الهلام إلى غشاء نيتروسليلوز باستخدام نظام نقل رطب. اتبع تعليمات الشركة المصنعة وقم بالنقل عند 100 V لمدة 70 min.
- ضع الغشاء في محلول ألبومين المصل البقري (BSA) بتركيز 5% (wt/vol) مذاب في محلول ملحي منظم بـ Tris مع 0.1% (wt/vol) Tween-20 (TBST). قم بحجب الغشاء لمدة ساعة واحدة على الأقل في درجة حرارة الغرفة مع الرج اللطيف.
- خفف الأجسام المضادة الأولية في TBST وفقاً لتعليمات الشركة المصنعة. حضن الغشاء في محلول الجسم المضاد الأولي طوال الليل عند 4ºC مع الرج اللطيف.
- اشطف الغشاء ثلاث مرات باستخدام TBST، بحيث تستمر كل غسلة لمدة 5 min.
- خفف الأجسام المضادة الثانوية المقترنة بفلوروفور أو ببيروكسيداز الفجل (HRP) في TBST بنسبة تخفيف 1:500 (أو حسب مواصفات الشركة المصنعة).
- حضن الغشاء في محلول الجسم المضاد الثانوي لمدة 1 h في درجة حرارة الغرفة مع الرج اللطيف.
- اشطف الغشاء ثلاث مرات باستخدام TBST، بحيث تستمر كل غسلة لمدة 5 min.
- قم بتظهير الغشاء باستخدام الفلورة أو التألق الكيميائي المعزز (ECL) وفقاً لتعليمات الشركة المصنعة.
- عاين حزم البروتين باستخدام نظام التصوير.
ملاحظة: لمنع تحلل البروتين، قم بإجراء جميع الخطوات على الثلج أو عند 4ºC، باستثناء خطوات حضن الأجسام المضادة والحجب. تأكد من تبريد جميع المنظمات والكواشف والمعدات مسبقاً قبل الاستخدام للحفاظ على درجات حرارة منخفضة طوال العملية. تجنب زيادة تحميل الهلال لمنع التلطخ، وحسن تركيزات الأجسام المضادة وأوقات الحضن بما يتناسب مع التجربة المحددة.
6. تحضير العصبونات الأولية للزراعة المشتركة
- يتم القتل الرحيم للجرذ الحامل باستخدام ثاني أكسيد الكربون كمخدر استنشاقي. يتم تشريح الرحم ووضعه في طبق بتري معقم.
- تُستخرج الأدمغة من الأجنة وتوضع في طبق سعة 6-cm يحتوي على محلول التشريح. يجب التأكد من بقاء النسيج مغموراً في المحلول طوال الوقت لمنع جفافه.
- يتم تشريح القشور الدماغية وإزالة السحايا كما هو موضح (الخطوة 2.7).
- يُنقل النسيج المشرح إلى غطاء التدفق الصفائحي.
- يُشفط محلول التشريح باستخدام ماصة سعة 1 mL ويُضاف محلول تشريح جديد إلى الطبق.
- يُقطع نسيج الدماغ إلى قطع صغيرة باستخدام شفرة مشرط معقمة.
- يُنقل النسيج المقطع إلى 5 mL من وسط تفكيك الخلايا العصبية (الجدول 1) المسخن مسبقاً إلى 37 ºC في أنبوب سعة 15 mL.
- يُحضن الأنبوب في حمام مائي عند 37 ºC لمدة 30 min، مع رج الأنبوب بلطف كل 5 min لضمان التفاعل المناسب بين الإنزيم والنسيج.
- يُرفع الأنبوب من الحمام المائي ويُترك النسيج ليستقر في قاع الأنبوب. يُشفط الطافي بعناية باستخدام طرف ماصة سعة 1 mL دون تحريك النسيج.
- يُضاف 5 mL من محلول التشريح المسخن مسبقاً إلى الأنبوب ويُقلب 5 مرات لغسل النسيج. يُترك الأنبوب لمدة 3 min للسماح للنسيج بالاستقرار، ثم تُكرر عملية الغسل ثلاث مرات، مع استخدام محلول تشريح جديد في كل مرة.
- بعد الغسلة النهائية، يُزال الطافي ويُضاف 2.5 mL من محلول التشريح و 2.5 mL من وسط الزرع.
- يتم سحق النسيج عن طريق سحب المحلول صعوداً وهبوطاً بالماصة 10–15 مرة باستخدام ماصة سعة 10-mL.
- يُترك الأنبوب لمدة 3 min للسماح للنسيج بالاستقرار. يُنقل الطافي (الذي يحتوي على الخلايا) إلى أنبوب مخروطي جديد سعة 50 mL.
- يُضاف 5 mL من وسط الزرع إلى الأنبوب الأصلي الذي يحتوي على النسيج المترسب.
- يُسحق النسيج مرة أخرى 10–15 مرة باستخدام ماصة سعة 10-mL حتى تختفي معظم الكتل.
- يُمرر معلق الخلايا عبر مصفاة خلايا معقمة بمسام 40 µm إلى أنبوب مخروطي نظيف سعة 50 mL يحتوي على 5 mL من وسط الزرع.
- يُفصل معلق الخلايا المصفى بجهاز الطرد المركزي عند 200 × g لمدة 5 min في درجة حرارة الغرفة.
- يُزال الطافي، ثم تُفكك كتلة الخلايا بلطف عن طريق النقر على الأنبوب. يُضاف 5 mL من وسط الزرع المسخن مسبقاً وتُسحب الماصة صعوداً وهبوطاً 10 مرات لإعادة تعليق الكتلة.
- يتم عد الخلايا كما هو موضح سابقاً (الخطوتان 2.21 و 2.22). يجب الحفاظ على معلق الخلايا في حمام مائي عند 37°C أثناء عملية العد.
- تُزرع الخلايا العصبية مباشرة فوق الخلايا النجمية الأولية في أوعية الزرع كما يلي: بالنسبة للطبق ذو 24 بئراً، تُزرع 1.45 × 10⁵ خلية لكل بئر؛ وللطبق ذو 6 آبار، تُزرع 5 × 10⁵ خلية لكل بئر؛ وللطبق سعة 6-cm، تُزرع 1 × 10⁶ خلية لكل بئر.
- توضع الأطباق في حضانة زراعة الأنسجة مضبوطة على 37ºC مع 5% CO₂. يجب تجنب ترك الخلايا في درجة حرارة الغرفة لفترات طويلة للحفاظ على حيويتها.
- يُستبدل وسط الزرع بوسط صيانة الخلايا العصبية بعد 4 h من الزرع.
- يُستبدل نصف الوسط بوسط صيانة خلايا عصبية جديد كل 3–4 أيام.
ملاحظة: ستكون الخلايا العصبية المستزرعة معاً جاهزة للتجارب بعد 7–10 أيام في المختبر (DIV).
النتائج
يتم عرض نظرة عامة مورفولوجية على مستنبتات الخلايا النجمية الأولية في نقاط زمنية مختلفة بعد العزل في الشكل 3. فبعد زرع معلق الخلايا القشرية، تلتصق بعض الخلايا النجمية بسطح طبق الاستنبات خلال أول 24 ساعة (الشكل 3A). وخلال الأيام الثلاثة إلى الخمسة الأولى، تحتوي المستنبتات على حطام خلوي وعصبونات ميتة (الشكل 3B)، حيث يتم تحسين وسط الاستنبات لدعم بقاء ونمو الخلايا النجمية. وبحلول اليوم السابع بعد الزرع، تبدأ طبقة أحادية من الخلايا النجمية في التشكل، مما يشير إلى التأسيس الناجح للمستنبت (الشكل 3C). أما العصبونات المفككة التي يتم الحفاظ عليها في الاستنبات فتمر بمراحل تمايز متميزة، وتطور في النهاية زوائد عصبية محددة جيداً (الشكل 3D–F). ويمكن استنبات هذه العصبونات كطبقات أحادية على أغطية زجاجية أو زرعها فوق الخلايا النجمية الأولية لتجارب الاستنبات المشترك، مما يوفر منصة متعددة الاستخدامات لدراسة التفاعلات بين الخلايا النجمية والعصبونات.
باستخدام الخلايا النجمية الأولية المُحضرة من جرذان طبيعية وفقاً لهذا البروتوكول، فحصنا تأثيرات طفرات GFAP المرتبطة بمرض AxD على تكوين شبكة الخيوط المتوسطة (IF). ولتسهيل هذه الدراسة، تم توليد GFAP من النوع البري WT GFAP (الشكل 4A) وأشكال مختلفة من GFAP الطافر، بما في ذلك E373K (الشكل 4B)، وR376W (الشكل 4C)، وD395Y (الشكل 4D)، وD417A (الشكل 4E)، وQ426L (الشكل 4F) GFAP عن طريق الطفرات الموجهة للموقع باستخدام WT GFAP في ناقل lentiviral من نوع pLEX-MCS كقالب (الملف التكميلي 1 والشكل التكميلي 1). بعد ذلك، تم نقل بنيات تعبير GFAP إلى الخلايا النجمية الأولية عبر العدوى بالفيروسات البطيئة (lentiviral infection). تضمنت عملية العدوى هذه تحضين الخلايا مع الفيروسات البطيئة بمضاعفة عدوى (MOI) تبلغ 10، في وجود 8 μg/mL من polybrene. وتحت هذه الظروف، كشف مجهر التألق المناعي أن حوالي 70%–80% من الخلايا النجمية قد أصيبت بالعدوى بنجاح. وتم تحليل توزيع GFAP المنقول بالنسبة لـ GFAP الجرذي الداخلي باستخدام مجهر التألق المناعي مزدوج الوسم. استُخدم جسم مضاد أحادي النسيلة مضاد لـ GFAP البشري للكشف عن GFAP البشري المنقول (الشكل 4A–F، القناة الخضراء)، بينما استُخدم جسم مضاد متعدد النسائل مضاد لـ panGFAP، والذي يتعرف على كل من GFAP الجرذي وGFAP البشري المنقول، لتصوير التوزيع العام لـ GFAP (الشكل 4A–F، القناة الحمراء). في الخلايا النجمية التي تعبر عن WT GFAP، توزعت الشبكات الخيطية في جميع أنحاء السيتوبلازم (الشكل 4A). وفي المقابل، شكلت طفرات GFAP (الشكل 4B–F، القناة الخضراء) بشكل أساسي تجمعات سيتوبلازمية، والتي أدت غالباً إلى تعطيل وانهيار شبكات IF الداخلية (الشكل 4B–F، القناة الحمراء). تم تحديد مستويات التعبير النسبية لـ WT وGFAP الطافر عن طريق لطخة مناعية (immunoblotting) لمستخلصات الخلايا الكلية (الشكل 4G). أدى نقل إما WT (الشكل 4G، المسار 2) أو GFAP الطافر (الشكل 4G، المسارات 3–7) إلى إنتاج بروتينات بالحجم المتوقع وبمستويات متقاربة. ولتقييم ما إذا كانت التجمعات السيتوبلازمية التي شكلها GFAP الطافر تظهر خصائص ذوبان متغيرة مقارنة ببروتين WT، تم استخلاص الخلايا النجمية المنقولة باستخدام محلول RIPA المنظم16. وكشف تحليل اللطخة المناعية لأجزاء الطافي (الشكل 4H) والرواسب (الشكل 4I) عن اختلافات واضحة في الذوبان. في الخلايا التي تعبر عن WT GFAP، تم استخلاص معظم البروتين بسهولة في الطافي (الشكل 4H، المسار 2). وفي المقابل، أظهرت GFAPs الطافرة زيادة في مقاومة الاستخلاص، حيث ظل غالبية البروتين في جزء الرواسب (الشكل 4I، المسارات 3–7). تشير هذه النتائج إلى أن طفرات GFAP المرتبطة بـ AxD تعز تكوين تجمعات غير ذائبة، مما يغير خصائص ذوبان GFAP في الخلايا النجمية الأولية.
لفهم كيفية تأثير طفرة R237H في بروتين GFAP والإفراط في تعبيره على تنظيم الخيوط وتكوين شبكة الخيوط المتوسطة (IF)، قمنا بتحليل قدرة GFAP على تكوين الشبكات في الخلايا النجمية الأولية المشتقة إما من جرذان من النوع البري (WT) أو جرذان نموذج AxD13 التي تحمل طفرة إدخال R237H متماثلة الزيجوت. وكشف مجهر confocal الفلوري المناعي أنه في الخلايا النجمية من النوع البري، شكل GFAP شبكات خيطية جيدة التنظيم وموزعة في جميع أنحاء السيتوبلازم، والتي تزامنت في موقعها مع خيوط vimentin المتوسطة (الشكل 5A). وفي المقابل، احتوت حوالي 70% من الخلايا الموجبة لـ GFAP على تجمعات سيتوبلازمية بارزة في الخلايا النجمية الطافرة متماثلة الزيجوت (الشكل 5B). وأدت هذه التجمعات بشكل متكرر إلى تعطيل شبكات vimentin IF، مما تسبب في انهيارها إلى تجمعات كبيرة حول النواة. ويظهر التحديد الكمي للخلايا الموجبة لـ GFAP التي تحتوي على تجمعات في الشكل 5C. ولتقييم تعبير GFAP على مستوى البروتين، تم تحضير نواتج تحلل خلوي كلية من الخلايا النجمية من النوع البري والمتحورة متماثلة الزيجوت. وكشف التحليل المناعي (Immunoblotting) باستخدام جسم مضاد anti-panGFAP عن زيادة طفيفة في إجمالي GFAP في الخلايا النجمية الطافرة متماثلة الزيجوت (الشكل 5D، المسار 2)، حيث أظهر زيادة بمقدار 1.3 ضعف (الشكل 5E) مقارنة بالخلايا النجمية من النوع البري (الشكل 5D، المسار 1). ولتحديد ما إذا كان الإفراط في تعبير GFAP الطافر يغير التوازن الديناميكي بين المجموعات الذائبة وغير الذائبة، تم فصل أجزاء الطافي والراسب وتحليلها بواسطة التحليل المناعي (الشكل 5F). ويظهر التحديد الكمي لتوزيع GFAP بين أجزاء الطافي والراسب في الشكل 5G. في الخلايا النجمية من النوع البري (الشكل 5F، المساران 1 و2)، كان توزيع GFAP متساوياً تقريباً بين أجزاء الطافي والراسب. ومع ذلك، أظهرت الخلايا النجمية الطافرة متماثلة الزيجوت زيادة في مستويات GFAP في جزء الراسب (الشكل 5F، المسار 4)، مما يشير إلى تعزيز عزل GFAP في تجمعات سيتوبلازمية. ومن الجدير بالذكر أن تراكم تجمعات GFAP في الخلايا النجمية الطافرة متماثلة الزيجوت ارتبط أيضاً بالكشف عن أنواع GFAP الموبقنة (ubiquitinated) في جزء الراسب (الشكل 5F، المسار 4)، مما يدعم بشكل أكبر وجود GFAP معدل مرضياً في التجمعات السيتوبلازمية في هذه الخلايا.
تلعب الخلايا النجمية دوراً حاسماً في دعم صحة ووظيفة الخلايا العصبية. ولتحديد ما إذا كان تراكم الطفرة R237H في بروتين GFAP داخل الخلايا النجمية يؤثر على الخلايا العصبية من خلال آليات غير ذاتية الخلية، استخدمنا مزارع مشتركة من الخلايا النجمية والعصبية. تم استزراع خلايا عصبية أولية من أجنة الجرذان في اليوم الجنيني 18 (E18) فوق خلايا نجمية أولية مستزرعة لمدة 10-12 يوماً في المختبر (DIV)، وتُركت لتنضج لمدة 10 أيام إضافية. بعد ذلك، تم تثبيت المزارع المشتركة وصبغها مناعياً باستخدام أجسام مضادة ضد βIII tubulin لتقييم مورفولوجيا الخلايا العصبية. أظهرت الخلايا العصبية (الشكل 6A>) المستزرعة مع خلايا نجمية من النوع البري WT (الشكل 6B>) نمواً أطول بشكل ملحوظ في الاستطالات العصبية (الشكل 6C>) مقارنة بالخلايا العصبية (الشكل 6D>) المستزرعة مع خلايا نجمية طافرة متماثلة الزيجوت (الشكل 6E>). وكشف التحليل الكمي أن أطوال الاستطالات العصبية للخلايا العصبية المستزرعة مع خلايا نجمية طافرة متماثلة الزيجوت انخفضت بنسبة 76% مقارنة بالخلايا العصبية المستزرعة مع خلايا نجمية من النوع البري WT (الشكل 6G>). تشير هذه النتائج إلى أن تراكم بروتين GFAP الطافر في الخلايا النجمية يضعف بشدة قدرتها على دعم التطور والمورفولوجيا الطبيعية للخلايا العصبية. وقد يساهم هذا الخلل في المظهر العصبي التنكسي المميز لمرض AxD.
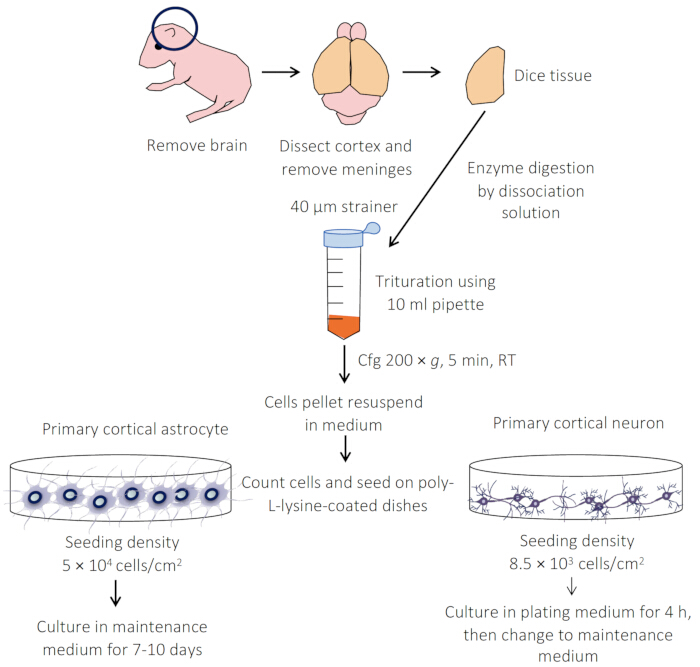
الشكل 1نظرة عامة على بروتوكولات تحضير المزارع الأولية للخلايا النجمية والعصبونات. يتم تشريح القشور بدقة، ثم تُهضم الأنسجة إنزيميًا باستخدام التربسين أو الباباين. بعد ذلك، تُنشر الخلايا المفككة على أغطية الشرائح أو الأطباق أو الصفائح المُعدة مسبقًا. يتم استزراع كل من الخلايا النجمية والعصبونات في وسط صيانة، ويمكن الحفاظ على حيويتها لمدة تصل إلى 28 يومًا. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
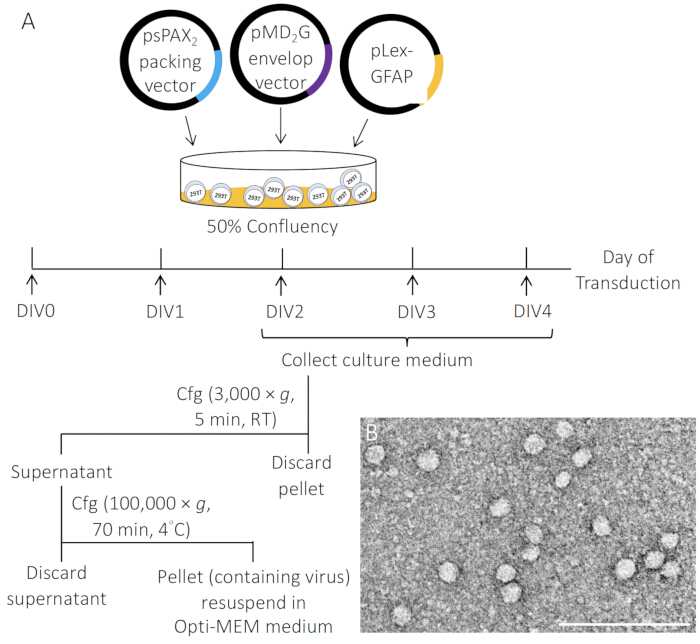
الشكل 2تمثيل تخطيطي لإنتاج الجسيمات الفيروسية البطيئة. (Aتَمَّ إنتاج الفيروسات البطيئة عن طريق عفن مشترك مؤقت لخلايا 293T باستخدام ناقل pLEX-MCS–GFAP، وناقل التعبئة psPAX2، وناقل الغلاف pMD2.G بنسبة 4:3:1، وباستخدام كاشف عفن. ثم جُمعت طافوات المزرعة التي تحتوي على الجسيمات الفيروسية البطيئة بعد مرور 2 إلى 4 أيام. في المختبر (DIV)، مرشحة عبر مرشح بمسامية 0.45-μm يتم الترشيح لإزالة الشوائب، والتركيز عن طريق الطرد المركزي عالي السرعة. (Bصورة مجهرية إلكترونية لجسيمات الفيروس البطيء. شريط المقياس، 50 نانومتر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
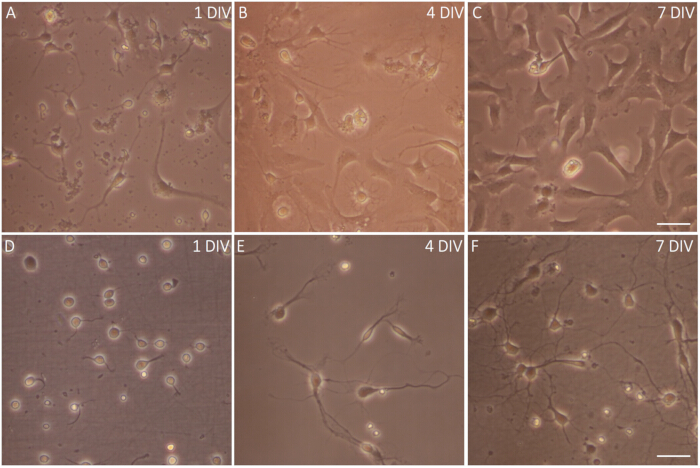
الشكل 3صور تباين الطور للخلايا النجمية الأولية والعصبونات. (أ-ج(نظرة عامة مورفولوجية على مستنبتات الخلايا النجمية الأولية في نقاط زمنية مختلفة بعد العزل.)Aبعد يوم واحد من الزرع، تكون مجموعة من الخلايا النجمية قد التصقت بقاع الدورق.Bبعد أربعة أيام من الزراعة، تبدأ طبقة من الخلايا النجمية في التكون.سيبحلول اليوم السابع بعد الزراعة، تكون طبقة الخلايا النجمية قد وصلت تقريباً إلى حالة التلاقي. لاحظ أن العصبونات غائبة تماماً تقريباً في ظل ظروف الزراعة هذه. (د-و) بعد فترة وجيزة من الزراعة، (دتبدأ العصبونات القشرية في مد بنية صفيحية تحيط بجسم الخلية.هـ) وخلال الأيام التالية في المزرعة، (فيتقدم التمايز العصبي، وتطور بعض العصبونات استطالات متفرعة، مما يشير إلى تكوين شبكة عصبية أكثر تعقيداً. شريط المقياس، 20 μm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
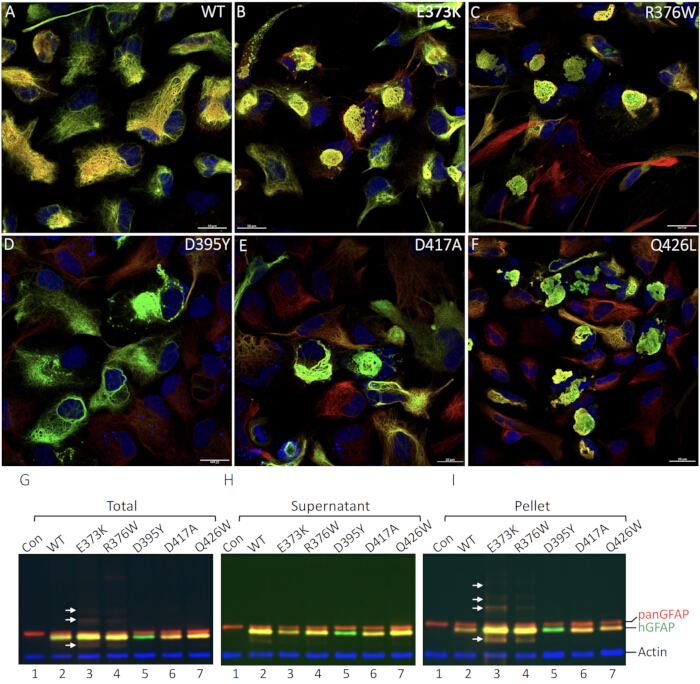
الشكل 4تنظيم الخيوط وخصائص الذوبان لبروتين GFAP البري والطافر في الخلايا النجمية الأولية. (أ-وتم نقل الجينات إلى الخلايا النجمية الأولية للجرذان باستخدام إما النوع البري (WT (A)، أو الطفرات المرتبطة بمرض AxD، بما في ذلك E373K (B)، R376W (سي)، D395Y (د)، D417A (هـ)، و Q426L (فGFAP. تم تثبيت الخلايا وصبغها مناعياً باستخدام أجسام مضادة لـ GFAP البشري (القناة الخضراء) وأجسام مضادة لـ panGFAP (القناة الحمراء). وتظهر الصور المدمجة مع تصور النوى عن طريق الصبغ بـ DAPI (القناة الزرقاء). وبينما تجمعت GFAP من النوع البري (WT) بشكل أساسي في شبكات خيطية (A)، شكلت بروتينات GFAP الطافرة تجمعات سيتوبلازمية في معظم الخلايا التي تم نقل الجين إليها (ب–و). شريط المقياس، 20 μm. (ج–أتحليل مستويات التعبير وخصائص الذوبانية لبروتين GFAP الطافر. تُركت الخلايا النجمية الأولية إما بدون ترنسدكشن (ج-أ، المسار 1) أو التي تم نقل الجينات إليها باستخدام بنى GFAP المحددة (G–I، المسارات 2-7). وبعد 72 ساعة من عملية نقل الجينات، تم تحلل الخلايا في محلول منظم لمقايسة الترسيب المناعي الإشعاعي (RIPA)، والمحللات الكلية الناتجة (جـ)، بالإضافة إلى الطافي (هـ) والراسب (Iتم تحليل الأجزاء بواسطة لطخة مناعية (immunoblotting) باستخدام أجسام مضادة ضد البروتين الحمضي الليفي الدبقي البشري GFAP (القناة الخضراء) وأجسام مضادة ضد panGFAP (القناة الحمراء). واستُخدمت اللطخات التي فُحصت بجسم مضاد ضد الأكتين (القناة الزرقاء) كضابط تحميل. وتظهر مواضع GFAP البشري (hGFAP)، وGFAP الكلي (panGFAP)، والأكتين على اليمين. يُلاحظ أن الخلايا النجمية التي نُقلت إليها طفرة GFAP D395Y لم تظهر أي صبغ في القناة الحمراء باستخدام الجسم المضاد anti-panGFAP، ويرجع ذلك على الأرجح إلى تعطيل الحاتمة المستهدفة للجسم المضاد بسبب الطفرة. وعندما نُقلت طفرة GFAP E373K إلى الخلايا النجمية، كشف تحليل اللطخة المناعية عن حزم إيجابية مناعية إضافية (الأسهم) فوق وتحت حزمة GFAP أحادية القسيمة (monomeric). ومن المرجح أن تكون الحزم السفلية نواتج تحلل، بينما تقابل الحزم العلوية بروتين GFAP المعدل عن طريق عملية اليوبيكويتين (ubiquitination). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
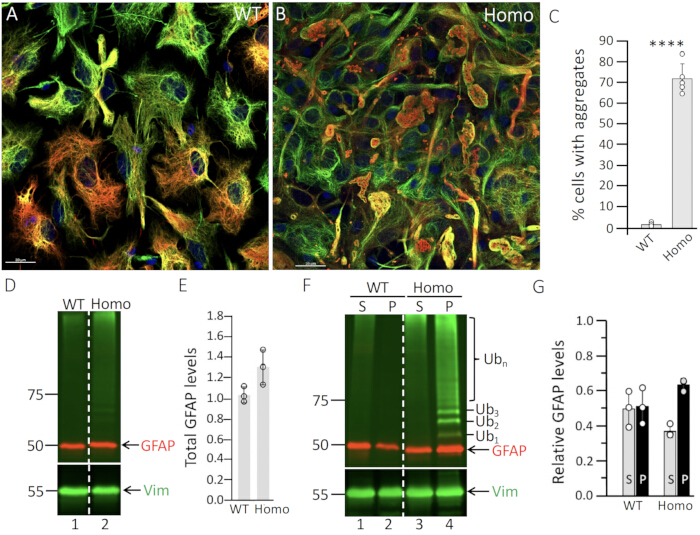
الشكل 5تجمع البروتين الحمضي الليفي الدبقي (GFAP) في الخلايا النجمية المشتقة من جرذان طافرة متماثلة الزيجوت. خلايا نجمية أولية مشتقة من إما (A(النوع البري) أو (Bتم استزراع جرذان طافرة متماثلة الزيجوت لمدة 14 يوماً في المختبر (DIV)، ثم جرى تحضيرها لاحقاً للفحص بالمجهر الفلوري المناعي مزدوج الوسم باستخدام أجسام مضادة ضد GFAP (القناة الحمراء) والفيمينتين (القناة الخضراء). وتظهر الصور المدمجة الأنوية التي تم إظهارها عن طريق الصبغ بـ DAPI (القناة الزرقاء). شريط المقياس، 20 μmفي الخلايا النجمية من النوع البري (WT astrocytes)A)، وشكل البروتين الحمضي الدبقي الليفي (GFAP) شبكات من الخيوط المتوسطة (IF) التي تموضعت بشكل مشترك مع الفيمنتين (vimentin). وفي المقابل، احتوت معظم الخلايا النجمية الطافرة متماثلة الزيجوت على تجمعات من البروتين الحمضي الدبقي الليفي (GFAP) كانت إيجابية مزدوجة لكل من GFAP والفيمنتين (B). (سي) تقدير كمي للخلايا الحاملة للتجمعات في الخلايا النجمية من النوع البري (WT) والخلايا النجمية الطافرة متماثلة الزيجوت. تمثل البيانات المتوسط ± الخطأ المعياري (SE) من ثلاث تجارب مستقلة، وعُرضت في شكل مخططات أعمدة. أُجري التحليل الإحصائي باستخدام اختبار t ذي الذيلين؛ ****p < 0.0001. (د–ز) مستويات التعبير وخصائص الذوبان لبروتين GFAP في الخلايا النجمية من النوع البري (WT) والخلايا النجمية الطافرة متماثلة الزيجوت. استُخلصت الخلايا النجمية الأولية باستخدام محلول RIPA المنظم في اليوم الرابع عشر من الزرع في المختبر (14 DIV). نواتج تحلل الخلايا الكلية (د)، كما تم تحليل أجزاء الطافي (S) والراسب (P) (F) عن طريق البصمة المناعية باستخدام أجسام مضادة ضد GFAP (القناة الحمراء)، واليوبيكويتين (القناة الخضراء)، والفيمينتين (القناة الخضراء). تظهر علامات الكتلة الجزيئية (بـ kDa) على اليسار، بينما تظهر مواضع GFAP والفيمينتين (Vim) واليوبيكويتين (Ub) على اليمين. Ub1–3 تمثل أنواع GFAP أحادية وثنائية وثلاثية اليوبيكويتين، بينما يمثل Ubن يشير إلى أنواع البروتين GFAP المتعددة اليوبيكويتين. الخط المتقطع في (د و ف)) تشير إلى أن المسارات قد تم تشغيلها على نفس الهلام ولكنها غير متجاورة. لاحظ أن أنواع GFAP الميوبيكويتينية قد تم اكتشافها حصرياً في جزء الرواسب من الخلايا النجمية الطافرة متماثلة الزيجوت (ف، المسار 4). يظهر قياس مستويات GFAP في (هـ,جي). وتمثل كل نقطة بيضاء مكرراً بيولوجياً (ن = 3). يتم عرض البيانات في شكل المتوسط ± الانحراف المعياري. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
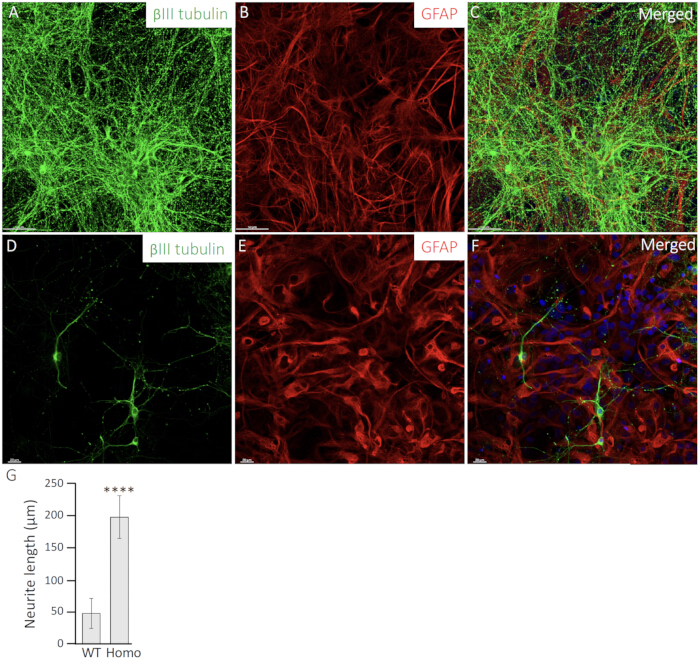
الشكل 6يؤدي تعبير GFAP الطافر في الخلايا النجمية الطافرة متماثلة الزيجوت إلى تغيير شكل الزوائد العصبية. العصبونات الأولية (A,د) تمت زراعتها مشتركاً مع خلايا نجمية من النوع البري (B) أو الخلايا النجمية الطافرة متماثلة الزيجوت (هـتم صبغ الخلايا العصبية مناعياً باستخدام أجسام مضادة ضد βIII tubulin (القناة الخضراء) لتصوير المورفولوجيا العصبية (A,د) بينما الخلايا النجمية (B,هـوتم وسمها بأجسام مضادة ضد GFAP (القناة الحمراء). وتظهر الصور المدمجة (سي,ف)، مع صبغ النوى بصبغة DAPI (القناة الزرقاء). شريط المقياس، 20 μm. (جتم قياس طول الاستطالات العصبية للعصبونات التي تمت زراعتها مشتركاً مع خلايا نجمية من النوع البري (WT) أو الخلايا النجمية متماثلة الزيجوت (Homo)، وعُرضت النتائج في مخططات أعمدة بيانية. تم التعبير عن البيانات في صورة المتوسط ± الانحراف المعياري (SD). وقُيمت الدلالة الإحصائية باستخدام اختبار t ثنائي الذيل، حيث أشير إلى وجود فرق معنوي بين الخلايا النجمية من النوع البري (WT) وتلك ذات الطفرة R237H بالرمز ****P. < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| المكون | التركيز النهائي | |
| وسط التشريح | 10× HBSS | 10% |
| 1 M HEPES , pH 7.4 | 10 mM | |
| 10× penicillin-streptomycin | 1× | |
| وسط التفكيك | 2.5% Trypsin | 0.25% |
| 1 M HEPES , pH 7.4 | 10 mM | |
| 150 mM CaCl2 | 1.5 mM | |
| DNase I (15,0U) | 80 U | |
| 10× HBSS | 10% | |
| وسط الصيانة | Fetal bovine serum | 10% |
| 10× penicillin-streptomycin | 1× | |
| MEM | 97% | |
| وسط تفكيك الخلايا العصبية | 10 mM sodium pyruvate | 1 mM |
| 10% Glucose | 0.10% | |
| 1 M HEPES, pH 7.4 | 10 mM | |
| 0.5 M EDTA | 5 mM | |
| 2 mg/mL Cysteine | 0.2 mg | |
| Papain | 67 U | |
| 150 mM CaCl2 | 1.5 mM | |
| DNase I (15,0U) | 80 U | |
| وسط استزراع الخلايا العصبية | Fetal bovine serum | 5% |
| GlutaMax-1 | 1% | |
| 10% Glucose | 0.06% | |
| 10× penicillin-streptomycin | 1× | |
| وسط صيانة الخلايا العصبية | Neurobasal medium | 97% |
| B27 | 1/50 | |
| GlutaMax-1 | 0.5 mM | |
| 100× penicillin-streptomycin | 1% | |
| وسط زراعة خلايا 293T | DMEM مع 10% | 90% |
| Fetal calf serum | 10% | |
| Glutamine | 2 mM | |
| 10× Penicillin-streptomycin | 1% |
الجدول 1: تركيب الأوساط الغذائية.
الملف التكميلي 1: بنى فيروسية بطيئة طافرة لـ GFAP. تم إنتاج طفرات GFAP عن طريق التطفير الموجه للموقع. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 1: مخطط لطفرات GFAP التي تم إنشاؤها بواسطة التطفير الموجه للموقع.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
لقد ساهمت مزارع الخلايا النجمية الأولية بشكل كبير في تعزيز فهمنا لأدوار الخلايا النجمية في حالتي الصحة والمرض. وبناءً على العمل التأسيسي الذي قام به McCarthy و de Vellis21، تُعد هذه المزارع ضرورية لدراسة AxD لأنها تسمح باستكشاف مفصل للعمليات الخاصة بالخلايا النجمية، لا سيما تأثيرات طفرات AxD على تجميع GFAP وتكوين التجمعات البروتينية.
يعتمد النجاح في عزل وزراعة الخلايا النجمية الأولية على عدة خطوات رئيسية تؤثر على حيوية الخلايا، ونقائها، وقابلية تكرار النتائج. يعد التشريح السريع والدقيق لأنسجة الدماغ، مقترناً بالتحسين الدقيق لتركيز التريبسين ومدة الهضم، أمراً ضرورياً لمنع تحلل الأنسجة وضمان التفكك الكامل إلى معلق من الخلايا المفردة. كما يساهم السحق اللطيف واستخدام مصفاة خلايا معقمة في تعزيز نقاء الخلايا من خلال إزالة الحطام والتجمعات الخلوية. وتساعد هذه الخطوات، التي تليها عملية طرد مركزي منخفضة السرعة وإعادة تعليق دقيقة في وسط زراعي جديد، في الحفاظ على حيوية ونمو الخلايا بشكل عالٍ، مما يقلل من التباين والتلوث. وبمجرد العزل، يصبح اختيار طلاء السطح أمراً حاسماً لضمان التصاق الخلايا بقوة وتحقيق الأهداف التجريبية. غالباً ما يُستخدم Poly-L-lysine (PLL) لفعاليته من حيث التكلفة وقدرته على تعزيز الالتصاق القوي للخلايا، ولكن قد تكون الطلاءات الأخرى مثل laminin22,23 و collagen24 أفضل في محاكاة الظروف in vivo أو تسهيل دراسات خلوية محددة. إن فهم هذه التأثيرات يتيح للباحثين تصميم تجارب تعطي نتائج ذات صلة وقابلة للتكرار.
على الرغم من تحدياته التقنية، يظل هذا البروتوكول لا غنى عنه، حيث يوفر نموذجاً ذا صلة فسيولوجية يتفوق على الخطوط الخلوية المخلدة. ومع ذلك، من المهم الإقرار بعدة قيود: 1) عملية العزل والزراعة متطلبة تقنياً وتستلزم مهارات ومعدات متخصصة. ومقارنة بالخطوط الخلوية المستقرة، فإن هذه الطريقة تستغرق وقتاً أطول وهي أكثر عرضة للتباين، مما قد يؤثر على إمكانية تكرار التجارب. 2) تظهر الخلايا النجمية تباينًا إقليميًا ملحوظًا in vivo25,26، حيث توجد مجموعات متميزة في مناطق مختلفة من الجهاز العصبي المركزي. وعادةً ما تُشتق المزارع الأولية للخلايا النجمية من مناطق محددة في الدماغ، مثل القشرة المخية أو الحصين، وقد لا تستوعب بشكل كامل تنوع مجموعات الخلايا النجمية عبر الجهاز العصبي المركزي. 3) غالبًا ما تؤدي عملية العزل والزراعة إلى تحفيز حالة تفاعلية في الخلايا النجمية بسبب الإجراءات الصادمة، والهضم الإنزيمي، والتعرض لظروف زراعة اصطناعية. وبينما تكون هذه الحالة التفاعلية مفيدة لدراسة الدباق النجمي التفاعلي، فقد لا تمثل بدقة الاستجابات الفسيولوجية للخلايا النجمية للإصابة أو المرض in vivo، مما قد يؤدي إلى ظهور شوائب غير فسيولوجية قد تحرف النتائج التجريبية. 4) تفتقر المزارع الأولية للخلايا النجمية إلى البيئة الدقيقة المعقدة للدماغ الموجودة in vivo، بما في ذلك التفاعلات مع العصبونات، والخلايا الدبقية الصغيرة، والخلايا البطانية، ومكونات المصفوفة خارج الخلوية. وتعد هذه التفاعلات ضرورية لوظيفة الخلايا النجمية واستجابتها للمؤثرات، ويحد غيابها من القدرة على محاكاة السلوك in vivo بشكل كامل. 5) قد تختلف الخلايا النجمية الأولية المشتقة من القوارض، مثل الجرذان أو الفئران، بشكل كبير في خصائصها الجزيئية والوظيفية مقارنة بالخلايا النجمية البشرية27,28. ويمكن لهذه العوامل أن تسبب شوائب غير فسيولوجية، مما يسلط الضوء على الحاجة إلى تصميم تجريبي وتفسير دقيقين. ولمواجهة هذه التحديات، يمكن أن تؤدي خطوات تنقية إضافية، مثل الفرز الخلوي المغناطيسي29 أو العزل القائم على FACS30، إلى الحصول على مجموعات أكثر نقاءً من الخلايا النجمية. ورغم أن هذه الطرق تزيد من تعقيد البروتوكول، إلا أنها تتيح إجراء دراسات أكثر دقة للوظائف الخاصة بالخلايا النجمية.
على عكس بعض البروتوكولات المتقدمة، تعتمد الطريقة الموصوفة هنا على مواد زراعة الخلايا المتوفرة بشكل شائع وتتجنب الحاجة إلى معدات باهظة الثمن. بالإضافة إلى ذلك، يبسط هذا البروتوكول عملية تحضير المزارع الأولية من خلال زراعة الخلايا مباشرة بعد العزل، دون الحاجة إلى رج إضافي أو استزراع فرعي31. وقد يحافظ هذا النهج بشكل أفضل على تعبير GFAP والحالات التفاعلية للخلايا النجمية. كما أن تنفيذ هذه الطريقة سهل، وقابل للتكرار، وقابل للتطبيق على الخلايا من أي منطقة في الجهاز العصبي المركزي، مما يوفر أداة متعددة الاستخدامات للباحثين. وتحتفظ الخلايا النجمية الأولية المُغناة باستخدام هذا البروتوكول ببنيتها الخلوية الأصلية، ومسارات التأشير، والخصائص الوظيفية، مما يجعلها مناسبة لمجموعة واسعة من الدراسات البيولوجية والكيميائية الحيوية الخلوية16,17,32. ومن خلال خبرة تقنية متوسطة وتعامل دقيق، يمكن الحفاظ على هذه المزارع بحيوية عالية، مما يوفر رؤى قيمة حول مورفولوجيا الخلايا النجمية ووظيفتها وسلوكها. وبالرغم من أن البروتوكول مصمم خصيصاً لعزل الخلايا النجمية من قشور الدماغ للجرذان بعد الولادة، إلا أنه يمكن تكييفه بسهولة لعزل الخلايا النجمية من الفئران أو مناطق الدماغ الأخرى، مثل الحصين أو النخاع الشوكي. وتجعل هذه المرونة الطريقة متعددة الاستخدامات للغاية لمعالجة أسئلة بحثية متنوعة في علوم الأعصاب. وفيما يخص نمذجة الأمراض، يمكن للخلايا النجمية المشتقة من جرذان نموذج AxD أن تحاكي طفرات GFAP المرتبطة بالمرض، وتكوين ألياف Rosenthal، والاستجابات المرضية للإجهاد33، مما يوفر منصة قوية لدراسة آليات AxD.
يمكن إجراء تعديل وراثي للخلايا النجمية الأولية المشتقة من جرذان طبيعية عن طريق التحول الفيروسي البطيء (lentiviral transduction) لاستكشاف تأثيرات طفرات AxD على تجميع بروتين GFAP وتكوين التجمعات البروتينية9,33. وتعد عملية اختيار محلول استخلاص مناسب خطوة حاسمة في هذه العملية، حيث يؤثر ذلك بشكل كبير على تقييم خصائص الذوبان لبروتين GFAP الطافر في الخلايا النجمية التي خضعت للتحول34. ويعمل محلول RIPA (مقايسة الترسيب المناعي الإشعاعي)، بما يحتويه من مزيج من المنظفات الأيونية وغير الأيونية، على إذابة خيوط GFAP بفعالية مع الحفاظ على التجمعات البروتينية10، مما يسهل إجراء التحليلات البيوكيميائية الشاملة والأساسية لأهداف البحث في هذه الدراسة.
بشكل عام، توفر المزارع الأولية للخلايا النجمية منصة متعددة الاستخدامات وقوية لدراسة بيولوجيا الخلايا النجمية وآليات المرض، ولا سيما في حالات AxD. ومن خلال تحسين البروتوكولات ومعالجة القصور، يمكن للباحثين تعزيز إمكانية تكرار النتائج وموثوقيتها، مما يجعل هذه الطريقة أساسية لتطوير فهمنا لوظيفة الخلايا النجمية وتحديد الأهداف العلاجية لاعتلال الخلايا النجمية المرتبط ببروتين GFAP.
الإفصاحات
ليس لدى المؤلفين أي تضاربات مصالح للإفصاح عنها.
شكر وتقدير
نتوجه بالشكر للدكتورة Tracy Hagemann (مركز Waisman، جامعة Wisconsin-Madison) لتوفير الجرذان التي تحمل طفرة R237H بنظام knock-in. تم دعم هذا العمل من خلال منح من المجلس الوطني للعلوم والتكنولوجيا (111-2320-B-007-008 و 112-2320-B-007-006 لكل من N.-H. L. و M.-D.P.). ويعرب المؤلفون عن امتنانهم للدعم المقدم من مركز التصوير المجهري البؤري في جامعة National Tsing Hua، تايوان، والمدعوم من المجلس الوطني للعلوم والتكنولوجيا (NSTC-114-2740-M-007-001). كما نشكر مركز الأجهزة في جامعة National Tsing Hua لإتاحة استخدام المجهر الإلكتروني.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 1 مولار HEPES، الرقم الهيدروجيني 7.4 | Gibco | 15630-080 | |
| 100× بنسلين-ستريبتوميسين | Gibco | 15140-122 | |
| 10× محلول هانك الملح المتوازن (HBSS) | Gibco | 14180-046 | |
| تريبسين بتركيز 2.5% | Gibco | 15090046 | |
| محلول أكريلاميد/بيس بتركيز 30% بنسبة 37.5:1 | Biorad | 1610158 | |
| جسم مضاد مضاد لبروتين GFAP | تكنولوجيا إشارات الخلايا | 12389 | |
| جسم مضاد لبروتين GFAP البشري | Biolegend | 837202 | استنساخ SMI21 |
| جسم مضاد لبروتين GFAP الشامل (anti-panGFAP antibody) | Agilent | GA524 | |
| جسم مضاد لليوبيكويتين | Millipore | ST 1200 | استنساخ FK2 |
| مضاد أجسام مضاد للفيمينتين | Sigma-Aldrich | V6389 | النسيلة V9 |
| مضاد-β جسم مضاد لـ tubulin III | Biolegend | 801201 | |
| مكمل B27 | Gibco | 17504044 | |
| كلوريد الكالسيوم (CaCl2)2) | أركوس | 34961 | |
| الكواشف المتعلقة بزراعة الخلايا | |||
| نظام التصوير ChemiDoc | BioRad | لا يوجد نص مترجم. | |
| صبغة كوماسيه الزرقاء | ناقل تسلسلي عام (USB) | 32826 | |
| سيستين | Sigma-Aldrich | C1276 | |
| ديثيوتريتول (DTT) | يُرجى تزويدي بالنص المصدر باللغة الإنجليزية لكي أتمكن من البدء في ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والمهنية المطلوبة. | DTT | |
| دي إن إيز I (DNase I) | Sigma-Aldrich | D5025 | |
| مجانس داونس (Dounce homogenizer) | Wheaton | ||
| وسط دولبيكو المعدل إيجل (DMEM) | Corning | 10-013-CM | |
| طقم تحضير الحمض النووي البلازميدي الخالي من الذيفانات الداخلية | Qiagen | 12943 | |
| كاشف التلألؤ الكيميائي المُعزز (ECL) | PerkinElmer | NEL 105001 | |
| حمض إيثيلين ثنائي أمين رباعي حمض الأسيتيك (EDTA) | ناقل تسلسلي عام (USB) | 15699 | |
| مصل جنين البقر | Gibco | A5209401 | |
| الجلوكوز | Sigma-Aldrich | G8270 | |
| جلوتامكس (GlutaMax) | Gibco | 35050-061 | |
| وسط أساسي أدنى (MEM) | Corning | 10-010-CVR | |
| NaCl | Honeywell | 31434S | |
| وسط نيرو-باسال (Neurobasal medium) | Gibco | 21103049 | |
| جهاز الطرد المركزي الفائق Optima XE-90 | Beckman | غير متاح | |
| باباين | وورثينجتون | LS003126 | |
| فلوريد فينيل ميثيل سلفونيل (PMSF) | ACROS ORGANICS | 215740050 | |
| بولي إيثيلين إيمين | Sigma-Aldrich | P3143 | |
| بولي-إل-لايسين | Sigma-Aldrich | P6516 | |
| كلوريد البوتاسيوم (KCl) | Honeywell | 12636 | |
| جسم مضاد للأكتين مُوسوم بالرودامين | BioRad | 12004164 | |
| دوديسيل كبريتات الصوديوم (SDS) | ناقل تسلسلي عام (USB) | 75819 | |
| بيروفات الصوديوم | Gibco | 11360070 | |
| StarBright Blue 520 goat anti-mouse IgG | Biorad | 12005867 | |
| StarBright Blue 700 goat anti-rabbit IgG | BioRad | 12004161 | |
| السكروز | Sigma-Aldrich | S5391 | |
| الدوار SW-28 | بيكمان | غير متوفر | |
| كاشف ترانسفكشن TansIT-LT1 | Mirus | MR-MIR-2300 | |
| TEMED | ناقل تسلسلي عام (USB) | 76320 | |
| تريس(هيدروكسي ميثيل) أمينو ميثان (Tris) | ناقل تسلسلي عام (USB) | 75825 | |
| Triton X-100 | Sigma-Aldrich | T9284 | |
| β-ميركابتويثانول | Sigma-Aldrich | M3148 |
المراجع
- Verkhratsky A, Nedergaard M. Physiology of astroglia. Physiol Rev. 2018;98(1):239-389.
- Eroglu C, Barres BA. Regulation of synaptic connectivity by glia. Nature. 2010;468(7321):223-31.
- Sofroniew MV. Astrogliosis. Cold Spring Harb Perspect Biol. 2014;7(2):a020420.
- Sofroniew MV, Vinters HV. Astrocytes: biology and pathology. Acta Neuropathol. 2010;119(1):7-35.
- Brandebura AN, Paumier A, Onur TS, Allen NJ. Astrocyte contribution to dysfunction, risk and progression in neurodegenerative disorders. Nat Rev Neurosci. 2023;24(1):23-39.
- Sofroniew MV. Molecular dissection of reactive astrogliosis and glial scar formation. Trends Neurosci. 2009;32(12):638-47.
- Hol EM, Pekny M. Glial fibrillary acidic protein (GFAP) and the astrocyte intermediate filament system in diseases of the central nervous system. Curr Opin Cell Biol. 2015;32:121-30.
- Brenner M, et al. Mutations in GFAP, encoding glial fibrillary acidic protein, are associated with Alexander disease. Nat Genet. 2001;27(1):117-20.
- Lin NH, Jian WS, Perng MD. Deletions in glial fibrillary acidic protein leading to alterations in intermediate filament assembly and network formation. Int J Mol Sci. 2025;26(5):1913.
- Yang AW, et al. Effects of Alexander disease-associated mutations on the assembly and organization of GFAP intermediate filaments. Mol Biol Cell. 2022;33(8):ar69.
- Lin NH, Perng MD. Experimental approaches for biochemical analysis of glial fibrillary acidic protein and its disease-associated variants. J Vis Exp. 2025;(225).
- Hagemann TL, Connor JX, Messing A. Alexander disease-associated glial fibrillary acidic protein mutations in mice induce Rosenthal fiber formation and a white matter stress response. J Neurosci. 2006;26(43):11162-73.
- Hagemann TL, et al. Antisense therapy in a rat model of Alexander disease reverses GFAP pathology, white matter deficits, and motor impairment. Sci Transl Med. 2021;13(620):eabg4711.
- Hagemann TL. Alexander disease: models, mechanisms, and medicine. Curr Opin Neurobiol. 2022;72:140-7.
- Lange SC, et al. Primary cultures of astrocytes: their value in understanding astrocytes in health and disease. Neurochem Res. 2012;37(11):2569-88.
- Lin NH, Yang AW, Chang CH, Perng MD. Elevated GFAP isoform expression promotes protein aggregation and compromises astrocyte function. FASEB J. 2021;35(5):e21614.
- Lin NH, Jian WS, Snider N, Perng MD. Glial fibrillary acidic protein is pathologically modified in Alexander disease. J Biol Chem. 2024;300(7):107402.
- Goya-Iglesias N, et al. Alexander disease mutations differentially sensitize glial fibrillary acidic protein (GFAP) to posttranslational modifications and network disruption by oxidants. Redox Biol. 2026;92:104103.
- Olabarria M, Putilina M, Riemer EC, Goldman JE. Astrocyte pathology in Alexander disease causes a marked inflammatory environment. Acta Neuropathol. 2015;130(4):469-86.
- Lee HG, Wheeler MA, Quintana FJ. Function and therapeutic value of astrocytes in neurological diseases. Nat Rev Drug Discov. 2022;21(5):339-58.
- McCarthy KD, de Vellis J. Preparation of separate astroglial and oligodendroglial cell cultures from rat cerebral tissue. J Cell Biol. 1980;85(3):890-902.
- Olsen ML, et al. Functional expression of Kir4.1 channels in spinal cord astrocytes. Glia. 2006;53(5):516-28.
- Strack A, et al. Chemokines are differentially expressed by astrocytes, microglia and inflammatory leukocytes in Toxoplasma encephalitis and critically regulated by interferon-gamma. Acta Neuropathol. 2002;103(5):458-68.
- East E, Golding JP, Phillips JB. A versatile 3D culture model facilitates monitoring of astrocytes undergoing reactive gliosis. J Tissue Eng Regen Med. 2009;3(8):634-46.
- Zhang Y, Barres BA. Astrocyte heterogeneity: an underappreciated topic in neurobiology. Curr Opin Neurobiol. 2010;20(5):588-94.
- Oberheim NA, Goldman SA, Nedergaard M. Heterogeneity of astrocytic form and function. Methods Mol Biol. 2012;814:23-45.
- Vasile F, Dossi E, Rouach N. Human astrocytes: structure and functions in the healthy brain. Brain Struct Funct. 2017;222(5):2017-29.
- Oberheim NA, et al. Uniquely hominid features of adult human astrocytes. J Neurosci. 2009;29(10):3276-87.
- Peterson IL, et al. Isolation and monoculture of functional primary astrocytes from the adult mouse spinal cord. Front Neurosci. 2024;18:1367473.
- Agalave NM, et al. Isolation, culture, and downstream characterization of primary microglia and astrocytes from adult rodent brain and spinal cord. J Neurosci Methods. 2020;340:108742.
- Du F, et al. Purity, cell viability, expression of GFAP and bystin in astrocytes cultured by different procedures. J Cell Biochem. 2010;109(1):30-7.
- Lin NH, et al. The role of gigaxonin in the degradation of the glial-specific intermediate filament protein GFAP. Mol Biol Cell. 2016;27(25):3980-90.
- Lin NH, Perng MD. Synergistic effects of glial fibrillary acidic protein mutation and overexpression in the pathogenesis of Alexander disease. Int J Mol Sci. 2026;27(10).
- Perng M, et al. The Alexander disease-causing glial fibrillary acidic protein mutant, R416W, accumulates into Rosenthal fibers by a pathway that involves filament aggregation and the association of alpha B-crystallin and HSP27. Am J Hum Genet. 2006;79(2):197-213.
إعادة الطباعة والأذونات
الوسوم
تم نشر هذه المقالة
الفيديو قريباً