在一项初步的嗅觉追踪任务中,大鼠利用视觉和气味轨迹或在红外光下通过路径整合(即先前运动的综合记录)返回有食物的庇护所的能力表明,海马体对路径整合是必需的。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
航位推算与路径导航策略所依赖的线索组合及计算过程截然不同(Darwin, 1873;Barlow, 1964;O’Keefe 和 Nadel, 1978;Mittelstaedt 和 Mittelstaedt, 1980;Landeau 等, 1984;Etienne, 1987;Gallistel, 1990;Maurer 和 Séguinot, 1995)。路径导航依赖于相对稳定的外部线索(如视觉、嗅觉、听觉)之间的关系,而航位推算则需要整合由自身运动所产生的线索。动物通过前庭感受器获取自身运动信息,也可能借助肌肉和关节感受器,以及产生运动的指令副本(efference copy)。此外,动物还可利用其运动所引起的视觉、听觉和嗅觉刺激流。采用路径导航策略时,动物可通过几何计算确定环境中各位置的方向与距离;而采用航位推算策略时,动物则可整合先前运动所产生的线索,以返回刚刚离开的位置。航位推算在日常语言中常被称为“方向感”和“距离感”。
尽管有大量证据表明海马体参与导航(piloting)(O’Keefe 和 Nadel,1978;O’Keefe 和 Speakman,1987),但也有来自行为学(Whishaw 等,1997;Whishaw 和 Maaswinkel,1998;Maaswinkel 和 Whishaw,1999)、建模(Samsonovich 和 McNaughton,1997)以及电生理学(O’Mare 等,1994;Sharp 等,1995;Taube 和 Burton,1995;Blair 和 Sharp,1996;McNaughton 等,1996;Wiener,1996;Golob 和 Taube,1997)研究的证据表明,海马结构也参与路径整合(dead reckoning)。然而,海马体对这两种导航方式的相对贡献仍不明确。通常很难确定动物使用的是导航策略还是路径整合策略,因为动物在策略和线索的使用上具有高度灵活性(Etienne 等,1996;Dudchenko 等,1997;Martin 等,1997;Maaswinkel 和 Whishaw,1999)。本视频演示的目标是解决线索特异性问题,以考察海马体在使用这些策略中的相对作用。大鼠被训练执行一项新任务,即沿着线性或折线形带气味的路径行走,以在开阔场地上找到隐藏的大块食物颗粒。由于大鼠倾向于将食物带回庇护所,因此返回家园基地的准确性以及所使用的线索成为因变量(Whishaw 和 Tomie,1997)。为了迫使动物在携带食物返回庇护所时使用路径整合策略,实验在大鼠被蒙眼或在红外光(一种它们无法看见的光谱波长)条件下进行;在部分实验中,当动物到达食物位置后,气味路径也被移除。为了考察海马体的相对贡献,采用了穹窿–伞(fimbria–fornix,FF)损毁方法,该方法可破坏海马结构中的信息传递(Bland,1986),损害记忆功能(Gaffan 和 Gaffan,1991),并导致空间能力缺陷(Whishaw 和 Jarrard,1995)。
方案
动物
12只成年雌性Long–Evans大鼠(来自莱斯布里奇大学动物饲养室),体重为250–300 g,在实验室中以金属网笼成组饲养,室温维持在20–21°C,光照周期为12小时明/12小时暗(上午8点至晚上8点)。其中6只大鼠接受假手术,另外6只在测试前接受穹窿–伞部损伤手术。
外科手术
进行无菌手术时,大鼠通过腹腔注射戊巴比妥钠(40 mg/kg,i.p.)和甲基硝酸阿托品(5 mg/kg,i.p.)进行麻醉。为制造穹窿–伞部病变,使用00号不锈钢昆虫针,其尖端裸露,其余部分用环氧漆绝缘,通过阴极电流1.5 mA,持续40秒。每侧半球进行两处病变,定位坐标参照前囟及硬脑膜表面:第一处为前囟后1.3 mm、外侧1.5 mm、腹侧3.6 mm;第二处为前囟后1.5 mm、外侧0.5 mm、腹侧3.3 mm(Whishaw 和 Jarrard,1996)。对照组大鼠仅接受麻醉处理,术后48小时内给予镇痛药物以控制疼痛。
所有动物使用均符合莱斯布里奇大学动物护理与使用委员会批准的方案。
喂养
限制喂食以维持大鼠体重为其预期体重的90%。行为测试期间使用大颗粒(750 mg)啮齿类动物饲料颗粒(Bio-Serv,Frenchtown,NJ)作为奖励。大鼠会可靠地将这些颗粒携带至隐蔽处进食(Whishaw et al., 1995a,b)。每天测试结束后,大鼠在其居住笼中额外饲喂LabDiet实验室啮齿类动物颗粒饲料。
仪器设备
开放场由一个直径为204厘米的圆形木桌构成,类似于Barnes空间测试装置(Barnes,1979),桌面涂成白色,并架高至距地面64厘米(Whishaw和Maaswinkel,1998)。桌面上沿边缘等距分布有8个直径为11.5厘米的孔洞,孔中心距离桌缘13.5厘米(图1A)。每个孔下方可插入一个类似于大鼠居住笼的笼子,作为动物的避难所。该装置位于一间测试室内,室内存在多种空间线索,包括带有百叶窗的窗户、操作台、冰箱、橱柜、放置计算机的办公桌等。摄像机安装在圆桌正上方,用于记录动物的行为(Whishaw和Tomie,1997)。
弦线与气味
大鼠被训练为沿着带有香味的细绳寻找食物颗粒。细绳直径约为 2 mm,但长度不一,放置在桌面上形成不同的图案(图 1A,B)。细绳使用杏仁提取物进行加香处理。用浸透的棉纱布擦拭细绳后,气味可在细绳上保持 20 分钟。初步实验表明,经过训练可沿带香味细绳行进的大鼠(图 1C),不会跟随一段刚被移除的细绳所留下的气味轨迹。
口罩与眼罩
用于控制大鼠利用视觉线索的面罩和眼罩由毛毡制成,并通过固定在大鼠颈部周围的魔术贴项圈连接(图2)。面罩通过一条连接到颈圈的弹性下巴带固定在大鼠面部。弹性带具有柔韧性,使大鼠能够用嘴抓取食物颗粒并咀嚼和吞咽。面罩允许大鼠看见,而眼罩则遮挡其视觉。眼罩的有效性在经过训练、能游向游泳池中可见平台的大鼠上进行了测试。训练良好的佩戴面罩的大鼠能够从池子边缘任意起始点直接游向平台,而佩戴眼罩的大鼠则沿池边游动或以杂乱无章的方式游泳。在测试前,大鼠需适应面罩和眼罩,每天佩戴至少30分钟,持续5天。在正式测试前,先将面罩或眼罩戴在动物身上30分钟后再进行测试。
红外测试 除了在大鼠视力被眼罩遮挡的情况下进行测试外,部分实验还在红外光下进行。测试室完全避光,室内灯光被关闭。在红外光下,使用索尼红外摄像机记录动物的活动。实验人员使用红外观察仪在测试室内进行定位。
培训
所有训练均使用直线型带气味的路径进行。将一段长度可变的细绳用杏仁提取物进行染味,从避难所边缘开始延伸,直至食物颗粒处(图1)。最初,细绳较短(约10 cm),并朝不同方向延伸;随着动物逐渐熟练追踪细绳,细绳长度逐渐增加至约150 cm。训练持续14天,到训练结束时,大鼠已能够熟练地沿着细绳在佩戴面罩和蒙眼条件下准确找到食物。
分析
在所有测试中均对大鼠的行为进行了录像。根据正在进行的试验和视频记录,获得了以下行为学指标。
正确试验。 正确试验是指大鼠找到食物颗粒后,未在任何其他潜在出口孔停留,直接返回起始孔的试验过程。
取回。 取回定义为从家园笼中离开并携带食物颗粒返回。
错误。 错误试验是指大鼠找到食物颗粒后,在返回其出发点出口之前,曾在其他某个潜在出口处停留的情况。如果大鼠的鼻尖进入某一孔洞2厘米范围内,则被视为在该出口处停留(此类错误通常十分明确,因为大鼠会停下并将头部伸入孔洞中)。在某些实验中,如果大鼠沿着绳索返回巢穴,而不是选择更直接的路径,则也被归类为一次错误。
移动距离。 使用运动追踪设备分析往返的向外距离和返回距离,以计算行进的总距离。
反应时间。 使用秒表,观察者分别记录找到食物颗粒所需的时间以及将食物带回主笼所需的时间。
头部朝向角度。 在大鼠取回食物颗粒并开始返回途中时,测量其头部朝向角度。当大鼠携带食物移动一个体长距离后,通过其身体长轴所指方向与通往庇护所最直接路径之间的夹角进行测量。
统计分析
采用方差分析(ANOVA)和t检验进行组间比较(Winer, 1962)。
组织学
实验结束后,对大鼠进行深度麻醉,用生理盐水和含甲醛的生理盐水灌流,取出脑组织并保存在30%蔗糖-甲醛溶液中。使用冷冻切片机将脑组织切成40 µm的切片,交替切片用焦油紫染色和乙酰胆碱酯酶染色。
步骤
当大鼠能够稳定地沿着细绳寻找食物时,开始进行测试。共实施以下四项测试。在线性气味轨迹上的返回准确率:将一根125 cm长的带气味细绳和一根相同长度的无气味细绳分别在桌面上拉直放置。每次试验中细绳的位置均不同,试验以伪随机顺序进行,每天进行一次。每只大鼠在佩戴面罩的情况下进行三次试验,在佩戴眼罩的情况下进行三次试验。在线性轨迹上移除气味后的返回准确率:使用长度分别为20、30、50、100和150 cm的细绳对大鼠进行测试。将细绳放置在桌面上,使其一端位于目标距离处,另一端通向大鼠的藏身处,再延伸至实验者。当大鼠到达食物颗粒位置后,将细绳轻轻从桌面上移除。每只大鼠在每个距离下均需在佩戴面罩的情况下进行三次试验,在佩戴眼罩的情况下进行三次试验。距离呈现的顺序以及细绳的方向在各次试验中均有所不同。在多边形气味轨迹上的返回准确率:大鼠共接受四次测试,带气味的轨迹在桌面上以多边形模式(弯曲或有角)布置。每次测试中细绳的长度、方向和排列模式均不同,但在所有情况下,从食物位置返回家巢的距离远短于细绳的总长度。在其中三次测试中,大鼠分别在佩戴面罩和佩戴眼罩的情况下各进行一次试验。在第四次测试中,大鼠不佩戴任何头部装置,分别在正常光照和红外光照条件下各进行一次试验。在八角形气味轨迹上的行进距离:细绳从藏身处引出,在桌面中央形成一个直径为75 cm的八角形。实验中不放置食物颗粒。每只大鼠在第一天在室内光照下进行一次试验,在第二天在红外光照下进行另一次试验。当大鼠到达八角形区域后,连接藏身处与八角形的细绳即被移除。若大鼠离开八角形并进入藏身处,则试验结束。若大鼠完成四次完整的八角形绕行,则通过将其移出的方式终止试验。在新位置进行测试,有视觉和无视觉条件下:每只大鼠从一个新的起始位置沿带气味细绳进行两次试验。其中一次试验中大鼠佩戴面罩,另一次试验中佩戴眼罩。
一般行为学观察
将一只大鼠放入避难笼并置于洞口下方后,该大鼠通常会在离开前多次将头部探出洞口。它通过前肢攀爬、后肢推动的方式爬出洞口。一旦到达桌面上,它会短暂停顿并环顾桌面,寻找带有气味的绳索。在向外行进的过程中,大鼠沿着绳索行走,并以头部左右扫动的方式嗅闻绳索。如果大鼠偏离了绳索,它会迅速绕圈以重新定位绳索位置。当大鼠找到食物后,会用嘴咬住食物并启程返回避难所。到达避难所后,它将头部伸入洞口,并调整四肢位置,以便能够落入洞口下方的笼子中。总体而言,大鼠返回时的行进速度比出发时更快。如果大鼠佩戴了眼罩,其行进速度会比视觉正常时略慢,无论是在追踪绳索还是返回避难所的过程中均如此。在红外光条件下的行进速度通常快于佩戴眼罩条件下的速度。在所有实验中,主要的组间差异源于穹窿–伞部损伤大鼠在无法使用视觉或嗅觉时表现极差。尽管穹窿–伞部损伤大鼠在有光条件下能快速返回避难所,且在缺乏视觉时仍可沿绳索找到避难所,但在缺乏这些线索时,它们会迷失方向,并经常直接在桌面上吃掉食物。
在线性气味轨迹上的返回准确度
为评估追踪准确性,将一根带气味的直线绳索和一根无气味的直线绳索放置在桌面上。在所有试验中,无论是戴面罩还是蒙眼条件下,对照组和穹窿–伞部损伤的大鼠均沿着带气味的绳索找到食物,并忽略无气味的绳索。它们还沿着带气味绳索的路径直接返回庇护处。图3展示了一次追踪任务中对照组与穹窿–伞部损伤大鼠的返回路径。尽管两组间在路径选择上无显著差异,但在反应时间上存在显著差异。大鼠在戴面罩条件下的反应速度快于蒙眼条件(F(1,10) = 10.4;p <0.01),且在获取食物后返回家中笼具的速度快于从起点前往食物位置的速度(F(1,10) = 2.7;p < 0.05)。
去除气味后在线性轨道上的返回准确度
大鼠被呈现不同长度的绳子(图4A),并在大鼠抓取食物时立即移除细绳,从而要求大鼠在无气味轨迹的情况下返回起点,无论是否蒙眼。主要发现为:对照组大鼠在有视觉和蒙眼条件下的表现准确性相当。当具有视觉时,穹窿–伞部损伤大鼠的表现几乎与对照组大鼠相当;但在蒙眼条件下,其错误次数更多、返回时间更长,且行进方向偏差大于其自身有视觉时的表现,也大于对照组大鼠的表现。错误指标(返回途中访问错误孔洞的次数)显示组别具有显著效应(F(1,10) = 26.1; p = 0.005),视觉条件(F(1,10) = 23.8;p = 0.006),以及视觉条件与组别的交互作用(F(1,10) = 23.8; p = 0.006)。所有这些效应均源于穹窿–伞区损伤大鼠所犯的错误(图4B)。在外出与返回所行距离上也存在显著差异(F(4,40) = 3.81; p = 0.01)以及组别间的距离(F(4,40) = 3.8; p = 0.01)。该交互效应主要归因于穹窿伞组在蒙眼条件下的表现显著差于有视觉条件下的表现。穹窿伞组大鼠在光照条件下也会犯错,但这些错误主要发生在绳子位于其他孔洞附近时,而非位于板中央时。有视觉的穹窿伞组大鼠若在返回路径附近遇到错误的孔洞,会表现出强烈的停驻倾向。
时间
返回庇护所取食所用时间的测量结果显示,组别(F(1,10) = 15.171;p = 0.003)、视觉条件(F(1,10) = 15.5;p = 0.028)以及视觉条件与组别的交互作用(F(1,10) = 15.1;p = 0.003)均具有显著效应。所有显著的时间效应均可归因于海马伞–穹窿切损大鼠在蒙眼条件下返回速度较慢(图4C)。在多次试验中,这些大鼠迷失方向,吃掉了食物,并在觅食桌周围随机游走后才最终到达庇护所。尽管海马伞–穹窿切损大鼠在最短距离时返回更快,但距离的效应未达到显著水平(F(4,40) = 2.49;p = 0.058)。
航向角
图5总结了大鼠在携带食物行进一个体长后,其头部方向相对于通往食物的直线方向的偏转角度,按组别、视觉条件和距离进行分类。组别(F(1,10) = 14.9;p = 0.003)、视觉条件(F(1,10) = 13.8;p = 0.004)以及视觉条件与组别的交互作用(F(1,10) = 13.1;p = 0.05)均具有显著效应。这些效应源于海马伞–穹窿(fimbria–fornix)损伤大鼠的角度偏差更大。行进距离对到达食物的影响也具有显著效应(F(4,40) = 4.44;p = 0.04),且行进距离与组别之间的交互作用亦显著(F(4,40) = 2.94;p = 0.03)。这些效应归因于蒙眼状态下海马伞–穹窿损伤大鼠在较长距离时表现出更大的头部偏转角度。行为分析 当观察大鼠取食后返回起点的转向动作时,对照组与海马伞–穹窿损伤大鼠之间存在差异(图6)。对照组大鼠通常先向前伸展身体取食,随后沿身体主轴回缩,使身体朝向来时的方向。而海马伞–穹窿损伤大鼠的前伸动作明显减少,它们不会回缩转身,而是在行走过程中直接原地转动。在蒙眼条件下,海马伞–穹窿损伤大鼠取得食物后的第一反应往往是开始进食,之后才试图返回起点。统计大鼠是沿原路径回缩还是向其他方向移动的结果显示,组别效应显著(F(1,10) = 39.2;p < 0.001)。
基于多边形气味轨迹的回返准确度
在遮蔽和蒙眼条件下,对大鼠在三种多边形中的表现进行了测试(图7A)。三种问题的往返反应时间和距离取平均值。主要结果表明,在遮蔽和蒙眼条件下,对照组大鼠均采取最直接的路径返回起点,而穹窿–伞部损伤大鼠仅在有视觉条件下能直接返回。对大鼠行为的观察显示,无论在遮蔽还是蒙眼条件下,对照组和穹窿–伞部损伤大鼠在前往过程中均能沿绳索行进。对照组大鼠在有视觉和蒙眼条件下,始终通过最短路径直接返回起始孔。穹窿–伞部损伤组在有视觉时能直接返回,但在蒙眼时则沿着气味轨迹返回。因此,两组大鼠在两种条件下的外出距离均与绳索长度非常接近。对照组以及有视觉的穹窿–伞部损伤大鼠的归途距离接近于返回起始孔的最短距离。而蒙眼的穹窿–伞部损伤大鼠的行进距离明显长于绳索返回距离,这是因为许多大鼠偏离了路线,不得不重新寻找回到绳索的路径,或者在到达之前绕圈,仿佛在寻找避难所。
口罩或眼罩
旅行时间 尽管在时间上未观察到组间效应(F(1,20) = 3.39;p = 0.09),但视觉条件(F(1,10) = 40;p = 0.001)和行进方向(F(1,20) = 5.0;p = 0.49)的效应具有显著性。在外出行程中,穹窿伞-海马伞损伤大鼠比对照组大鼠更快,尤其是在遮蔽视觉条件下;而在各组内,蒙眼处理未产生显著效应。或许更为重要的是,组别与视觉条件之间的交互作用(F(1,10) = 20.5;p = 0.001)以及组别与行进方向之间的交互作用(F(1,10) = 10.8;p = 0.008)均达到显著水平。这些交互作用可归因于在蒙眼条件下,对照组和穹窿伞-海马伞损伤大鼠的返回行程均较慢,尤其是后者在蒙眼条件下的返回时间特别缓慢(图7B)。
移动距离
对行进距离的分析显示,所有主效应均具有显著性,包括组别(F(1,20) = 13.8;p = 0.004)、视觉条件(F(1,10) = 24;p = 0.001)和方向(F(1,20) = 16.3;p < 0.002)。在两种视觉条件下,两组的 outward 行进距离均相似,并接近绳索距离;但在 homeward 行进距离上存在组间差异,这由组别与视觉条件之间的显著交互作用(F(1,10) = 14.92;p = 0.003)、组别与方向之间的交互作用(F(1,10) = 7.52;p = 0.001)以及视觉与方向之间的交互作用(F(1,10) = 5.9;p = 0.03)所证实。对照组在蒙眼条件下的返程未受影响,其返回路程接近最短回家路径的距离;而穹窿–伞组在蒙眼时则选择了较长的路径(图7C)。
室温或红外光
大鼠在室内光线下接受一个不规则多边形任务,在红外光线下接受另一个任务,其返回路径如图8所示。所有六只对照组大鼠在光照和黑暗条件下均直接返回巢穴,而五只穹窿–伞部(fimbria–fornix)损伤大鼠在光照条件下直接返回巢穴。所有穹窿–伞部损伤大鼠在黑暗中均沿轨道返回巢穴(图8A)。与蒙眼条件下的结果类似,穹窿–伞部损伤大鼠在黑暗中的返回潜伏期显著长于其在光照条件下的潜伏期,也显著长于对照组在光照或黑暗条件下的潜伏期(p < 0.01)(图8B)。
八边形轨道上的移动距离
大鼠可通过一条绳桥进入一个八边形轨道。当它们到达八边形轨道后,通往其居住笼的连接桥即被移除(图9A)。对照组大鼠每只仅沿轨道行走一圈,当它们返回起始位置而未发现食物时,便前往避难孔并进入避难笼。而穹窿伞部(fimbria–fornix)损伤的大鼠则在八边形轨道上多次绕行(图9B),大多数在完成第四圈后被移出。因此,与穹窿伞部损伤大鼠相比,对照组大鼠在八边形轨道上的绕行圈数更少(对照组均值 = 1,FF组均值 = 3.83),且在绳索上行走的时间显著更短(F(1,10) = 15.3;p = 0.003)(图9C)。
在新位置进行测试,有视觉和无视觉条件下
当遮蔽视线时,除两只对照组大鼠外,所有对照组和穹窿–海马伞大鼠在测试中均返回了熟悉的原位置(图10A)。这两只对照组大鼠直接返回了新的家笼位置。当蒙住眼睛时,所有对照组大鼠均以相对直接的路径返回新位置。而穹窿–海马伞大鼠则表现出定位不准确,会到达错误的位置,或通过沿绳索爬行才返回新位置(图10B)。
图:
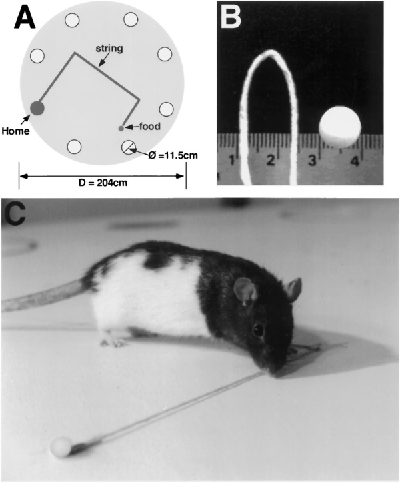
图1. A,觅食台显示了躲避孔(F)的位置,以及一条处于某种配置状态的细绳,其末端放置有食物颗粒。B,大鼠沿其行进的细绳示例,以及它们将食物颗粒搬运回躲避处的情形。C,一只大鼠沿细绳爬行至食物颗粒处的实例。
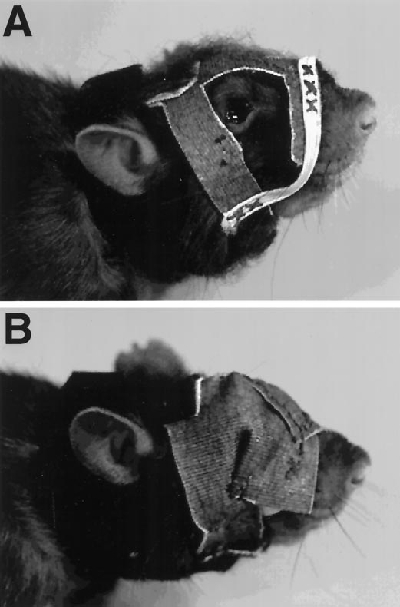
图2. 面罩(A)和眼罩(B)。这两种头戴装置均通过魔术贴项圈固定在大鼠头部。弹性下颌带可将装置紧贴大鼠面部,同时仍允许其张嘴和咀嚼。
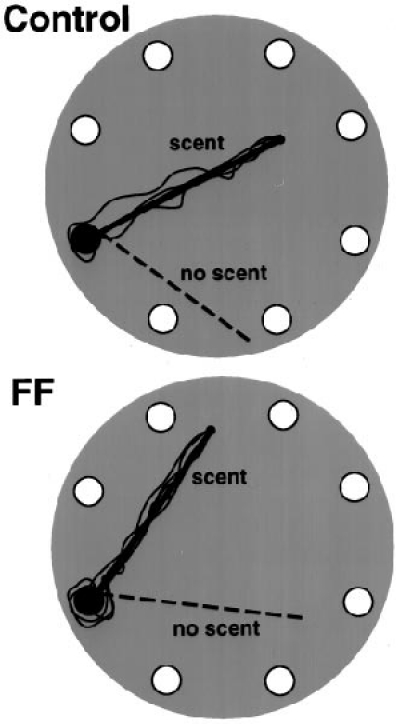
图3. 对照组(上方)和穹窿伞-海马伞(FF)大鼠在蒙眼条件下沿带气味细绳返回路径的示意图(实线)。虚线表示无气味细绳。
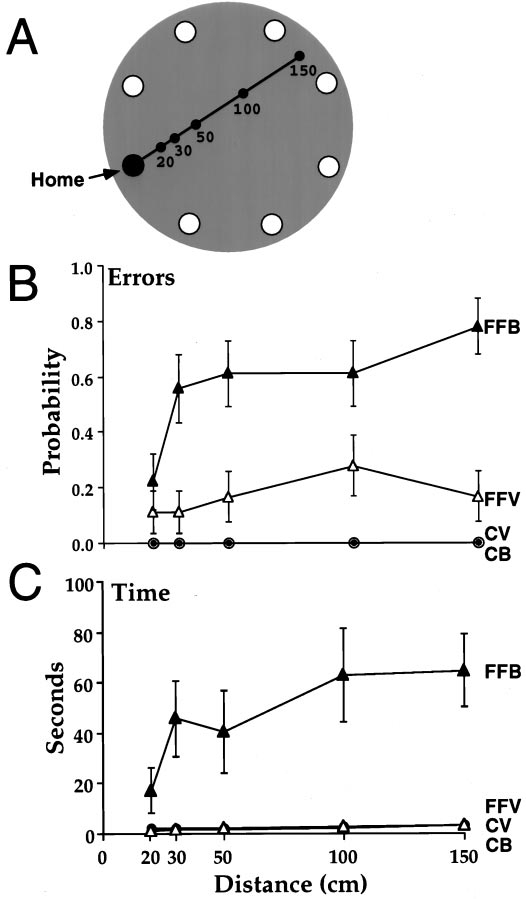
图4. A, 大鼠需行进五种线性距离之一以寻找食物颗粒。当它们到达食物颗粒时,气味线被移除。B, 返回途中错误次数随距离的变化情况(均值和标准误),错误定义为访问了错误的孔洞。C, 返回起点的潜伏期随距离的变化情况(均值和标准误)。FFB,穹窿-伞部盲视野;FFV,穹窿-伞部有视野;CV,对照组有视野;CB,对照组盲视野。
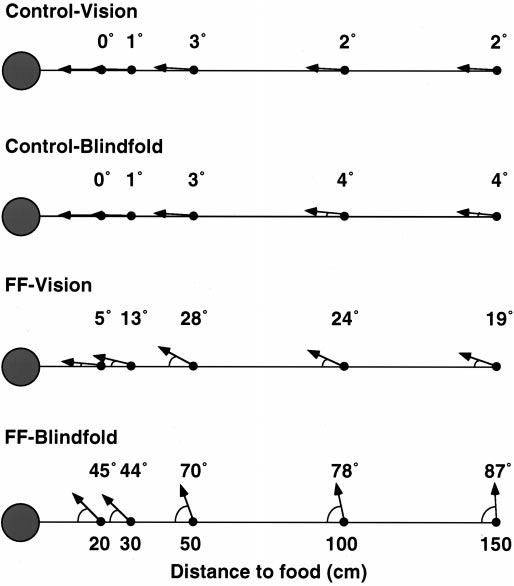
图5. 大鼠在获取食物后转身角度与到达食物所行进距离的关系。注意,当蒙眼时,穹窿–伞部损伤的大鼠在所有距离上的转身准确性均较差。
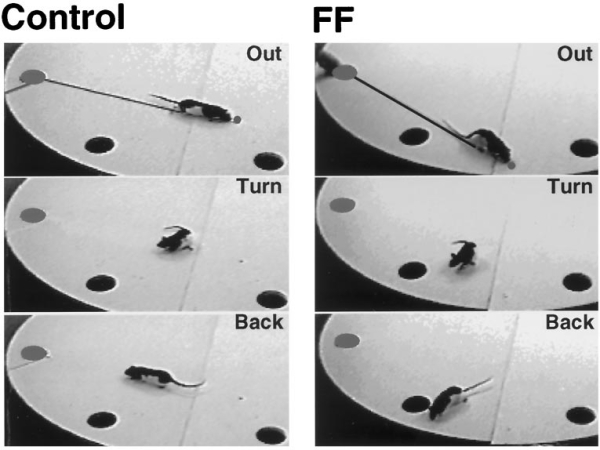
图6. 对照组与穹窿伞部损伤大鼠在移除气味绳后取回食物丸时的转向策略。对照组大鼠向前伸展取回食物,然后向后收缩并转动身体,使头部朝向躲避处。穹窿伞部损伤大鼠则行走至食物位置,但未能转向返回路径。
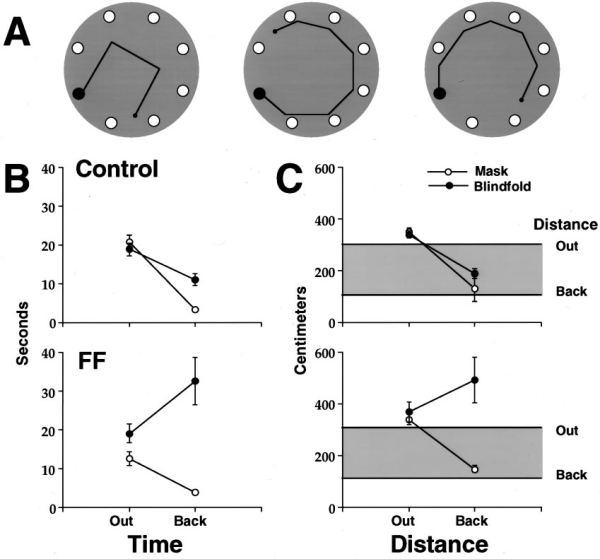
图7. A, 大鼠需要遵循的三条多边形字符串轨迹。 B,到达食物所需时间(三个问题的平均值及标准误)出)和返回(返回对照组与穹窿伞(fimbria–fornix)中的FF在佩戴面罩和蒙眼条件下的大鼠。 C,对照组和穹窿–海马伞损伤大鼠在遮蔽和蒙眼条件下到达食物所行进的距离。该 上部 的 灰色条形 (出)表示沿绳子到食物的距离。 底部部分 的 灰色条形 (返回) 表示食物到巢穴庇护所的最短距离。请注意,各组的表现非常相似,均接近“拉直距离”和“最短返回距离”,唯独在蒙眼条件下,穹窿–伞部损伤大鼠的返回表现例外。
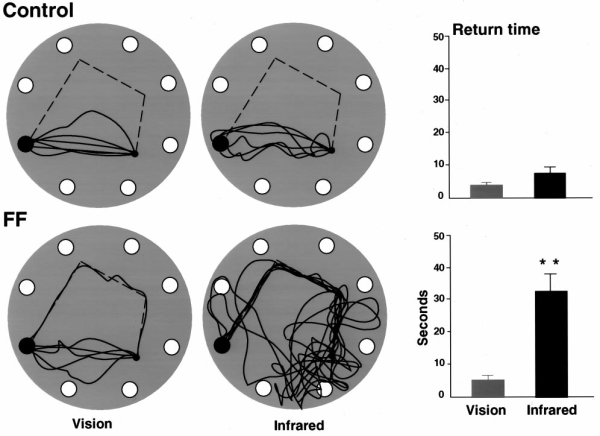
图8. A,对照组和穹窿伞(FF)大鼠在室内光照和红外光照条件下解决多边形绳索问题时的归巢轨迹。穹窿伞大鼠在黑暗中的返回路径不准确,因为它们主要依赖气味绳索返回庇护所。返回潜伏期以均值和标准误(SE)表示。注意穹窿伞大鼠在红外光照下的返回潜伏期显著延长。
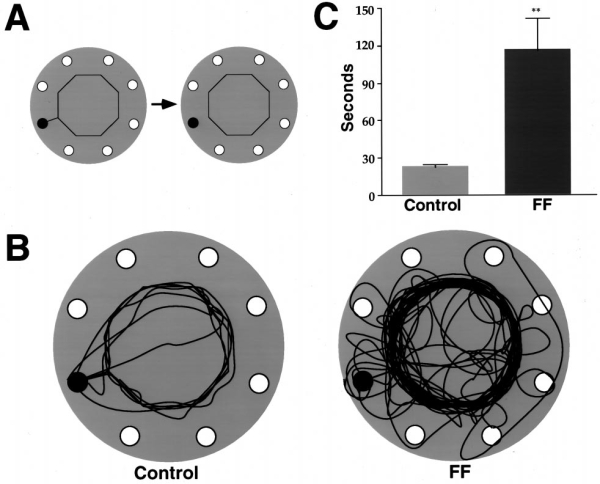
图9. A,一根绳子从避难孔引向一个没有食物的八边形轨道。一旦大鼠到达八边形轨道上,连接其与家园笼的绳子即被移除。B,对照组和穹窿伞大鼠的行走路径。注意,对照组大鼠在返回家园笼前平均在八边形轨道上绕行一圈,而穹窿伞大鼠则在轨道上多次绕行。C,对照组和穹窿伞大鼠在八边形轨道上行走所花费的时间(均值和标准误)。
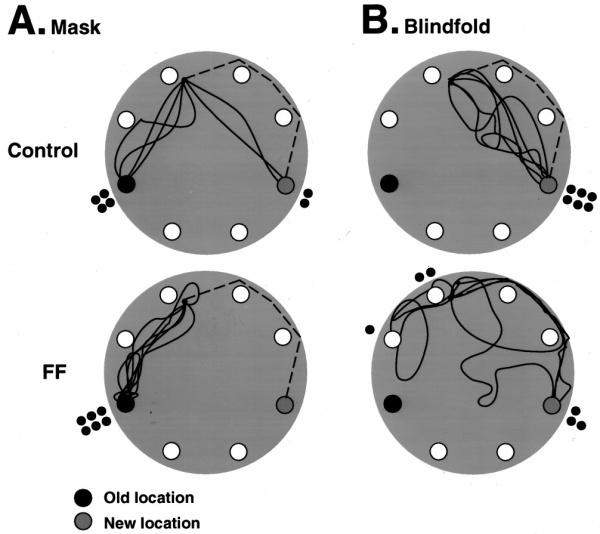
图10. 当家笼被移至新位置(阴影遮蔽区)时,对照组与穹窿–伞部损伤大鼠的行进路径及目的地。注意,在遮蔽条件下,大鼠能够看见,大多数对照组大鼠和所有穹窿–伞部损伤大鼠都将食物搬运至原来的家笼位置;而在蒙眼条件下,大鼠无法看见,所有对照组大鼠均沿直线路径将食物搬运至新的家笼位置,而穹窿–伞部损伤大鼠则到达附近其他洞口,或沿绳索返回至新的家笼位置。
访问受限。请登录或开始试用以查看此内容。
讨论
本实验通过利用一种新颖的任务范式,研究海马体在路径引导导航与路径积分导航中的作用,该任务要求大鼠沿着从藏身处到食物颗粒之间的带气味细绳完成外出行程后返回巢穴。对照组大鼠能够高效地运用空间策略和路径积分策略进行导航。而穹窿–伞部损伤的大鼠在使用空间策略时仍能成功导航,但在被迫依赖路径积分策略时则表现出导航能力受损。这些结果支持了海马结构的完整性对路径积分导航至关重要的假说。此外,这可能也是首次在犬类以外的动物中实现追踪行为的实验演示。
任务需求
本研究的新颖之处在于使用了一根带有气味的细绳,使实验动物能够沿着气味轨迹追踪到食物颗粒。这种追踪方法的运用在多个方面促进了对大鼠归巢行为的分析。首先,大鼠的外出路径和所依赖的线索是明确指定的。大鼠非常擅长利用表面的嗅觉线索(Maaswinkel 和 Whishaw,1999),因此使用带气味的细绳可迫使它们专注于特定的线索。其次,所有大鼠都可以经历完全相同的外出路径,从而消除了当它们为寻找随机分布的食物而采取随意且个体差异较大的外出路线时所产生的变异性。该实验程序的第三个重要特征是,能够确定...
访问受限。请登录或开始试用以查看此内容。
致谢
本工作由加拿大卫生研究院资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 | |
|---|---|---|---|---|
| 戊巴比妥钠 | 试剂 | Sigma-Aldrich | p3761-25g | |
| 硫酸阿托品甲基硝酸盐 | 试剂 | Sigma-Aldrich | a0382-5g | |
| 啮齿类动物颗粒饲料 | 动物饲料 | BIO-SERV |
参考文献
- Amaral, D. G., Witter, M. P. Hippocampal formation. In: The rat nervous system. Paxinos, G. , Acad. Press Inc. San Diego. 443-493 (1995).
- Angeli, S. J., Murray, E. A., Mishkin, M. Hippocampectomized monkeys can remember one place but not two. Neuropsychologia. 31, 1021-1030 (1993).
- Barlow, J. S. Inertial navigation as a basis for animal navigation. J Theor Biol. 6, 76-117 (1964).
- Barnes, C. A. Memory deficits associated with senescence: a neurophysiological and behavioral study in the rat. J Comp Physiol Psychol. 93, 74-104 (1979).
- Blair, H. T., Sharp, P. E. Visual and vestibular influences on headdirection cells in the anterior thalamus of the rat. Behav Neurosci. 110, 643-660 (1996).
- Bland, B. H. The physiology and pharmacology of hippocampal formation theta rhythms. Prog Neurobiol. 26, 1-54 (1986).
- Cassel, J. C., Kelche, C., Peterson, G. M., Ballough, G. P., Goepp, I., Will, B. Graft induced behavioral recovery from subcallosal septo-hippocampal damage in rats depends on maturity stage of donor tissue. Neuroscience. 45, 571-586 (1991).
- Chen, L. L., Lin, L. H., Green, E. J., Barnes, C. A., McNaughton, B. L. Head direction cells in the rat posterior cortex. I. Anatomical distribution and behavioral modulation. Exp Brain Res. 101, 8-23 (1994).
- Darwin, C. On the origin of certain instincts. Nature. 7, 417-418 (1873).
- Dudchenko, P. A., Goodridge, J. P., Seiterle, D. A., Taube, J. S. Effects of repeated disorientation on the acquisition of spatial tasks in rats: dissociation between the appetitive radial arm maze and aversive water maze. J Exp Psychol. 23, 194-210 (1997).
- Etienne, A. S. The control of short-distance homing in the golden hamster. In: Cognitive processes in spatial orientation in animal and man. Ellen, P., Thinus-Blanc, C. , 223-251 (1987).
- Martinus, N. ijhoff, Etienne, A., Maurer, R., Seguinot, V. Path integration in mammals and its interaction with visual landmarks. J Exp Biol. 199, 201-209 (1996).
- Gaffan, D., Gaffan, E. A. Amnesia in man following transection of the fornix. Brain. 114, 2611-2618 (1991).
- Gallistel, C. R. The organization of learning. , MIT Press. Cambridge,MA. (1990).
- Golob, E. J., Taube, J. S. Head direction cells and episodic spatial information in rats without a hippocampus. Proc Natl Acad Sci USA. 94, 7645-7650 (1997).
- Grey, J. A., McNaughton, N. Comparison between the behavioural effects of septal and hippocampal lesions: a review. Neurosci Biobehav Rev. 7, 119-188 (1983).
- Jarrard, L. E. On the role of the hippocampus in learning and memory in the rat. Behav Neural Biol. 60, 9-26 (1993).
- Jeltsch, H., Cassel, J. C., Jackisch, R., Neufang, B., Green, P. L., Kelche, C., Hertting, G., Will, B. Lesions of supracallosal or infracallosal hippocampal pathways in the rat: behavioural, neurochemical, and histochemical effects. Behav Neural Biol. 62, 121-133 (1994).
- Landeau, B., Spelke, E., Gleitman, H. Spatial knowledge in a young blind child. Cognition. 16, 225-260 (1984).
- Maaswinkel, H., Whishaw, I. Q. Homing with locale, taxon, and dead reckoning strategies by foraging rats: sensory hierarchy in spatial navigation. Behav Brain Res. 99, 143-152 (1999).
- Martin, G. M., Harley, C. W., Smith, A. R., Hoyles, E. S., Hynes, C. A. Opaque transportation with rotation blocks reliable goal location on a plus maze but does not prevent goal location in the Morris maze. J Exp Psychol. 23, 183-193 (1997).
- Maurer, R., Séguinot, V., V, What is modeling for? A critical review of the models of path integration. J Theor Biol. 175, 457-475 (1995).
- McNaughton, B. L., Barnes, C. A., Gerrard, J. L., Gothard, K., Jung, J. J., Knierim, J. J., Kudrimoti, H., Quin, Y., Skaggs, W. E., Suster, M., Weaver, K. L. Deciphering the hippocampal polyglot: the hippocampus as a path integration system. J Exp Biol. 199, 173-185 (1996).
- Mittelstaedt, M. L., Mittelstaedt, M. Homing by path integration in a mammal. Naturwissenschafen. 67, 566-567 (1980).
- Mizumori, S. J. Y., Williams, J. D. Directionally selective mnemonic properties of neurons in the lateral dorsal nucleus of the thalamus of rats. J Neurosci. 13, 4015-4028 (1993).
- Muller, R. U., Stead, M., Pach, J. The hippocampus as a cognitive graph. J Gen Physiol. 107, 663-694 (1996).
- O'Keefe, J., Nadel, L. The hippocampus as a cognitive map. , Clarendon Press. Oxford, UK. (1978).
- O'Keefe, J., Speakman, A. Single unit activity in the rat hippocampus during a spatial memory task. Exp Brain Res. 68, 1-27 (1987).
- O'Mare, S., Rolls, E. T., Berthoz, A., Desner, R. P. Neurons responding to whole-body motion in the primate hippocampus. J Neurosci. 14, 6511-6523 (1994).
- Pearce, J. M., Roberts, A. D. L., Good, M. Hippocampal lesions disrupt navigation based on cognitive maps but not heading vectors. Nature. 369, 75-77 (1998).
- Samsonovich, A., McNaughton, B. L. Path integration and cognitive mapping in a continuous attractor neural network model. J Neurosci. 17, 5900-5920 (1997).
- Sharp, P. E. Subicular cells generate similar spatial firing patterns in two geometrically and visually distinctive environments: comparison with hippocampal place cells. Behav Brain Res. 85, 71-92 (1997).
- Sharp, P. E., Blair, H. T., Etkin, D., Tzanetos, D. B. J. Influences of vestibular and visual motion information on the spatial firing patterns of hippocampal place cells. Neuroscience. 15, 173-189 (1995).
- Shapiro, M. L., O'Connor, C. N-methyl-D-aspartate receptor antagonist MK-801 and spatial memory representation: working memory is impaired in an unfamiliar environment but not in a familiar environment. Behav Neurosci. 106, 604-612 (1992).
- Squire, L. Memory and the hippocampus: a synthesis from findings with rats, monkey, and humans. Psychol Rev. 99, 195-231 (1992).
- Sutherland, R. J., Rodriguez, A. J. The role of the fornix/fimbria and some related subcortical structures in place learning and memory. Behav Brain Res. 32, 129-144 (1989).
- Taube, J. S. Head direction cells recorded from the postsubiculum in freely moving rats. I. Description and quantitative analysis. J Neurosci. 172, 49-84 (1990).
- Taube, J. S. Head direction cells recorded in the anterior thalamic nuclei of freely moving rats. J Neurosci. 15, 70-85 (1995).
- Taube, J. S., Burton, H. L. Head direction cell activity monitored in a novel environment and during a cue conflict situation. J Neurosci. 15, 1953-1971 (1995).
- Whishaw, I. Q. Activation, travel distance, and environmental change influence food carrying in rats with hippocampal, medial thalamic and septal lesions: implications for studies on hoarding and theories of hippocampal function. Hippocampus. 3, 373-385 (1993).
- Whishaw, I. Q., Jarrard, L. Similarities vs. differences in place learning and circadian activity in rats after fimbria-fornix section or ibotenate removal of hippocampal cells. Hippocampus. 5, 595-604 (1995).
- Whishaw, I. Q., Jarrard, L. E. Evidence for extrahippocampal involvement in place learning and hippocampal involvement in path integration. Hippocampus. 6, 513-524 (1996).
- Whishaw, I. Q., Maaswinkel, H. Rats with fimbria - fornix lesions are impaired in path integration: a role for the hippocampus in 'sense of direction'. J Neurosci. 18, 3050-3080 (1998).
- Whishaw, I. Q., Mittleman, G. Visits to starts, routes, places by rats (Rattus norvegicus) in swimming pool navigation tasks. J Comp Psychol. 100, 422-431 (1986).
- Whishaw, I. Q., Tomie, J. Piloting and dead reckoning dissociated by fimbria-fornix lesions in a rat food carrying task. Behav Brain Res. 89, 87-97 (1997).
- Whishaw, I. Q., Coles, B. K. L., Bellerive, C. H. M. Food carrying: a new method for naturalistic studies of spontaneous and forced alternation. J Neurosci Methods. 61, 139-143 (1995a).
- Whishaw, I. Q., Cassel, J. C., Jarrard, L. E. Rats with fimbria - fornix lesions display a place response in a swimming pool: a dissociation between getting there and knowing where. J Neurosci. 15, 5779-5788 (1995b).
- Whishaw, I. Q., McKenna, J., Maaswinkel, H. Hippocampal lesions and path integration. Curr Opin Neurobiol. 7, 228-234 (1997).
- Wiener, S. I. Spatial behavioral and sensory correlates of hippocampal CA1 complex spike cell activity: implications for information processing functions. Prog Neurobiol. 49, 335-361 (1996).
- Winer, B. J. Statistical principles in experimental design. , McGraw-Hill. London. (1962).
- Worden, R. Navigation by fragment fitting: a theory of hippocampal function. Hippocampus. 2, 165-188 (1992).
访问受限。请登录或开始试用以查看此内容。
重印与许可
