本文展示了在活体细菌细胞上进行单分子荧光显微镜观察的实验方案,以实现对功能性分子复合物的检测、追踪和定量分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
对活细胞机制的全面理解,只有通过研究在细胞层面引发和调控事件的关键过程才能实现。迄今为止,由于生物系统的极度复杂性,精确的单分子实验一直难以实现,因而研究多集中于采用相对粗糙的整体系综平均测量方法来分析单一系统。然而,许多重要过程在活细胞中仅由一个或少数几个分子完成;而系综测量通常会掩盖这些事件所具有的随机性和异质性。本文中,我们利用先进的光学显微镜技术和分析性图像分析工具,展示了如何在单个活细菌细胞内以单分子精度监测蛋白质,并观察功能性生物分子机器中分子复合物的动态变化。这些技术具有直接的生理相关性:对所研究的生物样本干扰极小、无侵入性,且完全适用于活体材料的研究,这些特点是一些其他生物物理领域的单分子方法难以具备的。此外,所研究的生物样本均以接近未修饰细胞株的水平表达荧光标记蛋白(“基因组编码”),而非更常见但较不理想的、通过质粒表达产生远超自然水平蛋白的方法。因此,所研究的实际生物样本更接近天然生物体,所得观察结果也更贴近真实的生理过程。
关键词:单分子成像,活细胞成像,细菌细胞,光学显微镜,基因组编码,分子复合物,生物分子机器,荧光标记蛋白,系综平均测量,随机性,异质性
方案
- 开始本实验时,首先将表达荧光蛋白的Escherichia coli细菌细胞的50 μl冻存菌液解冻,并在37°C下于5 ml LB培养基中振荡培养过夜,进行好氧生长。次日早晨,取50 μl该饱和培养物接种至最小M63葡萄糖培养基中,于30°C孵育4至6小时。本实验中使用两种不同的菌株进行演示:其中一种表达与GFP融合的电子传递细胞色素蛋白,另一种则表达与GFP融合的参与细菌鞭毛马达的蛋白。
- 若观察固定化的样品,可直接从正在生长的亚培养物中收集细胞;若在“拴系”条件下观察,则需对细胞进行剪切以截短细菌鞭毛。
- 剪切操作通常将1–5 ml亚培养物加入由两支无菌注射器通过无菌管道连接的装置中完成。通过交替推动两支注射器活塞,使菌液在狭窄管道中反复通过,实现剪切,一般进行50–100次,具体次数取决于所需的剪切程度。随后将菌液离心以收集细胞沉淀,并用最小培养基重悬,以去除鞭毛碎片。
- 接着,我们通过将洁净的BK7玻璃盖玻片浸入乙醇中的饱和KOH溶液20分钟,然后用去离子水和乙醇彻底冲洗,并在空气中干燥至少1小时,以完成盖玻片的清洗。
- 我们构建一个简单的流动池,用于在显微镜下容纳细胞。该过程包括在BK7玻璃载玻片上绘制石蜡油线条,然后将一块已清洗的盖玻片覆盖其上,用镊子轻轻按压,形成“隧道三明治”结构,流动池体积为5–10 μl。
- 为观察固定化细胞,我们通过注射将0.1%(w/v)的聚-L-赖氨酸溶液注入流动池,并在室温下孵育至少1分钟。随后从流动池一端注入100 μl最小培养基,另一端用滤纸吸液,冲洗去除未结合物质。
- 接着,用滤纸吸液方式使20 μl最小培养基中1:500稀释的200 nm直径乳胶微球(Polysciences)溶液流经流动池,以标记盖玻片表面。将流动池倒置,使盖玻片朝下,置于简易湿度室内的平台上,远离接触面,在室温下孵育5分钟。未结合的微球通过吸液100 μl最小培养基洗去。
- 若需观察拴系细胞,则省略聚-L-赖氨酸步骤,改为向流动池中注入5 mg/ml抗鞭毛蛋白抗体溶液。将流动池置于湿度室中10分钟,随后通过吸液冲洗。
- 然后,用20 μl细胞培养物通过吸液方式流经流动池:若观察拴系细胞,则使用剪切后的样品;若观察固定化细胞,则使用未剪切的样品。
- 将流动池倒置并置于湿度室中孵育20分钟。未结合的细胞通过吸液100 μl最小培养基洗去。
- 在盖玻片顶面中央滴加一滴浸油,然后将流动池轻轻放置于自制荧光显微镜的样品托上,使其与高数值孔径物镜形成光学接触。
- 开启显微镜电子倍增相机,并将相机冷却至-70°C。设置软件以典型的25 Hz帧率在帧转移模式下采集图像,初始时关闭相机的增益控制。
- 打开明场照明,调焦至成像清晰,并根据细胞长轴平行于盖玻片表面的状态,选择合适的单个或多个细胞进行成像。精细调节焦距,确保附着在盖玻片表面的200 nm乳胶微球刚好处于焦点位置。
- 采集明场图像序列以记录细胞体的轮廓。关闭明场照明,并将相机增益调至最大。
- 在进行全内反射荧光(TIRF)标准成像时,预设适当波长的激光束(此处为激发绿色荧光蛋白,使用473 nm激光),使其聚焦于物镜的后焦平面,但横向偏离光轴,从而在细胞样品中产生用于荧光激发的衰逝场。
- 启动相机采集,同时打开激光快门以激发细菌内的荧光蛋白。激光强度和采集速度需根据具体研究的生物系统通过实验优化。通常,在直径约30 μm的圆形激发区域上使用1–10 mW激光功率,每帧曝光时间为5–40 ms,适用于研究细胞膜中可移动蛋白复合物。样品持续照射直至发生光漂白,通常约10秒。
- 本方案既可用于观察细胞体围绕盖玻片与鞭毛残端附着点旋转的拴系细胞,也可用于观察牢固固定在盖玻片表面的固定化细胞。
- 某些含有高拷贝数复合物的菌株,在进行TIRF成像前,可在细胞一极进行初始的衍射极限聚焦激光漂白处理,以提高成像效果。该漂白步骤与荧光漂白后恢复(FRAP)所用方法类似。在我们的自制显微镜系统中,部分激发激光可导入另一独立光路,用于FRAP型漂白。通常使用1–10 mW激光功率,漂白时间一般为10–300 ms。该处理可显著提高细胞漂白区域的成像对比度,使随后扩散进入该区域的单个复合物更易于被观察。
- 为观察细胞质中扩散速度远快于细胞膜复合物的蛋白复合物,采用一种称为“窄场照明”(slimfield)的不同照明模式。在此模式下,聚焦激光横向扩展,刚好覆盖单个细胞,产生高强度照明场,从而实现通常为毫秒级的极快曝光。
- 数据采集完成后,图像被导入自行编写的软件(使用LabVIEW 8.5编写)。该软件可自动检测细胞内荧光斑点的位置,定位精度通常达数纳米,并提取其大小和亮度。通过分析被追踪分子复合物的光漂白轨迹随时间变化的亮度,可估算其化学计量比,即单个分子复合物由多少个独立的荧光蛋白组成。
代表性结果:
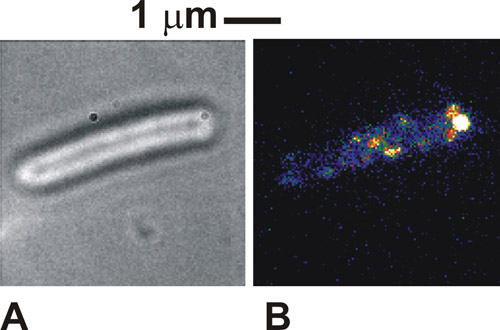
当实验步骤正确执行时,在明场下观察到的细胞图像非常清晰,细胞体的轮廓在白色或灰色的细胞体背景下呈现为深色(图1a)。在使用固定化细胞进行荧光观察时,我们可以看到明显的荧光斑点,其强度集中,宽度通常为250–300 nm(图1b)。健康的锚定细胞在明场图像中会围绕锚定点旋转。在荧光激发下,某些分子复合物在本实验中也可能在锚定点处被观察到,表明标记蛋白定位于鞭毛马达处。这些斑点代表单个分子复合物,其可见数量取决于所使用的照明模式以及细胞在特定时间点实际存在的复合物数量。斑点的运动性取决于所研究的具体生物系统。如果斑点密度最初非常高(例如本实验中使用的标记细胞色素),则进行初始的荧光漂白恢复(FRAP)漂白步骤可提高成像对比度。

图 1. (A) 明场图像与 (B) 全内反射荧光(TIRF)图像(伪彩)显示固定化的表达绿色荧光蛋白(GFP)融合蛋白的大肠杆菌(Escherichia coli)细胞,该蛋白已知参与细菌鞭毛马达结构。请点击此处查看图 1 的放大版本。
访问受限。请登录或开始试用以查看此内容。
讨论
在观察被束缚的细菌时,必须注意避免对细胞进行过度剪切,因为这可能会损害鞭毛马达的功能。细胞置于显微镜载玻片上后,不应使用超过一小时,因为细胞可能因缺氧而影响状态。针对所研究的特定生物系统,可能需要进行大量优化,以确定最佳的显微成像条件。建议尝试仅使用纯化的GFP进行成像,以确定适用于您特定显微镜系统的合适激光激发强度。
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢牛津大学Judith Armitage教授团队和伦敦玛丽女王大学Conrad Mullineaux教授团队慷慨捐赠的细菌菌株。IMD由牛津大学生物化学系和OCISB联合资助;AR由工程与物理科学研究理事会(EPSRC)博士培训中心奖学金资助;ND由生物技术和生物科学研究生理事会(BBSRC)资助;MCL由英国皇家学会大学研究奖学金资助。
访问受限。请登录或开始试用以查看此内容。
参考文献
- Leake, M. C., Chandler, J. H., Wadhams, G. H., Bai, F., Berry, R. M., Armitage, J. P. Stoichiometry and turnover in single, functioning membrane protein complexes. Nature. 443, 355-358 (2006).
- Leake, M. C., Greene, N. P., Godun, R. M., Granjon, T., Buchanan, G., Chen, S., Berry, R. M., Palmer, T., Berks, B. C. Variable stoichiometry of the TatA component of the twin-arginine protein transport system observed by in vivo single-molecule imaging. Proc Natl Acad Sci U S A. 105, 15376-15381 (2008).
- Leake, M. C., Wilson, D., Gautel, M., Simmons, R. M., M, R. The elasticity of single titin molecules using a two-bead optical tweezers assay. Biophys. J. 87, 1112-1135 (2004).
- Leake, M. C., Wilson, D., Bullard, B., Simmons, R. M. The elasticity of single kettin molecules using a two-bead laser-tweezers assay. FEBS Lett. , 535-555 (2003).
- Lenn, T., Leake, M. C., Mullineaux, C. W. In vivo clustering and dynamics of cytochrome bd complexes in the Escherichia coli plasma membrane. Mol. Microbiol. 70, 1397-1407 (2008).
- Lenn, T., Leake, M. C., Mullineaux, C. W. Are Escherichia coli OXPHOS complexes concentrated in specialised zones within the plasma membrane. Biochem. Soc. Trans. 36, 1032-1036 (2008).
- Lo, C. J., Leake, M. C., Pilizota, T., Berry, R. M. Single-cell measurements of Membrane Potential, Sodium-Motive Force and Flagellar Motor Speed in Escherichia coli. Biophys. 93, 294-302 (2007).
- Lo, C. J., Leake, M. C., Berry, R. M. Fluorescence measurement of intracellular sodium concentration in single Escherichia coli cells. Biophys. J. 90, 357-3565 (2006).
访问受限。请登录或开始试用以查看此内容。
重印与许可
