本文描述了一种涉及FRET(福斯特共振能量转移)信号定量分析的新方法,用于研究酶动力学。通过该方法获得了SENP1(SUMO/Sentrin特异性蛋白酶1)催化结构域对pre-SUMO1(小泛素样修饰蛋白1)水解反应的KM和kcat值。这种基于定量FRET的蛋白酶动力学研究的一般原理可应用于其他蛋白酶的研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蛋白质与泛素或泛素样蛋白(Ubls)之间可逆的翻译后修饰被广泛用于动态调控蛋白质活性,并在多种生物学过程中发挥重要作用。例如,SUMO可通过共价修饰大量蛋白质,在细胞周期调控、细胞存活与死亡、DNA损伤应答以及应激反应等多种细胞过程发挥关键作用1-5。SENP作为SUMO特异性蛋白酶,既可作为内肽酶参与SUMO前体的成熟过程,也可作为异肽酶从靶蛋白上切除SUMO,从而维持SUMO化循环的更新 1,3,6,7.
酶的催化效率或特异性最好通过动力学常数的比值 kcat/KM 来表征。在多项研究中,SUMO-SENP 配对的动力学参数已通过多种方法测定,包括基于聚丙烯酰胺凝胶的蛋白质印迹法、放射性标记底物、荧光化合物或荧光蛋白标记底物8-13。然而,基于聚丙烯酰胺凝胶的技术虽然使用了“天然”蛋白质,但操作繁琐且技术要求高,难以进行详细的定量分析。使用四肽或带有 ACC(7-氨基-4-羰甲基香豆素)或 AMC(7-氨基-4-甲基香豆素)荧光基团的蛋白质作为底物所得的 kcat/KM 值,要么比天然底物低达两个数量级,要么无法明确区分 SENP 的异肽酶和内肽酶活性。
最近,基于FRET的蛋白酶检测方法被用于研究去泛素化酶(DUBs)或SENP蛋白酶,所用的FRET荧光对为青色荧光蛋白(CFP)和黄色荧光蛋白(YFP)9,10,14,15。受体发射光与供体发射光的比值被用作定量参数,以监测FRET信号并确定蛋白酶活性。然而,该方法忽略了受体和供体自身荧光在受体和供体发射波长处的信号串扰,因此不够准确。
我们开发了一种基于FRET的新型高灵敏度、定量蛋白酶检测方法,用于测定SENP1对pre-SUMO1成熟过程的动力学参数。通过使用经基因工程改造的FRET荧光对CyPet和YPet,其FRET效率和荧光量子产率显著提高,构建了CyPet-(pre-SUMO1)-YPet底物16。我们分别在受体和发射波长处对供体和受体贡献的绝对荧光信号以及FRET信号进行了区分和定量。测得SENP1对pre-SUMO1的kcat/KM值为(3.2 ± 0.55) × 107 M-1s-1,该数值符合典型的酶促反应动力学参数。因此,该方法是可靠的,也可作为通用策略用于表征其他蛋白酶。
方案
1. 质粒构建
- 通过 PCR 扩增基因的开放阅读框,并将 PCR 产物克隆至 PCRII-TOPO 载体中。
- 通过测序确认产物,并将编码 CyPet-(pre-SUMO1)-YPet、CyPet-SUMO1、YPet 以及 SENP1 催化结构域的 cDNA 克隆至 pET28 (b) 载体中,形成带有N端六聚组氨酸标签的重组质粒。
2. 蛋白质表达与纯化
- 转化 大肠杆菌 菌株的细胞 BL21 (DE3)与编码 CyPet-(pre-SUMO1)-YPet、CyPet-SUMO1、YPet 以及 SENP1 催化结构域的 pET28(b) 载体。
- 在2xYT培养基中于37°C培养转化后的细菌3小时 37 °C (以250 rpm振荡)至600 nm处的光密度达到0.5。
- 添加 100 μM 异丙基-β-D-硫代半乳糖苷(IPTG)(终浓度)以诱导蛋白表达,并于37 °C下振荡培养16小时 25 °C 200 rpm 条件下。
- 通过在 10,000 rpm 条件下离心收集细菌 4 °C 5分钟,然后将它们重悬于含有20 mM Tris-HCl(pH 7.4)、50 mM NaCl和5 mM 咪唑的缓冲液中。
- 使用 MiSonics 4,000 超声破碎仪,以 25 W 功率、5 秒脉冲间隔对细胞进行超声处理,总时长 10 分钟,随后在 35,000 x g 条件下离心收集细胞 4 °C 30分钟
- 为1 L培养液准备装有500 ml Ni-NTA凝胶的层析柱,并将上清液转移至柱中。
- 用含20 mM Tris-HCl(pH 7.4)、500 mM NaCl和10 mM咪唑的缓冲液洗涤树脂两次。
- 用含有 20 mM Tris-HCl(pH 7.4)、500 mM NaCl 和 500 mM 咪唑的缓冲液洗脱蛋白,随后透析至含有 20 mM Tris-HCl(pH 7.4)、50 mM NaCl 和 1 mM 二硫苏糖醇(DTT)的缓冲液中 4 °C 过夜。
- 通过 Bradford 法测定纯化蛋白的浓度。蛋白浓度测定的替代方法为 SDS-PAGE 凝胶电泳,随后用考马斯亮蓝染色并进行成像定量。
3. 定量FRET光谱分析
- 该检测的总体策略基于FRET信号(图1)。FRET荧光对CyPet和YPet分别标记在pre-SUMO1的N端和C端。SENP1在SUMO1的C端Gly-Gly位点切割融合蛋白CyPet-(pre-SUMO1)-YPet,从而释放带有YPet的SUMO尾部。FRET信号被破坏,导致在CyPet激发波长下CyPet的发射增强,而YPet的发射显著降低。
- 当以414 nm波长的光激发时,CyPet-(pre-SUMO1)-YPet在530 nm处的总荧光发射可来源于三个部分:FRET诱导的YPet发射、CyPet的直接发射以及YPet的直接发射(图2)。
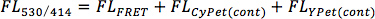
其中 FL530/414 表示在414 nm激发下530 nm处的总荧光发射,FLFRET 表示绝对FRET信号,FLCyPet(cont) 表示在414 nm激发下CyPet的直接发射,FLYPet (cont) 表示在414 nm激发下YPet的直接发射。(cont)下标表示贡献。
- 在414 nm激发下,CyPet在530 nm处的直接发射与其在475 nm处的发射成正比,比例常数为α。将CyPet-SUMO1配制成50、100、200、500、750 nM及1 mM的浓度,在414 nm激发后测定其在475 nm和530 nm处的发射值,以确定α(图3-1)。
- 在414 nm激发下,YPet在530 nm处的直接发射与其在475 nm激发下在530 nm处的发射成正比,比例常数为β。将YPet配制成50、100、200、500、750和1,000 nM的浓度,在414 nm和475 nm激发下测定样品在530 nm处的发射,以确定β(图3-2)。
- 当CyPet-(pre-SUMO1)-YPet被SENP1酶解时,切割反应释放出CyPet-SUMO1以及带有YPet的SUMO1尾部片段。当该化合物在414 nm激发时,530 nm处的荧光发射(FL'530/414)会降低,但仍可划分为三个部分:
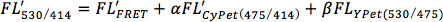
其中,FL'530/414 表示在 414 nm 激发下,消化后于 530 nm 处的总荧光发射强度,FL'FRET 表示剩余的绝对 FRET 信号,FL'CyPet(475/414) 表示在 414 nm 激发下,消化后于 475 nm 处的 CyPet 发射强度(此处 CyPet 发射来自两部分:未消化的 CyPet-(pre-SUMO1)-YPet 和已消化的 CyPet-SUMO1),而 FLYPet (530/475) 表示在 475 nm 激发下 YPet 的发射强度,该值在 CyPet-(pre-SUMO1)-YPet 是否被消化的情况下均保持不变。
- SENP1 消化后,剩余的 FRET 发射(FL'FRET)为:
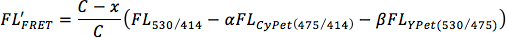
其中 C 为 CyPet-(pre-SUMO1)-YPet 的总浓度,x 为已消化的 CyPet-(pre-SUMO1)-YPet 的浓度。
- 通过组合所有组分,在414 nm激发下检测到的530 nm荧光发射(FL'530/414)为:

4. 基于FRET的蛋白酶活性检测用于酶动力学研究
- 将CyPet-(pre-SUMO1)-YPet与SENP1的催化结构域在37 °C下孵育,缓冲液为20 mM Tris-HCl(pH 7.4)、50 mM NaCl、0.1%(v/v)Tween-20和1 mM DTT,总体积为80 ml,随后转移至384孔板中。
- 在荧光多孔板读板仪中,于414 nm激发光下,每隔15秒检测475 nm和530 nm处的荧光发射,持续测定5分钟。
- 反应速率(v)与底物(S)量的变化关系如下:
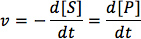
- 产物的浓度从0开始呈指数增长,随着[S]0 (原始底物浓度)时 t=0:
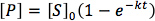
- 当 t=0 时,初始速度(V0)为:
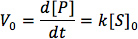
- 固定 SENP1 的浓度,逐步增加 CyPet-(pre-SUMO1)-YPet 的浓度,使其最高达到酶浓度的 100 倍,以满足米氏方程的要求。
- 所有荧光读数均采用定量 FRET 分析方法进行分析,并在 GraphPad Prism V 软件中作图以拟合米氏方程。也可借助更常见的软件(如电子表格程序 Microsoft Excel)进行非线性回归分析。
5. 典型结果
通过监测反应过程中475 nm和530 nm处荧光信号的变化,可以确定SENP1对pre-SUMO1的成熟加工能力。图4显示,SENP1对pre-SUMO1的消化速率随底物浓度增加而升高,呈底物剂量依赖性。这表明SENP1的催化结构域对pre-SUMO1的成熟具有优异的催化活性。通过上述分析,计算了不同底物浓度下的初始反应速率(表1)。
kcat/KM 比值通常用于比较不同酶对同一底物,或同一酶对不同底物的催化效率。KM 和 Vmax 可通过米氏方程,利用不同浓度的 CyPet-(pre-SUMO1)-YPet 所对应的多个初始反应速率求得(图5)。kcat 的计算方法如下:

根据上述分析,计算得到的 KM 为 0.21 ± 0.04 μM,kcat 为 6.90 ± 0.28 s-1,kcat/KM 比值为 (3.2 ± 0.55) × 107 M-1s-1。
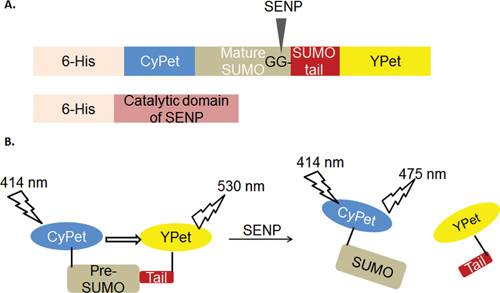
图1. 基于FRET的蛋白酶检测法用于SENP介导的前体SUMO成熟过程的图示。
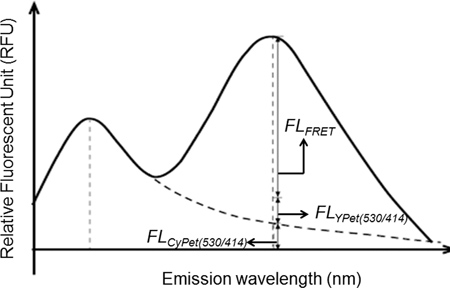
图2. 荧光信号的定量分析,分别来自供体、受体及FRET的贡献。在414 nm激发下,对CyPet-(pre-SUMO1)-YPet的发射光谱进行分解。FLCyPet(530/414) 表示在414 nm激发下CyPet在530 nm处的发射,FLFRET表示在414 nm激发下由FRET引起的YPet在530 nm处的发射,而FLYPet(530/414)表示在414 nm激发下YPet在530 nm处的发射。
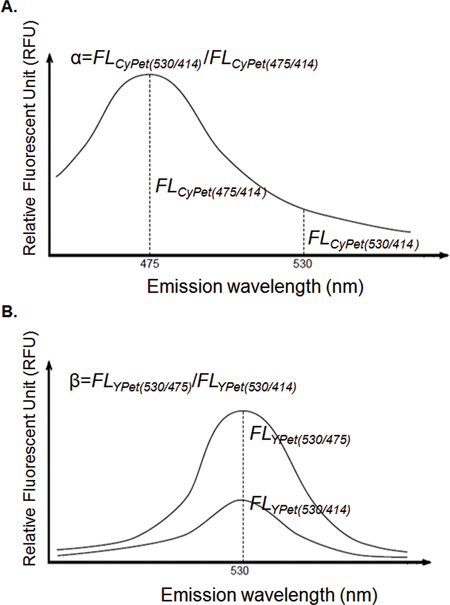
图3. 方向发射因子 α 和 β 的计算。
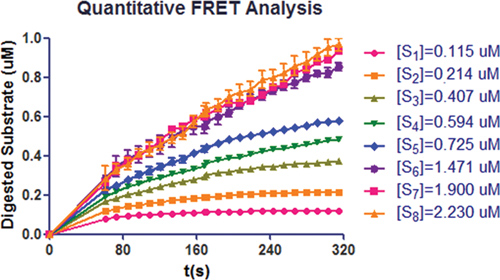
图 4. 不同比例SENP1催化域消化CyPet-(pre-SUMO1)-YPet的定量分析。反应在前5分钟内进行监测。
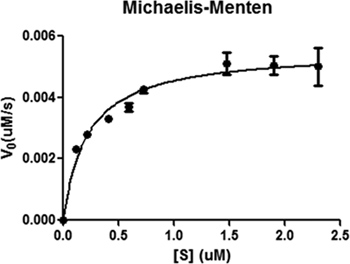
图 5. SENP1 消化 CyPet-(pre-SUMO1)-YPet 的米氏动力学图解分析。数据采用 GraphPad Prism V 软件绘图并进行非线性回归分析。
| [S](μM) | V0(μM/s) |
| 0.115 | 0.0023±0.00005 |
| 0.214 | 0.0028±0.00004 |
| 0.407 | 0.0033±0.00007 |
| 0.594 | 0.0037±0.00013 |
| 0.725 | 0.0043±0.00012 |
| 1.471 | 0.0051±0.00036 |
| 1.899 | 0.0050±0.00031 |
| 2.300 | 0.0050±0.00062 |
表1. SENP1 对 pre-SUMO1 成熟化初始反应速率的测定。在每种底物浓度下,使用四个样品测量酶解反应,标准偏差来源于这四个样品的变异。
| KM(μM) | kcat(s-1) | kcat/kM(M-1•s-1) |
| 0.21±0.04 | 6.90±0.28 | 3.2±0.55×10⁷ |
表2. 通过定量FRET分析测定SENP1对前体SUMO1成熟过程的动力学参数。标准差来源于每个底物浓度下的四个样本。
访问受限。请登录或开始试用以查看此内容。
讨论
FRET 技术已被用于研究 SENP1 对 pre-SUMO1 成熟过程的作用9。实验中采用 CFP-YFP 作为 FRET 荧光对,并通过比率分析法(即受体与供体发射光强度的比值)来表征其动力学特性。然而,传统的比率 FRET 分析未考虑供体和受体的自体荧光问题,因此该比值并不能直接反映底物消化量。
本文报道了一种新开发的高灵敏度基于FRET的蛋白酶检测方法,用于研究SENP1对前体SUMO1成熟过程的动力学。与以往的比率法相比,我们从理论上对FRET信号在动力学分析中的应用进行了根本性改进,并建立了实验流程,通过定量分析供体和受体的自荧光以及真实的FRET诱导的受体发射,来准确获取动力学参数。传统的比率分析法无法实现这一点。忽略供体和受体的自荧光发射会导致对FRET信号及供体发射的高估。这种高估对最终的kcat/KM比值影响可能不大(比率法分析结果为3.81 × 107 M−1s−1,而本定量FRET分析为3.2 × 10
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何利益冲突。
致谢
我们非常感谢 Victor G.J. Rodgers 提供的宝贵建议。感谢廖组所有成员的密切合作以及对本研究的帮助。本研究由美国国立卫生研究院资助(J.L. 获资助号 AI076504)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| PCR II TOPO 试剂盒 | Invitrogen | K466040 | |
| 2xYT | Research Products International Corp. | X15600 | |
| Ni-NTA Agarose | Thermo Scientific | 88222 | |
| Coomassie Plus(Bradford)测定试剂 | Thermo Scientific | 23238 | |
| 384 孔板(玻璃底) | Greiner | 781892 | |
| FlexStation II 384 孔板读板仪 | Molecular Devices |
参考文献
- Johnson, E. S. Protein modification By SUMO. Annual Review of Biochemistry. 73, 355-382 (2004).
- Gill, G. SUMO and ubiquitin in the nucleus: different functions, similar mechanisms. Genes & Development. 18, 2046-2059 (2004).
- Hay, R. T. SUMO: a history of modification. Molecular Cell. 18, 1-12 (2005).
- Müller, S., Hoege, C., Pyrowolakis, G., Jentsch, S. SUMO, ubiquitin's mysterious cousin. Nature. , 202-210 (2001).
- Hochstrasser, M. SP-RING for SUMO: new functions bloom for a ubiquitin-like protein. Cell. , 5-8 (2001).
- Drag, M., Salvesen, G. S. DeSUMOylating enzymes-SENPs. IUBMB Life. 60, 734-742 (2008).
- Mukhopadhyay, D., Dasso, M. Modification in reverse: the SUMO proteases. Trends in Biochemical Sciences. 32, 286-295 (2007).
- Reverter, D., Lima, C. D. Structural basis for SENP2 protease interactions with SUMO precursors and conjugated substrates. Nature Structural & Molecular Biology. 13, 1060-1068 (2006).
- Shen, L., et al. SUMO protease SENP1 induces isomerization of the scissile peptide bond. Nature Structural & Molecular Biology. 13, 1069-1077 (2006).
- Horton, R., Strachan, E., Vogel, K., Riddle, S. A substrate for deubiquitinating enzymes based on time-resolved fluorescence resonance energy transfer between terbium and yellow fluorescent protein. Analytical Biochemistry. 360, 138-143 (2007).
- Mikolajczyk, J., et al. Small Ubiquitin-related Modifier (SUMO)-specific Proteases: PROFILING THE SPECIFICITIES AND ACTIVITIES OF HUMAN SENPs. Journal of Biological Chemistry. 282, 26217-26224 (2007).
- Kolli, N., Mikolajczyk, J., Drag, M., Mukhopadhyay, D., Moffatt, N., Dasso, M., Salvesen, G., Wilkinson, K. D. Distrubition and paralogue specificity of mammalian deSUMOylating enzymes. Biochem. J. , 335-344 (2010).
- Drag, M., Mikolajczyk, J., Krishnakumar, I. M., Huang, Z., Salvesen, G. S. Activity profiling of human deSUMOylating enzymes (SENPs) with synthetic substrates suggests an unexpected specificity of two newly characterized members of the family. Biochemical Journal. 409, 461(2008).
- Engels, I. H., et al. A time-resolved fluorescence resonance energy transfer-based assay for DEN1 peptidase activity. Analytical Biochemistry. 390, 85-87 (2009).
- Martin, S., Hattersley, N., Samuel, I., Hay, R., Tatham, M. A fluorescence-resonance-energy-transfer-based protease activity assay and its use to monitor paralog-specific small ubiquitin-like modifier processing. Analytical Biochemistry. 363, 83-90 (2007).
- Nguyen, A. W., Daugherty, P. S. Evolutionary optimization of fluorescent proteins for intracellular FRET. Nature Biotechnology. 23, 355-360 (2005).
访问受限。请登录或开始试用以查看此内容。
重印与许可
