细胞内 Ca2+ 动态变化在精子生理学中具有重要意义,而 Ca2+ 敏感染料则为研究这些变化提供了多功能工具。通过群体实验(荧光测定法和停流荧光测定法)和单细胞实验(流式细胞术和单细胞成像),可用于追踪人精子细胞中时空性的 [Ca2+] 变化。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
精子是雄性生殖细胞,其结构特别适应于到达、识别并融合卵子。为了完成这些任务,精子细胞必须能够应对持续变化的环境,并克服多种物理屏障。由于精子在本质上无转录和翻译活性,这些运动细胞高度依赖多种信号转导机制,以实现定向移动,并在寻找卵子的旅程中应对严苛的环境条件。其中,Ca2+介导的信号通路对多种精子功能至关重要:包括运动能力的激活、获能(使精子为顶体反应做好准备的复杂过程)以及顶体反应(一种促进精子-卵子融合的胞吐事件)。利用荧光染料追踪细胞内该离子浓度变化具有重要意义,因其操作简便、灵敏度高且检测方式多样。通过一种统一的染料负载方案,我们采用四种不同的荧光测定技术来监测精子内Ca2+动态变化。每种技术提供独特信息,可实现空间和/或时间分辨率,从而在单细胞水平及细胞群体水平上获取数据。
引言
Ca2+ 是真核细胞信号转导通路中一种通用的第二信使。细胞内 Ca2+ (Ca2+i) 参与调控可兴奋细胞和非可兴奋细胞中多种基本的生理过程。Ca²⁺2+ 作为信号转导事件中的第二信使,其在细胞内信息传递中具有时空多效性。尽管 Ca2+ 无法合成 从头合成 或在细胞内降解,其细胞内浓度([Ca2+]i通过多种细胞机制,Ca²⁺的浓度被维持在极为严格的范围内,这些机制持续地对钙离子进行缓冲、螯合、区隔化和/或积累2+细胞内该离子浓度的变化可能发生在高度局部化的区域 1,解析这些波动对于深入理解(1)其在信号传导机制中的作用,(2)其生理学意义,以及(3)细胞信号传导的普遍机制至关重要。Ca2+介导的信号转导在精子生理学中具有特别重要的意义 2精子活力是决定受精成功最重要的功能之一,事实上,多种精子活力缺陷可导致不育。 3-5钙的重要性2+ 在鞭毛运动中的作用早已被认识 6;然而,Ca如何发挥其作用的机制2+ 鞭毛弯曲特定形态的调控机制尚未完全阐明。
在与卵子融合之前,精子必须经历获能过程,这是一种依赖于精子在雌性生殖道内停留的复杂过程。在获能过程中,精子细胞膜的脂质结构和组织发生改变,主要表现为质膜中胆固醇的移除。此外,多种蛋白质发生酪氨酸磷酸化7。重要的是,在获能期间,细胞内pH值(pHi)和[Ca2+]i浓度升高,且在某些物种中膜电位发生超极化2。获能仅发生在部分精子群体(20–40%)中,而介导这些细胞变化的具体机制仍不明确。普遍认为,只有获能精子中的一个亚群在接触生理性诱导因子时才会发生顶体反应(AR)。顶体反应是一种由Ca2+调控的事件,在所有具有顶体(一种具有内外两层膜的特化细胞器)的物种中均为受精所必需。在此过程中,顶体外膜与精子质膜融合,释放水解酶,使精子能够穿透包裹卵子的糖蛋白基质(即透明带,ZP)。顶体反应还暴露出新的具有融合能力的精子表面,该表面与卵细胞质膜相互作用,最终实现两性配子的融合。目前已知有多种细胞配体可诱导顶体反应,其中孕酮是研究最为广泛的配体之一。
在本研究中,我们介绍了四种涉及使用Ca2+-敏感的荧光染料来检测[Ca2+]i 黄体酮引发的人类精子变化(流式细胞术除外,在该实验中我们检测了[Ca2+]i 增加在诱导期间发生的 体外 获能过程)。在本实验中,我们使用了Fluo-3 AM(Life Technologies,美国纽约州格兰岛),一种具有Kd = 325 nM 体外 我们采用其中三种方法监测了荧光随时间的变化,而第四种技术则用于测量某一特定时间点的荧光值。这些不同的方法相互补充,共同在单细胞和细胞群体水平上提供了空间和时间分辨率。
细胞群体或整体实验
大量细胞的技术被广泛使用,不仅因为所需仪器易于获得,而且因为这些技术操作简单、成熟可靠,能够在单次实验中对数百万个细胞的测量结果进行信息平均。
技术 #1. 传统荧光光度法
该技术通过监测荧光随时间的变化来进行分析;实验在玻璃比色皿中进行,样品体积范围为 200 至 1,000 μl。添加试剂后需通过磁力搅拌实现充分混匀,因此时间分辨率通常在秒级。所分析样品的典型细胞浓度范围为 105-108 个细胞/ml。
技术 #2. 停流荧光测定法
该技术同样监测荧光随时间的变化,但试剂通过压力迅速混合,进入含有极小样品体积(25–100 μl)的记录比色皿中。因此,试剂的均一化混合是瞬时完成的,从而实现毫秒级的高时间分辨率。对所得荧光-时间曲线的分析适用于确定反应速率、阐明反应机理的复杂性、获取短寿命反应中间体的信息等。所分析样品的常见细胞浓度范围为 105–107 个细胞/ml。
单细胞实验
群体实验反映的是大量细胞的平均行为;然而,细胞群体常常表现出异质性特征,而这类测量方法往往会忽略这些特性。因此,单细胞技术被用于补充从细胞群体实验中获得的信息。
技术 #3. 流式细胞术
尽管单细胞测量所提供的信息具有重要意义,但仍需分析大量细胞,以避免将特定细胞的属性错误地外推至整个群体。因此,人们更倾向于采用高通量技术,其中最常用的方法是流式细胞术,通常每种实验条件需分析 10,000 个细胞。该方法可对异质性细胞群体进行多参数分析,通过细胞大小(前向散射(FSC))、颗粒度(侧向散射(SSC))以及荧光强度(使用抗体、活率标记物等的特异性标记)对细胞进行分类,从而提供细胞群体中各参数分布的信息。流式细胞术提供的是即时信息,而非依赖时间变化的数据8。前向散射和侧向散射值还可用于设定门控,以包含细胞并排除细胞碎片、灰尘等杂质。进行荧光检测时,必须设置阴性和阳性荧光对照。若使用多个荧光通道,则需进行称为“补偿”的校正步骤(详细信息请参见 http://www.bdbiosciences.com/resources/protocols/setting_compensation.jsp)。补偿可消除不同荧光染料之间的光谱重叠。流式细胞术还可用于区分死细胞,通常通过碘化丙啶染色实现。
技术 #4. 单细胞成像
显微镜技术是研究单细胞行为的另一种常用方法;该方法非常适合时间依赖性研究,并且能够提供空间分辨率。主要缺点是目前高通量分析仍处于起步阶段9。
访问受限。请登录或开始试用以查看此内容。
方案
本文报道了使用上述四种技术来检测人精子细胞内[Ca2+]i的变化。我们采用孕酮诱导Ca2+反应,因为已有充分证据表明,这种类固醇激素可引起精子细胞内[Ca2+]i出现短暂性升高。特别是在人精子中,孕酮可直接激活一种仅表达于精子细胞质膜上的Ca2+通道(即CatSper)10,11。此外,鉴于在精子获能过程中[Ca2+]i升高已被广泛认可,我们还测定了精子获能前后静息状态下的[Ca2+]i水平。对于需要设置阳性对照的技术,我们使用Ca2+离子载体——离子霉素(ionomycin)——以诱导细胞最大程度地摄取Ca2+,从而获得最大荧光信号;为获得最小荧光值,我们则使用Mn2+来淬灭荧光。
1. 精子样本的上游法制备(见图1)
仅使用符合世界卫生组织最新版《人类精液检查与处理实验室手册》所规定参数的射出精液样本(通过手淫方式获取),该手册可从以下网址获取:http://whqlibdoc.who.int/publications/2010/9789241547789_eng.pdf。
- 在无菌容器中获取精液样本,并将容器(盖子稍松开)置于 37 °C、含 CO 的培养箱中2 5%二氧化碳/95%空气,持续30分钟。此步骤用于样本液化。
- 将500 μl液化精液样本分装至洁净的玻璃试管(1.0 × 7.5 cm)底部。对于平均体积样本(4 ml),约需八支试管。
- 小心地加入1 ml Ham's F-10培养基(补充2 mM CaCl₂)2 以及5 mg/ml牛血清白蛋白以促进获能 体外) 加于每份精液等分试样之上(参见 图1). 提示: 用微量移液器的吸头轻触离心管壁,将培养基缓慢加入样本上方。此步骤必须缓慢操作,以避免样本层与培养基层混合。
- 将试管小心倾斜至约30°角。此举可增加两种液体之间的接触表面积,从而在孵育过程中促进人细胞从样本向培养基的迁移(上浮法)。
- 将倾斜的一组试管放入37 °C、含CO的培养箱中2 5% CO₂/95% 空气中孵育1小时。
- 使用微量移液器小心地从每支试管中移除上层 700 μl 的 HAM's F-10 培养基(现含有活动精子),并将所有收集的样品汇集至一支洁净的玻璃试管(1.0 × 7.5 cm;若体积较大,可使用 15 ml Falcon 管)中,注意避免产生气泡。取 10 μl 混合样品置于 Makler 计数板的光学平面上,随后盖上盖玻片(盖上后切勿再次揭开或重复覆盖,以确保精子样品均匀分布)。注意避免计数室内产生气泡,否则将导致细胞计数不准确。
- 在显微镜下观察(建议使用20倍物镜)。Makler计数板的盖玻片上有一个大方格,由100个小方格组成。即 一个10×10的方格)。计数任意一条由10个方格组成的区域中的细胞数量。该数值代表细胞浓度,单位为百万个细胞/ml。再对另外两条各含10个方格的区域进行细胞计数,取三次计数结果的平均值。 注意: 如果无法获得专用于精子计数的Makler计数板,也可使用任何血细胞计数板。
- 将样品的终浓度调整至1x10⁷ 细胞/ml,置于添加物的Ham's F-10培养基中。必要时,将样品在37 °C及CO₂条件下孵育。2 在5% CO₂/95%空气环境中孵育5小时,以促进获能。
2. 用于 Ca2+ 测量的荧光染料负载
目前有多种荧光染料可用于检测细胞内 Ca2+ 浓度;应根据其解离常数(Kd)以及发射和激发波长来选择合适的染料(进行定性测定时使用单一发射和激发波长,而定量测定时则需使用双发射和双激发波长)(更多信息请访问 http://es-mx.invitrogen.com/search/global/searchAction.action?query=ion+indicators&resultPage=1&resultsPerPage=15)。在本研究的定性应用中,我们使用了 Fluo-3 AM,这是一种可穿透细胞膜的染料,其 Kd = 325 nM,激发波长和发射波长分别为 506 nm 和 526 nm12。
- 将一支50 μg染料小瓶(分子量 = 1130 g/mol)中的内容物溶于44 μl无水DMSO中,配制50 μl浓度为1 mM的Fluo-3 AM储备液。
- 使用1.5 ml 微离心管,将所需体积的精子悬液(见下文各具体技术所需的用量)与适量的1 mM Fluo-3 AM 储存液混合,使Fluo-3 AM的终浓度为2 μM(即 每500 μl精子悬液加入1 μl储备液Fluo-3 AM。
- 37 °C 避光孵育 30 分钟。
- 使用微量离心机以 750 × g 离心 5 分钟,吸除并弃去上清液,将沉淀物重悬于适当体积的人类精子培养基(HSM;mM:120 NaCl,15 NaHCO₃)中(具体每种技术所需的浓度见下文)。3,4 KCl,1.8 CaCl2,1 MgCl2,10 HEPES,10 Na乳酸盐,5 D-葡萄糖,1 Na丙酮酸盐,pH = 7.4。 注意: 形成云雾状沉淀而非颗粒状沉淀表明细胞状态良好。
- 细胞现已加载染料;在37 °C、避光条件下可保持活性约两小时,可用于以下任一技术。
3. 技术一:常规荧光测定法(来自大量细胞群体的平均信息)
仪器:在进行精子群体细胞内[Ca2+]i浓度测定时,我们使用由Olis软件(美国佐治亚州博加特)控制的SLM Aminco荧光分光光度计,配备磁力搅拌控制器(SIM Aminco),并耦合一个蓝色LED(Luxeon Star LXHL-LB3C,LUMILEDS公司)以及一个用于Fluo-3 AM激发的465–505 nm带通滤光片(Chroma Technology Corp.)。LED由定制电源(700 mA)控制。发射光通过将荧光分光光度计的单色器设定在525 nm发射波长(λEm)处进行检测。
- 在平底玻璃管(内径 8 × 50 mm)中加入 570 μl HSM 和 30 μl 精子细胞悬液(先前已加载 Fluo-3 AM,并重悬于 HSM 中以获得 1×10⁸ 个细胞/ml)。将磁力搅拌子放入管内,然后将玻璃管插入预热至 37 °C 的荧光分光光度计检测室中,在整个数据采集期间持续搅拌样品。
- 使用仪器配套软件(本实验中为 Olis 软件)开始实验,以 0.5 Hz 的频率连续采集 300 秒的荧光值。通过 Hamilton 微量注射器将适当体积的储备液(通常为所需终浓度的 100 倍)注入样品中,以施加待测化合物,具体步骤如下:
- 采集前 30 秒的基础荧光值。
- 加入 4 μM 孕酮(Pg)。
- 在第 100 秒时加入 20 μM 离子霉素(作为阳性对照,以获得最大荧光值)。
- 重复上述步骤 3.1 至 3.2.3 进行阴性对照实验,但用溶解孕酮所用的溶剂(含 0.01% 无水 DMSO 的 HSM)代替 Pg。
- 将原始荧光强度值导出至 Microsoft Excel,并使用以下公式进行归一化处理:(F/F0) - 1。其中 F 表示在任意时间点(t)测得的荧光强度,F0 表示初始 30 秒内的平均基础荧光强度。绘制整个 (F/F0) - 1 值随时间变化的曲线图(图 2A)。测量加入待测化合物前后荧光强度的变化值(ΔF),将其以柱状图形式表示,并采用适当的统计分析方法处理数据(图 2B)。
4. 技术 #2. 停流荧光测定法(来自大量细胞群体的高时间分辨率信息)
仪器:使用 BioLogic 科学仪器公司(法国格勒诺布尔)的 SFM-20 停流混合仪与 MOS-200 快速动力学光学系统联用,以高时间分辨率测量细胞内 [Ca2+] 变化。所有数据均使用同一家公司提供的 Bio-Kine32 软件进行分析。
- 设置仪器的适当参数;实验开始前至少15分钟打开光源;调节激发和发射滤光片,将光电倍增管的电压调整至停流装置制造商规定的范围内,并将浴槽温度设定为37 °C。
- 用1毫升Fluo-3 AM负载的精子细胞(1×10⁶)填充仪器的一个注射器7 细胞/ml),第二个注射器中加入1 ml待测化合物,分别为HSM(阴性对照)、10 μM离子霉素(阳性对照)或溶于HSM的10 μM Pg。 注意: 此步骤中,将液体吸入注射器时必须避免产生气泡。
- 将两个仪器活塞抬起,直至接触注射器推杆的顶端。
- 将流速设置为能够产生可测量响应的最小值,以尽量减少细胞损伤。我们在SFM-20系统中使用的流速为1 ml/sec。 13.
- 设置频率(此处为 10 msec)和总采样时间(此处为 50 sec)。
- 启动试剂混合。 注意: 虽然可以手动逐次触发单个信号,但也可预先编程设置一系列自动连续触发。
- 计算机屏幕上显示了原始荧光信号(任意单位)随时间变化的曲线。
- 试剂的混合 本身 将生成一条非直线的轨迹。因此,为了获得真实的[Ca2+] 由刺激引起的信号变化,必须从每个实验组曲线中减去细胞与培养基混合所得的对照曲线(阴性对照)。根据需要分析数据;部分动力学参数也可通过 Bio-Kine32 采集软件获得。未减去对照的原始曲线见补充文件 图1 用于比较。
- 用蒸馏水彻底清洗测试化合物注射器以更换试剂。然后将注射器充满蒸馏水至最大刻度,将其安装到停流荧光仪对应的活塞上,并推动水流经仪器内部管路(冲洗液必须排入废液容器)。重复此步骤两次。
- 重复步骤 4.2 至 4.9,用下一个所需测试化合物填充第二个注射器。
- 实验结束时,用蒸馏水冲洗整个设备,并将内部软管中的水完全排干。
5. 技术三:流式细胞术(从大量细胞中获取单细胞信息)
设备:该技术能够在同一时间点同时测量多个参数,但与之前的技术不同,它不测量随时间的变化;而是提供测量时刻的参数值。因此,本实验并未通过添加Pg来触发反应,而是在诱导精子获能前后,分别测量了精子细胞内的Ca2+水平。我们使用了FACSCanto流式细胞仪(Becton Dickinson),数据通过FlowJo软件(Tree Star 9.3.3)进行分析。
- 在流式管中准备实验样品,每管加入 500 μl 细胞悬液(4×10⁶ 个细胞/ml),分别对应待测的各个实验条件(本实验中共设十种条件;见表 1)。每份样品采集 10,000 个事件的荧光数据。
- 使用仪器配套软件设置实验,具体步骤如下:
- 新建文件夹、实验项目、样本名称及所需流式管数量。
- 选择适用于 Fluo-3 AM 的流式细胞仪参数设置(使用 FITC — 异硫氰酸荧光素 — 滤光片)和 PI 的参数设置(使用 PI — 碘化丙啶 — 滤光片)。
- 在流式细胞仪上运行未染色对照管 1 和 2,采集前向散射光(FSC)和侧向散射光(SSC)数据,以确认阈值设置合适,并建立相应门控,用于区分细胞与碎片。
- 为进行补偿调节,运行以下对照样品,采集自发荧光及最大荧光信号数据(PI 和 FITC 通道)(注意:此步骤通常由仪器技术人员完成):
- 未染色细胞(管 1 和 2)。
- 负载 Fluo-3 AM(2 μM)的细胞(管 3 和 4)。
- 死亡细胞(将精子悬浮于含 0.1% Triton X-100 的 HSM 溶液中,室温处理 10 分钟),再用 PI(1.2 μM PI;即向 500 μl 精子悬液中加入 0.25 μl 的 2.4 mM PI 溶液)染色 30 分钟,37 °C 避光孵育(管 5 和 6)。- 查看已记录的数据,选择目标细胞群的门控区域。
- 调整门控范围,并选择“应用”至所有补偿对照样本。
- 选择实验 > 补偿设置 > 计算补偿。
- 重命名补偿设置并进行关联与保存。
- 运行所有实验组样品(本实验中为管 7–10)。实验结束后,将全部数据导出至可用于分析的软件中(见步骤 5.6)。
- 使用仪器配套软件、商业软件 FlowJo 或免费软件 Cytobank(http://www.cytobank.org/)分析各实验结果。
6. 技术 #4. 单细胞成像(具有高空间分辨率的单细胞信息)
设备:自行搭建的成像系统。我们的成像系统由一台配备温度控制器(Medical System Corp.,Greenvale,纽约州)的尼康Diaphot 300倒置显微镜和尼康PlanApo 60X(1.4 NA油浸)物镜组成。荧光照明由一颗Luxeon V Star Lambertian Cyan LED(型号# LXHL-LE5C,Lumileds Lighting LLC,圣何塞,加利福尼亚州)提供,该LED连接至一个自行设计的脉冲控制盒。LED被安装在FlashCube40组件中,并配有二向色镜M40-DC400(Rapp Opto Electronic,汉堡,德国)(波段范围:激发光450–490 nm,二向色镜505 nm,发射光520–560 nm)。通过控制盒将LED输出与Cool Snap CCD相机的Exposure Out信号同步,使每次单独曝光时产生一次持续2毫秒的闪光。相机曝光时间设定为与闪光持续时间相等(2毫秒)。使用IQ软件(Andor Bioimaging,威尔明顿,北卡罗来纳州)每250毫秒采集一次图像(也可根据所需的时间分辨率进行调整)。
- 在圆形盖玻片(直径 = 25 mm)中央滴加 5 μl 多聚赖氨酸溶液(0.01 % w/v),静置至少 1 小时(可干燥)。使用喷瓶在使用前用清水冲洗处理区域。此步骤可使精子细胞头部牢固附着于盖玻片,同时其鞭毛仍能自由运动。
- 根据 表 2 将待测化合物溶解于 HSM 中进行配制。将化合物依次加入同一记录室中,确保每次加入的体积相同,并根据其与记录室中已有液体混合时的稀释倍数调整母液浓度(如 表 2 所示)。所有测试溶液在使用前均置于 37 °C 水浴中保温。
- 将盖玻片安装至记录室中,在中央加入 10 μl Fluo-3 AM 负载的细胞(1 × 10⁷ 个细胞/ml),再覆盖 200 μl 预热的 HSM。
- 将记录室置于已预热至 37 °C 的显微镜载物台上,用相差显微镜观察细胞,并选择成像区域。应选择细胞密度适宜的区域(见 图 5A);细胞密度过高会导致信号重叠,增加分析难度。注意:细胞应通过头部牢固附着于盖玻片,同时表现出鞭毛运动,以确认其活性。
- 以实时模式采集荧光图像,调节焦距和亮度。
- 启动时间序列图像采集软件(本实验使用 IQ 软件)开始实验。通常每秒采集 4 幅图像,每幅图像的照明时间为 2 毫秒。
- 使用微量移液器小心地逐滴加入待测化合物(本实验为 Pg),按需继续图像采集,并在同一记录室中依次进行两次对照添加:(1)20 μM 离子霉素以获得最大荧光信号;(2)5 mM MnCl2 以获得最小荧光信号。也可选择使用灌流室加药,其优点在于可去除刺激物,并使化合物均匀作用于细胞;但缺点是需要较多溶液,且温度控制更为困难。
- 每次更换不同待测化合物时,均需在新的记录室中重复图像采集。
- 可使用设备配套软件在线进行图像分析,或使用 IQ 软件或 Image J 免费软件离线分析。围绕每个细胞(或细胞部分)绘制感兴趣区域(ROIs),并选择一个无细胞区域(用于软件自动背景扣除)。随后可获得每个 ROI 的时间-荧光强度曲线,数据可导出至 Microsoft Excel 进一步分析。我们使用以下公式对荧光强度进行归一化处理:(F/F0) - 1,其中 F 为任意时间点(t)测得的荧光强度,F0 为初始 30 秒内的平均荧光强度。绘制 (F/F0) - 1 随时间变化的曲线图(图 5B)。也可将加入离子霉素后的荧光值设为 100%,对数据进行归一化处理。
- 图像分析也可使用 Image J 免费软件完成。
技术 #1. 传统荧光光度法
孕酮是已知的顶体反应诱导剂之一,与预期一致,它确实会引发人类精子细胞内瞬时的[Ca2+]i升高(见图2)。加入钙离子载体(离子霉素)可引起[Ca2+]i的最大幅度升高,且该水平无法恢复至基础状态。
技术 #2. 停流荧光光谱法
黄体酮诱导的[Ca2+]i 增加幅度的测量方法与之前相同(常规荧光测定法),但此次具有更高的时间分辨率;此处采集频率为 0.1 Hz。如图所示 图3,孕酮(短暂,红线)和离子霉素(持续,蓝线)均引起非常快速的[Ca2+]i 增加。黄体酮诱导的[Ca2+]i 增加与先前报道一致,提示孕酮可直接激活 Ca2+ 通道CatSper,无需中间信号传导 10,14.
技术 #3. 流式细胞术
[Ca2+]i 在已获能和未获能的人类精子中测定了该指标。此前在小鼠中已有相关报道 15,牛精子 16 和人类精子 17,我们也观察到 [Ca2+]i 与非获能人精子相比,在获能人精子中。Baldi, 等 (1991) 17 报道了更高的基础[Ca2+]i 在获能与非获能人精子中的水平,采用常规荧光光度法进行检测。在本研究中,我们使用流式细胞术来测定 [Ca2+]i 之前和之后 体外 获能。流式细胞术使我们能够观察到获能精子荧光值的分布情况(图4D,蓝色轨迹)相较于未获能精子向更高值偏移图4D,红色轨迹)。每个细胞的荧光值可在所示的二维点图中观察到 图 4G;重要的是,来自死细胞(约15%)的信号可以被消除(图 4G,上象限。
技术 #4. 单细胞成像
黄体酮诱导的[Ca2+]i 单个精子细胞中检测到的变化。添加孕酮会引起[Ca2+]i 精子头部和鞭毛中均存在。群体实验观察显示,单细胞分析揭示了孕酮引起短暂性升高,而离子霉素则引起持续性升高。
访问受限。请登录或开始试用以查看此内容。
结果
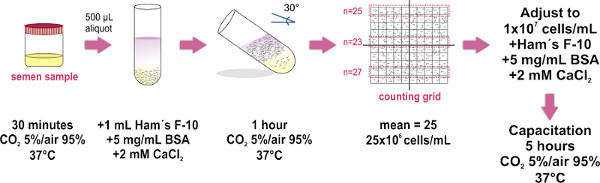
图1. 采用上游法进行精子样本制备的实验方案示意图。 图中展示了分离活动精子及调整其浓度的主要步骤。仅在需要进行获能处理时,才执行最后的孵育步骤。
访问受限。请登录或开始试用以查看此内容。
讨论
细胞内信号转导对大多数细胞活动至关重要;Ca2+ 是一种普遍存在的信使分子,伴随哺乳动物细胞从受精时的起源直至生命周期结束。针对不同刺激,[Ca2+]i 升高、振荡并降低,具有时空编码特性;相应地,Ca²⁺ 激活、调节或终止多种生理过程2+编码的信息。细胞内Ca2+ 动力学在精子生理学中极为重要,因为该离子参与了信号转导过程的复杂协调。关于此类Ca2+ 波动有助于解析Ca的分子身份2+ 通道及其在不同信号级联中的特定作用。Ca2+-敏感型荧光染料是研究它们的有力工具,可实现高特异性和高灵敏度的Ca2+ 可用于追踪活细胞内浓度变化的测量方法。本文采用细胞群体实验(常规和停流荧光测定法)和单细胞实验(流式细胞术和单细胞成像)来监测时空[Ca2+] 孕酮刺激下人精子细胞的变化,或评估Ca2+ 干预前后的静息水平 体外 获能
传统的荧光测定法是一种广泛应...
访问受限。请登录或开始试用以查看此内容。
披露
我们没有需要披露的内容。
致谢
作者感谢 Jose Luis De la Vega、Erika Melchy 和 Takuya Nishigaki 博士提供的技术协助。本工作由墨西哥国家科学技术理事会(CONACyT-Mexico)(项目号 99333 和 128566,授予 CT)以及墨西哥国立自治大学学术人事总办公室(Dirección General de Asuntos del Personal Académico/Universidad Nacional Autónoma de México)(项目号 IN202212-3,授予 CT)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Ham's F-10 | Sigma-Aldrich | N-6013 | |
| 牛血清白蛋白 | Sigma-Aldrich | A-7906 | |
| 二水氯化钙,纯度约 99% | Sigma-Aldrich | C-3881 | |
| Makler 计数板 | SEFI Medical Instruments LTD | SEF-MAKL | |
| Fluo-3 AM | Invitrogen | F-1242 | 20 小瓶,每瓶 50 μg |
| 离子霉素 | Alomone | I-700 | |
| 孕酮 | Sigma-Aldrich | P0130 | |
| 氯化钠 | Sigma-Aldrich | S-9888 | 人精子培养基(HSM)试剂 |
| 氯化钾 | Sigma-Aldrich | P-3911 | 人精子培养基(HSM)试剂 |
| 碳酸氢钠 | JT Baker | 3506 | 人精子培养基(HSM)试剂 |
| 氯化镁 | Sigma-Aldrich | M-2670 | 人精子培养基(HSM)试剂 |
| 无水氯化钙 | Sigma-Aldrich | C-1016 | 人精子培养基(HSM)试剂 |
| HEPES | Sigma-Aldrich | H-3125 | 人精子培养基(HSM)试剂 |
| D-葡萄糖 | JT Baker | 1906-01 | 人精子培养基(HSM)试剂 |
| 丙酮酸钠 | Sigma-Aldrich | P-2256 | 人精子培养基(HSM)试剂 |
| L-乳酸钠(纯度约 99%) | Sigma-Aldrich | L- 7022 | 人精子培养基(HSM)试剂 |
| 碘化丙啶 | Invitrogen | L-7011 | 组分 B |
| 曲拉通 X-100(t-辛基苯氧基聚乙氧基乙醇) | Sigma-Aldrich | X-100 | 水中 2.4 mM 溶液 |
| 圆形盖玻片 | VWR | 48380 080 | 直径 25 mm |
| 聚-L-赖氨酸溶液 | Sigma-Aldrich | P8920 | |
| 氯化锰 | Sigma-Aldrich | M-3634 | |
| Attofluor 显微镜细胞培养腔室 | Life technologies | A-7816 | |
| 二甲基亚砜 | Sigma-Aldrich | D2650 | 5×5 ml |
参考文献
- Bouschet, T., Henley, J. M. Calcium as an extracellular signalling molecule: perspectives on the Calcium Sensing Receptor in the brain. Comptes Rendus Biologies. 328, 691-700 (2005).
- Darszon, A., Nishigaki, T., Beltran, C., Trevino, C. L. Calcium channels in the development, maturation, and function of spermatozoa. Physiol. Rev. 91, 1305-1355 (2011).
- Esposito, G., et al. Mice deficient for soluble adenylyl cyclase are infertile because of a severe sperm-motility defect. Proc. Natl. Acad. Sci. U.S.A. 101, 2993-2998 (2004).
- Avenarius, M. R., et al. Human male infertility caused by mutations in the CATSPER1 channel protein. American Journal of Human Genetics. 84, 505-510 (2009).
- Carlson, A. E., et al. Pharmacological targeting of native CatSper channels reveals a required role in maintenance of sperm hyperactivation. PLoS ONE. 4, e6844(2009).
- Brokaw, C. J. Calcium and flagellar response during the chemotaxis of bracken spermatozoids. J. Cell. Physiol. 83, 151-158 (1974).
- Visconti, P. E., et al. Capacitation of mouse spermatozoa. II. Protein tyrosine phosphorylation and capacitation are regulated by a cAMP-dependent pathway. Development. 121, 1139-1150 (1995).
- Svahn, H. A., van den Berg, A. Single cells or large populations. Lab on a chip. 7, 544-546 (2007).
- Pepperkok, R., Ellenberg, J. High-throughput fluorescence microscopy for systems biology. Nat. Rev. Mol. Cell Biol. 7, 690-696 (2006).
- Strunker, T., et al. The CatSper channel mediates progesterone-induced Ca2+ influx in human sperm. Nature. 471, 382-386 (2011).
- Lishko, P., et al. The Control of Male Fertility by Spermatozoan Ion Channels. Annu. Rev. Physiol. , (2011).
- Kao, J. P., Harootunian, A. T., Tsien, R. Y. Photochemically generated cytosolic calcium pulses and their detection by fluo-3. J. Biol. Chem. 264, 8179-8184 (1989).
- Kilic, F., et al. Caged progesterone: a new tool for studying rapid nongenomic actions of progesterone. Journal of the American Chemical Society. 131, 4027-4030 (2009).
- Lishko, P. V., Botchkina, I. L., Kirichok, Y. Progesterone activates the principal Ca2+ channel of human sperm. Nature. 471, 387-391 (2011).
- Xia, J., Ren, D. The BSA-induced Ca2+ influx during sperm capacitation is CATSPER channel-dependent. Reprod. Biol. Endocrinol. 7, 119(2009).
- Galantino-Homer, H. L., Florman, H. M., Storey, B. T., Dobrinski, I., Kopf, G. S. Bovine sperm capacitation: assessment of phosphodiesterase activity and intracellular alkalinization on capacitation-associated protein tyrosine phosphorylation. Mol. Reprod. Dev. 67, 487-500 (2004).
- Baldi, E., et al. Intracellular calcium accumulation and responsiveness to progesterone in capacitating human spermatozoa. J. Androl. 12, 323-330 (1991).
访问受限。请登录或开始试用以查看此内容。
重印与许可
