从克隆的cDNA中拯救重组沙粒病毒,这一方法被称为反向遗传学,可使研究人员探究特定病毒基因产物及其不同结构域和残基在沙粒病毒生物学多个方面所起的作用。同样,将反向遗传学技术应用于经美国食品药品监督管理局(FDA)批准用于疫苗开发的细胞系(Vero)中,为研制有效且安全的疫苗以对抗人类致病性沙粒病毒提供了新的可能性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
在 FDA 批准的 Vero 细胞中生成用于疫苗开发的重组沙粒病毒
* These authors contributed equally
本文内容
摘要
摘要
沙粒病毒反向遗传学技术的建立与应用是沙粒病毒研究领域的一项重大突破4。基于细胞的沙粒病毒最小基因组系统,结合在基因组中引入预设突变以产生重组感染性沙粒病毒的能力,极大地促进了对病毒决定因子在沙粒病毒生命周期各个阶段、病毒与宿主相互作用以及沙粒病毒致病机制中作用的研究1, 3, 11。此外,三节段沙粒病毒的开发使得利用沙粒病毒基因组表达额外的外源目的基因成为可能,从而为基于沙粒病毒的疫苗载体应用开辟了新途径5。同样,能够表达报告基因的单周期感染性沙粒病毒的开发,为涉及高致病性人类沙粒病毒的研究提供了新的实验工具,有助于提升研究的安全性16。迄今为止,利用质粒依赖的反向遗传学技术生成重组沙粒病毒主要依赖于啮齿类动物细胞系7,19,这在一定程度上限制了获得美国食品药品监督管理局(FDA)批准的疫苗或疫苗载体的开发。为克服这一障碍,本文描述了在FDA批准使用的Vero细胞中高效生成重组沙粒病毒的方法。
引言
沙粒病毒是一类具有双分段负链RNA基因组的有包膜病毒,属于沙粒病毒科(Arenaviridae)3。沙粒病毒的基因组通过两个独立的病毒片段以双向编码方式编码四种蛋白质3。大(L)片段编码RNA依赖性RNA聚合酶(L)和小型RING(Really Interesting New Gene)指蛋白(Z),后者是病毒出芽的主要驱动力。小(S)片段编码病毒核蛋白(NP)和表面糖蛋白(GP)(图1)。
沙粒病毒科(Arenaviridae)的多个成员可导致人类致命性出血热(HF)3。其中主要令人关注的是拉沙病毒(LASV)和胡宁病毒(JUNV),已知这两种病毒在住院患者中具有较高的致死率8, 9。尽管这些病毒分别在西非和阿根廷农村地区呈地方性流行,但由于旅行活动日益频繁,LASV 和 JUNV 被输入非流行地区的风险正不断增加10。此外,虽然原型沙粒病毒——淋巴细胞性脉络丛脑膜炎病毒(LCMV)通常不与人类严重疾病相关,但它被认为是一种被忽视的病原体,因为在免疫功能低下患者中已出现致死性感染病例6, 15,并且该病毒还可导致孕妇发生先天性出生缺陷和自然流产2, 13。目前尚无获得美国食品药品监督管理局(US FDA)批准的针对沙粒病毒的疫苗,治疗手段仅限于使用核苷类似物利巴韦林,但其疗效有限,且常伴随显著的副作用。
基于质粒的反向遗传学技术的建立4以及重组沙粒病毒的获得7, 19极大地推动了沙粒病毒研究领域的发展。目前,由于小鼠RNA聚合酶I(pol-I)启动子具有物种特异性,能够驱动S和L基因片段的初始转录,因此通常使用啮齿类动物细胞(如BHK-21细胞)来生成重组沙粒病毒。然而,在BHK-21细胞中进行病毒拯救的方法尚未被批准用于制备潜在的疫苗种子候选株。本文中,我们记录了在Vero细胞中利用人源pol-I启动子高效拯救典型旧世界(OW)淋巴细胞性脉络丛脑膜炎病毒(LCMV)和新世界(NW)胡宁病毒Candid#1株的方法。采用类似的方法,我们构建了含有两个额外外源基因的重组三分段LCMV(r3LCMV)和Candid#1(r3Candid#1)沙粒病毒,这两个外源基因分别编码于两个不同的S RNA片段中5。这一新系统不仅具有高度可重复性和操作简便的特点,还可立即应用于制备作为潜在疫苗或疫苗载体种子的重组沙粒病毒。
访问受限。请登录或开始试用以查看此内容。
方案
1. 沙粒病毒拯救转染
我们的拯救系统基于使用两种质粒:一种是利用RNA聚合酶II表达核蛋白(NP)和依赖RNA的RNA聚合酶(L)的表达质粒,这两种病毒反式作用因子是沙粒病毒基因组RNA复制和基因表达所必需的7, 19;另一种是能够通过细胞RNA聚合酶I(pol-I)指导S和L抗原组RNA在细胞内合成的质粒7。在本研究中,我们使用pCAGGs蛋白表达质粒,该质粒含有鸡β-肌动蛋白启动子及多聚腺苷酸化(pA)信号序列,以及人源pol-I质粒,该质粒含有人RNA聚合酶I启动子和小鼠终止子序列(图2)。S和L RNA片段以抗基因组方向克隆至hpol-I质粒中,以便在hpol-I转录时生成基因组RNA片段。为拯救野生型重组淋巴细胞性脉络丛脑膜炎病毒(rLCMV)和Candid#1(rCandid#1),将分别来源于这两种病毒的pCAGGs-NP和pCAGGs-L质粒,与其对应的人源pol-I S和L RNA片段共同转染细胞(图3)。重组三片段LCMV(r3LCMV)和Candid#1(r3Candid#1)的拯救采用类似方案,但将S片段拆分为两个不同的pol-I S质粒,每个质粒编码一个独特的报告基因:其中一个质粒中,NP开放阅读框(ORF)被绿色荧光蛋白(GFP)报告基因取代(hpol-I S GFP/GP);另一个质粒中,病毒糖蛋白前体(GPC)ORF被Gaussia荧光素酶(Gluc)报告基因取代(hpol-I S NP/Gluc)。该方案的示意图见图4。以下转染与感染操作流程适用于6孔板。
- OptiMEM-Lipofectamine 2000(LPF2000)混合液: 准备250 μl OptiMEM培养基,并根据病毒拯救实验的需要,每转染反应加入10–12 μg LPF2000(1 μg/μl)(见表1)。建议LPF2000与DNA的质量比为2.5 μg : 1 μg。室温孵育5–10分钟。在此期间,在另一个微量离心管中准备质粒转染混合液(步骤1.2)。
- 质粒DNA转染混合液: 在微量离心管中,根据每种病毒拯救实验推荐的量配制质粒转染混合液(见表1)。用OptiMEM将最终体积调至50 μl。
- OptiMEM-LPF2000-DNA质粒混合液: 将250 μl OptiMEM-LPF2000混合液(步骤1.1)加入质粒DNA转染混合液(步骤1.2)中。室温孵育20–30分钟。在此期间,准备并计数每转染反应所需的1 × 10⁶个Vero细胞。Vero细胞将以悬浮状态进行转染。
- Vero细胞的准备: Vero细胞在100 mm培养皿中培养。实验开始前,将1×PBS、含10% FBS和1% PS的DMEM培养基以及胰蛋白酶-EDTA混合液预热至37 °C。
- 用5 ml 1×PBS洗涤细胞两次。
- 加入1 ml胰蛋白酶-EDTA消化细胞,直至细胞脱落(约5分钟)。可轻敲培养皿以帮助细胞完全脱落。
- 在15 ml离心管中,用10 ml含10% FBS和1% PS的DMEM培养基轻柔重悬细胞。
- 在离心机中以1,000 rpm离心5分钟。
- 用10 ml含10% FBS和1% PS的DMEM培养基重悬细胞,使用血细胞计数板计数,并调整细胞浓度至1 × 10⁶个/ml。观察发现,每转染反应使用0.5–1 × 106个Vero细胞可获得最佳结果。
- 混合LPF2000/DNA与细胞: 在室温孵育20–30分钟后(步骤1.3),向OptiMEM-LPF2000-DNA质粒混合液中加入1 ml Vero细胞(1 × 10⁶个)(步骤1.4),室温孵育5分钟。
- 将LPF2000/DNA-细胞混合物接种至6孔板: 将DNA-LPF2000-Vero混合液(步骤1.5)加入6孔板的各孔中。轻轻摇动6孔板,然后在37 °C、5% CO2的培养箱中过夜孵育。
- 更换转染培养基: 转染后约16–24小时,移除转染培养基,加入2 ml感染培养基,并继续孵育转染细胞48小时。
- 细胞传代: 在感染培养基中孵育48小时后,收集组织培养上清液(TCS),并将转染后的细胞传代至100 mm培养皿中。TCS中通常不含感染性病毒,因为转染细胞需要进一步孵育才能产生病毒颗粒。进行细胞传代时:
- 用2 ml 1×PBS洗涤细胞两次。
- 加入0.5 ml胰蛋白酶-EDTA消化细胞,直至细胞脱落。
- 在1.5 ml微量离心管中,用1 ml含10% FBS和1% PS的DMEM培养基重悬细胞。
- 在微量离心机中以5,000 rpm、4 °C离心5分钟。
- 小心地用1 ml感染培养基重悬细胞,并将细胞转移至100 mm培养皿中。用感染培养基将培养皿中的总体积补至8 ml,该体积足以防止细胞干燥,并有利于病毒浓缩。
- 轻轻摇动100 mm培养皿,并在37 °C、5% CO2的培养箱中继续孵育Vero细胞72小时。
- TCS的收集: 孵育72小时后,将TCS收集至15 ml离心管中。在离心机中以2,500 rpm离心5分钟以去除细胞碎片。感染性沙粒病毒存在于TCS中,因此应弃去细胞碎片沉淀,将TCS储存于-80 °C。
2. 重组沙粒病毒拯救的确认
通过焦点形成单位(FFU)免疫荧光检测法(IFA)可检测rLCMV和rCandid#1的成功拯救。对于野生型病毒的拯救,我们使用针对病毒NP的特异性抗体。r3LCMV和r3Candid#1编码两个报告基因(GFP和Gluc),因此可通过荧光显微镜(GFP)和/或发光检测(Gluc)实现病毒的检测与滴定,无需使用抗体。
- 确认野生型重组沙粒病毒的拯救:滴定前一天,用 PBS 清洗 Vero 细胞两次,胰酶消化后接种至 96 孔板,使次日细胞融合度达到 80–90%(每孔 4 × 10⁴ 个细胞)。手动轻轻摇晃培养板,使细胞分布均匀。将细胞在 37 °C、5% CO2 的培养箱中培养过夜。在进行感染前,于显微镜下检查细胞,确认形成单层细胞:
- 将从转染细胞(100 mm 培养皿)中回收的含病毒 TCS(步骤 1.10)用 OptiMEM 进行连续十倍梯度稀释。
- 移除接种的 Vero 细胞中的培养基,用 50 μl 1× PBS 洗涤两次,每孔加入 50 μl 梯度稀释的病毒进行感染(步骤 2.1)。在 37 °C、5% CO2 条件下感染 1.5 小时。
- 感染后,移除病毒接种液,每孔加入 100 μl 感染培养基,继续培养 16–18 小时。若培养超过 18 小时可能发生病毒再感染,导致病毒滴度被高估。
- 感染后 16–18 小时,移除各孔中的 TCS,用 PBS 稀释的 4% 多聚甲醛在室温下固定细胞 15 分钟。
- 随后移除固定液,用 PBS 稀释的 0.1% Triton X-100 在室温下对细胞进行 10 分钟透化处理。
- 吸除透化液,用 1× PBS 洗涤细胞 3 次。
- 用含 2.5% 牛血清白蛋白(BSA)的 1× PBS(封闭液)在室温下封闭细胞 1 小时。或者,也可在 4 °C 下封闭过夜,次日继续进行抗体孵育。
- 同时准备一抗。将 LCMV 和 Candid#1 特异性的一抗用封闭液稀释,然后将抗体/封闭液混合物在 3,500 rpm 下离心 15 分钟。检测 rLCMV 可使用单克隆抗 LCMV NP 抗体克隆 1.1.3(1:30 稀释)16,检测 rCandid#1 可使用 BEI Resources 提供的单克隆抗 JUNV NP 抗体 SA02-BG12(1:500 稀释)。
- 封闭 1 小时后,吸除封闭液,每孔加入 50 μl 一抗,在 37 °C 孵育 1 小时。
- 在此期间,将二抗用封闭液稀释,然后将抗体/封闭液混合物在 3,500 rpm 下离心 15 分钟。为获得 图 5 中所示图像,使用了用于检测一抗单克隆抗体的兔抗小鼠 IgG FITC 多克隆二抗。
- 一抗孵育 1 小时后,吸除一抗,用 1× PBS 洗涤 3 次,每孔加入二抗,在 37 °C 孵育 30 分钟。
- 二抗孵育 30 分钟后,吸除二抗,用 1× PBS 洗涤 3 次。此时细胞即可用于荧光显微镜观察,通过计数每毫升的焦点形成单位(FFU/ml)来评估病毒拯救是否成功并进行滴定。
- r3LCMV 和 r3Candid#1 病毒拯救:由于这些病毒表达两个报告基因,其拯救可通过荧光显微镜检测 TCS 中的 GFP 表达或 Gluc 表达进行监测。也可通过检测 TCS 中 Gluc 的表达来确认拯救成功。对于三节段病毒的滴定,我们遵循 步骤 2.1 至 2.1.4,但由于存在 GFP 表达,无需固定细胞即可判断病毒拯救是否成功。病毒滴度通过计数 FFU/ml 确定。为通过 Gluc 表达判断病毒拯救是否成功,可使用 Gluc 检测试剂盒(Biolux Gaussia 荧光素酶检测试剂盒,New England Biolabs)检测 TCS 中的 Gluc 表达。具体操作如下:
- 将 100 μl TCS 加入 96 孔白色培养板中(平底微孔板,Fisher Scientific)。
- 设置化学发光仪(LumiCount,Packard Biosciences)。
- 向每个样品中加入 50–100 μl Gluc 检测试剂(按制造商推荐量),使用化学发光仪检测 Gluc 报告基因的表达。作为阴性对照,检测野生型病毒感染细胞后 TCS 中的 Gluc 表达水平。
3. 组织培养上清液的传代
病毒拯救依赖于转染效率。已有研究表明,Vero 细胞的转染效率低于其他细胞系14。如果TCS中的病毒滴度较低,可在多重感染指数(MOI)为0.01(LCMV)或0.1(Candid#1)的条件下感染新鲜Vero细胞,培养72小时以扩增病毒。
访问受限。请登录或开始试用以查看此内容。
结果
通过免疫荧光分析法(IFA)检测病毒抗原的存在,可确认成功拯救出重组野生型沙粒病毒(图5)。对于重组三分段病毒,可通过荧光显微镜观察GFP表达来评估病毒拯救是否成功(图6A)。进一步通过检测Gluc表达来确认拯救成功(图6B)。上述代表性结果是采用前述实验方案获得的,展示了野生型及三分段沙粒病毒的成功拯救。
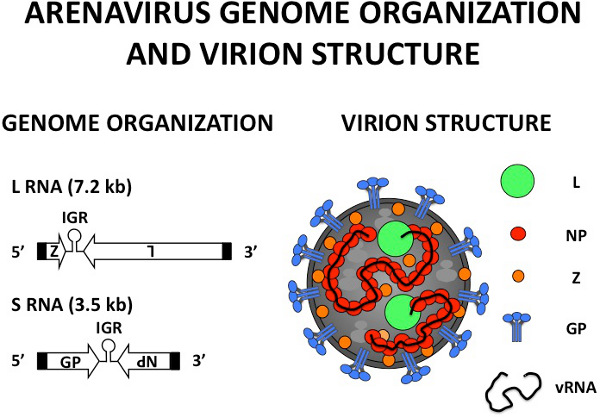
图1. 沙粒病毒基因组结构与病毒粒子结构。沙粒病毒是一类具有包膜的负链RNA病毒,其基因组分为两个片段3。每个片段采用双向编码策略,可在相反的方向上指导合成两种病毒蛋白...
访问受限。请登录或开始试用以查看此内容。
讨论
利用基于质粒的反向遗传学技术生成重组沙粒病毒已成为研究沙粒病毒生物学多个方面的常用方法。本文记录了现有系统的一项关键改进,即在Vero细胞中进行沙粒病毒的拯救,从而有望开发出针对沙粒病毒的美国食品药品监督管理局(FDA)批准的疫苗候选株,以及用于其他传染病的疫苗载体。
实验操作步骤总体上已较为成熟,通常不会造成显著困难。然而,为确保实验稳定成功,有几个因素需要密切监控。Vero 细胞的正确维护对于成功拯救病毒至关重要。此外,必须具备高质量的质粒制备物,以生成重组沙粒病毒(参见实验方案中关于细胞培养和质粒制备的正确方法)。在拯救 rLCMV 和 rCandid#1 野生型病毒或其三节段版本时,建议每种重组病毒进行三次独立的转染,以提高成功拯救的概率,因为 Vero 细胞不易被转染14。若同时尝试拯救多种重组病毒,应根据待拯救病毒的数量相应扩大以下步骤的规模。作为阴性对照,我们设置了不加入 pCAGGs NP 的转染组(-pCAGGs NP)。
由于LCMV和Candid#1感染的细胞不表现...
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢JCT和LM-S实验室的历任及现任成员在沙粒病毒反向遗传学技术与质粒的开发与改进方面所做的贡献。我们同时感谢Snezhana Dimitrova提供的技术支持。针对JUNV NP的单克隆抗体(SA02-BG12)由BEI资源库(NIAID生物防御与新发传染病研究资源库)提供。BYHC的研究得到美国国家研究服务奖(Institutional Ruth L. Kirschstein National Research Service Award)资助项目GM068411的支持。EO-R曾获得富布赖特-CONICYT奖学金(BIO 2008)和罗切斯特疫苗研究奖学金(2012)。EO-R目前由罗切斯特大学教师发展与多样性办公室资助的“多样性与学术卓越博士后奖学金”支持。LM-S实验室的研究工作由美国国立卫生研究院(NIH)资助项目RO1 AI077719、R21NS075611-01、R03AI099681-01A1、NIAID流感研究与监测卓越中心项目(HHSN266200700008C)以及罗切斯特大学生物防御免疫建模中心(HHSN272201000055C)提供经费支持。
JCT实验室的研究工作获得了美国国立卫生研究院(NIH)资助项目RO1 AI047140、RO1 AI077719和RO1 AI079665的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 材料与方法 | |||
| 细胞系 Vero E6(非洲绿猴肾上皮细胞)在37 °C 恒温培养箱,含 5% CO₂2 在含10% FBS和1% PS的DMEM中。细胞可从美国典型培养物保藏中心(ATCC,目录号CRL-1586)获得。 质粒 除 hpol-I L 外,所有质粒均可在 37 ℃ 下培养 °C,培养16-18小时。我们建议在30℃下培养hpol-I L细胞 °C 培养 24 小时。质粒使用质粒大提试剂盒(EZNA Fastfilter Plasmid Maxi Kit,Omega Bio-tek)按照制造商说明书进行制备,并储存于 -20 °C. 通过在260 nm处进行分光光度法测定纯化后的DNA质粒浓度,并利用260:280 nm比值评估其纯度。260:280 nm比值在1.8–2.0之间的样品被认为适用于病毒拯救实验。此外,应通过琼脂糖凝胶电泳进一步确认质粒的浓度和纯度。 病毒 所述的rLCMV(Armstrong 53b)和rCandid#1病毒拯救方案可在生物安全二级(BSL-2)条件下进行。受污染的材料(包括TCS和细胞)在丢弃前应进行灭菌处理。其他沙粒病毒的拯救可能需要更高级别的生物安全实验室设施,因此必须遵循适当的安全与防护措施。 组织培养基与溶液 DMEM 10% FBS 1% PS 445 ml 改良型杜尔贝科氏伊格尔培养基(DMEM)、50 ml 胎牛血清(FBS)和 5 ml 100倍青霉素/链霉素(PS)。4 ℃保存 °C. 此培养基将用于Vero细胞的维持。 感染性培养基: OptiMEM 与含 10% FBS 和 1% PS 的 DMEM 按 2:1 体积比混合。4 ℃ 保存。 °C. 此培养基将用于病毒感染过程。 10倍浓度磷酸盐缓冲液(PBS): 80 g 氯化钠,2 g 氯化钾,11.5 g 氯化钠2HPO4.7H2O,2 g KH2PO4. 加入ddH₂O2最多加至1升,调节pH至7.3,通过高压灭菌法灭菌,室温保存。 1× PBS: 将10X PBS用ddH₂O按1:10比例稀释2O. 高压灭菌后室温保存。 2.5 % BSA:2.5 g BSA 溶于 97.5 ml 1X PBS 中。4 ℃ 保存 °C. 此溶液用于IFA的封闭。 |
参考文献
- Albarino, C. G., Bird, B. H., Chakrabarti, A. K., Dodd, K. A., Flint, M., Bergeron, E., White, D. M., Nichol, S. T. The major determinant of attenuation in mice of the Candid1 vaccine for Argentine hemorrhagic fever is located in the G2 glycoprotein transmembrane domain. Journal of Virology. 85, 10404-10408 (2011).
- Barton, L. L. Lymphocytic choriomeningitis virus: a neglected central nervous system pathogen. Clinical Infectious Diseases: an official publication of the Infectious Diseases Society of America. 22, 197(1996).
- Buchmeier, M. J., Peter, C. J., de la Torre, J. C. Arenaviridae: The viruses and their replication. Fields' Virology. Fields, B. N., Knipe, D. M., Howley, P. M. 2, Fifth, 179201827(2007).
- Emonet, S. E., Urata, S., de la Torre, J. C. Arenavirus reverse genetics: new approaches for the investigation of arenavirus biology and development of antiviral strategies. Virology. 411, 416-425 (2011).
- Emonet, S. F., Garidou, L., McGavern, D. B., de la Torre, J. C. Generation of recombinant lymphocytic choriomeningitis viruses with trisegmented genomes stably expressing two additional genes of interest. Proceedings of the National Academy of Sciences of the United States of America. 106, 3473-3478 (2009).
- Fischer, S. A., Graham, M. B., Kuehnert, M. J., Kotton, C. N., Srinivasan, A., Marty, F. M., Comer, J. A., Guarner, J., Paddock, C. D., DeMeo, D. L., et al. Transmission of lymphocytic choriomeningitis virus by organ transplantation. The New England Journal of Medicine. 354, 2235-2249 (2006).
- Flatz, L., Bergthaler, A., de la Torre, J. C., Pinschewer, D. D. Recovery of an arenavirus entirely from RNA polymerase I/II-driven cDNA. Proceedings of the National Academy of Sciences of the United States of America. 103, 4663-4668 (2006).
- Gunther, S., Lenz, O. Lassa virus. Critical reviews in clinical laboratory sciences. 41, 339-390 (2004).
- Harrison, L. H., Halsey, N. A., McKee, K. T., Peters, C. J., Barrera Oro, J. G., Briggiler, A. M., Feuillade, M. R., Maiztegui, J. I. Clinical case definitions for Argentine hemorrhagic fever. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. 28, 1091-1094 (1999).
- Isaacson, M. Viral hemorrhagic fever hazards for travelers in Africa. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. 33, 1707-1712 (2001).
- Kerber, R., Rieger, T., Busch, C., Flatz, L., Pinschewer, D. D., Kummerer, B. M., Gunther, S. Cross-species analysis of the replication complex of Old World arenaviruses reveals two nucleoprotein sites involved in L protein function. Journal of Virology. 85, 12518-12528 (2011).
- Lee, K. J., Novella, I. S., Teng, M. N., Oldstone, M. B., de La Torre, J. C. NP and L proteins of lymphocytic choriomeningitis virus (LCMV) are sufficient for efficient transcription and replication of LCMV genomic RNA analogs. Journal of Virology. 74, 3470-3477 (2000).
- Mets, M. B., Barton, L. L., Khan, A. S., Ksiazek, T. G. Lymphocytic choriomeningitis virus: an underdiagnosed cause of congenital chorioretinitis. American Journal of Ophthalmology. 130, 209-215 (2000).
- Murakami, S., Horimoto, T., Yamada, S., Kakugawa, S., Goto, H., Kawaoka, Y. Establishment of canine RNA polymerase I-driven reverse genetics for influenza A virus: its application for H5N1 vaccine production. Journal of Virology. 82, 1605-1609 (2008).
- Palacios, G., Druce, J., Du, L., Tran, T., Birch, C., Briese, T., Conlan, S., Quan, P. L., Hui, J., Marshall, J., et al. A new arenavirus in a cluster of fatal transplant-associated diseases. The New England Journal of Medicine. 358, 991-998 (2008).
- Rodrigo, W. W., de la Torre, J. C., Martinez-Sobrido, L. Use of single-cycle infectious lymphocytic choriomeningitis virus to study hemorrhagic fever arenaviruses. Journal of Virology. 85, 1684-1695 (2011).
- Rojek, J. M., Kunz, S. Cell entry by human pathogenic arenaviruses. Cellular Microbiology. 10, 828-835 (2008).
- Rojek, J. M., Sanchez, A. B., Nguyen, N. T., de la Torre, J. C., Kunz, S. Different mechanisms of cell entry by human-pathogenic Old World and New World arenaviruses. Journal of Virology. 82, 7677-7687 (2008).
- Sanchez, A. B., de la Torre, J. C. Rescue of the prototypic Arenavirus LCMV entirely from plasmid. Virology. 350, 370-380 (2006).
访问受限。请登录或开始试用以查看此内容。
重印与许可
