尽管在C. elegans中通过喂食dsRNA是评估基因功能的有力工具,但现有的大规模喂食筛选方案常导致基因沉默效率不稳定。本文介绍了一种改进的大规模RNAi喂食筛选方案,可实现高效且可重复的基因表达沉默。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
通过喂食表达双链RNA(dsRNA)的细菌来实现线虫的RNA干扰,已成为研究C. elegans基因功能的有效工具。尽管在靶向少数基因进行基因沉默时该策略效果良好,但在大规模喂食筛选中,基因沉默效率存在较大变异,限制了其应用价值。我们对先前发表的RNAi基因沉默实验方案进行了系统分析,发现导致沉默效率降低的主要原因是喂食过程中细菌丢失了编码dsRNA的质粒。基于这些发现,我们开发了一种dsRNA喂食方案,可显著减少甚至消除质粒丢失,从而实现高效、高通量的基因沉默。我们证明,该方案可在包括神经元在内的多种C. elegans组织类型中产生强烈且可重复的基因沉默效果,并适用于大规模筛选实验。本方案使用 commercially available 的dsRNA喂食文库,并详细描述了文库扩增及开展dsRNA筛选所需的全部步骤。该方案无需使用任何复杂仪器,因此任何C. elegans实验室均可实施。
引言
传统上,C. elegans 的遗传筛选是通过使用甲基磺酸乙酯等化学诱变剂处理线虫,从而在 DNA 中产生随机突变。随后分离经诱变处理的线虫的子代或孙代,筛选出具有特定异常表型的个体。然后通过耗时且繁琐的基因定位方法,或通过对突变线虫的全基因组进行测序,来确定导致该表型的突变位点。化学诱变筛选具有诸多优势,因其可在线虫基因组中产生永久性损伤,从而导致功能获得性或功能缺失性表型;但其基因定位过程较为缓慢且成本较高。
双链RNA干扰(dsRNAi)为鉴定参与重要生物学过程的基因提供了一种替代方法。该方法将与内源基因编码序列匹配的双链RNA导入线虫体内。该双链RNA被加工处理 体内 产生小分子(21-22个核苷酸)RNA,作为引导序列识别并结合互补的内源mRNA,从而靶向其降解 1该方法相对较快,但由于双链RNA(dsRNA)靶向的是mRNA而非DNA,因此使用此方法仅能观察到功能降低的表型。
将双链RNA(dsRNA)导入动物体内可通过直接注射dsRNA 2、将动物浸泡在dsRNA溶液中 3,或喂食表达dsRNA的细菌 4来实现。这些递送方法均可引起系统性的基因沉默效应,因为动物的大多数细胞都表达SID-1——一种能够摄取dsRNA的跨膜通道蛋白 5。最初,该技术被用作反向遗传学手段,逐个敲低单个基因的表达;随着两种喂食文库的开发,现已可进行大规模的遗传筛选。市面上可获得的dsRNA文库包含细菌克隆,分别覆盖了约55%或87%的全部C. elegans基因 6, 7。
遗憾的是,大规模 dsRNAi 饲喂筛选通常会导致基因敲低效率的差异8-10。尽管RNAi介导的基因敲低绝对水平难以直接测量,但在大规模筛选中观察到的敲低效率降低必然源于部分基因特异性mRNA未被RNAi机制降解而残留下来。这可能是由于在筛选过程中喂给动物的细菌丢失了表达dsRNA的质粒所致。支持这一观点的证据表明,当动物被喂食仅50%细菌表达靶基因dsRNA的混合菌液时,其基因敲低效果与对照组动物相比显著降低(甚至完全消失)11。在进行dsRNAi筛选时,基因敲低的程度成为一个关键问题,因为大多数 C. elegans 基因具有单倍充足性,因此基因表达水平必须至少降低50%,才能产生功能缺失表型12。
我们曾采用先前发表的饲喂方案进行大规模筛选,结果发现与他人报道的相同,基因敲低效果存在变异 8-10。在寻找可能原因的过程中,我们发现筛选中喂给线虫的细菌中近60%已丢失了dsRNA质粒。为此,我们开发了一种文库扩增与筛选方案,可显著减少甚至完全避免质粒丢失,从而大幅提高基因敲低效率。该方案适用于在C. elegans中开展大规模筛选,可用于筛选任意一种市售的dsRNA文库。采用此方案后,我们发现筛选过程中喂给线虫的细菌几乎100%均保留了编码dsRNA的质粒,并在所检测的所有组织中均引起强烈且高度完全的基因功能缺失表型。
访问受限。请登录或开始试用以查看此内容。
方案
注意:本实验方案可用于鉴定多种组织类型中多种生物过程所必需的基因。在筛选过程中,作为必要的质量控制步骤,需用表达阳性对照和阴性对照dsRNA的细菌饲喂动物,以证明在靶向组织中产生RNA干扰效应。
其他已发表的饲喂方案在含有50 μg/ml氨苄青霉素或25 μg/ml羧苄青霉素的条件下培养表达dsRNA的细菌8-10。我们发现,在上述任一条件下培养的细菌会以较高频率丢失dsRNA质粒。事实上,即使在极高浓度(高达2 mg/ml)的氨苄青霉素中过夜培养细菌,仍有超过50%的细菌不再含有质粒。虽然在羧苄青霉素中培养通常能实现较高的质粒保留率,但25 μg/ml的浓度仍不足以防止质粒丢失。相反,我们发现,在液体培养过程中,需要500 μg/ml的羧苄青霉素浓度才能阻止质粒丢失;而在固体琼脂基质上培养细菌时,则需要2 mg/ml的羧苄青霉素浓度才能阻止质粒丢失。
由于质粒的保留对于基因敲低的成功至关重要,因此在本方案中培养dsRNA细菌时仅使用羧苄青霉素。我们已仔细优化了本方案所述细菌培养过程中所用羧苄青霉素的浓度,以确保不含质粒的细菌无法在这些培养物中生长。然而,作为质量控制措施,需在方案的多个步骤中检测质粒丢失情况。为确保高效的基因敲低,每个步骤中超过80%的细菌必须含有dsRNA质粒。若在任一步骤中有超过20%的细菌丢失了dsRNA质粒,则应检查所用羧苄青霉素的质量。羧苄青霉素应在使用当天新鲜配制。请重新配制新鲜的羧苄青霉素并重复培养。
1. 如何确定质粒丢失
- 取少量细菌样品(按各相关步骤所述),加入到 450 μl 无菌水中。
- 取 100 μl 该稀释样品,用无菌水依次进行 1:10、1:100 和 1:1,000 的系列稀释,每次稀释后充分混匀溶液。
- 将每种稀释液各取 100 μl 涂布于 LB 平板和 LB AMP 平板上,于 37 °C 培养过夜。
- 次日,挑选含有 100 至 500 个菌落的 LB 平板,计数该平板及相应稀释度的 LB AMP 平板上的菌落数。
- 根据菌落计数确定质粒丢失率。不含质粒的细菌百分比按公式 1 计算,有效 dsRNA 沉默时应低于 15%。
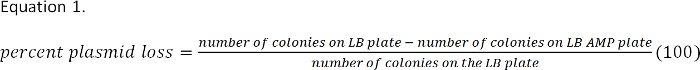
2. 制备重复文库板
概述: dsRNA文库将由制造商(OpenBiosystems)以10,566个细菌克隆的形式提供,分装于96孔板中。收到后应立即将这些板存放于-80 °C超低温冰箱中。原始文库板将被复制,所有饲喂筛选实验均使用复制后的文库板作为细菌来源。建议将原始文库板和复制文库板分别存放在不同的冰箱中。为便于操作,建议每天仅复制10块文库板。
- 从 -80 °C 冰箱中取出文库板,当细胞仍处于冷冻状态时,移除封板铝箔。重新盖上文库板的塑料盖,将板置于水平面上,在室温下解冻(不超过 30 分钟)。
注意: 我们发现原始文库平板中每个孔内的细菌有相当一部分不含有质粒。然而,由于文库细菌是宝贵的资源,不建议对原始文库培养物进行质粒丢失的检测。
- 使用多通道移液器,加入 150 μl 向一个空的96孔平底复孔板的每孔中加入等量的文库扩增培养基。
- 用多通道移液器吸取解冻的文库细菌培养物,上下吹打4到5次,移液器量程设为 100 μl。然后移除 10 μl 每种混合培养物取适量转移至重复板的相应孔中。继续将文库板中的培养物转移至重复板,确保每次转移均更换移液器吸头。
- 文库板中所有培养物转移完毕后,使用压辊将新的自粘箔膜覆盖在原始文库板的孔上,确保密封完全。盖上板子的塑料盖,将其直立放置于 -80 °C 冷冻至少30分钟,直至培养物完全重新冻结,然后将原始文库板移回文库储存盒中。
- 将文库平板培养物的复孔在水平摇床上振荡培养 8–10 小时 37 °C (微型振荡器,转速450 rpm,振幅3 mm)。
- 确定每个重复文库平板中的质粒丢失情况。我们发现,原始文库平板每个孔中很大比例的细菌不含dsRNA质粒。重要的是,这些细菌不应在文库重复过程中发生生长。为防止其生长,文库复制培养基中使用高浓度的羧苄青霉素(3 mg/ml)。在此条件下培养复制平板后,我们发现超过90%的细菌含有dsRNA质粒。 10 μl 从每个重复平板的代表性培养孔中取样,并将其加入 450 μl 无菌水。使用这些稀释后的样品,按照步骤 1.1–1.4 测定每个重复文库平板中的质粒丢失情况。若观察到显著的质粒丢失(>重复文库中有20%的细菌不含质粒时,需使用新鲜的羧苄青霉素重新制备培养基,并从步骤2.1开始重复实验流程。
- 孵育后,将一张新的铝箔粘性贴膜直接覆盖在复制板的孔上,并将板盖盖在铝箔上。将复制文库板直立放置于 -80 °C 冷冻至少30分钟,直至完全冻结。待冻结后,将板转移至复制文库储存盒中进行长期保存。
3. 在 Omniplates 上制作文库的临时拷贝
概述:为了开始为dsRNA筛选制备食物,需将来自两份重复文库平板的细菌转移至固体琼脂OmniPlate中,并过夜培养。为防止在固体培养基上发生质粒丢失,OmniPlate中含有浓度为2 mg/ml的羧苄青霉素。这些平板上的细菌可在一周内使用,且未出现质粒丢失现象。我们尚未检测在OmniPlate上培养超过一周的细菌是否会发生质粒丢失。
- 从 - 中移除重复的文库板80 °C 将培养物从冷冻保存状态中取出,保持其仍处于冷冻状态时撕去封板铝箔。去除铝箔后,重新盖上培养板的塑料盖,将复制的文库板置于水平台面上,在室温下解冻(不超过30分钟)。
- 对Boekel 96针复制器进行灭菌。每次使用前,应将洁净复制器的针头用蒸馏水冲洗,然后进行灭菌。灭菌时,将复制器放入乙醇浴中(乙醇深度约为3/4英寸,盛于Pyrex培养皿中),然后用本生灯点燃附着在针头上的乙醇,待火焰熄灭后重复一次该过程。
- 将灭菌的复制器放入已解冻的重复平板的孔中,轻轻搅拌培养物。少量培养液将附着在复制器的针上。
- 小心地将复制器从重复平板的孔中取出,轻轻将其(针端朝下)放置在Omniplate表面,注意不要刺破琼脂表面。让复制器在Omniplate表面停留3-4秒,使复制器针上的细菌转移到琼脂表面。
- 移除复制器,并保留小体积(2-3 μl) 细菌培养物吸收至琼脂中。将 OmniPlate 倒置,在 37 °C 下孵育 15–18 小时 37 °C这些Omniplates可用于次日接种96孔液体培养物。或者,含有过夜培养细菌菌落的Omniplates可在4°C下保存长达七天 4 °C.
- 为重复转移额外的重复平板,先用无菌水冲洗复制器的接种针,然后将复制器浸入乙醇中并灼烧两次,重复之前的灭菌步骤。灭菌完成后,即可用于下一个重复平板。
- 在Omniplates上过夜培养后测定质粒丢失情况。过夜生长后,Omniplates上的细菌菌落将作为喂食筛选实验的临时食物来源。确保每个菌落中超过80%的细菌含有dsRNA至关重要。细菌在固体琼脂培养基上比在液体培养中更容易丢失质粒。选取Omniplates上两个代表性菌落,分别取少量菌落接种于1 ml无菌水中,混匀后使用该稀释样品按照步骤1.1–1.4测定质粒丢失率。预期结果:每个菌落中超过90%的细菌应含有dsRNA质粒。若观察到明显的质粒丢失(>20% 的 omniplate 平板菌落中的细菌不含质粒),则需使用新鲜的羧苄青霉素重新制备 omniplate 培养基,并从步骤 3.1 起重复实验流程。
4. 准备用于喂食线虫的细菌
概述:用于喂养线虫的细菌通过96孔板格式,使用来自omniplates的细菌制备成1 ml液体培养物。这些液体培养物需过夜培养以产生饱和的、非对数生长期的细菌培养物。过夜培养可确保所有培养物中含有相似浓度的细菌,从而保证所有线虫获得等量的食物。在此培养过程中不应观察到质粒丢失现象。
- 使用重复移液器和50 ml Combitip,将1 ml细菌培养基加入至2 ml深孔96孔板的每个孔中。
- 将无菌复制器轻轻放置在步骤3.1–3.6中生成的含细菌菌落的omniplate表面,确保每个针头均接触96个细菌菌落。
- 小心地将复制器从omniplate表面转移至深孔板中,确保针头在浸入培养基前不刮擦深孔内壁。缓慢沿深孔板内壁做方形移动,使细菌脱离针头进入培养基中。注意避免液体飞溅,防止孔间交叉污染。
- 对照孔: 每块96孔深孔培养板中,选择一孔加入表达dsRNA的细菌作为阳性对照,用于预期基因敲低表型的验证;另选一孔加入含空载dsRNA载体(pL4440)的细菌作为阴性对照。我们每周将对照用的dsRNA表达菌在含四环素(15 μg/ml)和羧苄青霉素(2 mg/ml)的LB平板上重新划线一次,以保持菌种新鲜并维持质粒稳定性。
- 使用无菌接种环从对照平板上挑取单个分离良好的菌落(菌量应与复制器转移的量相当),接种至深孔培养板中的一个空孔中,并记录接种孔的位置。或者,也可将接种环上的菌体转移至含有250 μl培养基的Eppendorf管中,涡旋混匀后用于接种多个孔。
- 将深孔板置于37 °C条件下,在微型摇床上以650 rpm(振幅3 mm)水平振荡过夜培养。次日清晨培养物将达到饱和状态。尽管如此,培养基中所用的羧苄青霉素浓度应足以防止质粒丢失。
- 检测1 ml过夜培养物中的质粒丢失情况。这些培养物将直接用于喂食线虫进行筛选实验。确保每孔培养物中超过80%的细菌仍携带dsRNA质粒。根据步骤1.1–1.4检测两个代表性培养物的质粒保留率。预期结果:每个培养物中超过90%的细菌仍携带dsRNA质粒。我们在实际操作中从未观察到此类过夜培养物出现显著的质粒丢失现象,即使培养至饱和状态亦如此。然而,若发现质粒丢失显著(>20%),则需使用新鲜的羧苄青霉素重新配制培养基,并从步骤4.1开始重复实验流程。只要omniplate保存时间不超过1–2周,即可从中重新取菌启动新的培养。
- 用于启动1 ml培养物后,omniplate应储存于4 °C直至筛选实验完成,之后仍可作为食物来源用于启动任何复测培养。
- 培养过夜后,使用12通道多通道移液器从深孔板中取出150 μl细菌培养物,滴加至喂食板表面。转移过程中切勿刺破琼脂表面,否则线虫会钻入琼脂而不摄食表达dsRNA的细菌。每次可同时转移四个孔(图1)。具体操作为:将移液器吸头安装在多通道移液器的每第三个通道上(因喂食板每行仅有四个孔)。每完成一组四孔转移后,更换为新的无菌吸头。每块96孔深孔培养板需使用96个吸头,将培养物转移至八块12孔喂食板。
- 将接种后的平板直立存放于避光环境中过夜,使细菌充分渗入琼脂。
5. 生成L1期停滞的C. elegans幼虫
概述:使用L1期停滞的幼虫在dsRNA喂养平板上启动同步的线虫培养。这些幼虫通过漂白处于产卵期的成虫群体以分离出健康的卵,然后将卵置于无食物的S-complete培养基中孵化而获得。在缺乏食物的情况下,孵化出的L1幼虫将停止发育,从而形成同步化的L1幼虫群体。在筛选过程中,应每周制备新鲜的L1期停滞幼虫,因为这些饥饿状态的动物会随着时间推移而活力下降,必须予以丢弃。用于dsRNA喂养实验的线虫遗传背景可根据具体应用而选择;对于神经元相关的筛选,推荐使用eri-1; lin-15B突变体。
- 挑选10-20条L4期幼虫至六块分别含有OP50细菌菌苔的NGM平板上,等待6-7天,直至平板上出现大量新产的卵和怀卵成虫。
- 向每块平板表面加入3 ml水,用戴手套的手指轻轻刮擦平板表面,使卵、细菌和线虫从琼脂表面脱离并悬浮于水中。确保覆盖平板所有区域,特别注意细菌菌苔部分。使用玻璃移液管将每块平板中的水、细菌、线虫和卵收集起来,转移至一个无菌的50 ml锥形管中。
- 再次向每块平板表面加入3 ml水,用移液管反复吹打表面,以去除残留的细菌、线虫和卵。将此液体也加入至50 ml锥形管中。
- 将锥形管在台式离心机中以1,500 rpm离心1分钟。线虫和卵应形成沉淀聚集于管底,而细菌则保留在上清液中。小心吸除上清液,仅保留4 ml,注意避免扰动沉淀中的线虫和卵。
- 用玻璃移液管将沉淀的线虫重悬于残留液体中,并转移至一个无菌的15 ml锥形管中。用无菌水定容至10 ml。
- 同前法以1,500 rpm离心1分钟。吸除上清液,保留200 μl水,以免扰动线虫/卵沉淀。
- 向锥形管中加入10 ml水以洗涤线虫和卵,然后同前法离心,以进一步去除残留细菌。
注意:在步骤 5.8-5.11 中,线虫和卵将暴露于漂白液中。漂白液会破坏线虫,但对卵的损伤相对较小。然而,如果卵在漂白液中停留时间过长,也会被破坏。在步骤 5.8 加入漂白液时应设置计时器,确保卵暴露于漂白液的时间不超过 10 分钟。
- 除去上清液,仅保留 200 μl,注意避免触及沉淀,然后加入 10 ml 漂白液,并启动计时器。
- 将线虫和虫卵在漂白液中孵育 3–4 分钟,期间偶尔通过倒置混匀。随后在台式离心机中以 1,500 rpm 离心 45 秒。观察管底的沉淀,其体积应比原始沉淀更小、更致密,且可能呈现黄色。
- 吸除漂白液,保留 200 μl,以免扰动沉淀。
- 再加入 10 ml 新鲜漂白液,同前倒置混匀。当计时器达到 10 分钟时,再次离心并吸除漂白液,保留 200 μl,然后迅速加入 10 ml 无菌水。在解剖显微镜下观察溶液。幼虫及多数成虫应在漂白液中溶解,主要留下虫卵。
- 同前离心 45 秒,再次小心吸除上清液,避免扰动沉淀。此沉淀主要含有虫卵,质地非常疏松。
- 加入 10 ml 水,倒置混匀,离心后吸除上清液,保留少量水。务必尽可能彻底去除残留的漂白液。
- 向锥形管中加入 4 ml S-complete 培养基,重悬虫卵,并转移至无菌的 100 ml 锥形瓶中。将锥形瓶置于 20 °C 摇床培养箱中,摇速调节至足以使瓶内液体产生漩涡即可。此条件可提供足够的通气,支持 L1 幼虫孵化后的生长。15 小时内,所有虫卵应均已孵化,产生同步化的 L1 暂停发育幼虫群体。
在筛选过程中,应每周新鲜制备滞育的L1幼虫。在完成第一批制备后,后续批次可通过将500条滞育L1幼虫(来自上周批次)分别接种至四个标准的已涂布线虫培养基(NGM)6 cm培养皿(每个培养皿含100 μl过夜培养的OP50大肠杆菌菌液)中,并在20 °C下培养4天来启动。在第4天,培养皿中将出现大量虫卵和怀卵成虫,此时可进行次氯酸钠漂白处理,以获得新鲜虫卵,用于制备更多同步化的L1幼虫。
6. 将滞育的L1幼虫转移至喂养平板
概述:为了进行dsRNA筛选,将20-30条L1期停滞的幼虫转移至含有dsRNA的喂养平板上。在动物摄食表达dsRNA的细菌2-3天后,可观察到早期的基因敲低效应,例如幼虫停滞或致死现象。根据所进行的筛选类型,目标表型可能出现在最初放置在喂养平板上的动物(P0代)中,也可能出现在其子代(F1代)中。表型的出现取决于多种因素,包括被敲低基因所编码蛋白的存续时间,以及目的基因在发育过程中发挥作用的时间点。从仅含20-30个动物开始dsRNA喂养培养,可在食物耗尽前观察到P0代和F1代的表型。
为方便将20-30只动物转移至喂养平板,首先需确定L1期停滞动物在停滞L1培养物中的浓度。
- 将含有停滞L1幼虫的锥形瓶混匀,以分散其中的动物。
- 移除 a 10 μl 分装并逐滴加入未接种的6 cm NGM平板中央,共4-5滴,确保移液器中的全部培养基完全排出。
- 用移液器吸头末端将虫液滴展开,形成一条贯穿培养皿直径的连续液线。
- 使用解剖显微镜,在液体被培养板吸收且动物开始分散之前,从液滴一端开始计数所有动物,持续计数至另一端。为确保不遗漏任何个体,可能需要不断重新对焦解剖显微镜。
- 重复此步骤三次,每次独立进行 10 μl 分装样品,取三个数值的平均值,以确定每份样品中的平均线虫数量 μl 蠕虫悬液的体积并直接记录在锥形瓶上。
7. 开始喂养筛选
概述:开始双链RNA筛选时,将20-30条停滞在L1期的幼虫分别加入含有表达双链RNA细菌薄层的12孔喂养板的每个孔中。喂养板含有标准线虫生长培养基(NGM),并添加500 μg/ml羧苄青霉素(防止质粒丢失)和1 mM IPTG(诱导双链RNA表达)。将线虫置于20 °C条件下喂养并发育数天。进行P0代筛选时通常喂养3天,进行F1代筛选时通常喂养6-7天。然而,喂养时间可根据筛选中所需观察的特定表型进行调整。
- 使用L1期停滞的幼虫悬浮液和无菌水配制含有2,000条线虫/毫升的溶液。每块12孔喂食板需要120 μl该线虫悬浮液。充分混匀以确保线虫分布均匀,并将线虫转移至无菌储液槽中用于移液。
- 使用多通道移液器,吸头安装在每隔两个位置(见图1),将10 μl线虫溶液直接加到喂食板的细菌菌苔上。注意不要刺破琼脂表面,否则线虫会钻入琼脂内部而无法摄取表达dsRNA的细菌。
- 由于线虫沉降迅速,每处理两行喂食板后,需轻轻晃动储液槽重新混匀线虫溶液。继续分装线虫悬浮液,直至所有喂食板均加有线虫。实验初期可在解剖显微镜下检查若干孔,确保每孔含有20–30条线虫。
- 将培养板直立放置于湿润盒中,在20 °C培养箱内培养。次日待线虫悬浮液完全渗入培养基后,将培养板倒置,重新放回20 °C的保湿环境中。接种后3天可观察P0代表型,6天后可观察F1代表型。
注意: 蠕虫生长 7 天后,取食平板上残留的细菌经检测发现质粒丢失率极低,几乎 100% 的细菌仍保留 dsRNA 质粒。
访问受限。请登录或开始试用以查看此内容。
结果
在用表达dsRNA的细菌饲喂动物2-3天后,P0基因敲低的表型将开始出现。一些早期表型包括幼虫停滞和致死,应在所有饲喂孔中观察到约2-3%的发生率。这些相同的表型也将在F1代动物中出现。F1代中未能孵化的卵是另一种常见的F1代表型,这三种表型合计将在F1代筛选的所有孔中接近10%的孔中被观察到。
我们采用此处描述的方案,检测了多个在P0和F1代表型中于多种组织类型中表达的基因的敲低效应。由于我们还想检测神经组织中的基因敲低效应,因此在筛选中使用了eri-1; lin-15B突变体。eri-1和lin-15B的突变,以及rrf-3的突变,最初是在筛选增强RNAi敏感性突变体的研究中被发现的8,13,14。
我们测试了四个基因的敲低效果:egl-30、dpy-17、pat-10 和 unc-4。其中两个基因 egl-30 和 unc-4
访问受限。请登录或开始试用以查看此内容。
讨论
我们描述了一种利用 commercially available 的 dsRNA 饲喂文库在 C. elegans 中进行大规模筛选的实验方案。我们提供了复制该文库并有效使用它的全部操作步骤。我们证明,该方法能够鉴定出参与动物不同组织中多种生物学过程的基因。尽管本文所描述的表型易于观察(如 Unc、Egl 和 Dpy),但该方案可被调整用于搜索几乎任何生物学过程所必需的基因。例如,我们已利用该方案鉴定了线虫中神经传递所必需的基因25。当动物摄食表达 dsRNA 的细菌后(P0 筛选通常为 3 天,F1 筛选为 6–7 天),可将其从饲喂平板中移出,并检测其是否存在任何行为表型。
质粒丢失:
我们发现,在大规模 dsRNA 筛选中观察到的基因沉默效率降低可直接归因于喂食线虫的细菌中丢失了 dsRNA 质粒。质粒的丢失发生在细菌培养过程中,原因是 dsRNA 文库质粒编码的 β-内酰胺酶能够降解氨苄青霉素和羧苄青霉素,导致这些抗生素的浓度随时间逐渐降低。当抗生素浓度降至足够低时,不含质粒的细菌便能...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
本研究工作获得了美国国立卫生研究院(NIH)基金 MH097163 的资助。部分菌株由CGC提供,CGC由NIH研究基础设施项目办公室(P40-OD010440)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂/材料 | |||
| 96孔Falcon平底板 | Fisher Scientific | 353072 | 无菌 |
| 粘性封口膜 | USA Scientific | 2923-0100 | |
| Nunc omniplate | Fisher Scientific | 267060 | |
| 2.0 ml深孔96孔聚丙烯Masterblock | USA Scientific | 5678-0285 | 可高压灭菌 |
| 深孔板盖 | USA Scientific | 5665-6101 | |
| 50 ml Combitips | USA Scientific | 4796-5000 | 单独包装 |
| 储液槽 | USA Scientific | 2977-8500 | 可高压灭菌 |
| 12孔板 | USA Scientific | CC7682-7512 | 单独包装 |
| dsRNA饲喂文库 | OpenBiosystems | RCE1181 | 保存于 -80 °C |
| 氨苄青霉素 | Fisher Scientific | BP1760-5 | |
| 四环素 | Fisher Scientific | BP912-100 | |
| 羧苄青霉素 | 允许2-4周交货时间 www.biochemicaldirect.com | ||
| 细菌学琼脂,超纯级A | Affymetrix | 10906 | 用于线虫培养板 |
| 仪器 | |||
| 压板滚轮 | USA Scientific | 9127-2940 | |
| B–kel 96针复制器 | Fisher Scientific | 05-450-9 | 可高压灭菌 |
| 微型振荡器 | Thomas Scientific | 1231A93 | 3 mm轨道 |
| 12通道多道移液器(0.5-10 μl) | USA Scientific | 7112-0510 | |
| 12通道多道移液器(30-300 μl) | USA Scientific | 7112-3300 | |
| Repeater Plus手动移液器 | USA Scientific | 4026-0201 |
参考文献
- Mello, C. C., Conte, D. Jr Revealing the world of RNA interference. Nature. 431 (7006), 338-342 (2004).
- Fire, A., et al. Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans. Nature. 391 (6669), 806-811 (1998).
- Tabara, H., Grishok, A., Mello, C. C. RNAi in C. elegans: soaking in the genome sequence. Science. 282 (5388), 430-431 (1998).
- Timmons, L., Fire, A. Specific interference by ingested dsRNA. Nature. 395, 854(1998).
- Jose, A. M., Smith, J. J., Hunter, C. P. Export of RNA silencing from C. elegans tissues does not require the RNA channel SID-1. Proc. Natl. Acad. Sci. 106, 2283-2288 (2009).
- Kamath, R. S., et al. Systematic functional analysis of the Caenorhabditis elegans genome using RNAi. Nature. 421 (6920), 231-237 (2003).
- Rual, J. F., et al. Toward improving Caenorhabditis elegans phenome mapping with an ORFeome-based RNAi library. Genome Res. 14, 2162-2168 (2004).
- Simmer, F., et al. Genome-wide RNAi of C. elegans using the hypersensitive rrf-3 strain reveals novel gene functions. PLoS Biol. 1, 77-84 (2003).
- Lee, S. S., et al. A systematic RNAi screen identifies a critical role for mitochondria in C. elegans longevity. Nat. Genet. 33 (1), 40-48 (2003).
- Sieburth, D., et al. Systematic analysis of genes required for synapse structure and function. Nature. 436 (7050), 510-517 (2005).
- Kamath, R. S., Martinez-Campos, M., Zipperlen, P., Fraser, A. G., Ahringer, J. Effectiveness of specific RNA-mediated interference through ingested double-stranded RNA in Caenorhabditis elegans. Genome Biol. 2 (1), (2001).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. WormBook. , 1-9 (2005).
- Kennedy, S., Wang, D., Ruvkun, G. A conserved siRNA-degrading RNase negatively regulates RNA interference in C. elegans. Nature. 427 (6975), 645-649 (2004).
- Wang, D., et al. Somatic misexpression of germline P granules and enhanced RNA interference in retinoblastoma pathway mutants. Nature. 436 (7050), 593-597 (2005).
- Lackner, M. R., Nurrish, S. J., Kaplan, J. M. Facilitation of synaptic transmission by EGL-30 Gqalpha and EGL-8 PLCbeta: DAG binding to UNC-13 is required to stimulate acetylcholine release. Neuron. 24 (2), 335-346 (1999).
- Bastiani, C. A., Gharib, S., Simon, M. I., Sternberg, P. W. Caenorhabditis elegans Galphaq regulates egg-laying behavior via a PLCbeta-independent and serotonin-dependent signaling pathway and likely functions both in the nervous system and in muscle. Genetics. 165 (4), 1805-1822 (2003).
- Lickteig, K. M., et al. Regulation of neurotransmitter vesicles by the homeodomain protein UNC-4 and its transcriptional corepressor UNC-37/groucho in Caenorhabditis elegans cholinergic motor neurons. J. Neurosci. 21 (6), 2001-2014 (2001).
- Terami, H., et al. Genomic organization, expression, and analysis of the troponin C gene pat-10 of Caenorhabditis elegans. J Cell Biol. 146 (1), 193-202 (1999).
- Novelli, J., Page, A. P., Hodgkin, J. The C terminus of collagen SQT-3 has complex and essential functions in nematode collagen assembly. Genetics. 172 (4), 2253-2267 (2006).
- Brundage, L., et al. Mutations in a C. elegans Gqalpha gene disrupt movement, egg laying, and viability. Neuron. 16 (5), 999-1009 (1996).
- Gönczy, P., et al. Functional genomic analysis of cell division in C. elegans using RNAi of genes on chromosome III. Nature. 408 (6810), 331-336 (2000).
- Miller, D. M., et al. elegans unc-4 gene encodes a homeodomain protein that determines the pattern of synaptic input to specific motor neurons. Nature. 355, 841-845 (1992).
- White, J. G., Southgate, E., Thomson, J. N. Mutations in the Caenorhabditis elegans unc-4 gene alter the synaptic input to ventral cord motor neurons. Nature. 355, 838-841 (1992).
- Johnson, N. M., Behm, C. A., Trowell, S. C. Heritable and inducible gene knockdown in C. elegans using Wormgate and the ORFeome. Gene. 359, 26-34 (2005).
- Wani, K. A., et al. D1 dopamine receptor signaling is modulated by the R7 RGS protein EAT-16 and the R7 binding protein RSBP-1 in Caenoerhabditis elegans motor neurons. PLoS One. 7 (5), e37831(2012).
- Beifuss, K. K., Gumienny, T. L. RNAi screening to identify postembryonic phenotypes in C. elegans. J. Vis. Exp. (60), e3442(2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
