本文描述了对新生大鼠幼崽进行触觉刺激以及随后进行高尔基-考克斯染色以观察神经元形态的实验步骤。触觉刺激是一种在围产期施加的积极刺激,通过使用家用除尘刷轻柔刷拭幼崽来实现。高尔基-考克斯染色是一种可靠的技术,能够实现完整神经元的可视化。
本文内容
摘要
摘要
为了产生持久的行为改变,经验必须引起神经元形态和突触连接的稳定变化。触觉刺激是一种积极的早期经验,可模拟大鼠中母体的舔舐和理毛行为。通过使用家用除尘掸等易于获取的材料,可方便且经济地对幼鼠实施这种积极经验干预。采用交叉哺育设计,在围产期内,每天三次、每次15分钟,对幼鼠进行轻柔抚摸或保持不干扰。为测量与此积极早期经验相关的神经可塑性变化,采用高尔基-考克斯(Golgi-Cox)脑组织染色法。由于高尔基-考克斯浸染仅标记少数离散的神经元而非全部细胞,因此对啮齿类脑组织进行高尔基-考克斯染色可实现完整神经元结构的可视化,包括胞体、树突、轴突以及树突棘。该染色过程需持续数天,要求研究人员高度关注操作细节。然而,一旦染色完成,整个脑组织即已被充分浸染,并可无限期保存以供后续分析。因此,高尔基-考克斯染色是研究经验依赖性可塑性的宝贵工具。
引言
尽管已有多种报道和使用的技术用于研究早期负面经历对大脑发育的影响,例如围产期应激1,2、感觉剥夺3和药物毒性4,但用于研究此阶段积极经历影响的方法却极为有限。除环境富集外,触觉刺激是少数几种已被证实具有促进大脑发育作用的干预手段之一5。触觉刺激是一种作用于皮肤的感觉刺激方法,模拟母鼠舔舐和理毛的行为。其被广泛视为一种积极干预手段,源于研究表明触觉刺激可促进早产儿和新生大鼠的发育成熟6。此外,Meaney 实验室的研究7已证实,母鼠更高的舔舐和理毛频率与子代更积极的发育结果相关。由于这些积极效应,触觉刺激迅速发展为一种补救性策略,旨在减轻焦虑8、改善脑损伤相关的预后9-11,以及减弱药物致敏性12。因此,触觉刺激是一种促进积极早期经历的宝贵技术,已被证实能够显著重塑发育中大脑的神经元形态和突触连接。
为了观察和量化神经元形态的变化,必须对完整的神经元进行可视化。Golgi-Cox 染色法是对 Camillo Golgi 于19世纪末发表的技术所作的改进,可对少量完整的神经元进行清晰的染色13。尽管该方法似乎随机染色神经元,且可重复性常被视为主要缺陷,但其较低的浸渍率使得整个神经元结构(包括胞体、树突、树突棘和轴突)均能被清晰观察。同样,使用 Golgi 溶液浸渍特定脑组织所需的时间也常被认为是该方法的不足之处。然而,一旦染色完成,组织可被无限期保存,且从脑组织灌注到在显微镜下观察神经元的全过程可在21天内完成,因此该耗时在实际应用中是合理的。此外,通过对实验方案进行少量修改,Golgi-Cox 染色法可有效用于各年龄段啮齿类动物脑组织的浸渍。由于结构水平的变化已被证实与行为和心理功能的持久性改变相关,Golgi-Cox 染色技术为研究人员提供了一种测量神经可塑性的宝贵工具。
方案
所有实验均按照加拿大动物护理委员会的规定进行,并经莱斯布里奇大学动物护理委员会批准。
1. 繁殖与触觉刺激
- 从常见的动物供应商订购怀孕大鼠,或使用标准的实验室繁殖程序在本单位内自行繁殖幼鼠。
- 将所有动物饲养在温度受控的繁殖室(21 °C)中,保持12:12小时明暗循环,并自由提供食物和饮水 ad libitum。
- 幼鼠出生后,将雌性大鼠与其后代单独饲养。
- 为避免出生后立即操作带来的额外应激,从出生后第3天(P3)开始对幼鼠进行触觉刺激。
- 触觉刺激应在P3至P21期间每天进行三次(上午9:00、下午1:00和下午4:00),并在P21时将幼鼠断奶并与其母鼠分离。
- 若采用交叉哺育设计,每窝中一半的幼鼠接受触觉刺激,另一半作为对照组。将同等数量的雄性和雌性幼鼠随机分配至各组。为区分接受触觉刺激的幼鼠与对照组幼鼠,可用永久性记号笔在其中一组幼鼠的后肢和尾部做标记,标记需每隔一天重新涂抹一次。
触觉刺激
- 将母鼠从其饲养笼中移出,并放入一个带有食物和水的临时笼子中。将母鼠和临时笼子保留在繁殖/饲养室内。
- 在每天上午触觉刺激前(9:00)称量幼鼠的总体重。每次实验时,将幼鼠从其家笼转移至另一个独立的测试房间进行触觉刺激。将家笼放置在设定为 24 °C 的加热垫上。
- 使用一块硬板将家笼分为两半。将接受触觉刺激的幼鼠放在其中一半,对照组幼鼠放在另一半。设置计时器为 15 分钟。
- 使用柔软的羽毛状刷子,同时刷拭触觉刺激组的所有幼鼠,持续 15 分钟。幼龄大鼠(约 P3–P12)通常会聚集在一起,并进入深度睡眠状态,因此可方便地同时刺激所有幼鼠。随着幼鼠年龄增长,它们变得更加活跃,在刺激过程中部分幼鼠会走动或探索周围环境。实验人员应持续将走散的幼鼠重新归入群体,以确保每只幼鼠接受均等的刺激。
- 15 分钟刺激结束后,将幼鼠运回繁殖室,并将母鼠放回家笼中。
- 每天重复此过程三次,持续 19 天的触觉刺激。在 P21 完成最后一次触觉刺激后,应将幼鼠断奶。断奶后的幼鼠应按性别分组,每笼饲养 5 或 6 只同性别断奶幼鼠。
- 若大鼠不进行其他额外测试,则在正常光暗循环条件下自由摄食饮水(ad libitum),除常规笼具清洁和必要操作外,应保持不受干扰,直至约 100 日龄。若需进行其他实验处理,动物应按照相应实验室方案进行处理或测试。
2. 处死动物与高尔基-考克斯染色
- 大约在P100时,通过腹腔注射给予大鼠过量戊巴比妥钠使其安乐死,并经心脏灌注约100 ml的0.9%生理盐水。
- 灌注完成后取出大脑。将大脑从颅骨中取出,小心剪断下方的视神经,尽量保持小脑完整;研究者可根据需要决定保留或切除嗅球。将取出的大脑置于不透光的Nalgene瓶中,加入20 ml Golgi-Cox溶液14。
- 将大脑在Golgi-Cox溶液中保存14天。14天后,更换为30%蔗糖溶液。在切片前,将大脑在蔗糖溶液中保存2–5天。
注意:如果在脑组织转移至蔗糖溶液后14天内无法进行切片,则研究人员需要用新的30%蔗糖溶液替换原有蔗糖溶液。研究人员可每两周更换一次蔗糖溶液,持续4个月,对染色结果无不良影响。
- 为了切片脑组织,应先将脑组织吸干,并用氰基丙烯酸酯胶将其固定在切片台上。为防止撕裂或切片不均匀,研究人员必须谨慎操作,确保整个脑组织牢固地固定在切片台上。
- 振动切片机的储液槽必须加入6%蔗糖溶液,液面需覆盖切片刀刃。将振动切片机的切速和振幅均设置为5(即两个参数刻度的中间值)。将脑组织切成200 μm厚的切片,并将切片置于涂有2%明胶的显微镜载玻片上。在切片过程中务必保持切片湿润。
- 当所有目标切片收集完毕后,使用湿润的吸水纸轻轻按压载玻片,使切片紧贴玻片表面。将载玻片放入玻片架中,并置于湿化室中保存,直至准备染色。切片应在湿化室中至少放置12小时,但不得超过4天。在此期间需保持载玻片湿润,切忌干燥。
- 在开始染色前,应预先准备好染色流程。标记十二个玻璃染色缸(10.7 × 8.5 × 6.8 cm),并按以下顺序进行处理:
- 蒸馏水 — 1分钟
- 氢氧化铵 — 30分钟(避光)
- 蒸馏水 — 1分钟
- Kodak胶片定影液 — 30分钟(避光)
- 蒸馏水 — 1分钟
- 50%乙醇 — 1分钟
- 70%乙醇 — 1分钟
- 95%乙醇 — 1分钟
- 100%乙醇 — 5分钟
- 100%乙醇 — 5分钟
- 溶液(1/3氯仿、1/3 HemoDe、1/3 100%乙醇)— 15分钟
- HemoDe — 15分钟
* 可使用二甲苯替代 HemoDe。为确保染色质量的一致性,每个载玻片架处理时均应使用新鲜配制的溶液。
- 最后一次在HemoDe中浸没15分钟后,用Permount封片。
- 让载玻片自然风干,然后在显微镜下观察。
结果
如果正确执行此染色步骤,可获得一致且均匀的树突和树突棘染色结果。染色效果示例如图1所示,为高尔基-考克斯神经元染色的典型图像。该方法产生的染色效果可与新近开发的体外方法相媲美,并可能实现对组织包埋后仍可完整观察的树突区域的可视化。研究发现,基于振动切片机的高尔基-考克斯染色技术,相比采用火棉胶包埋或冷冻切片机制备的组织切片染色,能够实现对末端分支和锥体神经元更广泛的染色15。此外,由于该染色方法可对整个脑组织进行浸渍染色,所有切片均可立即或在未来随时进行分析。在构建原始假设时,形态学改变的具体位置并不总是明确,因此该方法允许对其他脑区进行探索性分析,并避免丢弃未来可能具有研究价值的组织样本。
该染色方法可用于对任何年龄的大鼠脑组织(P0至老年)进行可靠的染色。然而,在染色幼鼠脑组织(<1克)时,脑组织在高尔基-考克斯溶液中的浸泡时间应为6天,而非成年脑组织推荐的14天;其余所有步骤均保持不变。在进行高尔基-考克斯染色过程中可能遇到的主要困难是难以获得脑中央区域(包括丘脑)的高质量染色效果。由于整个脑组织是同时被浸渍的,中央区域可能无法获得理想的染色剂浓度。尽管存在这一局限性,高尔基-考克斯技术仍能对海马体和纹状体等皮层下区域实现极佳的染色效果。该方法的另一项局限性源于灌流过程中未能完全清除脑组织中的血液。残留血液可能在脑组织中产生伪影,从而影响神经元的拍照和追踪。
高尔基-考克斯染色技术可对树突形态和神经解剖结构提供可靠的评估,广泛适用于旨在研究神经元水平变化的各类研究。在考察出生后早期触觉刺激对前额叶皮层神经元结构的影响时,高尔基-考克斯染色显示树突复杂性显著增加。通过比较对照组大鼠与接受触觉刺激的大鼠的锥体神经元棘密度,可直观展示与早期触觉刺激相关的解剖学变化(参见 图1此外,还可计算并进行统计分析树突分支、树突长度和树突棘密度等参数,以获得可在不同动物间比较的连续数据。为获得可靠结果,每组处理至少应分析三只动物,且每个脑区在每侧半球应随机选取约五个神经元进行分析。 图2 展示树突复杂性(棘突/μm x μm 接受触觉刺激与未接受触觉刺激动物的树突长度)相比。在来自内侧前额叶皮层(Cg3)神经元的顶树突和基底树突区域中,触觉刺激均导致神经元参数的增加。
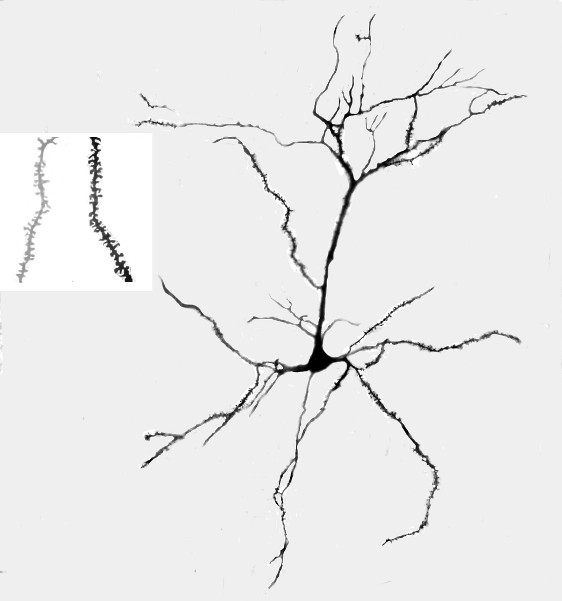
图1. A. 大鼠发育期间接受触觉刺激后,Cg3 区第三层经 Golgi-Cox 染色的锥体神经元代表性显微图像。B. Cg3 区基底树突末梢上树突棘的代表性放大图像(1,000X);左侧较亮图像来自对照组大鼠,右侧较暗图像来自接受触觉刺激的大鼠。
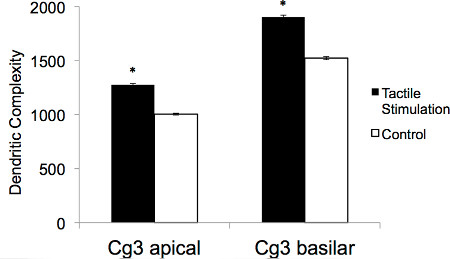
图 2. 成年大鼠Cg3区域神经元平均锥体和基底树突复杂性(棘突/μm × μm)的示意图,这些大鼠在发育期间曾接受或未接受触觉刺激(*p <0.01)。
讨论
由于发育中的大脑具有明显的可塑性,因此必须全面审查涉及早期经验的实验操作,并尽可能控制所有干扰变量。为此,在触觉刺激过程中采用交叉哺育设计,以确保幼鼠在其他所有发育领域中接受相似的经历。此外,还应从多个窝仔中选取多个幼鼠进行分析,以避免结果受到单一个体或单个窝仔偏差的影响。
人们认为,触觉刺激可模拟母体自然发生的舔舐和理毛行为,而这种行为被认为对子代的发育有益。尽管先前的研究强调出生后第一周(P0-P7)是舔舐和理毛行为的关键时期16,但在持续18天触觉刺激后观察到的巨大变化幅度表明,尽管存在敏感期,但更长时间的刺激可能效果更佳。还需要注意的是,在本实验范式中接受触觉刺激的幼鼠同时也接受了母鼠的舔舐和理毛,因此触觉刺激是在母体正常刺激基础上的额外干预。最后,还必须意识到不同脑区可能存在差异性变化。尽管发育期间的触觉刺激增加了前额叶皮层的树突复杂性,但这并不能保证所有脑区都会出现此类结构改变。其他脑区(如顶叶皮层)的神经元形态可能对相同经验产生截然不同的反应。然而,由于触觉刺激操作简便,且对子代和母鼠均无风险,因此有望成为许多旨在改善发育结局的研究中的重要工具。
关于脑组织的高尔基-考克斯染色,成功可视化神经元细胞的关键步骤如下:1)必须使用生理盐水充分灌注脑组织。脑组织灌注不当或不充分会导致血管伪影,使得在错综复杂的血管网络中难以清晰观察神经元细胞,同时也会影响染色神经元的拍照效果。2)灌注后的脑组织应置于避光条件下的高尔基-考克斯溶液和蔗糖溶液中保存。将脑组织避光保存可减少组织的背景染色,从而提高成功观察高质量神经元细胞的可能性。3)脑组织在高尔基-考克斯溶液中保存14天后,需转移至30%蔗糖溶液中。当组织在30%蔗糖溶液中浸泡2至5天后,脑组织会变得更加柔韧,从而在切片过程中防止切片碎裂或撕裂。需要注意的是,应避免脑组织在蔗糖溶液中存放过长时间(除非持续用新鲜溶液更换蔗糖溶液),因为长期存放于蔗糖溶液中会降低染色质量。4)最后,载玻片染色并加盖盖玻片后,应给予足够时间使其充分干燥,再进行显微镜观察。若载玻片未充分晾干,组织可能会变暗,从而影响皮层神经元的成功观察。
普遍认为,心理功能和行为反应在经历作用下所产生的稳定变化,是由神经元形态和突触连接的重组所介导的 17由于这些结构变化为经验依赖性可塑性提供了可测量的依据,因此采用可靠的染色方法至关重要。本基于振动切片机的高尔基-考克斯染色法能够可靠地显示细小分支和树突棘,而这些结构在其他方案(如赛璐oid包埋法)中可能无法清晰显现。高尔基-考克斯染色法的独特之处在于其仅对少量神经元成分(1–10%)进行染色,从而允许对单个神经元进行长距离追踪。尽管仅有少数神经元被染色剂浸润,但显影的细胞仍完整保留其所有结构特征,包括胞体、树突、树突棘和轴突。此外,若染色操作得当,染色后的细胞将在透明背景上清晰分明地凸显出来,因为其他皮层结构未被染色而保持透明。鉴于人们已认识到外部功能的持续性改变必然与神经系统的可塑性相关, 即 神经元具有改变其结构和连接的能力,Golgi-Cox染色法为研究人员提供了一种可靠的技术,用于观察和量化这种可塑性。
披露
作者声明不存在任何竞争性财务利益。
致谢
本研究由NSERC向BK和RG提供的资助支持。作者还要感谢Kehe Xie和Russell Hosain在高尔基-考克斯染色技术方面的专业帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 重铬酸钾 | Fisher | P188 | |
| 氯化汞 | Fisher | M1561 | |
| 铬酸钾 | Fisher | P220 | |
| 氢氧化铵 | Fisher | A669-500 | |
| Kodak 快速定影液 | Vistek | 柯达 146 4016 | |
| EtOH-95 &和无水 | 商业酒精 | 无货号 | 所有其他乙醇均为稀释液 |
| Swiffers——柔软羽毛状除尘掸 | Safeway | 在大多数杂货店均可找到 | |
| 蔗糖 | Sigma-Aldrich | S-9378 | |
| HemoDe | 电子显微镜科学公司 | 23410 | |
| 佩尔蒙特 | Fisher | Sp15 | |
| 载玻片 | VWR | 160004-365 | |
| 盖玻片 | VWR | 062011-9 |
参考文献
- Mychasiuk, R., Ilnystkyy, S., Kovalchuk, O., Kolb, B., Gibb, R. Intensity matters: Brain, behaviour, and the epigenome of prenatally stressed rats. Neuroscience. 180, 105-110 (2011).
- Muhammad, A., Carroll, C., Kolb, B. Stress during development alters dendritic morphology in the nucleus accumbens and prefrontal cortex. Neuroscience. 216, 103-109 (2012).
- Wiesel, T., Hubel, D. Effects of visual deprivation on morphology and physiology of cells in the cat's lateral geniculate body. Journal of Neurophysiology. 26 (978), 6(1963).
- Dwyer, J., McQuown, S., Leslie, F. The dynamic effects of nicotine on the developing brain. Pharmacology & Therapeutics. 122, 125-139 (2009).
- Richards, S., Mychasiuk, R., Kolb, B., Gibb, R. Tactile stimulation during development alters behaviour and neuroanatomical organization of normal rats. Behavioural Brain Research. 231, 86-91 (2012).
- Schanberg, S., Field, T. Sensory deprivation stress and supplemental stimulation in the rat pup and preterm neonate. Child Development. 58 (6), 1431-1447 (1987).
- Caldji, C., Tannenbaum, J., Sharma, S., Francis, D., Plotsky, P., Meaney, M. Maternal care during infancy regulates the development of neural systems mediating the expression of fearfulness in the rat. Proceedings of the National Academy of Sciences. 95 (9), 5335-5340 (1998).
- Imanaka, A., Morinobu, S., Toki, S., Yamamoto, S., Matsuki, A., Kozuru, T., et al. Neonatal tactile stimulation reverses the effect of neonatal isolation on open-field and anxiety-like behavior, and pain sensitivity in male and female adult Sprague-Dawley rats. Behavioural Brain Research. 186, 91-97 (2008).
- Gibb, R., Gonzalez, C., Wegenast, W., Kolb, B. Tactile stimulation promotes motor recovery following cortical injury in adult rats. Behavioural Brain Research. 214 (1), 102-107 (2010).
- Rodrigues, A., Artneni, N., Abel, C., Zylbersztejn, D., Chazan, R., Viola, G., et al. Tactile stimulation and maternal separation prevent hippocampal damage in rats submitted to neonatal hypoxia-ischemia. Brain Research. 1002, 94-99 (2004).
- Kolb, B., Gibb, R. Tactile stimulation after frontal or parietal cortical injury in infant rats facilitates functional recovery and produces synaptic changes in adjacent cortex. Behavioural Brain Research. 214, 115-120 (2010).
- Muhammad, A., Hossain, S., Pellis, S., Kolb, B. Tactile stimulation during development attenuates amphetamine sensitization and structurally reorganizes prefrontal cortex and striatum in a sex-dependent manner. Behavioral Neuroscience. 125 (2), 161-174 (2011).
- Golgi, C. Sulla struttura della sostanza grigia dell cervello. Gaz Med Lomb. 33, 244-246 Forthcoming.
- Glaser, E. M., van der Loos, H. Analysis of thick brain sections by obverse-reverse computer microscopy: Application of a new, high clarity Golgi-Nissl stain. Journal of Neuroscience Methods. 4, 117-125 (1981).
- Gibb, R., Kolb, B. A method for vibratome sectioning of Golgi-Cox stained whole rat brain. Journal of Neuroscience Methods. 79, 1-4 (1998).
- Meaney, M. Maternal care, gene expression, and the transmission of individual differences in stress reactivity across generations. Annual Review of Neuroscience. 24, 1161-1192 (2001).
- Robinson, T. E., Kolb, B. Structural plasticity associated with exposure to drugs of abuse. Neuropharmacology. 47, Suppl 1. 33-46 (2004).
重印与许可
