显微注射是一种常用技术,用于将DNA构建体、mRNA、吗啉代反义寡核苷酸或其他处理物质导入多种物种的卵细胞、胚胎和细胞中。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
向细胞和胚胎中进行显微注射是一种常用的技术,用于研究多种生物学过程。该方法将少量处理溶液装入显微注射针中,通过物理方式直接注射到固定化的单个细胞或胚胎内。尽管该操作需要经过初步培训才能实现高通量递送,但显微注射具有递送效率高、重复性好等优点,可稳定地将多种处理溶液(包括复杂的样品混合物)递送至细胞、卵子或胚胎中。显微注射的应用包括递送DNA构建体、mRNA、重组蛋白,以及实现基因功能获得或功能缺失的试剂。在注射溶液中加入荧光或比色染料,可即时可视化递送效果,并作为准确归一化递送溶液体积的工具。本方法可在10至15分钟内完成100至400个海胆合子的显微注射。
引言
高效且可重复的处理递送是研究人员面临的主要方法学挑战之一。目前已建立多种方法,用于将处理溶液瞬时递送至卵子、胚胎和细胞中。这些方法包括电穿孔(利用短暂的电脉冲在细胞膜上形成瞬时孔隙)1,2、脂质体转染(通过含处理剂的脂质体与细胞膜融合实现递送)1、微粒轰击法1(将DNA沉淀于微米级金属颗粒表面,随后以高速穿透细胞),以及转导(利用病毒作为外源基因的递送载体)。目前,显微注射是唯一能够以100%效率递送任意溶液且所需试剂最少的方法。此外,单次注射溶液可包含多种处理剂组成的复杂混合物。该技术已成功应用于多种物种的卵子和胚胎显微注射,如海胆3,4、斑马鱼5、小鼠6、青蛙7和牛8,以及组织培养中的单个细胞9。在发育后期阶段对单个卵裂球进行注射也已有报道10-12。
目前的显微注射方法基于Hiramoto最初描述的压力注射法10,但该技术已取得显著优化进展。其他文献中已详细描述了优秀的显微注射技术11,本文则介绍一种目前用于显微注射紫海胆(Strongylocentrotus purpuratus)新受精卵的具体方法。一个多世纪以来,海胆一直是一种重要的实验模型15,16。在进化上,海胆与脊索动物(包括人类)关系密切,对其基因组的分析表明,它们拥有与人类相同的主要基因家族17。海胆可产生大量同步发育且透明的胚胎,易于进行实验操作。利用海胆作为模式生物,科研界已在受精过程18-21、细胞生物学过程22-24以及基因调控网络(GRNs)25-28的研究方面取得了重要进展。
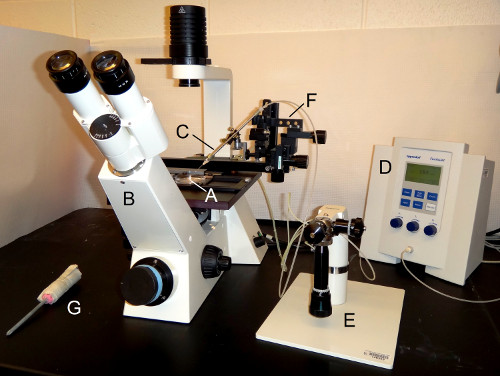
对海胆合子进行显微注射需要多个步骤。首先,在注射前需将卵细胞固定(如下所述)。显微注射培养皿经鱼精蛋白硫酸盐(protamine sulfate, PS)包被处理,形成带正电荷的表面,以便带负电荷的卵细胞能够附着3。通过将卵细胞在酸性海水(pH 5.15)中孵育10分钟以去除胶状层,随后用天然海水或人工海水(pH 8.0)清洗两次。去胶后的卵细胞需在含1 mM 3-氨基三唑(3-aminotriazole, 3-AT)的PS包被培养皿中小心排列成一条直线,3-AT的作用是抑制因受精而从卵细胞皮层颗粒分泌的卵过氧化物酶活性29。此步骤对于防止受精膜硬化、便于显微注射针头穿入至关重要。作为1 mM 3-AT的替代方案,也可使用10 mM对氨基苯甲酸(paraminobenzoic acid, PABA)。将注射溶液使用专用的微量上样吸头装入显微注射针,并安装至连接于显微操作仪和压力装置的针夹上(图1)。每根注射针可在不同实验日多次用于对多个合子进行显微注射。显微注射操作可持续进行10至15分钟,直至合子开始硬化。随后用海水清洗合子,并在15 °C条件下培养。当胚胎发育至孵化囊胚阶段时,会释放孵化酶,降解受精膜的组分30,从而自然脱离PS包被的培养皿。如有需要,可通过口吸管或巴斯德吸管向胚胎轻轻吹入海水,温和地将胚胎从培养皿上分离。该方法可在单个培养皿上高效且可靠地完成对100至400个新受精卵的显微注射,为后续分析提供了高通量的技术手段。
访问受限。请登录或开始试用以查看此内容。
方案
1. 鱼精蛋白硫酸盐(PS)包被培养皿的制备
- 将0.5 g硫酸鱼精蛋白(PS)加入50 ml去离子蒸馏水(ddH₂O)中,配制1%的硫酸鱼精蛋白溶液。2在50 ml锥形管中加入O)。在室温下使用台式摇床高速振荡1-2小时,确保PS完全溶解。该溶液可在4 °C保存至少3个月(每次使用前需确保凝胶状沉淀物完全溶解)。3.
- 取一套直径60 mm、高度15 mm的聚苯乙烯培养皿,将皿盖和皿底分别平放在实验台上。
- 在每个培养皿中加入1% PS溶液(皿底和皿盖均可使用),用量以覆盖表面为宜,静置至少2分钟。剩余的PS溶液在4 °C保存条件下可在3个月内重复使用多次。
- 将经 PS 处理的培养皿放入盛有蒸馏水(dH₂O)的烧杯中2O)。将烧杯置于流动的 dH₂O 下冲洗2至少静置 10 分钟。
- PS包被的培养皿可立即使用,或晾干后储存。应加盖以防止灰尘积聚。可在室温下保存1个月。3.
2. 获取海胆配子并将卵固定在PS包被的培养皿上以进行显微注射
- 通过轻轻摇晃海胆或向其体腔内注射不超过 1 ml 的 0.5 % KCl 溶液,诱导平滑肌收缩以排放配子3 (图 2)。
- 若动物为雄性(表现为白色精子),将精子直接从个体表面干燥收集至 1.5 ml 离心管中。干燥的精子可在 4 °C 下保存一周,且生物学功能无明显损失。
- 若动物为雌性(由于卵黄含量呈现黄色),将生殖孔浸入盛满海水的烧杯中以收集其配子。卵子将从生殖孔释放,并依靠重力沉降到底部。
- 使用 80 μm 尼龙滤网过滤卵子,去除如动物棘刺等杂质。若在排卵后 5–7 小时内使用卵子,可获得最佳实验结果。
- 去除卵子胶状外膜:
- 为约 1 ml 卵子准备 100 ml 酸化海水。使用 0.5 M 柠檬酸将海水 pH 从 8.0 调节至 5.1–5.2。pH 过低会降低受精率,而 pH 过高则会导致卵子无法附着于聚苯乙烯(PS)包被的培养板上。
- 将卵子(不超过 1 ml)加入酸化海水中,并在冰上静置 10 分钟使其沉降。或者,在处理过程中可轻轻旋转混匀卵子以促进胶膜去除。采用此方法可在 3–4 分钟内有效去除 S. purpuratus 卵子的胶膜。
- 小心倾去酸化海水,加入新鲜海水,并再次将卵子置于冰上静置沉降。去胶膜后的卵子可在冰上保存长达 6 小时,且不会影响后续受精。
3. 排列卵子
- 配制 3-氨基-1,2,4-三唑(3-AT,分子量 = 84.08)的 1 M 储存液:将 0.84 g 3-AT 溶解于 10 ml 去离子水(ddH2O)中。该溶液可在 4 °C 下保存最多 6 个月。
- 通过将 50 μl 的 1 M 储存液加入 50 ml 预冷的海水,配制 1 mM 的 3-AT 工作液。将溶液置于冰上保存。
- 准备口吸管(图 3),用于轻柔操作卵子:
- 使用玻璃微量移液管(100 x 外径 1.09 mm)手工拉制移液管尖端。用双手握住移液管,在明火上加热。当玻璃开始熔化时,小心地朝相反方向拉伸移液管两端。
- 将一根拉好的移液管连接至一段塑料管(内径 1.14 mm),并用 Parafilm 密封。塑料管长度应约为 50–70 cm。
- 在与玻璃管相对的塑料管末端插入一个无菌过滤的 P20 或 P200 吸头,作为口含部分。
- 用剪刀剪切玻璃微量移液管的末端,以调节尖端直径。最佳直径略大于卵子直径(80 μm)。
- 向每个聚苯乙烯(PS)包被的培养皿(底部或盖子)中加入 4 ml 的 1 mM 3-AT 海水溶液。
- 取出口吸管,将 P20/P200 吸头放入口中,并用牙齿固定。吸取卵子前,先吸取少量海水。在吸取卵子之前保持一段液柱,有助于最大程度地控制口吸管操作技术。
- 将微量移液管尖端靠近卵子,轻柔地吸取数百个卵子进入移液管中,并将卵子限制在玻璃微量移液管内。
- 在培养皿中,沿直线排列去胶膜卵子:一边缓慢吹出卵子,一边沿直线移动移液管尖端。应在注射前立即排列卵子,因为长时间暴露于 3-AT 海水中可能导致受精问题3。此外,阳离子粘附剂(如 PS)可能对卵子具有毒性,尤其在已去除受精膜的情况下,不建议长时间将胚胎暴露于此类试剂中。
- 使用玻璃移液管在排列卵子的附近划一道划痕。该划痕可用于折断注射针尖,以按需调节溶液流出量。或者,也可在向培养皿中加入 3-AT 海水前预先制作划痕。
4. 海胆受精卵的显微注射
- 打开显微注射工作站。此处我们描述的是使用 FemtoJet 注射系统。
- 使用拉针仪制备注射毛细管。一根理想的针尖示例如图4所示。注意:对于 RNA 注射,注射毛细管应预先处理以避免 RNase 污染31:
- 将注射毛细管放入 50 ml 锥形管中,并加入 50 ml 过滤的甲醇/盐酸混合液(9:1)。充分震荡后,静置过夜,但不超过 10 小时。
- 倒去甲醇/盐酸溶液,并用过滤的甲醇在同一管中冲洗毛细管两次。
- 尽可能排尽甲醇,并将毛细管在真空冷冻干燥机中干燥过夜,以确保甲醇完全去除。
- 小心地将毛细管安装到上样夹持器上,并使用微量移液吸头加入<0.5 μl 样品溶液。样品溶液通常含有 20% 甘油,具体比例取决于所注射的材料3。
- 将装有成列卵子的培养皿放置在显微镜载物台上(通过目镜观察时,卵子应呈垂直排列),并对焦于卵子。
- 小心地将已上样的毛细管安装至显微注射夹持器上,并调整针的位置,使针尖在视野中央清晰对焦。
- 按下按钮施加最大压力以清洗针头,溶液应从针尖流出。必要时调节压力:注射压力应在 90–360 hPa 范围内,补偿压力约为注射压力的 1/3。
- 通过向未受精卵中注射来调节溶液流速。使用操纵杆显微操作器,将注射针尖引导至未受精卵。为便于针头进入,可用螺丝刀等硬物轻轻敲击载物台,使针尖产生轻微颤动。应在卵内观察到注射液团的形成(图5)。
- 若未观察到注射液团,可将针尖略为抬高至卵子上方,找到培养皿上的划痕标记,并将其调整至视野中央。轻触针尖至划痕处,以打断注射针尖。调节注射压力和补偿压力,确保注射液团直径不超过卵子直径的 1/5(1–2 pm)。
- 完成注射液团校准后,通过加入稀释精子(1:1,000)或 1–2 μl 精子进行卵子受精。轻轻混匀,避免打乱成列的卵子。
- 一旦观察到受精膜形成,立即开始注射(图5)。使用载物台控制器沿卵列移动,利用操纵杆显微操作器控制针头穿刺尽可能多的受精卵进行注射。
- 10–15 分钟后,新受精的卵子将变硬,无法继续注射。从载物台上取下培养皿,并使用塑料巴氏吸管在 3-AT 海水中小心吸除精子。
- 切勿让受精卵干燥。迅速加入新鲜预冷的海水以覆盖培养皿。将胚胎在 15 °C 下孵育。
访问受限。请登录或开始试用以查看此内容。
结果
GFP 和 mCherry 报告基因载体 体外 转录后显微注射到新受精的卵中。胚胎在 15 °C 24小时(直至囊胚阶段),并使用Zeiss Observer Z1显微镜进行成像。报告基因构建体的注射未导致任何发育缺陷。图6)。为了定量分析荧光信号,以低倍率(100X)进行图像采集,以最大程度地捕获荧光像素(图6D-F). 使用 Axiovision 4.8.2.0 对荧光信号进行定量分析。在 100–200 个囊胚的群体中,荧光信号强度的标准误差未超过 1.5%(数据未显示)。
访问受限。请登录或开始试用以查看此内容。
讨论
显微注射是一种强大的技术,可用于将多种物质(如DNA、mRNA、重组蛋白、基因功能缺失和功能获得试剂、染料及其组合)递送至多种生物的卵细胞、胚胎和细胞中1-7。然而,在设计显微注射实验时,应考虑若干重要因素。
必须充分考虑所递送处理物的溶解度以及注射体积。如果显微注射溶液容易形成即使轻微的沉淀,也会导致显微注射针头堵塞。通常建议在将溶液装入针头前,对其进行超过15分钟的离心处理,以确保去除溶液中任何可能的沉淀物3。另一种方法是将溶液通过Millipore离心柱过滤。如果无法避免堵塞,可通过再次轻轻折断针尖来尝试疏通针头,但若针尖过宽,则难以控制溶液的流出量。注射过量溶液可能对胚胎产生毒性;此外,过宽的针尖会导致注入各个胚胎的溶液体积差异增大。向新受精卵中注射的体积也必须进行适当调整。可通过在不同拉制参数下制备针头,并将溶液注入油中形成液滴,从而校准注射体积。该方法可通过测量液滴的直径(进而计算体积)实现定量32。我们发现,在新受精卵中注射的溶液量不应超过合子直径的1/5,如图5所示。...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明 无竞争性财务利益或其他利益冲突。
致谢
感谢 Santiago Suarez 对手稿的审阅,以及 Betty Cowgill 在摄影方面的协助。同时感谢匿名审稿人提出的宝贵意见。本工作由特拉华大学研究基金资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 玻璃巴斯德吸管 | VWR | 14673-043 | |
| 倒置显微镜 Axiovert 40 °C | Zeiss | 4109431007990000 | 注射显微镜 |
| 微量加样器吸头(Microloader tips) | Eppendorf | 5242 956.003 | 用于加载注射溶液 |
| 尼龙滤网 80 μm | Amazon.com | 03-80-37 | 过滤卵以去除碎片 |
| P20 或 P200 气溶胶阻隔移液器吸头 | Fisher Scientific | 02707432 或 02707430 | 口吸移液装置的组成部分 |
| Parafilm 封口膜 | Fisher Scientific | 13 374 12 | 口吸移液装置的组成部分 |
| 聚乙烯管 | Intramedic | PE-160 | 口吸移液装置的组成部分 |
| 硫酸鱼精蛋白 | MP Biomedicals, LLC | 194729 | 将去胶膜的卵固定在注射培养皿上 |
| 海胆 S. purpuratus | Pt. Loma 海洋无脊椎动物实验室 | N/A | |
| 海水 | 任意宠物商店 | Instant Ocean | |
| 无菌 60 mm × 15 mm 聚苯乙烯培养皿 | Fisher Scientific | 0875713A | 注射用培养皿 |
| 三轴粗调微操作仪 MMN-1 | Narishige | 9124 | 操控注射针 |
| 三轴操纵杆式油压精细微操作仪 MMO-202ND | Narishige | 9212 | 操控注射针 |
| 转移吸管 | Fisher Scientific | 13-711-9AM | |
| 垂直 玻璃微电极拉制仪 | Narishige | PC-10 | 拉制注射针 |
参考文献
- Muramatsu, T., Mizutani, Y., Ohmori, Y., Okumura, J. Comparison of three nonviral transfection methods for foreign gene expression in early chicken embryos in ovo. Biochem. Biophys.Res. Commun. 230, 376-380 (1997).
- Peng, H., Wu, Y. Y., Zhang, Y. Efficient Delivery of DNA and Morpholinos into Mouse Preimplantation Embryos by Electroporation. Plos One. 7, 13 (2012).
- Ettensohn, C. A., Wray, G. A., Wessel, G. M. eds. Development of sea urchins, ascidians, and other invertebrate deuterostomes: experimental approaches. 74, Elsevier Academic Press. (2004).
- Franks, R. R., Houghevans, B. R., Britten, R. J., Davidson, E. H. Direct introduction of cloned DNA into the sea urchin zygote nucleus, and fate of injected DNA. Development. 102, 287-299 (1988).
- Kinsey, W. H. Analysis of signaling pathways in zebrafish development by microinjection. Methods Mol. Biol. 518, 67-76 (2009).
- Kola, I., Sumarsono, S. H. Microinjection of in vitro transcribed RNA and antisense oligonucleotides in mouse oocytes and early embryos to study the gain- and loss-of-function of genes. Mol. Biotechnol. 6, 191-199 (1996).
- Mishina, T., Fuchimukai, K., Igarashi, K., Tashiro, K., Shiokawa, K. Modification of secondary head-forming activity of microinjected a dagger beta-catenin mRNA by co-injected spermine and spermidine in Xenopus early embryos. Amino Acids. 42, 791-801 (2012).
- O'Meara, C. M., et al. Gene silencing in bovine zygotes: siRNA transfection versus microinjection. Reprod. Fertil. Dev. 23, 534-543 (2011).
- Dean, D. A., Gasiorowski, J. Z. Nonviral gene delivery. Cold Spring Harb. Protoc. , (2011).
- Hiramoto, Y. Cell division without mitotic apparatus in sea urchin eggs. Exp. Cell Res. 11, 630-636 (1956).
- Wilson, L. Methods in Cell Biology. 25, Elsevier. (1982).
- Gross, J. M., McClay, D. R. The role of Brachyury (T) during gastrulation movements in the sea urchin Lytechinus variegatus. Dev. Biol. 239, 132-147 (2001).
- Yajima M, W. G. Autonomy in specification of primordial germ cells and their passive translocation in the sea urchin. Development. 139, 3786-3794 (2012).
- Duboc, V., et al. Nodal and BMP2/4 pattern the mesoderm and endoderm during development of the sea urchin embryo. Development. 137, 223-235 (2010).
- Ernst, S. G. Offerings from an Urchin. Dev. Biol. 358, 285-294 (2011).
- McClay, D. R. Evolutionary crossroads in developmental biology: sea urchins. Development. 138, 2639-2648 (2011).
- Sodergren, E., et al. Research article - The genome of the sea urchin Strongylocentrotus purpuratus. Science. 314, 941-952 (2006).
- Roux, M. M., et al. A functional genomic and proteomic perspective of sea urchin calcium signaling and egg activation. Dev. Biol. 300, 416-433 (2006).
- Turner, P. R., Sheetz, M. P., Jaffe, L. A. Fertilization increases the polyphosphoinositide content of sea urchin eggs. Nature. 310, 414-415 (1984).
- Voronina, E., Marzluff, W. F., Wessel, G. M. Cyclin B synthesis is required for sea urchin oocyte maturation. Dev. Biol. 256, 258-275 (2003).
- Wong, J. L., Wessel, G. M. Extracellular matrix modifications at fertilization: regulation of dityrosine crosslinking by transamidation. Development. 136, 1835-1847 (2009).
- Shuster, C. B., Burgess, D. R. Transitions regulating the timing of cytokinesis in embryonic cells. Curr. Biol. 12, 854-858 (2002).
- Morris, R. L., et al. Analysis of cytoskeletal and motility proteins in the sea urchin genome assembly. Dev. Biol. 300, 219-237 (2006).
- Minc, N., Burgess, D., Chang, F. Influence of Cell Geometry on Division-Plane Positioning. Cell. 144, 414-426 (2011).
- Davidson, E. H., et al. A genomic regulatory network for development. Science. 295, 1669-1678 (2002).
- Oliveri, P., Tu, Q., Davidson, E. H. Global regulatory logic for specification of an embryonic cell lineage. Proc. Natl. Acad. Sci. U.S.A. 105, 5955-5962 (2008).
- Peter, I. S., Davidson, E. H. A gene regulatory network controlling the embryonic specification of endoderm. Nature. 474, (2011).
- Nam, J. M., Dong, P., Tarpine, R., Istrail, S., Davidson, E. H. Functional cis-regulatory genomics for systems biology. Proc. Natl. Acad. Sci. U.S.A. 107, 3930-3935 (2010).
- Showman, R. M., Foerder, C. A. Removal of the fertilization membrane of sea-urchin embryos employing aminotriazole. Exp. Cell Res. 120, 253-255 (1979).
- Lepage, T., Sardet, C., Gache, C. Spatial expression of the hatching enzyme gene in the sea-urchin embryo. Dev. Biol. 150, 23-32 (1992).
- Jaffe, L. A., Terasaki, M. Quantitative microinjection of oocytes, eggs, and embryos. Development of Sea Urchins, Ascidians, and Other Invertebrate Deuterostomes: Experimental Approaches. 74, 219-242 (2004).
访问受限。请登录或开始试用以查看此内容。
重印与许可
