底板是发育中脊髓的关键结构,可向祖细胞和分化中的神经元提供可扩散的信号。本文介绍一种制备底板条件培养基的方法,将其应用于新鲜脊髓组织,并通过生物化学方法检测其对目标蛋白的影响。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在发育过程中,前体细胞和终末分裂后的神经元会接收来自邻近区域的信号,以调控其命运。底板是一群位于腹侧、排列在室管膜管周围的胶质细胞。底板表达多种关键形态发生素,参与脊髓中细胞谱系的模式形成。在发育的后期阶段,底板调控脊髓内轴突的导向,既作为屏障防止同侧轴突跨越中线,又调控联合轴突的中线穿越1。这些功能通过分泌多种导向信号分子来实现。其中一些信号分子对生长中的轴突起吸引或排斥作用,而另一些则调节导向受体及其下游信号通路,从而调节轴突对局部导向信号的敏感性2,3。本文介绍一种基于制备底板条件培养基(FPcm)的方法,可用于研究底板来源信号在多种发育背景下的特性4-6。随后,我们以轴突导向为例,说明该FPcm的应用。首先,在E12.5阶段从小鼠胚胎中分离脊髓,并将底板组织显微解剖出来,接种于血浆-凝血酶基质中培养(图1)。两天后,从E12.5胚胎中分离联合组织,经吹打解离后暴露于FPcm中。最后,对组织进行蛋白印迹(Western blot)分析,检测联合神经元的标志分子。
引言
底板是发育中脊髓的一个著名模式形成中心,在前体细胞和终末分化细胞谱系的特化以及轴突导航中发挥关键作用7,8。本文所述的FPcm制备实验方法可使研究者在多种发育过程背景下评估底板来源信号的功能特性,涵盖细胞模式形成、存活以及细胞和轴突迁移等过程。
为了说明此类FPcm的使用,可分离含有联合神经元的脊髓背侧组织,将其撕碎后用FPcm进行刺激,随后对组织进行Western印迹分析。该方法可用于研究由底板释放信号对轴突导向机制的调控作用。对新鲜撕碎组织进行处理的方法具有显著优势,即能够保持组织内细胞的微环境,因此相较于细胞和组织培养条件,该方法能以更接近生理状态的方式评估FPcm或其他类型处理的影响。
访问受限。请登录或开始试用以查看此内容。
方案
第1天
1. 从 E12.5 小鼠胚胎中分离脊髓底板(FP)
注意:整个操作过程必须在无菌条件下进行。建议在解剖罩内进行解剖操作,以避免污染。解剖罩表面应使用乙醇清洁。所有解剖器械必须灭菌并存放于无菌培养皿中。液体(培养基、解剖用培养基)必须保持密封 并置于冰浴中。每个胚胎应分别收集于独立的新鲜液滴中,这对组织保存至关重要。解剖操作使用Dumont #5镊子进行。在培养皿之间转移胚胎时,应夹住脐带或头部,避免损伤后脑。保持脊髓完整不被损伤,是成功完成解剖的关键。请预先准备好冷的磷酸盐缓冲液(PBS)、冷的含6.5%葡萄糖的Hank's平衡盐溶液(HBSS)以及室温的Neurobasal培养基。
1.1 脊髓解剖
动物处理遵循欧洲指令以及法国国家科学研究中心(Centre National de la Recherche Scientifique)的动物护理指南。安乐死方法为颈椎脱臼,即对颈部施加压力,使脊柱与脑部分离。该方法推荐用于小鼠动物模型,可快速且有效地实施。
- 在妊娠 E12.5 阶段(E0.5 指交配后第一天)处死一只怀孕小鼠。将小鼠腹侧朝上放置。
- 用 70% 乙醇浸润腹部。用 Adson 镊子夹住腹部皮肤,用手术剪剪开皮肤和腹膜层。做一个切口,并沿小鼠两侧继续剪开,以暴露腹腔。
- 小鼠两侧各有一串胚胎。用镊子夹住两个胚胎之间子宫角的组织,从外侧开始分离并取出子宫。将完整的子宫转移到盛有冰上预冷 PBS 的 100 mm 培养皿中。
- 从胚外组织中取出胚胎。用两把镊子夹住胎盘组织(深红色部分),轻轻拉扯以撕开组织,将胚胎从子宫囊中取出。
注意:为更好地保存胚胎,请逐个从子宫囊中取出胚胎。
- 后续步骤需在双目放大镜和解剖罩下进行。将一个胚胎置于一滴冰冷的 HBSS-6.5% 葡萄糖溶液中。
- 使用镊子将胚胎去头。
注意:在下颌与后脑之间进行切割,后脑的后部对后续步骤至关重要。
- 将胚胎腹面朝下放置,前端朝向实验者。
- 用一把镊子夹住胚胎的皮肤,并用另一把镊子将皮肤撕去。
注意:此步骤需重复进行,直至胚胎前部的皮肤完全去除。
- 将胚胎腹侧朝左。用一把镊子在胚胎前部“固定”住胚胎,用另一把镊子夹住皮肤并向胚胎头侧方向拉扯。此时脊髓即可暴露。
- 用镊子的一侧剪开仍包裹着脊髓的脑膜。此时脊髓已完全暴露。
- 将胚胎腹侧朝右。
- 从胚胎颈段开始,分离脊髓周围的组织。将镊子轻轻滑入脊髓下方(操作时应保持镊子闭合,以避免损伤脊髓)。镊子应在脊髓下方可见。在脊髓下方进行轻微的旋转动作,即可充分分离周围组织及背根神经节(DRG)。
注意:保留附着的周围组织会增加脊髓的重量,从而在下一步操作中增加其断裂的可能性。
- 将分离的脊髓置于一滴新鲜的冷HBSS-6.5%葡萄糖溶液中。
- 将脊髓平放,脑膜朝上,前端远离操作者。
- 用剩余的后脑组织固定脊髓一端,一手持镊子夹住组织,另一手持镊子夹住脑膜,从脊髓的头侧开始剥离脑膜。
注意:操作应缓慢且稳定,以避免脊髓断裂。振动动作有助于软脑膜的分离。
1.2 底板解剖
- 用一把镊子夹住后脑。
- FP 是组织中央透明的部分。使用手术刀切出底板。
注意:为保证两侧切割质量一致,应从头侧开始,交替切割底板的右侧和左侧。
- 将分离的FP在室温下用Neurobasal培养基保存。
2. FP 培养
注意:所有步骤均应在生物安全柜中的无菌条件下进行。使用新鲜的培养基以及 freshly thawed 的补充剂和试剂。准备无菌的玻璃盖玻片,预热 neurobasal+B27、血浆和 HBSS-凝血酶。
2.1 底板细胞培养
- 将数个无菌盖玻片放入一个 100 mm 的培养皿中,并在每个盖玻片中央滴加 20 μl 血浆。
- 将两至四个 FP 转移至每滴血浆中,然后在血浆滴旁加入 20 μl HBSS-凝血酶,轻轻混匀。将盖玻片在室温下静置至少十分钟,以使血浆充分凝固。
注意:若为完全分离,转移两个FP;若为部分分离,则转移更多。用移液枪头缓慢混匀,避免接触FP外植体。
血浆凝块会略微回缩 μm 作为凝固的标志。必须确保凝固过程不被过早中断,以避免血浆凝块脱落。
- 将每张盖玻片转移至24孔板中,并加入500 μl Neurobasal+B27培养基。 在37 °C下孵育48小时。
第3天
3. 菲氏板条件培养基(FPcm)的收集
注意:应在生物安全柜中的无菌条件下进行收集。如果上清液被污染,或观察到底板组织漂浮(表明其在培养期间可能已死亡),则不应从此孔中收集FPcm。
3.1 FPcm 的收集
- 小心收集每个孔中的培养基。
注意:请勿使用移液器吹打已聚合的血浆-凝血酶混合物或任何FP碎片。
- 将100 μl分装样品储存在-80 °C。
第4天
4. 从 E12.5 小鼠胚胎中分离脊髓联合神经元
注意:该制备过程无需在无菌条件下进行。按照上述步骤收集胚胎。准备冷的 PBS、冷的 HBSS-6.5% 葡萄糖和冷的 Neurobasal 培养基。
4.1 脊髓解剖
- 使用镊子,将胚胎去头。
注意:在下颌与后脑之间进行切割,后脑的后部对后续步骤至关重要。
- 将胚胎腹面朝下置于一滴新鲜溶液中,胚胎前端朝向操作者。
- 用一把镊子夹住胚胎的皮肤,用另一把镊子将皮肤拉开。
注意:必须重复此步骤,直至完全去除胚胎前部的皮肤。
- 将胚胎腹侧朝左。用一把镊子在胚胎前部“固定”住胚胎,用另一把镊子夹住皮肤并向胚胎头侧方向拉扯,以暴露脊髓。
- 用镊子的一侧剪开仍包裹脊髓的脑膜。此时脊髓已暴露并打开。
- 将胚胎前部朝右放置。
- 从胚胎颈侧开始,将组织从脊髓上分离。将镊子滑入脊髓下方(保持镊子闭合),确保镊子在脊髓下方可见。在脊髓下方进行轻微的旋转动作,即可分离邻近组织和背根神经节(DRG)。
- 将分离出的脊髓转移至一滴新的冷HBSS-6.5%葡萄糖溶液中。
- 将脊髓平放,脑膜朝上,前部远离操作者。
- 用一把镊子夹住残留的后脑部分“固定”脊髓,用第二把镊子夹住脑膜,从脊髓头侧开始剥离脑膜。
4.2 联合神经元的分离
- 用一把镊子夹住后脑。
- 联合神经元位于脊髓最外侧部分(背侧)。用精细的手术刀切下该外侧部分。
注意:脊髓的背侧与腹侧可通过细胞密度的差异来区分,腹侧部分更为不透明。
注意:为使两侧切割质量一致,应从头侧开始,交替切割右侧和左侧的一小段长度。
- 将解剖得到的组织置于冰上的Neurobasal培养基中保存,以备立即使用。
5. 使用FPcm处理联合组织
注意:本实验步骤无需无菌条件。组织应收集于独立的 1.5 ml 离心管中。冻存的 FPcm 仅可使用一次,避免反复冻融。使用前将 FPcm 预热至 37 °C。
5.1 联合神经元的处理
- 用小剪刀将联合组织剪碎。
注意:将组织切割得尽可能小,以增强细胞的可及性。
- 将组织均匀分配至不同的实验条件组,即对照处理组和FPcm处理组。
- 在4 °C下,以800 × g离心组织碎片1分钟。
- 检查各离心管间的组织分布情况。
注意:如有必要,重新混匀并再次离心,直至碎片均匀分布。
- 移除上清液。
- 向组织中加入温热的 FPcm 和对照处理液。
注意:体积必须根据沉淀物的量进行调整,且应至少为沉淀物体积的两倍。
- 在 37 °C 下孵育 30 分钟。
注意:每 10-15 分钟轻轻摇动一次
- 以 800 × g 离心 1 分钟,弃去上清液。
- 加入裂解缓冲液
注意:体积必须根据沉淀物的量进行调整,且应至少为沉淀物体积的两倍。
- 用移液器上下吹打以重悬沉淀。
注意:也可使用涡旋振荡器。
- 冰上孵育15分钟。
- 在4 °C下以14,000 × g离心15分钟。
- 保留上清液,并使用Bradford法测定蛋白含量9。
- 加入6x Laemmli缓冲液。
- 在95 °C孵育5分钟,使蛋白质变性。
注意:样品可立即使用,或保存在 -80 °C 下。
- 通过蛋白质印迹法评估处理后的效果10。
注意:每个泳道应至少上样 50 μg 的总蛋白。
访问受限。请登录或开始试用以查看此内容。
结果
联合神经元组织经FPcm处理后,对样品进行Western blot检测以分析受体水平。应用FPcm可提高导向受体PlexinA1的表达水平,该受体介导联合神经轴突在跨越中线后对中线排斥分子Semaphorin3B的敏感性(图2)。这表明,由底板(FP)释放的信号可调控PlexinA1的表达水平4,6。
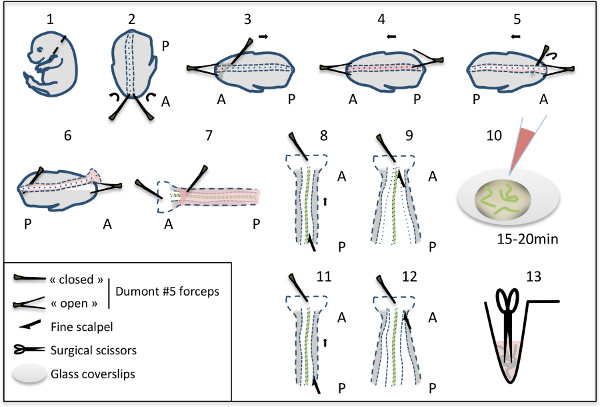
图 1. 分离脊髓腹侧板的解剖操作示意图。
访问受限。请登录或开始试用以查看此内容。
讨论
制备脊髓底板条件培养基为评估脊髓底板释放信号的生物学特性提供了一种高效且简便的方法。
血浆-凝血酶基质为组织存活提供了极佳的条件。然而,这种富集环境可能对某些类型的实验构成局限。因此,也可将底板组织培养在琼脂糖基质中。可通过检测底板释放的已知信号分子(如 gdnf(图 2)、Shh 和 Netrin11)来评估底板条件培养基的质量。这些分子在条件培养基中的存在可通过 Western 印迹或点印迹法进行检测。
在此过程中,细胞在其天然微环境中被研究。这限制了进一步获取有关组织中对处理产生反应的细胞类型的详细信息。由于底板并非均一结构,因此沿头尾轴不同解剖区域所培养的组织中,活性成分(如Wnts)的浓度可能存在差异。
对新鲜撕裂组织进行生物化学分析具有研究细胞在其天然微环境中的优势。因此,细胞行为可在尽可能接近其天然状态的条件下进行研究12。背侧脊髓不仅含有联合神经元,因此FPcm
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露
致谢
感谢 Karine Kindbeiter、Muriel Bozon 和 Florie Reynaud 提供的帮助。本工作由法国国家科学研究中心(CNRS)、ANR YODA 项目以及 Labex DevWeCan 资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 所需试剂 | |||
| PBS | Invitrogen | 14190-094 | |
| HBSS,Ca2+/Mg2+- 免费 | Invitrogen | 14170-088 | |
| 葡萄糖 | Sigma | G-7021 | |
| Neurobasal | Invitrogen | 21103-049 | |
| 血浆 | Sigma | P-3266 | 1 mg/ml(用H2O 和滤液 |
| 凝血酶 | Sigma | T-4648 | 10 mg/ml(用H2O 和滤液 |
| B27 | Invitrogen | 17504-044 | 50x |
| HEPES (260 g/mol) | Sigma | H-7006 | |
| EDTA | Sigma | E-5513 | 0.5 M,pH 8 |
| MgCl2 | Euromedex | 2189 | 1 M |
| 甘油 | VWR | 24388.295 | |
| IGEPAL | Sigma | I-3021 | |
| 完全蛋白酶抑制剂混合片剂 | 罗氏 | 04 693 116 001 | |
| 原钒酸钠(Na3视频4) | Sigma | S-6508 | |
| 蒸馏水2O | |||
| 表1. 所需试剂。 | |||
| 工具与材料 | |||
| 手术剪 | Fine Science Tools | 14002-12 | |
| Adson 镊子 | Fine Science Tools | 11027-12 | |
| Dumont #5 精细尖头镊子 | Fine Science Tools | 11254-20 | |
| 微型刀具 | Fine Science Tools | 10136-14 | |
| 表2. 工具与材料 | |||
| <表格 边框="1"> | |||
| 解剖与底板细胞培养 | |||
| 70% 乙醇 | |||
| 解剖罩 | |||
| 解剖显微镜 | |||
| 培养皿 | |||
| 玻璃盖玻片 | 18 mm × 18 mm | ||
| 本生灯 | |||
| 24孔板 | |||
| 组织培养箱(37 °C,5% CO2,湿度可控 | |||
| 离心 | |||
| 配方 | |||
| FP培养基 | |||
| Neurobasal | |||
| B27 | 1/50e 稀释(来自原液) | ||
| HBSS-凝血酶 | |||
| HBSS | 1 ml | ||
| 凝血酶 10 mg/ml | 30 μl | ||
| 裂解缓冲液 pH 7.4 | |||
| HEPES(260 g/mol) | 25 mM | ||
| EDTA(pH 8) | 5 mM | ||
| MgCl2 | 1 mM | ||
| 甘油 | 10% | ||
| IGEPAL (NP40) | 0.10% | ||
| 蛋白酶抑制剂混合物 | 1x | ||
| 原钒酸钠 | 0.2 M | ||
| H2O | |||
| Laemmli缓冲液 | |||
| Tris 0.5 M,pH 6.8 | 375 mM | ||
| SDS | 6% | ||
| 甘油 | 60% | ||
| DTT | 0.6 M | ||
| 溴酚蓝 | |||
| H2O | |||
参考文献
- Nawabi, H., Castellani, V. Axonal commissures in the central nervous system: how to cross the midline. Cell. Mol. Life Sci. 68, 2539-2553 (2011).
- Placzek, M., Briscoe, J. The floor plate: multiple cells, multiple signals. Nat. Rev. Neurosci. 6, 230-240 (2005).
- Chedotal, A. Further tales of the midline. Curr. Opin. Neurobiol. 21, 68-75 (1016).
- Nawabi, H., et al. A midline switch of receptor processing regulates commissural axon guidance in vertebrates. Genes Dev. 24, 396-410 (2010).
- Ruiz de Almodovar, C., et al. VEGF mediates commissural axon chemoattraction through its receptor Flk1. Neuron. 70, 966-978 (2011).
- Charoy, C., et al. gdnf activates midline repulsion by Semaphorin3B via NCAM during commissural axon guidance. Neuron. 75, 1051-1066 (2012).
- Kiecker, C., Lumsden, A. The role of organizers in patterning the nervous system. Annu. Rev. Neurosci. 35, 347-367 (2012).
- Le Dreau, G., Marti, E. Dorsal-ventral patterning of the neural tube: a tale of three signals. Dev. Neurobiol. 72, 1471-1481 (2012).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal. Biochem. 72, 248-254 (1976).
- Eslami, A., Lujan, J. Western blotting: sample preparation to detection. J. Vis. Exp. , (2010).
- Salinas, P. C. The morphogen sonic hedgehog collaborates with netrin-1 to guide axons in the spinal cord. Trends Neurosci. 26, 641-643 (2003).
- Bechara, A., et al. FAK-MAPK-dependent adhesion disassembly downstream of L1 contributes to semaphorin3A-induced collapse. EMBO J. 27, 1549-1562 (2008).
访问受限。请登录或开始试用以查看此内容。
重印与许可
