炎症细胞信号分子一氧化氮(NO)的水平通常使用格里斯试剂(Griess reagent)进行检测。在本实验方案中,我们建立了一种改良的格里斯检测法,利用活体果蝇(Drosophila)脑组织,以实现对NO分泌的简单、可定量且高度可重复的检测。
本文内容
摘要
摘要
神经炎症是一种复杂的先天免疫反应,对中枢神经系统(CNS)的正常功能至关重要。在正常情况下,由诱导因子、感受器和激活因子构成的复杂网络能够迅速响应神经元损伤、感染或其他免疫异常。这种免疫细胞的炎症反应与帕金森病(PD)、阿尔茨海默病和肌萎缩侧索硬化症(ALS)等神经退行性疾病的病理过程密切相关。在疾病状态受损的情况下,本应减轻神经元损伤的慢性炎症可能导致免疫细胞过度活化,最终加剧疾病进展。例如,中脑多巴胺能神经元的丢失是帕金森病的典型特征,而炎症反应的过度激活会加速这一过程。尽管帕金森病的病因尚不明确,但接触环境毒素被认为与散发性病例的发病有关。例如,除草剂百草枯已被证明可在多种动物模型中诱导类似帕金森病的病理改变,包括 黑腹果蝇 在这里,我们利用了保守的先天免疫反应 果蝇 开发一种能够检测一氧化氮(nitric oxide)不同水平的检测方法,一氧化氮是一种关键的细胞信号分子,参与激活炎症反应级联过程以及靶向性神经元死亡。利用百草枯(paraquat)诱导的神经元损伤模型,我们通过一种新型的定量检测方法评估这些免疫损伤对神经炎症激活的影响。将暴露于神经毒素或具有增强神经退行性变易感性的基因型的果蝇完整脑组织完全取出,随后在细胞培养基中进行孵育。接着,基于Griess试剂反应原理,我们能够检测细胞培养基中一氧化氮分泌的微小变化,从而在简单操作流程中建立一种初级的活体组织模型。该模型的应用价值得益于果蝇强大的遗传与分子复杂性 黑腹果蝇, 该检测方法可进行修改,以适用于其他情况 果蝇 组织或其他小型完整生物体的炎症模型。
引言
神经炎症是一种复杂的免疫反应,已被证实与多种疾病的病理过程密切相关,其中大多数为神经退行性疾病。在基础状态下,这一由游走性免疫细胞构成的复杂网络可通过快速响应感染、斑块或损伤来维持组织健康1,2。哺乳动物中枢神经系统中的神经炎症反应可由轻微刺激(如与正常衰老相关的细胞氧化应激)或严重损伤(如因急性接触化学毒素导致的神经元损害)所触发。当此类诱导发生时,被称为小胶质细胞的吞噬性监视细胞被激活,并迁移至神经元损伤部位。这些类似外周组织中巨噬细胞的清道夫样免疫细胞,会与受损神经元以及星形胶质细胞——一种与小胶质细胞协同作用以产生典型强烈小胶质细胞反应的支持性胶质细胞——启动复杂的信号级联反应3-7。小胶质细胞一旦被激活,便会启动炎症过程,以刺激免疫系统并促进组织修复1,8。
在持续性损伤条件下,如帕金森病(PD)、阿尔茨海默病和肌萎缩侧索硬化等神经退行性疾病中,慢性炎症也会对健康组织造成显著损害。近期研究表明,免疫系统这种持续且强烈的反应实际上可能导致过度兴奋性反应,从而加重疾病状态,而非改善病情9-11。
在Drosophila melanogaster中,先天免疫反应在遗传上高度保守。尽管缺乏真正的适应性免疫网络,Drosophila仍具有一个复杂的先天免疫系统,其中包含一类称为血细胞(hemocytes)的吞噬细胞。这些免疫细胞此前已被鉴定为类似巨噬细胞的细胞,能够在损伤部位聚集12,13,并在败血性休克14、寄生虫侵入15或病毒感染16过程中执行吞噬作用。
重要的是,与哺乳动物的巨噬细胞类似,吞噬性血细胞也表达一氧化氮合酶(NOS)并产生一氧化氮(NO),后者是黑腹果蝇(Drosophila)免疫反应的关键信号分子15,16。然而,所有这些研究仅能证明血细胞在胚胎发育阶段和幼虫期的反应。
本实验室观察到,在Drosophila成年果蝇大脑中存在一种强烈的、由血细胞介导的神经炎症反应,这是一种此前未知的现象17。该反应由接触毒物百草枯(paraquat)诱导产生。美国国立卫生研究院(National Institutes of Health)的流行病学研究已将这种广泛使用的除草剂确定为人类帕金森病(PD)发病的潜在风险因素18。针对哺乳动物模型中百草枯处理的研究已证实其具有神经毒性,并表明该除草剂可导致帕金森样症状,如运动异常和选择性神经元丢失19-21。在Drosophila中,百草枯处理同样会引起多种帕金森样行为表型,并导致多巴胺能神经元死亡,符合帕金森病的病理特征22。尽管与这种神经炎症反应相关的机制和遗传因素在Drosophila中尚未完全阐明,但我们已观察到在神经退行性变过程中一氧化氮合酶(NOS)的保守性诱导表达。
利用该方法,我们还检测到具有已知神经毒性敏感性的突变基因型会引发类似的神经炎症反应,尽管程度较轻。该基因编码 打孔,GTP环水解酶是BH生物合成中的第一个且为限速蛋白4,随后作为NOS所必需的辅因子发挥作用23,24功能缺失突变 PuZ22 导致炎症反应减弱以及对百草枯的敏感性增加25通过本方案,我们能够定量分析由该基因变异引起的相对细微的一氧化氮水平变化。
为了检测样本中的NO,我们使用格里斯试剂(Griess reagent),这是一种广泛认可的比色法,用于测定NO水平。该试剂通过检测亚硝酸盐的存在来间接测量NO的相对含量,亚硝酸盐是一氧化氮生成过程中的两种终产物之一。目前基于格里斯试剂的亚硝酸盐检测方案主要应用于 体外 分析或在细胞培养中,NO会扩散到培养基中。我们最初开发了一种基于Griess试剂的方法,用于在粗提物中检测NOS 果蝇 头部匀浆液25然而,我们发现该方法在条件改变时存在一定的变异性,这可能归因于全脑组织中一氧化氮(NO)的不稳定性、高反应活性以及相对浓度较低。因此,我们尝试建立一种基于细胞培养方案的方法,以提高一氧化氮合酶(NOS)活性定量检测的灵敏度和可靠性。本文所述方法在概念上类似于先前用于检测NOS的一种方法 果蝇 幼虫马氏管26在此实验中,我们采用在毒素处理后立即解剖获取的完整大脑,以诱导炎症反应。随后将这些样本在昆虫细胞培养基中孵育,以保持组织完整性,并提高基于Griess试剂检测法的灵敏度与可靠性。
我们预计,利用现有的先进遗传工具,该模型有望成为研究动态炎症/神经退行性网络的有力工具。该新方法能够精确定量神经炎症反应的激活状态及其相对强度,建立了一种可检测分泌型神经炎症标志物的原代组织培养体系。该技术为小型生物的炎症模型提供了一种经济、高灵敏度的方法,可用于快速检测此前难以实现的全生物体或活体组织样本。
方案
1. 百草枯暴露
- 将测试果蝇的培养物维持在标准的 Drosophila 培养基中,于 25 °C 下以相当的培养密度进行培养,每管约含 35 只雌蝇和 15 只雄蝇。
- 准备饲喂小室时,将少量吸水棉置于空小瓶底部,并在棉上直接放置滤纸。
- 使用低温昏迷或 CO2 对羽化后 3–5 天的成年雄蝇进行麻醉。在本实验中,使用基因型为 y w1118 的雄蝇。
- 进行低温昏迷分离时,轻敲装有果蝇的饲喂小瓶,迅速拔去瓶塞,并将果蝇直接转移至一个洁净的空瓶中,注意正确标记。
- 果蝇成功转移至空培养瓶后,轻敲小瓶,立即放入冰桶中 5 分钟,或直至果蝇完全昏迷。
注意:切勿将小瓶完全浸入冰中,以免水分进入瓶内导致果蝇溺亡。作为另一项预防措施,冰桶中应使用新鲜冰块而非已融化的冰。
注意:请密切关注每项检测所需的果蝇数量,若条件允许,每组应额外多加几只果蝇,以防人为操作失误,例如 在饲喂或转移过程中果蝇逃逸。以一氧化氮检测实验为例,每组样本需要 20 个果蝇脑组织,因此在饲喂时应根据解剖熟练程度和效率预留余量(即 初学者应准备超过 20 只果蝇,以防转移或解剖过程中出现失误)。
- 果蝇麻醉后,将其每组分别转移至上述准备好的饲喂小瓶中。
- 待果蝇在饲喂小瓶中完全苏醒后,饥饿处理 1.5 小时,同时准备如下溶液:
- 通过将 5 g 蔗糖溶于 100 ml 双蒸水中,配制 5% 蔗糖储备液(对照溶液)。搅拌至完全溶解,并于 4 °C 保存。
注意:所有后续饲喂溶液均以 5% 蔗糖储备液作为溶剂。 - 使用 5% 蔗糖溶液作为稀释剂配制 10 mM 的百草枯(paraquat)储备液,并于 4 °C 保存。其他浓度通过逐级稀释按需配制。
警告:百草枯具有极高毒性。 请查阅材料安全数据表(MSDS)以获取安全操作和正确处理/处置指南。 - 使用 5% 蔗糖溶液作为稀释剂,分别配制 10 mM 的 N-硝基-L-精氨酸甲酯盐酸盐(L-NAME)和 N-硝基-D-精氨酸甲酯盐酸盐(D-NAME)储备液,并于 4 °C 保存。若需联合使用 L-NAME 或 D-NAME 与百草枯,应使每种化合物与百草枯的浓度保持 1:1 的比例。其他浓度按需通过逐级稀释配制。
注意:所有溶液配制后应立即过滤。百草枯、D-NAME 和 L-NAME 储备液应在配制后一周内使用,以确保实验的一致性。 - 每天向滤纸上滴加 150 μl 饲喂液(或根据饲喂时间酌情减少),注意避免淹死果蝇或使其逃逸。
- 通过将 5 g 蔗糖溶于 100 ml 双蒸水中,配制 5% 蔗糖储备液(对照溶液)。搅拌至完全溶解,并于 4 °C 保存。
2. 存活率/死亡率检测
- 按照先前所述方法设置饲喂装置。
注意:每个小瓶使用至少三层滤纸,以防止干燥。 - 将10只羽化后3-5天的雄性果蝇放入每个小瓶中,并按上述指示进行饲喂,注意避免滤纸在过夜期间变干。
注意:将小瓶置于室温下,避免阳光直射,以防止溶液蒸发过快。 - 从次日开始(定义为"第1天"),连续10天每天记录每个小瓶中死亡果蝇的数量两次。
注意:每天在固定时间进行计数和饲喂,以减少变异,提高实验一致性。 - 使用所有组别的至少三次独立重复实验计算平均存活率。
3. 解剖成年果蝇大脑并进行孵育
- 解剖前,将50 μl Grace昆虫培养基移液至相应数量的孔中(每组样本一孔,另加一孔作为备用)。 "空白"在96孔微孔板中设置对照组并做好相应标记。使用前用板盖覆盖。
注意: 或者,也可根据需要选用无菌离心管。 - 使用冰眠法麻醉一个样本组的果蝇,具体步骤如1.3.1-1.3.2所述。
- 果蝇完全麻醉后,将数只果蝇置于显微镜载玻片上
注意: 若无解剖经验,应从小部分果蝇开始操作。 - 在解剖显微镜下,使用镊子和手术刀或两把镊子将果蝇头部去头,完成后弃去果蝇身体。
- 使用少量 PBS 作为解剖缓冲液;必须避免干燥。
- 按照Williamson的方法提取全脑 & Hiesinger(2010)27,小心去除角质颗粒及任何非脑组织(例如 眼色素组织)(参见 图1).
- 将解剖好的脑组织转移至相应标记的孔中,并重复操作,直至每孔至少含有20个脑组织。
- 解剖期间将培养板置于冰上,并确保从开始解剖到启动检测之间的总时间不超过20-30分钟。
注意: 只要每组在每个孔中的脑组织数量相同,可使用超过20个脑组织。获得准确读数所需的最少脑组织数量可能有所不同(详见讨论部分)。 - 工作液配制完成后,将脑组织在25 °C下孵育6小时,并轻轻振荡。
- 对所有剩余组别重复执行步骤1.2至1.6。
注意: 根据每组样本完成时间的差异,记录并调整孵育的结束时间。
4. 孵育期间的准备工作
- 根据制造商说明配制改良型格里斯试剂(见表格),并在使用前避光保存。所需试剂量取决于样本数量。例如,格里斯试剂将以1:1比例加入至Grace's培养基中(步骤5.5)。因此,每组样本需准备50 μl,另加50 μl用于空白对照。
- 使用亚硝酸钠进行系列稀释,配制浓度范围为0.78125–100 mM亚硝酸盐的标准品,共8个浓度点。
注意:每次实验均应绘制亚硝酸盐标准曲线,以确保样本浓度测定结果的一致性和准确性,并验证格里斯试剂的活性。 - 此外,准备并标记无菌的0.5 ml离心管,每个处理组准备两管,对照组准备两管。
5. 亚硝酸盐水平的检测
- 孵育期结束后,将微孔板孔中的 Grace's 培养基(至少 45 μl)转移至对应各组的第一组离心管中。
注意: 如前所述,务必考虑因每轮解剖操作耗时不同而导致的孵育时间差异。 - 可选步骤:在此步骤中加入硝酸还原酶和 NADPH,以将硝酸盐转化为亚硝酸盐。(本步骤未在所示结果中实施)
注意: 如有需要,可按照检测试剂盒说明,取部分样品上清液进行硝酸盐/亚硝酸盐检测。 - 轻柔离心(约 8,175 × g)2 分钟,以沉淀可能从孔中吸出的脑组织或组织颗粒。
- 用移液器将第一组离心管中的上清液 30 μl 转移至对应的第二组离心管中,注意在样品离心后勿扰动沉淀。
- 按 1:1 比例加入 Griess 试剂,孵育 5–10 分钟,并在 30 分钟内使用 NanoDrop 分光光度计在 548 nm 吸光度下进行检测。
注意: 也可使用酶标仪在 540 nm 检测波长、620 nm 参比波长下对样品进行检测。 - 每一样品至少重复检测三次,并对读数取平均值。
注意: 务必在每 6–10 次读数之间以及检测结束前,使用"空白"校准仪器,并将空白对照(不含脑组织的 Grace's 培养基加 Griess 试剂)作为样本运行,用于计算标准偏差。 - 利用步骤 4.2 中生成的亚硝酸盐标准曲线,计算各样品的相对亚硝酸盐水平。
- 为计算未知浓度,首先以已知浓度的标准曲线数据作图,将吸光度(即 光密度)作为 y 轴,浓度作为 x 轴。
- 当所有标准曲线数据点绘制完成后,求出最佳拟合直线的斜率,并解方程求 x。
注意: 若系列稀释操作正确,最佳拟合直线应呈线性或接近线性。若不符合此情况,需重新构建标准曲线。若问题持续存在,请检查所有溶液、培养基和试剂是否过期,并确保仪器工作正常且处于其检测范围之内。 - 随后,将样品的吸光度值代入 y,求解 x,x 即代表浓度。
有关NanoDrop设备使用的更多信息,请参阅Desjardins et al. 2009以及Desjardins & Conklin, 201028,29。
6. 蛋白质印迹
- 按上述方法每组喂养 30 只果蝇,并使用液氮和涡旋振荡法断头取样。
- 在冰上用 60 μl 含 2 mM 二硫苏糖醇(DTT)和 1×蛋白酶抑制剂混合液的 RIPA 裂解缓冲液匀浆整个头部,抑制剂需在使用前加入。
- 在 4 °C 条件下以 8,175 × g 离心 5 分钟。
- 将上清液转移至新的离心管中。
- 轻轻混匀样品,用移液器将 17 μl 上清液加入含有 6.5 μl 4× LDS 上样缓冲液和 2.5 μl 500 mM DTT 的离心管中。
注意: 剩余样品用液氮速冻后,于 -20 °C 保存备用。 - 充分混匀样品,在 70 °C 加热 10 分钟,期间中途混匀一次。
- 加热的同时,使用预铸的 4-12% NuPage Bis-Tris 微型凝胶、MOPS SDS 电泳缓冲液(内槽加入 500 μl 抗氧化剂)组装聚丙烯酰胺凝胶电泳(PAGE)装置。
- 短暂离心样品后,使其冷却。
- 每条泳道上样 25 μl。
- 在冰上或 4 °C 条件下以 200 V 电泳 45 分钟,或直至电泳完成。
- 电泳完成后,使用 iBlot 转膜系统将凝胶中分离的蛋白质转移至硝酸纤维素膜,并使用 Western Blot 检测试剂盒检测信号。
注意: 所用抗体如下:一抗为小鼠抗 α-nNOS(1:250)、小鼠抗 α-syntaxin(1:200);二抗为 Western Blot 检测试剂盒中提供的小鼠二抗(1:250)。 - 使用 Western Blot 成像系统或 X 射线胶片检测化学发光信号。
注意:可采用任何标准的免疫印迹检测与定量方法进行印迹分析。
结果
已有大量动物模型(如小鼠19、大鼠20和果蝇22)研究表明,百草枯可诱导与帕金森样病理特征一致的神经退行性变。我们先前报道过,当米诺环素(一种抗炎抗生素)与百草枯共同给药时,可延长生存期,减少活性氧物种的产生,并挽救多巴胺能神经元的死亡25。因此,鉴于米诺环素具有抑制炎症的作用,我们开始研究一氧化氮合酶(NOS)——炎症反应激活过程中的关键蛋白——及其在调节百草枯毒性中的作用。
通过使用1.25至10 mM的百草枯浓度进行百草枯毒性曲线实验,以确定有效的致死剂量和毒性处理范围(图2A)。我们还检测了20 mM和40 mM百草枯浓度的影响,但发现这些较高浓度下的毒性过于剧烈,无法准确评估细胞对该氧化应激物的反应,因此本报告未包含这些浓度的结果。使用L-NAME(一种竞争性一氧化氮合酶抑制剂)和D-NAME(NAME的无活性异构体),我们将成年雄性果蝇与百草枯及其中一种NAME异构体共同处理。果蝇在百草枯与L-NAME共处理后,由百草枯摄入引起的寿命缩短得到了显著缓解;而与百草枯和D-NAME共处理的果蝇则未见生存率改善(图2B),该结果支持了通过抑制一氧化氮合酶(NOS)来抑制炎症反应可提高百草枯处理果蝇存活率的假设。
为进一步验证一氧化氮合酶(NOS)介导的百草枯反应,我们在百草枯暴露后直接检测了NOS蛋白水平的变化。NOS蛋白水平随百草枯浓度增加而升高(图3A)。当以10 mM百草枯处理果蝇,暴露时间从6至30小时不等时,我们观察到NOS蛋白水平先升高,随后随着暴露时间延长而下降(图3B),这一变化趋势与我们改良的Griess法检测到的亚硝酸盐水平变化模式一致(图5B)。这些结果与我们此前的报道相符,即百草枯处理可诱导NOS表达,而抑制NOS活性或使用L-NAME或米诺环素处理可提供部分保护作用17,25。
图4A 显示,百草枯浓度的增加与炎症反应程度之间呈线性关系,该关系通过NO的分泌与检测来定义。在基础水平下,Punch 杂合突变体分泌的NO水平略低,这种差异极为微小,使用以往的检测方法难以分辨。当喂食百草枯后,Punch 突变体中NO水平显著升高,但仍明显低于经相同处理的野生型果蝇(图4B)。野生型与Punch 果蝇的相对数值可以被准确且可重复地定量,但在未处理条件下,其差异极其细微。
在使用毒素或化学物质时,必须建立暴露时间曲线以及基于浓度的毒性曲线,因为这些条件会显著影响检测的敏感性。例如,使用 5 mM 百草枯处理后,在暴露 24 小时后达到一氧化氮(NO)检测的最大值(图 5A);而 10 mM 百草枯处理则诱导更快(最大值出现在 12 小时),但在延长暴露期间活性的衰减也更快(图 5B)。尽管高浓度诱导速度快看似更理想,但过强的反应会加速神经元甚至可能包括血细胞的死亡,从而导致实验重复性变差。
一氧化氮(NO)分子不稳定且具有高度反应性。因此,成功的检测必须包含适当的孵育条件,以在持续诱导一氧化氮合酶(NOS)活性与NO的快速转化之间达到最佳平衡。为了确定最佳孵育条件,我们评估了分离脑组织在加入格里斯试剂前于培养基中孵育时间的影响。结果表明,在室温下孵育6小时可在后续的格里斯反应中产生最高水平的亚硝酸盐(图5C)。我们预计,在不同炎症模型中,可能需要调整孵育时间以优化检测效果。由于该过程具有高度动态性,针对特定生物体、基因型和待测组织,仔细确定所有最佳参数对于获得可靠且准确的结果至关重要。特别是遗传变异体和转基因表达模型,预期需要进行大量优化,尤其需考虑发育阶段或成体年龄等因素。
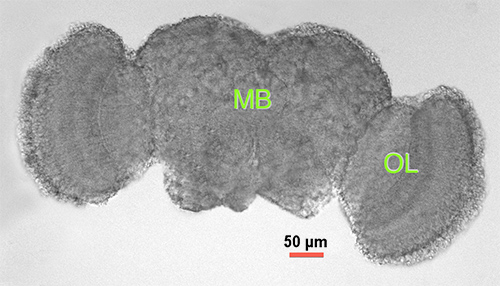
图1. Drosophila 成年果蝇脑。 刚羽化后2-3天的成年雄性果蝇脑组织的光学显微图像。MB = 中脑(中央皮层),OL = 视叶。
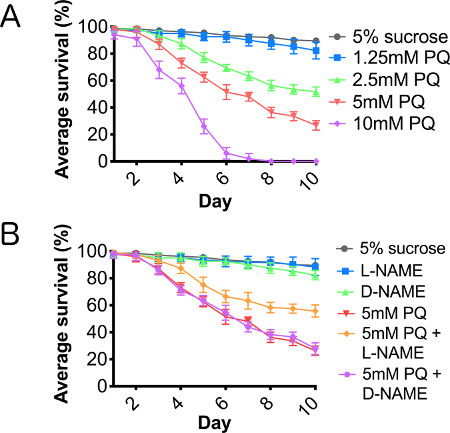
图 2. 百草枯通过一氧化氮合酶介导,导致寿命呈剂量依赖性下降。野生型雄性果蝇饲喂(A)5% 蔗糖(对照组),以及含 1.25–10 mM 浓度梯度百草枯的 5% 蔗糖溶液,和(B)连续 10 天同时饲喂百草枯与 L-NAME 或 D-NAME。N = 每组 10 只,共 3 组。误差线 = 标准误(SEM)。
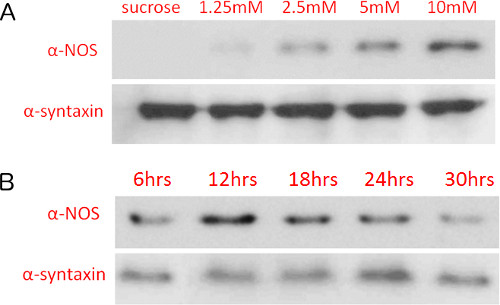
图3. 一氧化氮合酶蛋白水平随百草枯浓度和暴露时间的延长而升高。通过免疫印迹检测经不同(A)百草枯浓度处理(暴露12小时)以及(B)10 mM百草枯处理不同时间的果蝇体内的一氧化氮合酶水平。蛋白水平使用化学发光法在硝酸纤维素膜上检测,并通过X射线胶片曝光显影。
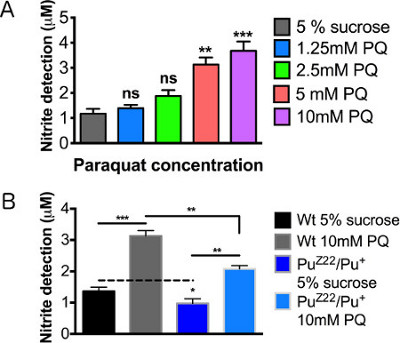
图4. 百草枯暴露后一氧化氮的检测水平。 选取羽化后2-3天的雄性野生型(WT)果蝇,经12小时喂食处理后进行检测。(A) 百草枯浓度梯度曲线。(B) 雄性Punch杂合突变体果蝇在蔗糖对照组和10 mM百草枯处理组中的检测结果。每组n = 20个脑组织样本。结果代表每组三次重复实验。误差棒表示标准误(SEM)。采用单因素方差分析(one-way ANOVA)结合Dunnett多重比较检验进行统计分析(*, p < 0.05;**, p < 0.01;***, p < 0.001)。

图 5. 通过调整百草枯暴露时长和组织孵育时间优化一氧化氮生成的检测。 在羽化后 2–3 天的雄性果蝇大脑中,经 12 小时(A)5 mM 百草枯和(B)10 mM 百草枯处理后的一氧化氮相对水平。(C)在经 12 小时、10 mM 百草枯饲喂后,采用不同组织孵育时间的一氧化氮浓度曲线。显著性值的计算均相对于以下对照组:(A, B)各暴露时间下的 5% 蔗糖对照组(图中未显示),(C)各孵育时间下的 5% 蔗糖对照组(图中未显示)。每组 N = 20 个大脑。结果代表每组 3 次重复实验。误差线 = 标准误(SEM)。统计分析采用单因素方差分析(one-way ANOVA)结合 Dunnett 多重比较检验(*, p<0.05, **, p<0.01, ***, p<0.001)。
讨论
该方法虽然操作简便,但为定量检测一氧化氮合酶(NOS)介导的神经炎症水平提供了一种成本低、重复性高且极为敏感的方法。如结果部分所示,存在多种可调节的变量,可用于增强或优化不同诱导模型或生物体中的反应。然而,由于该系统具有高度敏感性,若未谨慎处理实验方案的各个方面,这些变量也可能导致结果出现较大变异。在首次使用任一模型进行测试时,我们建议通过测试以下变量来设定参数:化学物质浓度(图4A)、暴露时间(图5A和 5B)以及孵育持续时间(图5C)。即使将该方法应用于相似的黑腹果蝇(Drosophila)模型时,也需注意其他变量,例如达到检测阈值和结果一致所需脑组织/组织样本的数量。此外,在与年龄相关的炎症遗传模型中,还需进行更长时间点的优化。
如上所述,由于该检测方法具有较高的敏感性,实验方案中的任何不一致都可能导致结果不可靠。因此,所有仪器和材料在使用前均经过灭菌处理。由于孵育时间较短,本实验所用的培养基中未添加抗生素。然而,如果将该方案调整用于更长的孵育时间,或在培养物或培养基中观察到细菌生长,则应添加常规培养用抗生素(如青霉素-链霉素),并对仪器重新进行灭菌。与任何化学处理实验一样,应谨慎操作,确保所有实验组在严格控制的条件下饲养,性别和年龄相匹配,并且各组接受完全相同的喂养条件。需考虑的一些典型喂养条件包括:试剂浓度的变化、食物来源的可获得性及获取途径、喂养持续时间以及每天实施喂养的具体时间。详细记录所有实验条件,并密切注意所用模式生物的自然摄食模式,有助于最大限度地减少实验变异性。若使用影响神经回路或行为模式的突变体或转基因品系,则一个重要对照措施应包括对摄食行为的监测。
再次强调,尽管类似的方案已可用于细胞培养和裂解物,但本方法的一个主要优势在于能够保持组织的完整性,从而几乎使大脑内所有细胞间的相互关系都得以维持原状。该系统代表了一种相对自然的 体内 神经炎症信号传导与细胞分泌状态。建立于 果蝇该技术可轻松适用于其他小型模式生物,且不仅限于中枢神经系统,例如在模拟肾功能的马氏管模型中对一氧化氮信号通路的研究即展示了类似的适用性26该方案迄今为止最显著的优势在于能够对其进行操作和调整,以满足研究者或模型系统的需求与兴趣。
通过采用化学-遗传学联合方法,该检测技术有望显著提升小型模式系统在研究炎症机制、遗传组分及化学调控因子方面的能力。
披露
作者声明不存在竞争性财务利益。
致谢
我们感谢Guy博士和Kim Caldwell博士在本实验方法开发过程中提供NanoDrop分光光度计的使用支持 ,并感谢J. Gavin Daigle提出的宝贵意见和建议。本方法的开发得到了美国国立卫生研究院(NS-078728)向J.M.O.提供的资助支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>喂养室 | |||
| 空 果蝇 小瓶 | Genesee Scientific | #32-116 | |
| 吸水棉 | 任何标准产品均可使用。 | ||
| 滤纸 | Fisher | #09-802-1B | |
| <强>百草枯暴露 | |||
| 蔗糖 | Sigma-Aldrich | #S0389 | |
| 百草枯(甲基紫精二氯化物水合物) | Sigma-Aldrich | #856177 | 有毒。请小心操作,并遵循材料安全数据表(MSDS)指南 |
| L-NAME(N盐酸-N-硝基-L-精氨酸甲酯 | Sigma-Aldrich | #N5751 | |
| D-NAME(N-N-硝基-D-精氨酸甲酯盐酸盐 | Sigma-Aldrich | #N4770 | |
| <强>解剖成年果蝇大脑及孵育 | |||
| Grace昆虫培养基 | Invitrogen | #11605-094 | Grace氏培养基也可替代Sf-900 II SFM或Sf-900 III SFM培养基,以获得更高的批间一致性。 |
| 96孔板 | 康宁 | #3596 | 可使用任何标准产品。 |
| 显微镜载玻片 | 任何标准产品均可使用。 | ||
| 手术刀片 | 羽毛 | #0197 | 任何标准产品均可使用。 |
| 医用镊子 5 | 杜蒙特 | EMS #72877-D | 可使用任何标准产品。 |
| 10x PBS缓冲液 | OmniPur | #6508 | |
| <强>亚硝酸盐水平检测 | |||
| 改良的格里斯试剂 | Sigma-Aldrich | #4410 | |
| 亚硝酸钠 | Sigma-Aldrich | #S2252 或 #237213 | |
| 蛋白质测定试剂盒 | 伯乐(Bio-Rad) | 500-0001 | |
| 比色皿 | 可使用任何标准产品。 | ||
| 硝酸还原酶 | 可选 | ||
| NADPH | 可选 | ||
| <强>蛋白质印迹分析 | |||
| RIPA裂解缓冲液 | Amresco | 97063-270 | |
| 二硫苏糖醇(DTT)— 还原剂 | Novex | B0009 | |
| 蛋白酶抑制剂混合物 | Amresco | 97063-082 | |
| 4x LDS 上样缓冲液 | Novex | B0007 | |
| 预制 4-12% Bis-Tris 小胶 | Novex | BG04125BOX | |
| MOPS SDS 电泳缓冲液 | Novex | B0001 | |
| 抗氧化剂 | NuPage | NP0005 | |
| iBlot 转膜垫片(硝酸纤维素) | Invitrogen | IB301002 | |
| Western blot 检测试剂盒 | Invitrogen | IB711002 | |
| 小鼠 α-nNOS | BD生物科学 | 611853 | |
| 小鼠 α-syntaxin | DSHB | 8C3 |
参考文献
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
重印与许可
