农杆菌浸润法和PVX农杆菌感染法是植物中外源基因瞬时异位表达的常规功能检测方法。这些方法在效应子组学策略(快速鉴定抗性基因和无毒基因)中是高效的检测手段,对现代分子植物病理学研究至关重要。它们满足了植物中进行高效高通量功能分析的需求。
本文内容
摘要
摘要
农杆菌浸润和PVX农杆菌感染是植物中候选基因功能分析的两种高效瞬时表达检测方法。农杆菌浸润最常用的载体是 农杆菌(Agrobacterium tumefaciens), 一种多种双子叶植物物种的病原菌。这意味着农杆菌浸润法可应用于多种植物物种。在此,我们展示了将这些方法应用于马铃薯(Solanum tuberosum)时的实验方案及预期结果。Solanum tuberosum),其相关的野生块茎类 Solanum 物种(Solanum 部分 马铃薯)以及模式植物 Nicotiana benthamiana除了对单个基因(如抗性基因)进行功能分析外,R)或无毒力(Avr) 基因,农杆菌浸润实验通过简单递送即可有效重现与特定寄主-病原体相互作用相关的R-AVR互作 R 和 Avr 将外源基因导入同一细胞。然而,某些植物基因型可能对外源基因产生非特异性防御反应 农杆菌,正如我们在多种马铃薯基因型中所观察到的那样。与农杆菌浸润法相比,利用PVX农杆菌感染法检测AVR活性具有更高的灵敏度、在功能筛选中通量更高,且对非特异性防御反应的敏感性更低 农杆菌然而,植物可能对PVX产生非特异性防御反应,且存在因病毒诱导的极端抗性而漏检响应的风险。尽管存在这些局限性,根据我们的经验,农杆菌浸润(agroinfiltration)和PVX农杆菌感染(PVX agroinfection)均为适用且互补的检测方法,可同时使用以相互验证实验结果。
引言
效应子组学(effectoromics)是一种高通量功能基因组学方法,近年来已成为鉴定作物中抗性(R)基因及病原体相应无毒(Avr)基因的有力工具1-4。与耗时较长的R基因稳定转化方法相比,效应子组学策略基于对病原体基因序列的瞬时表达检测。
自基因组学时代以来,植物病原体的基因组已被广泛研究。例如,对于包含最具破坏性植物病原体的卵菌类,已生成并分析了大量序列,以鉴定在与植物互作过程中发挥作用的基因5-10一类病原体蛋白为效应子,其通过操控宿主细胞的结构与功能,促进感染(毒力因子)或触发防御反应(无毒因子)。11-13表达 Avr 植物细胞中含有基因 R 基因通常会引发超敏细胞死亡反应(HR)14,15. 在植株中 表达 R 和 Avr 基因的表达可以通过瞬时表达系统来实现,例如 根癌农杆菌基于农杆菌的瞬时转化(农杆菌浸润)16该瞬时转化也可与病毒表达系统(农杆菌介导感染)联合应用。17,18.
农杆菌介导的瞬时转化中最常用的载体是 根癌农杆菌, 双子叶植物的广宿主范围病原体 A. tumefaciens 含有一个肿瘤诱导(Ti)质粒。当细菌的毒性机制被激活后,Ti质粒中的转移DNA(T-DNA)会转入植物细胞。这一过程可在受伤的植物细胞中触发,由微酸性环境中释放的低分子量酚类化合物和单糖所诱导。19毒力基因在侵染后被激活 农杆菌 将悬浮液注入由主脉界定的叶片区域,随后叶片区域内的植物细胞将被转化并表达T-DNA区域中包含的外源基因。
农杆菌感染依赖于通过伤口接种的Agrobacterium,该菌可介导病毒向植物细胞的转移。随后,病毒在不依赖Agrobacterium的情况下进一步扩散至邻近的植物组织。多种植物病毒可用于农杆菌感染。RNA病毒是基因表达的理想载体,因其在感染的植物中可大量复制。在植物RNA病毒中,Potato Virus X(PVX)被广泛用于效应子组学筛选。为了便于对插入基因进行功能检测,已将包含PVX基因组的双元载体克隆至A. tumefaciens20的T-DNA区域,其中PVX基因组两侧分别为花椰菜花叶病毒35S启动子和胭脂碱合成酶终止子。当T-DNA转入植物细胞后,其携带的PVX基因组由35S启动子驱动转录。随后,病毒颗粒在感染植株中系统性扩散,导致插入基因的表达。这种结合了Agrobacterium和PVX的方法称为PVX农杆菌感染。
本文展示了农杆菌浸润(agroinfiltration)和PVX农杆菌感染(agroinfection)实验的示例。我们使用马铃薯种质资源(Solanum组Petota)作为寄主植物,该类植物在效应子组学(effectoromics)研究中已被率先应用并证明有效3,4。此外,我们还使用了本氏烟草(Nicotiana benthamiana),其作为茄科(Solanaceous)植物中的模式植物而广为人知14,21,22。
方案
1. 植物培养与测试条件
- 在18–22 °C的温度范围内,于可控温室或气候培养箱中种植和培养植物,光照条件采用自然光照周期或16小时光照/8小时黑暗的光周期。去除腋生枝条,以利于植株管理。
- 对于马铃薯,保持 体外 无菌塑料罐中的小植株 Murashige-Skoog 在气候室中,于18 °C、16小时光照/8小时黑暗的条件下,在含有20 g/L蔗糖、5 g/L含维生素MS盐、8 g/L琼脂、pH 5.8的(MS)培养基中培养两周后,将其转移至温室中已灭菌土壤的花盆内,在受控环境下继续培养。
2. 农杆菌浸润
- 植物材料:
对于Nicotiana benthamiana,使用约4-5周龄的实生苗。对于马铃薯,使用约4-5周龄的in vitro移栽苗。选择幼嫩、健康且充分展开的叶片进行侵染。 - 农杆菌培养:
- 提前准备YEB培养基(表1)。在50 ml离心管中加入10 ml YEB培养基,并添加1 μl乙酰丁香酮(200 mM)、100 μl MES缓冲液(2-(N-吗啉代)乙磺酸,1 M)以及适当的抗生素。将目标菌株(表2)的甘油保存液各取20 μl加入YEB培养基中(含目的基因)。在本实验中,所有农杆菌菌株的培养应同时启动。于28 °C、200 rpm条件下振荡培养1-2天,至OD600达到约1.0。
- 以3,000 × g离心10分钟收集菌体。倒去上清液,用新配制的MMA培养基(表3)重悬菌体至OD600为0.3。轻轻涡旋混匀使菌体充分重悬。若需共侵染两种菌株,则按1:1比例混合两种菌液。
- 侵染前将菌液置于室温下静置1-6小时。在此期间,标记待侵染的植株及实验日期。
- 侵染操作:
使用1 ml 无针头注射器将农杆菌悬浮液注入叶片。从叶背面小心缓慢地将菌液注入叶组织(出于健康与安全考虑,操作时应佩戴护目镜)。每种菌株至少侵染三株植物,每株植物使用三片叶作为三个重复。
注意:通常情况下,1 ml 农杆菌悬浮液足以用于3株N. benthamiana的侵染。对于马铃薯,由于茄属(Solanum)植物叶片较难侵染,需使用更多菌液。所需菌液体积取决于具体的茄属物种。为避免交叉污染,每次侵染之间应更换手套或用乙醇消毒手套,并在接种后次日之前不要浇水。 - 表型评分:
侵染后约3天进行宏观表型评分,此时细胞死亡表型已清晰可见(图1)。若细胞死亡表型为定量性状,可依据既定标准进行评分(图2)。简言之,宏观细胞死亡评分主要依据侵染区域的细胞死亡百分比,评分范围从0%(无症状)至100%(完全细胞死亡)。中间表型包括从轻微反应(如黄化)到不同程度的细胞死亡。如需要,也可利用现代图像采集设备对宏观评分进行定量分析。
3. PVX 农杆菌侵染
- 植物材料:
对于 N. benthamiana,使用约2-3 周 老种子培育的植株。对于马铃薯,使用约2-3 周 来自旧的移植样本 体外对于大规模测试,使用稍大一些(4-5周龄)的植株,因为这些植株具有更多且更大的叶片,可容纳更多的 农杆菌 接种点 - 农杆菌 培养:
- 提前配制 YEB 培养基。向 10 ml 试管中分装 3 ml 添加了适当抗生素的 YEB 培养基。取 20 μl 目标菌株的甘油保存液,用移液器加入试管中表2)(含有目的基因)转入YEB中。为所有菌株启动培养物 农杆菌 在此检测中同时处理各菌株。在28 °C、200 rpm条件下振荡培养细胞1-2天至OD600 约为 1.0。
- 移液约 300 μl 的每种样品 农杆菌 将菌株接种并涂布于添加了适当抗生素的LB固体琼脂培养基平板上,于28 °C培养1–2天。
- 感染:
使用刮勺收集 农杆菌 在培养皿中培养。将一根木制牙签浸入 农杆菌 用接种环取菌液,刺穿叶片以接种大量细菌。每种菌株至少接种三株植物,每株植物使用三片叶子作为三个重复。在每片叶子上,为每种菌株设置多个接种位点。 - 评分:
接种后约两周评估宏观反应图3)。对于高通量筛选,记录每个接种位点的定性反应(是/否)。然后计算反应位点的百分比,并与对照组进行比较。
结果
图1展示了在马铃薯和N. benthamiana中进行农杆菌瞬时转化(agroinfiltration)的代表性实验,共测试了7种不同的效应子(E1-E7)。细胞死亡表型通常在注射后约3天出现在浸润的叶片区域,其程度需与对照组进行比较。 阳性对照使用含有pBINplus-R3a和pK7WG2-AVR3a质粒的Agrobacterium菌株AGL1(pVirG)23,阴性对照则仅使用AGL1(pVirG) 24,25。图1A和1B分别展示了在马铃薯基因型MaR8(Mastenbroek R8)26和N. benthamiana中进行农杆菌瞬时转化的良好示例,这两种材料均非常适合该技术。在阳性对照共浸润的叶片区域出现融合性细胞死亡,而阴性对照或仅含pBINplus-R3a的处理则未引发细胞死亡反应。在MaR8中,两个效应子AVR3a(E2)和AVR4(E3)可诱导细胞死亡,而其他效应子(E1及E4-E7)则不能。在N. benthamiana中,所有测试的效应子均未引发细胞死亡反应。图1C和1D展示了在野生马铃薯Solanum berthaultii 483-1和Solanum rechei 210-5中进行农杆菌瞬时转化的示例,这两种材料对该技术的适用性较差。在S. berthaultii 483-1中,叶片组织对阴性对照以及所有测试的效应子均表现出非特异性坏死。在S. rechei 210-5中,浸润的叶片区域仅对阳性对照表现出极微弱的细胞死亡反应。
图2 显示了一系列可用于量化农杆菌浸润反应的评分量表 农杆菌细胞死亡百分比以0-100%的尺度表示。观察到的表型范围从宏观上不可见症状(0%),经过一系列显示黄化及细胞死亡程度逐渐增加的中间反应,直至完全融合的细胞死亡(100%)。
图3展示了马铃薯接种PVX农杆菌后的代表性实验结果。通常,在牙签接种约两周后,可在接种位点观察到扩展性细胞死亡。如图中两个图示所示,接种pGR106-CRN2(使用效应子crinkler Crn2的阳性对照)的位点出现了明显的扩展性细胞死亡,该基因为P. infestans27中一种普遍诱导细胞死亡的基因。相比之下,接种pGR106-empty(阴性对照)的位点仅表现出轻微的伤口反应,未观察到扩展性细胞死亡。在图3A中,代表马铃薯基因型MaR3(Mastenbroek R3),两个pGR106效应子(E1和E2)未诱导细胞死亡。在图3B中,展示了野生型Solanum huancabambense 354-1中效应子筛选的阳性结果;观察到两个pGR106效应子(E1-E3,代表素类激发子)引发了细胞死亡反应28。

图1. 马铃薯中农杆菌浸润的示例 N. benthamiana 植物包括(A一种马铃薯基因型 MaR8(Mastenbroek R8),(B) N. benthamiana, (C) Solanum berthaultii 483-1 和 (D) Solanum rechei 210-5 被注射了混合物 农杆菌 菌株 AGL1(pVirG) 23 含有 pBINplus-R3a 和 pK7WG2-AVR3a(阳性对照), AGL1(pvirG) (阴性对照)、pBINplus-R3a 和七个效应子(E1-E7)。 单击此处以查看大图.

图 2. 农杆菌浸润反应的定量分析。 照片展示了细胞死亡的代表性评分标准,范围从 0%(无症状)到 100%(融合性细胞死亡)。中间反应程度从轻微反应(如黄化)到逐渐加重的细胞死亡水平不等。点击此处查看高分辨率图像。
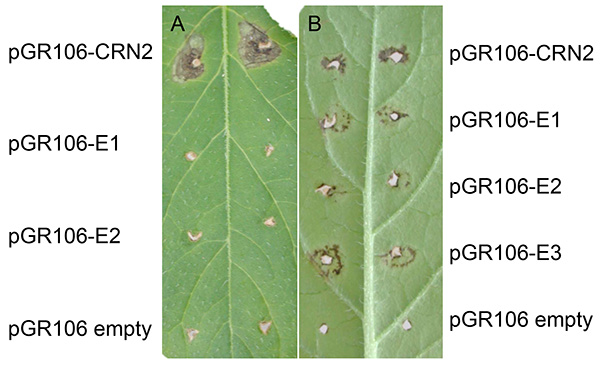
图3. 马铃薯中PVX农杆菌侵染的示例。 马铃薯基因型MaR3(Mastenbroek R3)(A) 和 Solanum huancabambense 354-1 (B) 通过牙签接种pGR106-CRN2(阳性对照)、pGR106-empty(阴性对照)以及效应子pGR106-E1-2或pGR106-E1-E3。 点击此处查看高清图像。
表1. YEB培养基
| 1 L | 蒸馏 H2O |
| 5 g | 蔗糖 |
| 5 g | 牛肉浸膏 |
| 5 g | 细菌用蛋白胨 |
| 1 g | 酵母提取物 |
| 2 ml | MgSO4 (1 M) |
表2. 用于农杆菌浸润和PVX农杆菌感染的载体与菌株。 可使用多种双元载体。下表所列载体可实现候选基因的高效表达,且在我们的实验中表现良好。在 N. benthamiana 中,我们优先选用 Agrobacterium strain GV3101(pMP90)29;而在马铃薯中,我们发现含有辅助质粒pVirG(pBBR1MCS-5.virGN54D)23的AGL130更为适用31。其他研究团队已在包括 N. benthamiana 在内的多种模式植物中测试过其他菌株,但尚未在马铃薯中进行验证32。

GW:gateway 版本36
表3. MMA培养基。

将 pH 调整至 5.6。
讨论
农杆菌浸润和农杆菌侵染等瞬时检测方法是现代分子植物病理学研究中的重要高效技术。尽管存在一些局限性,这些方法仍能满足植物中高效、稳健的高通量功能分析的需求。
农杆菌渗入系统是在多种植物物种中广泛使用的一种功能检测方法。农杆菌渗入可将多个转基因同时导入同一细胞,并实现相互作用蛋白的共表达。通过共渗入,该方法有利于重现R-AVR之间的相互关系。 农杆菌 表达的菌株 Avr 带有表达匹配基因的菌株 R 基因。此外,对于已知的R-AVR配对,此类共浸润实验可作为阳性对照。设置此类对照非常重要,因为在某些植物基因型中,转化效率可能低于检测反应的阈值。还需设置阴性对照, 例如 一个 农杆菌 含有无基因插入载体的菌株,对于确定某种植物基因型是否对载体产生非特异性防御反应也至关重要 农杆菌该特征在马铃薯种质资源中以一定频率出现,并非所有 Solanum 该物种非常适合此用途 农杆菌基于表达系统。通常,农杆菌浸润实验在 N. benthamiana 以及大多数马铃薯基因型。除效应子组学外,农杆菌渗入技术还有多种其他潜在应用,例如通过转基因表达生产蛋白质,以及利用共聚焦显微镜观察蛋白质在植物细胞中的定位。
PVX 农杆菌侵染是一种高度敏感的筛选系统,通常更适合高通量筛选。由于 农杆菌 目前仅局部存在对该细菌的非特异性反应,由于PVX病毒接管了外源基因的进一步扩散,这些反应已不再造成显著干扰。然而,植物可能对PVX具有抗性,或产生极端抗性(ER)反应,在这种情况下,农杆菌侵染法并不适用。PVX农杆菌侵染法的另一局限性在于目的基因的插入片段大小。所观察到的反应表型可能从伤口周围强烈的黑色坏死,到接种点附近的轻微坏死不等。在两种情况下 N. benthamiana 和 Solanum 物种,PVX 农杆菌感染被认为比农杆菌浸润更敏感。
考虑到不同测试植物基因型的遗传背景可能存在某些限制(见上文),我们通常通过PVX农杆菌感染和农杆菌浸润获得相似的结论。这些结果与其他实验方法(如蛋白浸润29和ELISA3)所得结果也具有可比性。鉴于这两种系统各自的优势与局限性,我们建议同时使用这两种方法,以实现结果互补或验证独立实验结果。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作部分由瓦赫宁根大学基金(WUF)、中国国家留学基金管理委员会研究生项目以及荷兰科学研究组织-VIDI 资助项目 12378 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 牛肉浸膏 | Sigma-Aldrich | B4888 | |
| 细菌用蛋白胨 | Oxoid | LP0037 | |
| 酵母提取物 | Oxoid | LP0021 | |
| MgSO4 | Sigma-Aldrich | 208094 | |
| MS盐(不含维生素) | Duchefa Biochemie | M0221 | |
| MES | Duchefa Biochemie | M1503 | |
| LB肉汤粉末 | Sigma-Aldrich | L3022 | |
| 乙酰丁香酮 | Sigma-Aldrich | D134406 | |
| 注射器(1 ml) | BD Plastipak | 300013 | |
| 培养箱 | Infors HT | Multitron II | |
| 离心机 | Heraeus | Multifuge 3S-R | |
| 分光光度计 | Eppendorf | Biophotometer 6131 |
参考文献
- Vleeshouwers, V. G. A. A., et al. Understanding and exploiting late blight resistance in the age of effectors. Ann. Rev. Phytopathol. 49, 507-531 (2011).
- Ellis, J. G., Rafiqi, M., Gan, P., Chakrabarti, A., Dodds, P. N. Recent progress in discovery and functional analysis of effector proteins of fungal and oomycete plant pathogens. Curr. Opin. Plant Biol. 12, 399-405 (2009).
- Vleeshouwers, V. G. A. A., et al. Effector genomics accelerates discovery and functional profiling of potato disease resistance and Phytophthora infestans avirulence genes. Plos One. 3, 1-10 (2008).
- Oh, S. K., et al. In planta expression screens of Phytophthora infestans RXLR effectors reveal diverse phenotypes, including activation of the Solanum bulbocastanum disease resistance protein Rpi-blb2. Plant Cell. 21, 2928-2947 (2009).
- Tyler, B. M., et al. Phytophthora genome sequences uncover evolutionary origins and mechanisms of pathogenesis. Science. 313, 1261-1266 (2006).
- Haas, B. J., et al. Genome sequence and analysis of the Irish potato famine pathogen Phytophthora infestans. Nature. 461, 393-398 (2009).
- Levesque, C. A., et al. Genome sequence of the necrotrophic plant pathogen Pythium ultimum reveals original pathogenicity mechanisms and effector repertoire. Genome Biol. 11, 1-22 (2010).
- Lamour, K. H., Win, J., Kamoun, S. Oomycete genomics: new insights and future directions. FEMS Microbiol. Lett. 274, 1-8 (2007).
- Stassen, J. H. M., et al. Effector identification in the lettuce downy mildew Bremia lactucae by massively parallel transcriptome sequencing. Mol. Plant Pathol. 13, 719-731 (2012).
- Kemen, E., et al. Gene gain and loss during evolution of obligate parasitism in the white rust pathogen of Arabidopsis thaliana. PLoS Biol. 9, 1-21 (2011).
- Win, J., et al. Effector biology of plant-associated organisms: concepts and perspectives. , Cold Spring Harbor. 1-13 (2012).
- Hogenhout, S. A., van der Hoorn, R. A. L., Terauchi, R., Kamoun, S. Emerging concepts in effector biology of plant-associated organisms. Mol. Plant Microbe Interact. 22, 115-122 (2009).
- Kamoun, S. A catalogue of the effector secretome of plant pathogenic oomycetes. Ann. Rev. Phytopathol. 44, 41-60 (2006).
- van der Hoorn, R. A. L., Laurent, F., Roth, R., De Wit, P. J. G. M. Agroinfiltration is a versatile tool that facilitates comparative analyses of Avr9/Cf-9-induced and Avr4/Cf-4-induced necrosis. Mol. Plant Microbe Interact. 13, 439-446 (2000).
- Dangl, J. L., Jones, J. D. G. Plant pathogens and integrated defence responses to infection. Nature. 411, 826-833 (2001).
- Kapila, J., de Rycke, R., van Montagu, M., Angenon, G. An Agrobacterium-mediated transient gene expression system for intact leaves. Plant Sci. 122, 101-108 (1997).
- Kanneganti, T. D., Huitema, E., Kamoun, S. In planta expression of oomycete and fungal genes. Methods Mol. Biol. 354, 35-43 (2007).
- Vleeshouwers, V. G. G. A., Rietman, H. In planta expression systems. Oomycete Genetics and Genomics. Diversity, Interactions, and Research Tools. Lamour, K., Kamoun, S. 23, 455-475 (2009).
- Peng, W. T., Lee, Y. W., Nester, E. W. The phenolic recognition profiles of the Agrobacterium tumefaciens VirA protein are broadened by a high level of the sugar binding protein ChvE. J. Bacteriol. 180, 5632-5638 (1998).
- Lu, R., et al. High throughput virus-induced gene silencing implicates heat shock protein 90 in plant disease resistance. EMBO J. 22, 5690-5699 (2003).
- Ma, L., Lukasik, E., Gawehns, F., Takken, F. L. W. The use of agroinfiltration for transient expression of plant resistance and fungal effector proteins in Nicotiana benthamiana leaves. Methods Mol. Biol. 835, 61-74 (2012).
- Bhaskar, P. B., Venkateshwaran, M., Wu, L., Ané, J. M., Jiang, J. Agrobacterium-mediated transient gene expression and silencing: A rapid tool for functional gene assay in potato. Plos One. 4, 1-8 (2009).
- van der Fits, L., Deakin, E. A., Hoge, J. H. C., Memelink, J. The ternary transformation system: constitutive virG on a compatible plasmid dramatically increases Agrobacterium-mediated plant transformation. Plant Mol. Biol. 43, 495-502 (2000).
- Huang, S., et al. Comparative genomics enabled the isolation of the R3a late blight resistance gene in potato. Plant J. 42, 251-261 (2005).
- Armstrong, M. R., et al. An ancestral oomycete locus contains late blight avirulence gene Avr3a, encoding a protein that is recognized in the host cytoplasm. Proc. Natl. Acad. Sci. U.S.A. 102, 7766-7771 (2005).
- Kim, H. J., et al. Broad spectrum late blight resistance in potato differential set plants MaR8 and MaR9 is conferred by multiple stacked R genes. Theor. Appl. Genet. 124, 923-935 (2012).
- Torto, T. A., et al. EST mining and functional expression assays identify extracellular effector proteins from the plant pathogen Phytophthora. Genome Res. 13, 1675-1685 (2003).
- Vleeshouwers, V. G. A. A., et al. Agroinfection-based high-throughput screening reveals specific recognition of INF elicitins in Solanum. Mol. Plant Pathol. 7, 499-510 (2006).
- Koncz, C., Schell, J. The promoter of TL-DNA gene 5 controls the tissue-specific expression of chimeric genes carried by a novel type of agrobacterium binary. Mol. Gen. Genet. 204, 383-396 (1986).
- Lazo, G. R., Stein, P. A., Ludwig, R. A. A DNA transformation-competent Arabidopsis genomic library in Agrobacterium. Bio-Technol. 9, 963-967 (1991).
- Rietman, H. Putting the Phytophthora infestans genome sequence at work; multiple novel avirulence and potato resistance gene candidates revealed [PhD thesis]. , Wageningen University. (2011).
- Wroblewski, T., Tomczak, A., Michelmore, R. Optimization of Agrobacterium-mediated transient assays of gene expression in lettuce, tomato and Arabidopsis. Plant Biotechnol. J. 3, 259-273 (2005).
- van engelen, F. A., et al. pBINPLUS - an improved plant transformation vector based on pBIN19. Transgenic Res. 4, 288-290 (1995).
- Karimi, M., Inze, D., Depicker, A. GATEWAYTM vectors for Agrobacterium-mediated plant transformation. Trends Plant Sci. 7, 193-195 (2002).
- Xiang, C. B., Han, P., Lutziger, I., Wang, K., Oliver, D. J. A mini binary vector series for plant transformation. Plant Mol. Biol. 40, 711-717 (1999).
- Curtis, M. D., Grossniklaus, U. A gateway cloning vector set for high-throughput functional analysis of genes in planta. Plant Physiol. 133, 462-469 (2003).
重印与许可
