本研究采用单脉冲经颅磁刺激刺激初级运动皮层,结合神经导航以及手部肌肉肌电活动的记录,探索受试者观察动作序列时的皮质脊髓兴奋性。
本文内容
摘要
摘要
本研究采用经颅磁刺激/运动诱发电位(TMS/MEP)技术,以确定个体在观察他人动作时,从自动模仿倾向转变为对互补动作进行预期性模拟的具体时机。将经颅磁刺激施加于对应手部的左侧初级运动皮层,以诱发小指展肌(ADM;负责小指外展的肌肉)和第一背侧骨间肌(FDI;负责示指屈伸的肌肉)最大程度的运动诱发电位活动。使用神经导航系统以维持TMS线圈的位置,并记录右侧ADM和FDI肌肉的肌电图(EMG)活动。TMS/MEP技术结合了运动共振的原始数据,在研究感知-动作耦合机制方面推进了一步。具体而言,该技术回答了以下问题:观察他人动作如何以及何时在观察者的相应肌肉中引发运动易化,以及在社会情境中皮质脊髓兴奋性以何种方式被调节。
引言
在过去的十年中,神经科学研究在很大程度上改变了人们对运动系统的传统观点。大量数据表明,观察他人的身体动作会激活观察者大脑中的运动表征(例如1-3)。这些研究表明,观察者的运动皮层会动态地复制所观察到的动作,仿佛这些动作是由观察者自身执行的一样。经颅磁刺激(TMS)可用于以相对较高的时间分辨率评估皮质脊髓(CS)兴奋性,从而追踪个体观察他人执行动作时的兴奋性变化。
经颅磁刺激(TMS)的基本原理是:刺激线圈中的变化初级电流产生变化的磁场,该磁场继而根据法拉第定律4在邻近的导体中感应出次级电流——在此情况下即为大脑皮层组织。 大脑是一种非均质导体,由白质、灰质和脑脊液组成,其电导率分别为 0.48、0.7 和 1.79 S/m5。分析表明,在磁刺激的应用中,大脑可被近似视为均质导体5。神经元的去极化是由感应电流引起的,该过程的核心是电荷跨神经细胞膜转移,从而使细胞内电位升高约 30–40 mV。当正离子被驱动进入神经细胞时,其细胞内电位上升;若该上升幅度足够大,则会引发动作电位5。Priori 及其同事6首次证明,微弱电流可通过测量运动诱发电位(MEP)的幅度来调节人类运动皮层的兴奋性。事实上,大量关于人类运动皮层磁刺激的研究都集中在手部固有肌的肌电图(EMG)反应上7。2004 年,Uozomi 及其同事8发现,在 44 区施加单脉冲经颅磁刺激(spTMS)可轻易中断目标导向的手部运动,并从手部肌肉记录到运动诱发电位。人类 44 区对紧张性和时相性手指运动均具有促进和抑制作用9–10,并且拥有直接的快速传导的皮质脊髓投射。
1995年,Fadiga 及其同事首次提供了证据,表明皮质脊髓兴奋性不仅在自主运动期间受到调节,而且在动作观察期间也会发生变化3。研究人员对初级运动皮层(M1)的手部区域施加经颅磁刺激(TMS),同时记录对侧手部肌肉的运动诱发电位(MEPs),并要求志愿者观察可传递性动作和不可传递性动作(前者具有明确目标,后者则无)。结果发现,在观察抓握动作时,记录自拇对掌肌(OP)和第一指固有肌(FDI)的MEPs振幅较对照条件显著增强。由此引发了一个问题:在动作观察过程中被易化的肌肉是否与动作执行时所使用的肌肉相同?研究发现,在抓握物体和手臂抬举过程中记录到的手部肌肉的肌电图(EMG)反应,与动作观察期间由TMS诱发的MEPs模式完全一致。一些研究团队已成功重复了这些实验,并设计了其他相关研究11-16。
在动作观察过程中,观察者的运动系统实际上会与所观察的动作产生"共振",并在阈值以下以严格对应的方式模拟这些动作。由于观察者所涉及的肌肉与执行动作者所使用的肌肉相同,因此这些肌肉活动在时间上与所观察动作的动态过程相耦合。2001年,Gangitano 及其同事证明,执行-观察匹配系统甚至在时间编码方面也与所观察的动作相关联17。随着手指张开程度的增加,运动诱发电位(MEP)的幅值增大,而在手指闭合阶段则减小。Clark et al.18 旨在评估当参与者观看、被要求想象或观察那些被告知稍后需要自己执行的动作时,皮质脊髓(CS)易化作用的特异性。这些研究者报告指出,这三种条件之间似乎不存在任何统计学上的显著差异。
目前至少存在两种解释动作观察所诱发的运动诱发电位(MEP)易化的假说。根据第一种假说,初级运动皮层(M1)兴奋性的增强是通过兴奋性皮质-皮质连接实现的。根据第二种假说,经颅磁刺激(TMS)通过刺激脊髓下行冲动,揭示了运动神经元(MNs)的易化现象。由M1或运动神经元兴奋性变化引起的MEP振幅调制无法被区分开来。Baldissera等人et al.19为研究与MEP易化相关的脊髓兴奋性,选择在志愿者观察目标导向的手部动作时,测量指屈肌前臂肌肉的霍夫曼反射(Hoffmann反射,通过刺激外周神经中的传入纤维诱发)的振幅。他们报告指出,尽管皮层兴奋性的调制紧密模仿了所观察的动作,仿佛观察者自身正在执行这些动作,但脊髓兴奋性却呈现出相反的调制模式。这些研究者认为,该效应反映了阻止观察动作外在执行的一种机制的表现。在动作观察过程中,经TMS诱发的运动电位的调制3,20,21似乎对参与动作执行的肌肉具有特异性3,并以一种前瞻性的模式22遵循相同的时序激活规律17,23。在此基础上,Urgesi及其同事24,25 最近发现,观察抓握动作的起始阶段和中间阶段所引发的运动易化程度显著高于观察其最终姿势阶段。运动易化在唤起正在进行但尚未完成动作的图像时达到最大。这些结果提供了有力证据,表明动作观察-执行匹配系统的额叶成分在预测编码他人运动行为中起着重要作用。
然而不可否认的是,现实世界中的成功互动往往需要互补性而非模仿性的动作26,且模仿并不总是对应动作观察的有效或恰当反应。例如,当某人将手握杯柄的杯子递给他人时,我们都知道接收者会不假思索地用手整体握住杯身(这是此情境下唯一恰当的动作)。目前尚不清楚,我们运动系统中将所观察动作自动匹配的僵化倾向,如何能与准备非相同反应的需求相协调。在这方面,一些研究人员已表明,经过不相容训练后,镜像反应的自动效应可以被消除:镜像与反镜像反应似乎遵循相同的时间进程27,28。有趣的是,与以往研究不同,最近有研究采用spTMS诱导的MEP来评估在单纯观察引发模仿性或非相同的互补性手势视频片段时,皮质脊髓的自发激活情况29,30。结果表明,皮质脊髓活动在动作序列初期表现为模仿性匹配机制,但当出现需要做出相应回应动作的提示时,该机制会自然地转变为互补性动作。
基于这些结果,本研究旨在利用联合经颅磁刺激/运动诱发电位(TMS/MEP)技术,明确当动作观察引发互补性反应时,从模仿到互惠的自发转变发生在哪个阶段。随后,在动作序列的五个不同时间点记录来自手部第一背侧骨间肌(FDI)和小指展肌(ADM)的运动诱发电位(MEPs)。我们假设,在观察者最初感知到全手抓握动作时记录的MEPs可能会同时引起ADM和FDI肌肉的易化,因为这类抓握通常会募集这两种肌肉。相反,当所观察的手势在观察者中引发非相同但互补的手势(即 对掌抓握,PG)时,仅从FDI肌肉记录的MEPs应显示出明显的激活增强,这是因为对掌抓握(PG)不涉及ADM肌肉的募集。我们还预测,当所观察的动作不具有任何社会意义时,在整个动作序列期间应仅出现简单的对称性易化效应。
方案
1. 视频刺激材料的准备
- 安排模特执行四个动作序列。
- 在前两个动作序列中,让模特坐在一张桌子旁,面朝摄像机。在她附近的桌面上放置三个马克杯,另一个马克杯则放在桌子另一侧前景位置,距离较远。指示模特开始动作时伸手去拿取一个糖勺。
- 指示模特开始向三个马克杯中倒入糖。当她完成向第三个马克杯倒糖后,指示模特移动手腕,仿佛也打算向第四个马克杯中倒糖。
- 指示模特开始向三个马克杯中倒入糖。当她完成向第三个马克杯倒糖后,让模特移动手腕,使其回到初始位置。
- 在最后两个动作序列中,再次让模特坐在一张桌子旁,面朝摄像机。在她附近的桌面上放置三个意式浓缩咖啡杯,另一个咖啡杯则放在桌子另一侧前景位置,距离较远。指示模特开始动作时伸手去拿取一个保温瓶。
- 指示模特开始向三个意式浓缩咖啡杯中倒入咖啡。当她完成向第三个咖啡杯倒咖啡后,让模特移动手腕,仿佛也打算向第四个咖啡杯中倒咖啡。
- 指示模特开始向三个意式浓缩咖啡杯中倒入咖啡。当她完成向第三个咖啡杯倒咖啡后,让模特移动手腕,使其回到初始位置。
- 指示模特使用精细抓握(PG;i.e. 拇指与食指对捏)拿起并持握糖勺,并使用全手抓握(WHG;i.e. 拇指与其他手指协同握持)以自然方式拿起并持握保温瓶。
- 在每个视频片段开始时,指示模特展示其手部处于前臂旋前姿势并静置于桌面上。
- 安排模特在约900毫秒后开始执行伸手抓握动作。
- 安排模特的手指在约450毫秒后与第一个物体接触。
- 让模特在5,000毫秒后开始移动手部,执行第二个动作步骤。
- 采用数字化技术对模特的动作进行事后运动学分析
- 逐帧手动标记模特手腕位置,以标记每个动作。
- 追踪模特的动作。确定轨迹偏差(Trajectory Deviation):即手部运动轨迹在社会性与非社会性条件下开始分化的时刻。将表征动作序列的最显著运动学事件与经颅磁刺激(TMS)的时间点精确对齐。
2. 仪器准备
- 将四个烧结的Ag/AgCl双极表面电极和一个单极表面电极(15 kΩ,1.5 mm防触电安全插孔,传感器面积为9 mm直径)连接至一个隔离的便携式ExG输入盒,该输入盒通过主EMG放大器进行信号采集。建议使用双光纤电缆进行信号传输,但非强制要求。
- 在配备显示器(分辨率1,280 × 1,024像素,刷新频率75 Hz,背景亮度0.5 cd/m2)的计算机上运行E-Prime呈现软件,管理用于个体静息运动阈值(rMT)评估、视频刺激呈现以及与EMG记录同步的经颅磁刺激(TMS)刺激的脚本。
- 通过选择一系列单帧图像(每帧30毫秒,30帧/秒),并使首帧和末帧分别持续500毫秒和1,000毫秒,实现动画效果。
3. 受试者招募
- 仅招募视力正常或矫正视力正常的右利手参与者。使用标准利手问卷(Standard Handedness Inventory)检查利手情况。31.
- 确认候选受试者是否存在经颅磁刺激(TMS)的禁忌证32,33.
- 排除癫痫发作风险高于正常水平的受试者(基于个人或家族性癫痫史、神经外科手术史、脑损伤史)或正在接受神经活性药物治疗的受试者,因为TMS已知的主要健康风险是诱发癫痫发作。
- 排除孕妇,因为经颅磁刺激(TMS)对胎儿的风险尚不明确。
- 向所有参与者提供有关研究的基本信息,并要求他们签署书面的知情同意书。
- 可在隔音的法拉第屏蔽室内进行实验:建议如此,但非强制要求。
- 让受试者坐在舒适的扶手椅上。
- 将其右臂置于全臂托上。
- 将受试者的头部固定在头托上。眼睛与屏幕的距离应根据刺激呈现的大小来确定。
- 请受试者取下所有金属物品(耳环、项链、 等。)以及对磁场敏感的物品(如手机、信用卡),因为线圈中电流的快速变化可能产生变化的磁场。
- 指导参与者仔细观看视觉刺激材料,并保持高度注意力;告知他们之后将就所看内容进行提问。
4. TMS 刺激与 MEP 记录
- 通过触诊确定电极在ADM和FDI肌肉上方的位置,触诊时受试者需进行最大自主肌肉收缩。对所有电极放置部位(包括接地电极)的皮肤进行清洁。使用纱布垫将磨砂皮肤预处理凝胶均匀涂抹于整个部位,轻轻揉擦,然后用干净的纱布垫去除多余凝胶。
- 在每块肌肉上放置两个表面电极,每个电极含有少量水溶性脑电图导电膏,并使用自粘贴片将其固定在皮肤上。
- 在右侧小指展肌(ADM)和第一指深屈肌(FDI)的肌腹处放置记录电极,将参考电极置于同侧掌指关节,完成腹-腱联合记录。在受试者左腕处粘贴一个含导电膏的接地电极。
- 将电极连接到ExG输入盒的公共输入端,并检查阻抗值。如果阻抗值高于阈值(>5 Ω),需再次准备皮肤。
- 向左侧初级运动皮层(M1)手区对应的头皮部位输送单脉冲经颅磁刺激(TMS),使用70 mm figure-of-eight 线圈连接至 Magstim 200 刺激器。
注意:基本的经颅磁刺激(TMS)刺激器由电源、能量储存元件以及一个由处理器精确控制的高功率开关组成,该处理器接收来自设备操作员的控制输入。TMS刺激器的基本工作原理是产生一个变化的磁场,从而在邻近的导电材料(如皮层组织)中感应出电流。当在组织中感应出足够密度的电流时即可引发组织刺激,该电流密度与磁通密度随时间的变化率成正比。34使用“8”字形线圈时,感应电场的等电位线形成一个椭圆,其长轴与线圈连接处的电流方向平行。35.- 将线圈相对于大脑半球间裂呈45°角放置,并使其相对于中央沟垂直定位:当脑内感应电流的方向大致与中央沟垂直时,可达到最低运动阈值36,37.
- 将手柄指向外侧和尾侧,以通过中央前回诱导产生从后向前的脑电流38在较低但高于阈值的刺激强度下,经颅磁刺激(TMS)诱导的电流优先激活投射至皮质脊髓神经元的中间神经元的轴突。此时,抑制性和兴奋性突触均被激活,但在该刺激强度下,其总体效应表现为皮质脊髓神经元产生兴奋性突触后电位。
- 在额下回岛盖部上方确定最佳头皮位置(OSP)。在OSP处施加略高于阈值强度的刺激, invariably 从对侧ADM和FDI肌肉引出最高水平的运动诱发电位(MEP)活动。
- 使用国际 10-20 系统(刺激位点对应于 C3 位置)确定手部肌肉运动诱发电位(MEPs)的最优刺激位点(OSP),然后以约 0.5 cm 的步长在目标区域周围移动线圈交叉点,并以恒定强度施加经颅磁刺激(TMS)脉冲。
- 在准确定位目标区域后,使用机械支架固定线圈,以保持位置的一致性。
- 使用神经导航系统以在整个实验过程中保持线圈位置的恒定,防止因受试者头部在数据采集期间发生微小移动而引入偏差。
- 在刺激线圈和受试者头部均粘贴被动式球形标记。
- 使用光学数字化仪记录标记点位置,以便在计算机屏幕上重现。
- 检测空间线圈位置和方向的任何差异,并对每个笛卡尔坐标采用 2-3 mm 的容差。
- 利用关于初始和实际线圈放置位置的三维在线信息,以便在实验过程中根据需要实时精确定位经颅磁刺激(TMS)线圈的重新放置。
- 确定 "个体静息运动阈值" 在OSP上为每位参与者测定rMT,即在十次连续刺激中,有五次在放松的肌肉中诱发出可靠的MEP(峰-峰幅值≥50 μV)所需的最小刺激强度。确定OSP及兴奋性较低肌肉的rMT,以避免遗漏涉及兴奋性较低肌肉的任何差异性调节。
- 将刺激强度保持在固定值(即 整个记录过程中为 rMT 的 110%。
- 使用带通滤波器(20 Hz-1 kHz)记录原始肌电图信号。经放大后,以5 kHz采样率对信号进行数字化处理,并存储于计算机中以供离线分析。
- 实验开始时,让受试者被动观看计算机屏幕上黑色背景中的白色注视十字,同时记录10个运动诱发电位(MEPs)。
- 在实验结束时再记录10个MEP。
- 在TMS脉冲刺激后的五个可能时间点之一,记录右侧ADM和FDI肌肉的肌电图(EMG)数据图1)即:
- 当模型的手首次接触糖勺或保温瓶时(T1).
- 当模型将糖/咖啡倒入第三个杯子/马克杯后(T2).
- 当模型开始将她的手从第三个杯子/马克杯(T3).
- 当模型的手臂开始返回起始位置或开始向第四个位置移动时 杯/马克杯(分别对应非社交和社交条件)(T4).
- 当模型的手臂回到起始位置或到达第四个杯子/马克杯时(分别对应非社交和社交条件)(T5).
- 在视频之间插入10秒的休息间隔。在休息间隔的前5秒内显示提示信息,提醒参与者双手保持静止并完全放松。提示信息消失后,在剩余的5秒内显示一个注视十字。
5. 总结讨论
- 在会话结束时,向参与者提供有关实验设计的详细信息。
6. 数据分析
- 进行事后运动学分析。
- 设定一个坐标系,将 x- 轴和 y-轴分别定义为水平和垂直方向,并逐帧分析视频样本。
- 使用摄像机视野内且位于运动平面内的已知长度作为参考单位进行测量。
- 在模型的手腕处设置标记点,以测量上肢的运动学参数。
- 将起始位置定义为模型右手掌心向下静置于桌面上的时刻。追踪手腕在空间和时间中的运动轨迹,提取轨迹路径,并识别表征模型双步动作的关键运动学事件。
- 分析肌电图(EMG)数据。
- 以参考标记(TMS 刺激)为基准,将每块肌肉的 EMG 记录划分为相同长度的不同时间段(时段),设定时间窗为 TMS 脉冲前 100 毫秒至 TMS 脉冲后 200 毫秒,以便检测可能存在的背景活动。
- 在每通道 EMG 信号中选择一个精确的时间范围 (例如 10–40 毫秒),用于在所有时段中搜索峰值。
- 应用一种算法,该算法考虑每个时段内的正负峰值,并计算 EMG 曲线从峰到峰的最大振幅(单位:μV)。
- 剔除背景 EMG 活动超过 100 µV 的试验,以避免背景活动对运动诱发电位(MEP)测量结果的污染。
- 分别计算 ADM 和 FDI 肌肉在每种条件下峰-峰 MEP 振幅的平均值,剔除偏离均值超过 2 个标准差的数据(离群值)。
- 比较每位参与者在实验开始和结束时的固定十字基线试验中记录的两组 MEP 振幅,以检验与 TMS 本身相关的皮质脊髓兴奋性变化。这两组振幅的平均值也可用于为每个肌肉单独设定个体基线值,以进行后续数据归一化处理39。
- 使用参与者的个体基线值计算比值(MEP 比值 = MEPobtained/MEPbaseline)39。
结果
利用TMS/MEP技术评估动作观察期间皮质脊髓兴奋性的有效性,取决于准确定位拇短展肌(ADM)和第一骨间背侧肌(FDI)的最优头皮位置。应采用肌腹-肌腱导联方式放置表面电极,并须符合常规单脉冲刺激模式。
本研究纳入了30名参与者(22名女性和8名男性:年龄 = 21±5岁),所有参与者均根据标准利手问卷31确定为右利手,且具有正常或矫正至正常的视力。所有参与者均无经颅磁刺激(TMS)的禁忌症32,33,且在实验过程中未感到任何不适。本研究所述实验程序已获得伦理批准(帕多瓦大学伦理委员会),符合1964年《赫尔辛基宣言》的原则,所有参与者均签署了书面知情同意书。
根据我们的假设,当需要采取互补性动作变得明显时,所记录到的运动诱发电位(MEPs)应会因前景中放置的物体不同而有所调制。当4th 咖啡杯会引发执行PG动作的倾向,此时仅应激活FDI肌。但当模型朝向4时th 当观察者看到模型执行握杯动作时,若该动作诱发了腕屈肌群(WHG),则ADM和FDI肌肉均应被激活。由于FDI肌肉在精确抓握(PG)和腕屈肌群(WHG)中均被募集,因此在不同抓握类型下不应预期MEP出现调制变化。此外,在模型首次抓握保温杯的瞬间,记录观察者手部的MEP应显示例如ADM和FDI肌肉均出现运动易化,即表现出与典型WHG相关的肌肉激活模式。相反,当观察模型的手移向第四个咖啡杯时,仅应出现FDI肌肉的易化,因为在此精确抓握(PG)动作中仅涉及FDI肌肉,而不涉及ADM肌肉。
观察一个隐含请求互补动作的两步行为序列,会导致旁观者的皮质脊髓活动从模仿转变为响应性,并在所进行的试验中精确指示出该转变发生的时间(图2)。
当模型的手腕开始向第四个杯子移动时(社会性条件),观察者手部拇短展肌(ADM)的运动诱发电位(MEPs)立即出现变化,预示着一种交互性动作的发生。相反,当模型的手腕开始返回其原始位置时(非社会性条件,见图3),观察者的MEPs中则出现预示模仿性动作的变化。正如预期,第一骨间背侧肌(FDI)在所有被观察的动作和模拟动作中均积极参与(见图4和图5)。因此,这些结果表明,人类甚至在动作变得明显之前,就能够将其编码为社会性或非社会性行为。可以得出结论:观察者能够敏锐地感知由细微运动学线索所提供的前瞻性运动信息,并利用这些信息来预测后续的行为进程。在本研究所描述的实验过程中,参与者仅通过观察几乎难以察觉的运动学线索,便展现出区分由社会性或非社会性条件引发动作的能力。在实验过程中,皮质脊髓兴奋性的调制被证实为衡量个体在互动情境中激活适当运动程序能力的一种可靠且间接的指标。
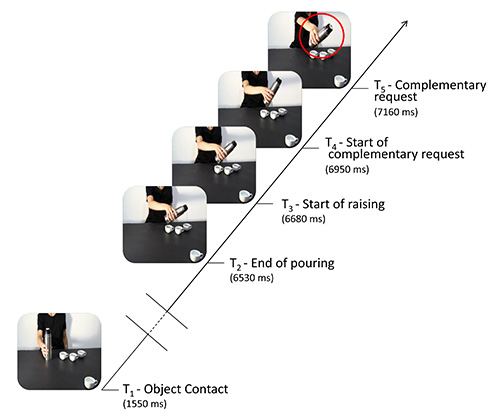
图 1. 此处示意图展示了每次试验中发生的事件序列。 连续的斜线表示整个视频片段的呈现过程。水平线表示单脉冲经颅磁刺激(TMS)施加的时间点:T1(模型的手接触杯子/马克杯时),T2(模型完成倒糖/咖啡动作时),T3(模型开始将手从第三个杯子/马克杯移开时),T4(模型的手开始返回原始位置或移向第四个杯子/马克杯时——被视为互补手势提示的起始点),以及 T5(模型的手臂明显返回原始位置或移向第四个杯子/马克杯时——被视为互补手势提示的结束点)。图中未显示的帧(即模型接触糖匙/保温瓶至完成倒糖/咖啡动作之间的时间段)以两条斜杠表示。
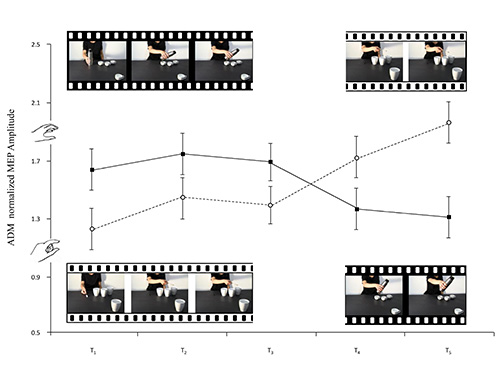
图 2. 本研究拍摄的视频片段中提取的帧图像与图表中的曲线相对应,曲线表示 ADM 标准化 MEP 振幅的平均值。 图中展示了需要掌侧抓握(PG)的社交性全手抓取动作和需要指腹抓握(WHG)的社交性精细抓握动作(分别为黑白图像)。误差线表示平均值的标准误。
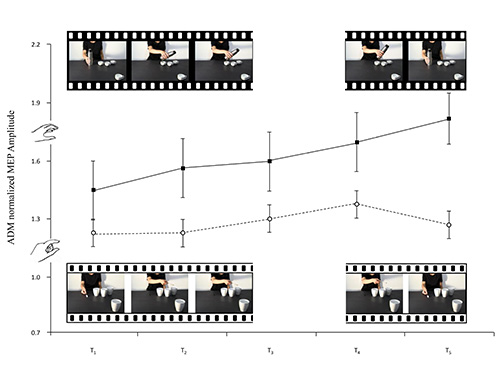
图3. 本研究拍摄的视频片段中提取的帧图像与图表中的曲线相对应,曲线表示ADM标准化MEP幅值的平均值。图中展示了需要掌抓(PG)的非社交性全手抓握动作和需要精细抓握(WHG)的非社交性精细抓握动作(分别为黑白图像)。误差线表示平均值的标准误。
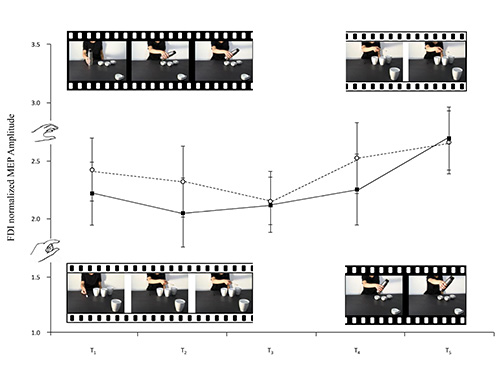
图4. 本研究拍摄的视频片段中提取的帧图像与图表中的曲线相对应,曲线表示小指展肌(FDI)归一化运动诱发电位(MEP)幅值的平均值。图中展示了需要掌侧抓握(PG)的社会性全手抓握动作,以及需要手指捏握(WHG)的社会性精细抓握动作(分别为黑白图像)。误差线表示平均值的标准误。
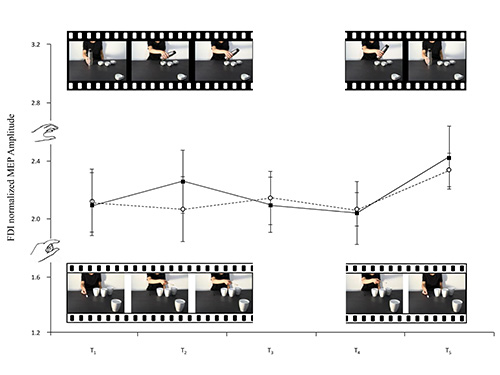
图5. 本研究拍摄的视频片段中提取的帧图像与图表中的曲线相对应,曲线表示FDI标准化MEP幅值的平均值。图中展示了需要掌侧抓握(PG)的非社交性全手抓握动作和需要精细抓握(WHG)的非社交性精细抓握动作(分别为黑白图像)。误差线表示平均值的标准误。
讨论
在人类动作观察过程中测量皮质脊髓兴奋性调制的最关键步骤包括:1)设计或拍摄能够诱发观察者产生模仿和互补反应倾向的视频片段;2)确定表征示范动作各个阶段的运动学事件,以便相应地进行经颅磁刺激(TMS)的时间锁定;3)确定每块手部肌肉的最佳头皮位置,并在整个实验过程中保持位置一致;4)正确记录受刺激肌肉的肌电图(EMG)活动。
以往利用TMS/MEP技术的研究表明,动作观察所引发的皮质脊髓激活并不总是具有模仿倾向,而是根据情境因素的不同,也可能为互补性动作的运动激活做好准备29,30。单脉冲TMS研究已证实,当观察包含互补性请求的两步动作序列时,参与者皮质脊髓活动会从模仿转向响应状态。本研究更进一步,明确了这种转换发生的具体时间,并证明人类能够通过观察预示需要或请求互补反应的早期运动学线索,来预测动作中的社会意图。事实上,提前的运动信息已足以使观察者推断出其背后的目的。因此,动作观察的神经机制似乎是可塑的、迅速的,并且对社会情境中嵌入的复杂请求具有敏感性。未来的研究将进一步分析该过程的信息处理是序列性还是并行性的。采用此类范式的神经影像学研究将有助于进一步阐明这一机制,明确从模仿转向互惠反应能力所依赖的皮层网络。
这些结果还将为将来应用经颅磁刺激(TMS)/肌电图(EMG)技术研究皮质脊髓兴奋性及运动系统可塑性指明方向。大量研究已表明,利用经颅磁刺激评估运动皮层功能在临床环境中是安全、可靠且具有潜在应用价值的40.46。事实上,对运动诱发电位(MEP)振幅进行纵向比较,可直接评估运动皮层可塑性效应。
近期研究报道,动作观察对中风后运动功能障碍的康复具有积极影响,可有效用于重新激活需要恢复运动控制能力个体的运动区域47。因此,可开发一种互补性的动作观察治疗策略,通过观察互补性手势来重新激活受损的运动技能。如果运动行为确实如目前所见,是内在与外在因素共同作用的结果,那么在旨在康复此类患者的训练方案中,应纳入动作观察。日常动作的观察结合身体练习,可能为更有效的康复策略开辟道路。迄今为止,临床改善的评估仅使用了功能性或主观量表等间接指标;未来可利用经颅磁刺激/肌电图(TMS/EMG)评估来测量这些患者的功能性改善。
总之,本研究阐明了观察他人动作如何以及何时会在旁观者相应的肌肉中产生运动易化效应,以及在社会情境下皮质脊髓兴奋性是如何被调节的。同时,本研究也证实了经颅磁刺激(TMS)诱发的运动诱发电位是评估动作观察过程中皮质脊髓兴奋性及其调节的可靠且安全的指标。
致谢
Luisa Sartori 获得了帕多瓦大学 2011 年青年学者资助计划(Bando Giovani Studiosi 2011,L. n.240/2010)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 经颅磁刺激器 | Magstim | ||
| 用于肌电图采集的 BrainAmp MR 系统 | Brain Products | ||
| 用于立体定向神经导航的 Softaxic Optic 系统 | E.M.S. |
参考文献
- Aglioti, S. M., Cesari, P., Romani, M., Urgesi, C. Action anticipation and motor resonance in elite basketball players. Nat. Neurosci. 11, 1109-1116 (2008).
- Avenanti, A., Bolognini, N., Malavita, A., Aglioti, S. M. Somatic and motor components of action simulation. Curr. Bio. 17, 2129-211235 (2007).
- Fadiga, L., Fogassi, L., Pavesi, G., Rizzolatti, G. Motor facilitation during action observation: a magnetic stimulation study. J. Neurophysiol. 73, 2608-2611 (1995).
- Epstein, C. M. Electromagnetism. Oxford Handbook of Transcranial Stimulation. ed Wasserman. Wasserman, E., Epstein, C., Ziemann, U., Walsh, V., Paus, T., Lisanby, S. , University Press. (2008).
- Davey, K. Magnetic field stimulation: the brain as a conductor. In: Oxford Handbook of Transcranial Stimulation. , Oxford University Press. ed (2008).
- Priori, A., Berardelli, A., Rona, S., Accornero, N. &, Manfredi , M. anfredi Polarization of the human motor cortex through the scalp. Neuroreport. 15, 2257-2260 (1998).
- Lemon, R. N., Johansson, R. S., Westling, G. Corticospinal control during reach, grasp, and precision lift in man. J. Neurosci. 15, 6145-6156 (1995).
- Uozumi, T., Tamagawa, A., Hashimoto, T., Tsuji, S. Motor hand representation in cortical area 44. Neurology. 62, 757-761 (2004).
- Kraskov, A., Dancause, N., Quallo MM,, Shepherd, S., RN, L. emon Corticospinal neurons in macaque ventral premotor cortex with mirror properties: a potential mechanism for action suppression. Neuron. 64, 922-930 (2009).
- Dum, R. P., Strick, P. L. The origin of corticospinal projections from the premotor areas in the frontal lobe. J. Neurosci. 11, 667-689 (1991).
- Leonard, G., Tremblay, F. Corticomotor facilitation associated with observation, imagery and imitation of hand actions: a comparative study in young and old adults. Exp. Brain Res. 177, 167-175 (2007).
- Tremblay, F., Leonard, G., Tremblay, L. Corticomotor facilitation associated with observation and imagery of hand actions is impaired in Parkinson's disease. Exp. Brain Res. 185, 249-257 (2008).
- Liepert, J. Neveling N. Motor excitability during imagination and Observation of foot dorsiflexions. J. Neural Transm. 116, 1613-161609 (2009).
- Kujirai, T., Caramia MD,, Rothwell JC,, Day BL,, Thompson PD,, Ferbert, A., et al. Corticocortical inhibition in human motor cortex. J. Physiol. 471, 501-519 (1993).
- Feurra, M., Bianco, G., Polizzotto NR,, Innocenti, I., Rossi, A., Rossi, S. Cortico-Cortical Connectivity between Right Parietal and Bilateral Primary Motor Cortices during Imagined and Observed Actions: A Combined TMS/tDCS Study. Front Neural Circuits. 5, 10 (2011).
- Cattaneo, L., Caruana, F., Jezzini, A., Rizzolatti, G. Representation of goal and movements without overt motor behavior in the human motor cortex: a Transcranial magnetic stimulation study. J. Neurosci. 29, 11134-11138 (2009).
- Gangitano, M., Mottaghy, F. M., Pascual-Leone, A. Phase-specific modulation of cortical motor output during movement observation. NeuroReport. 12, 1489-1492 (2001).
- Clark, S., Tremblay, F., Ste-Marie, D. Differential modulation of corticospinal excitability during observation, mental imagery and imitation of hand actions. Neuropsychologia. 42 (1), 105-112 (2004).
- Baldissera, F., Cavallari, P., Craighero, L., Fadiga, L. Modulation of spinal excitability during observation of hand actions in humans. Eur. J. Neurosci. 13, 190-194 (2001).
- Maeda, F., Chang, V. Y., Mazziotta, J., Iacoboni, M. Experience-dependent modulation of motor corticospinal excitability during action observation. Exp. Brain. Res. 140, 241-244 (2001).
- Paus Strafella, A. P., Paus, T. Modulation of cortical excitability during action observation: a transcranial magnetic stimulation study. NeuroReport. 11, 2289-2292 (2000).
- Borroni, P., Montagna, M., Cerri, G., Baldissera, F. Cyclic time course of motor excitability modulation during observation of hand actions in humans. Eur. J. Neurosci. 13, 190-194 (2005).
- Montagna, M., Cerri, G., Borroni, P., Baldissera, F. Excitability changes in human corticospinal projections to muscles moving hand and fingers while viewing a reaching and grasping action. Eur. J. Neurosci. 22, 1513-1520 (2005).
- Urgesi, C., Maieron, M., Avenanti, A., Tidoni, E., Fabbro, F., Aglioti, S. M. Simulating the future of actions in the human corticospinal system. Cereb. Cortex. 20, 2511-2521 (2010).
- Urgesi, C., Moro, V., Candidi, M. Aglioti SM. Mapping implied body actions in the human motor system. J. Neurosci. 26, 7942-7949 (2006).
- Sebanz, N., Bekkering, H., Knoblich, G. Joint action: Bodies and minds moving together. Trends Cogn. Sci. 10, 70-76 (2006).
- Cavallo, A., Heyes, C., Becchio, C., Bird, G., Catmur, C. Timecourse of mirror and counter-mirror effects measured with transcranial magnetic stimulation. SocCogn Affect Neurosci. , (2013).
- Cattaneo, L., Barchiesi, G. Transcranial Magnetic Mapping of the Short-Latency Modulations of Corticospinal Activity from the Ipsilateral Hemisphere during Rest. Front Neural Circuits. 5, 14 (2011).
- Sartori, L., Cavallo, A., Bucchioni, G., Castiello, U. Corticospinal excitability is specifically modulated by the social dimension of observed actions. Exp. Brain. Res. 211 (3-4), 3-4 (2011).
- Sartori, L., Cavallo, A., Bucchioni, G., Castiello, U. From simulation to reciprocity: The case of complementary actions. Soc. Neurosci. 7 (2), 146-158 (2011).
- Briggs, G. G., Nebes, R. D. Patterns of hand preference in a student population. Cortex. 11, 230-238 (1975).
- Wassermann, E. M. Risk and safety of repetitive transcranial magnetic stimulation: report and suggested guidelines from the International Workshop on the Safety of Repetitive Transcranial Magnetic Stimulation. Electroen. Clin. Neur. 108, 1-16 (1996).
- Rossi, S., Hallett, M., Rossini, P. M., Pascual-Leone, A. Safety, ethical considerations, and application guidelines for the use of transcranial magnetic stimulation in clinical practice. Clin. Neurophysiol. 120, 2008-2039 (2009).
- Riehl, M. TMS stimulator design. Oxford Handbook of Transcranial Stimulation.. Riehl, M., Wasserman, E., Ziemann, U., Walsh, V., Paus, T., Lisanby, S. , Oxford University Press. (2008).
- Epstein, C. M. TMS stimulation coils. InOxford Handbook of Transcranial Stimulation.. Wasserman, E., Epstein, C., Ziemann, U., Walsh, V., Paus, T., Lisanby, S. , Oxford University Press. (2008).
- Brasil-Neto, J. P., Cohen, L. G., Panizza, M., Nilsson, J., Roth, B. J., Hallett, M. Optimal focal transcranial magnetic activation of the human motor cortex: effects of coil orientation, shape of the induced current pulse, and stimulus intensity. J. Clin. Neurophysiol. 9, 132-136 (1992).
- Mills, K. R., Boniface, S. J., Schubert, M. Magnetic brain stimulation with a double coil: the importance of coil orientation. Electroencephalogr. Clin. Neurophysiol. 85, 17-21 (1992).
- Sommer, M., Paulus, W. TMS waveform and current direction.. Oxford Handbook of Transcranial Stimulation. Wasserman, E., Epstein, C., Ziemann, U., Walsh, V., Paus, T., Lisanby, S. (2008), Oxford University Press. (2008).
- Lepage, J. F., Tremblay, S., Théoret, H. Early non-specific modulation of corticospinal excitability during action observation. Eur. J. Neurosci. 31, 931-937 (2010).
- Carroll, T. J., Riek, S., Carson, R. G. Reliability of the input-output properties of the cortico-spinal pathway obtained from transcranial magnetic and electrical stimulation. J. Neurosci. Meth. 112, 193-202 (2001).
- Malcolm, M. P., Triggs, W. J., Light, K. E., Shechtman, O., Khandekar, G., Gonzalez Rothi, L. J. Reliability of motor cortex transcranial magnetic stimulation in four muscle representations. Clin. Neurophysiol. 117, 1037-1046 (2006).
- McMillan, A. S., Watson, C., Walshaw, D. Transcranial magnetic-stimulation mapping of the cortical topography of the human masseter muscle. Arch. Oral Biol. 43, 925-931 (1998).
- Miranda, P. C., de Carvalho, M., Conceiço, I., Luis, M. L., Ducla-Soares, E. A new method for reproducible coil positioning in transcranial magnetic stimulation mapping. Electroencephalogr. Clin. Neurophysiol. 105 (2), 116-123 (1997).
- Mortifee, P., Stewart, H., Schulzer, M., Eisen, A. Reliability of transcranial magnetic stimulation for mapping the human motor cortex. Electroencephalogr. Clin. Neurophysiol. 93, 131-137 (1994).
- Uy, J., Ridding, M. C., Miles, T. S. Stability of maps of human motor cortex made with transcranial magnetic stimulation. Brain Topogr. 14, 293-297 (2002).
- Wolf, M. E., Sun, X., Mangiavacchi, S., Chao, S. Z. Psychomotor stimulants and neuronal plasticity. Neuropharmacology. 47 (1), 61-79 (2004).
- Ertelt, D., et al. Action observation has a positive impact on rehabilitation of motor deficits after stroke. Neuroimage. 36, 164-173 (2007).
重印与许可
