某些基因扰动或毒素暴露可能破坏正常的发育过程,导致特定细胞类型的死亡。通过对斑马鱼胚胎进行整体免疫荧光分析活化的Caspase 3,可以揭示特异性发生凋亡的细胞在特定发育阶段和组织中的定位。
本文内容
摘要
摘要
通过整体免疫荧光法检测活化的半胱天冬酶3(Casp3检测)可用于识别斑马鱼胚胎中发生内源性或外源性凋亡的细胞。整体分析可提供凋亡细胞在组织分布上的空间信息,尽管最终仍需通过切片和/或共标记来精确定位发生凋亡的具体细胞类型。该整体Casp3检测方法适用于受精后4细胞期至32小时之间的固定胚胎分析,广泛应用于多种实验场景,包括斑马鱼突变体和吗啉寡聚体(morphants)分析、突变型和野生型mRNA的过表达,以及化学物质处理实验。与吖啶橙染色相比(后者可在数小时内检测活体胚胎中的凋亡细胞),Casp3检测和TUNEL检测所需时间显著更长(2–4天)。然而,由于凋亡细胞的形成与清除具有动态性,对固定胚胎进行分析可确保在特定时间点对多个样本间的凋亡细胞进行准确比较。我们还发现,在成本和可靠性方面,Casp3检测优于整体TUNEL检测对凋亡细胞的分析。总体而言,Casp3检测是一种稳健且高度可重复的方法,适用于早期斑马鱼胚胎中凋亡细胞的分析。
引言
本文介绍了如何在早期斑马鱼胚胎中进行整体免疫荧光染色,以检测激活型Caspase 3阳性细胞(下文简称Casp3检测)。该方法的总体目标是鉴定从4细胞期至受精后32小时(hpf)期间,斑马鱼胚胎中凋亡细胞的相对数量及其空间分布位置。
内在途径(线粒体介导)和外在途径(死亡受体介导)均通过激活半胱天冬酶级联反应来介导细胞死亡1-2。起始型半胱天冬酶通常以单体形式存在于细胞内,当接收到促凋亡信号后被募集至特定通路的信号平台时,便形成具有活性的二聚体。活化的起始型半胱天冬酶(Caspase 9,介导内在途径;Caspase 8,介导外在途径)随后作用于预先形成的、无活性的效应型半胱天冬酶(Caspase 3、6、7),将其切割并形成有活性的异源四聚体。活化的效应型半胱天冬酶进一步切割含有特定四肽残基的细胞底物,启动特异性的蛋白水解过程,最终导致细胞凋亡的超微结构特征出现,例如染色质浓缩和细胞膜出泡,以及介导细胞被吞噬细胞以免疫静默方式吞噬的细胞表面信号。在哺乳动物细胞中,活化的效应型半胱天冬酶被认为通过内在和外在两条途径共同介导了大部分与凋亡相关的细胞蛋白切割事件1-2。本文所述实验方案使用一种特异性结合切割后形成的Caspase 3异源四聚体形式的抗体,而不与无活性的Caspase 3二聚体结合。
Casp3 检测法的一个优势在于能够在整体胚胎背景下观察凋亡细胞的空间分布。因此,可以针对特定组织检查是否存在凋亡细胞;如果存在标记特定细胞类型的抗体或荧光转基因品系,则可通过共标实验精确定位正在发生凋亡的细胞类型。已有多个研究团队成功将活化型 Caspase 3 用作斑马鱼胚胎中细胞凋亡的标志物(例如e.g. 3-7)。其他用于在斑马鱼胚胎中鉴定凋亡细胞的整装检测技术包括 TUNEL 检测8和吖啶橙(AO)染色9。我们已将这三种方法均应用于斑马鱼胚胎中凋亡细胞的鉴定4,6,10。
TUNEL(末端脱氧核苷酸转移酶 dUTP 镍末端标记)染色利用了末端脱氧核苷酸转移酶(TdT),该酶在淋巴细胞 VDJ 重排过程中用于向 DNA 的 3’ 羟基末端添加核苷酸11。TdT 将 dUTP-生物素添加到 DNA 中游离的 3’ 羟基上,这些羟基主要在凋亡细胞中大量存在。随后将组织暴露于亲和素-过氧化物酶,并在加入底物 3-氨基-9-乙基咔唑后使凋亡细胞着色。TUNEL 检测已被用于对野生型斑马鱼组织在胚胎发育过程中凋亡细胞进行广泛分析12。与 Casp3 检测类似,TUNEL 检测仅在固定胚胎上进行。我们发现,Casp3 检测比 TUNEL 检测更稳定且成本更低。
AO 染色最初被描述为一种特异性识别果蝇(Drosophila)中凋亡细胞的方法13。AO 可对凋亡细胞(而非坏死细胞)的细胞质和细胞核进行染色。AO 众所周知能够结合核酸14,这被认为可解释其细胞核染色现象。然而,AO 并不染色活细胞的染色质;相反,似乎在凋亡过程中发生的特定变化使得 AO 能够插入并染色凝聚的凋亡细胞核15。AO 染色的优点在于能够快速分析活体胚胎中的细胞凋亡。但由于凋亡细胞的形成与清除具有动态性,因此必须尽快完成样本的记录。另一方面,对所有样本同时进行固定可提供在特定时间点下跨样本的凋亡状态快照,不受此时间变量的影响。因此,由于 AO 染色无法用于固定胚胎中的凋亡细胞分析,当实验需要在多个样本中进行拍照记录和/或定量分析时,Casp3 检测更为适宜。
方案
1. 溶液的配制
- 准备 500 ml 1x 的 PBST(1× PBS,0.1% Tween-20),过滤除菌。只要无细菌生长迹象,1× PBST 可在室温(RT)长期保存。
- 注意:在通风橱中配制50 ml 4%多聚甲醛(PFA),将PFA粉末溶于1×PBS中,60 °C条件下加热1小时,并用铝箔包裹以避光。4 °C可保存1个月,或-20 °C保存2年。
- 配制500 ml新鲜的1x PDT(1x PBST,0.3% Triton-X,1% DMSO)。1x PDT可在4 °C保存最多一个月。
- 配制 50 ml 封闭缓冲液(1x PBST,10% 热灭活胎牛血清,2% 牛血清白蛋白)。分装为 10 ml 等份,于 -20 °C 保存,最长可保存 1 年。解冻后,封闭缓冲液可在 4 °C 保存最多 48 小时。
- 通过将30 ml水加热至80 °C,制备100 ml的4%甲基纤维素溶液。将4 g甲基纤维素加入热水中,并在室温搅拌器上使用搅拌子进行混合。 充分混合通常需要4小时至过夜。加入剩余的(未加热)水,在4 °C下混合1小时。于室温保存。
- 若使用尾芽期至32小时孵育期(hpf)的胚胎,需配制50 ml浓度为10 mg/ml的蛋白酶溶液,4 °C保存,可使用长达1周;否则,分装为10 ml每份,-20 °C保存,可使用长达1年。
- 将50 ml 100%甲醇置于-20 °C下。
- 准备60倍浓缩液 用2 L蒸馏水溶解280 g Instant Ocean海盐制备养卵用水(参照Westerfield方法)16)。通过将60x卵水稀释来制备1x卵水 去离子水中的储备液。
2. 胚胎的制备
- 在4细胞期至32 hpf之间,将斑马鱼胚胎收集到含有1x 卵水的培养皿中。
- 对于处于4细胞期至尾芽期之间的胚胎,继续进行步骤2.2。
- 对于处于尾芽期至32 hpf之间的胚胎,通过在10 ml 1x 卵水中加入100 μl 浓度为10 mg/ml的蛋白酶K去除卵膜。
- 注意:不同批次的蛋白酶K活性可能存在差异。因此,当获得新批次时,应优化蛋白酶K的终浓度以实现有效去膜。
- 室温孵育30分钟。
- 将卵水/蛋白酶K溶液倒入废液容器中,缓慢加入新鲜的1x卵水。
- 通过倾倒原有卵水(及漂浮的卵膜)并轻轻加入新卵水,重复清洗两次。
- 注意:此时大多数卵膜应已被去除。使用移液器轻轻吹吸胚胎,直至残留的卵膜完全去除。
- 将最多40个胚胎转移至1.5 ml离心管中。用1 ml 1x PBST清洗两次。
- 吸除PBST,保留刚好覆盖胚胎的少量液体(管中残留体积约为100 μl )。加入1 ml 4% PFA。将离心管侧放(使胚胎沿管壁均匀分布)于合适大小的容器中以便运输(例如培养皿或移液器盒盖),并在4 °C下轻轻摇动固定过夜或最长一周。
- 对于处于4细胞期至尾芽期之间的胚胎,使用镊子手动去除固定后的胚胎卵膜。
3. 免疫荧光实验步骤
- 将试管放入试管架中,使所有胚胎沉至管底。移除PFA(倒入适当的废液容器),保留液面略高于胚胎。固定后(步骤2.3),胚胎切勿暴露于空气中,以防止产生背景抗体染色。
- 逐滴加入1 ml冰浴的100%甲醇(用于通透化)。胚胎在固定后已较为脆弱,后续所有液体的移除与添加过程中必须格外小心,避免胚胎在管内翻滚。将试管平放,并置于-20 °C环境中2小时。或者,胚胎也可在-20 °C下保存最多24小时。
- 将试管竖直放入试管架,使胚胎沉至管底。移除甲醇,保留液面略高于胚胎。
- 小心加入1 ml 1x PDT。移除PDT后,再加入1 ml新鲜的1x PDT。将试管平放,在室温下轻轻振荡30分钟。移除PDT后,用新鲜PDT重复进行30 分钟洗涤。
- 移除PDT,使液体仅略高于胚胎水平,然后加入500 μl 封闭缓冲液。
- 将试管平放在转运容器中,确保胚胎不会上浮至试管长度的2/3以上。否则,胚胎可能卡在管盖内或液面之外。
- 小心将装有试管的转运容器置于室温下极轻柔的摇床上,孵育1小时。
- 将试管竖直立于试管架中,打开所有管盖,检查是否有胚胎粘附在管盖上。若发现有胚胎粘在管盖上,应关闭管盖,用手轻轻摇动试管,使所有胚胎重新回到液体中。
- 加入1 μl 兔抗活化Caspase 3抗体(1:500稀释)。
- 若进行共标记实验,只需同时加入适当稀释倍数的第二种非兔源抗体,与抗活化Caspase 3抗体一同孵育。
- 小心将试管平放,在室温下轻轻振荡2小时。或者,也可在4 °C下过夜孵育。
- 将试管竖直放入试管架中。移除封闭液/抗体溶液。加入1 ml 1x PDT。务必手动倒置试管,以收集可能粘附在管盖上的胚胎。然后打开所有管盖,确认所有胚胎均已回到液体内。
- 重复步骤3.4。
- 重复步骤3.5–3.10,但将抗活化Caspase 3抗体替换为适当稀释倍数的抗兔荧光素偶联二抗,该二抗应可吸收蓝光并发射绿光。然而,也可根据用户偏好选择具有其他吸收/发射光谱的荧光素偶联二抗。加入二抗后,实验剩余步骤中必须始终将胚胎避光保存。在孵育过程中应用铝箔包裹转运容器,但在更换缓冲液时无需担心短暂的光照暴露。
- 若进行共标记实验,可在本步骤中同时加入适当稀释倍数的互补荧光素偶联二抗。
- 注意:若用户希望对活化Caspase 3与表达Gfp的细胞进行共标记,则此处应使用不发绿色荧光的抗兔二抗来孵育兔抗活化Caspase 3抗体,而抗GFP抗体则应使用发绿色荧光的非兔源二抗进行孵育。这样可避免因胚胎固定后仍残留部分Gfp荧光而导致信号混淆。
4. 通过荧光显微镜分析凋亡细胞
- 在荧光显微镜下,使用适当的滤光片,在小培养皿或玻璃凹孔板中用1x PDT分析胚胎。如果阳性对照显示出明亮的荧光且背景信号最低,则进行步骤4.2。(如果不符合,请参阅讨论部分的故障排除建议,并使用新胚胎重复本实验流程。)胚胎可在1x PDT中于4 °C保存最多48小时。
- 在3.5 cm培养皿中加入4%甲基纤维素,用量以刚好覆盖皿底为宜。也可使用玻璃凹孔板或凹面载玻片,在凹槽内加入一大滴甲基纤维素。用洁净的转移移液管小心吸取管底的胚胎,并转移至培养皿中以便观察。
- 使用斜角探针调整目标胚胎的位置以进行图像记录。同一样品中的不同胚胎之间可能存在一定变异,因此应拍摄能够代表该样品中大多数胚胎荧光强度和分布模式的图像。应在完成检测后48小时内完成图像采集,以避免非特异性背景荧光的累积。残留的4%甲基纤维素不会干扰后续用于胚胎基因分型的PCR反应。
- 注意:为帮助固定胚胎至特定角度,可轻轻将胚胎推至培养皿底部,使卵黄或胚胎的其他部分(根据所需观察视角而定)紧贴皿底。然后,在显微镜下实时观察的同时,用探针移动胚胎或其周围的甲基纤维素,以获得适合记录的观察角度。
结果
Casp3 检测可明确显示从 4 细胞期到 32 hpf 期间的凋亡细胞。图 2A 显示,将编码强效促凋亡 bh3-only 蛋白(如 Bim 或 Noxa)的高浓度 mRNA 注射入胚胎后,在发育的 4 细胞期即可迅速产生活化的 Caspase 3。随后胚胎在 1 小时内死亡4。需注意,此时荧光强度适中,但结果具有明确结论性。在较晚的发育阶段,荧光强度更为显著。例如,图 2B 显示,在囊胚期胚胎中,注射中等毒性水平4的编码促凋亡 bh3-only 基因 puma 的 mRNA 后,出现明亮的活化 Caspase 3 阳性细胞。为证实 puma mRNA 的注射是通过线粒体介导的内源性通路诱导凋亡,实验中同时共注射了编码抗凋亡 bcl-2 基因的信使 RNA。
辐射诱导的斑马鱼细胞凋亡需要 p53 介导的仅含 BH3 结构域基因(如 puma5-6)的转录。 图3 中辐射诱导细胞凋亡的延迟现象与 p53 介导的转录需求一致。
Casp3 实验方案应产生较高的信噪比。图4将最佳的 Casp3 检测结果与两种因关键步骤受损而常见的非理想结果进行了比较(参见讨论部分):由于动物组织中的背景荧光以及卵黄荧光干扰,导致信噪比较低,从而影响目标信号的观察。
利用转基因GFP表达品系进行的共标记实验可近似显示正在经历凋亡的组织(图5)。
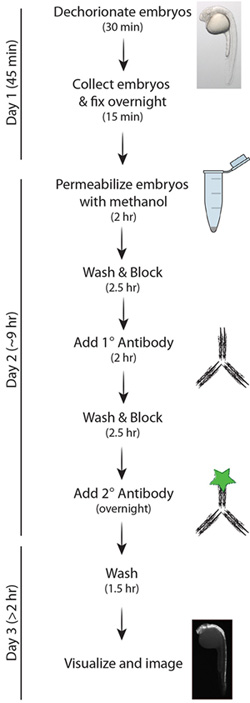
图1. Casp3 实验方案的简化示意图。

图2. (A)4细胞期胚胎的凋亡分析。在胚胎发育的1细胞期,注射50 pg编码 egfp (对照)或促凋亡的 仅含BH3结构域 基因 bim 和 noxa. 在4细胞期(注射后约1小时),通过免疫荧光分析胚胎以检测活化的Caspase 3。 Bim 和 noxa mRNA 在注射后会立即诱导斑马鱼胚胎快速发生凋亡,如果让胚胎继续发育,则会在2 hpi时导致死亡4。图中显示了野生型4细胞期胚胎的明场图像,以作比较。B) 斑马鱼胚胎球状期的细胞凋亡分析。在胚胎发育的单细胞阶段,向胚胎中注射编码50 pg的mRNA egfp (对照),5 pg 豹猫 加上 45 pg egfp(puma),或 5 pg 美洲狮 加入45 pg的bcl-2(bcl-2)。在合子期(约感染后4小时),通过Casp3检测分析胚胎。展示侧向和动物极视角以观察凋亡细胞。由puma诱导的细胞凋亡被挽救 bcl-2 表明注射 豹猫 mRNA 通过内在的线粒体介导途径特异性地诱导细胞凋亡。为作比较,展示了一张野生型球形期胚胎的明场图像。

图 3. 17-20 hpf 期间电离辐射(IR)诱导细胞凋亡的时间进程。斑马鱼胚胎在 17 hpf 时接受 8 Gy 的电离辐射处理,并在辐照后 0、1.5、2 和 3 小时(hpIR)通过 Casp3 检测进行分析。20 hpf 时的箭头显示在辐照后 3 小时,脊髓中凋亡细胞的聚集。图中同时展示了一张 17 hpf 胚胎的明场图像作为对照。
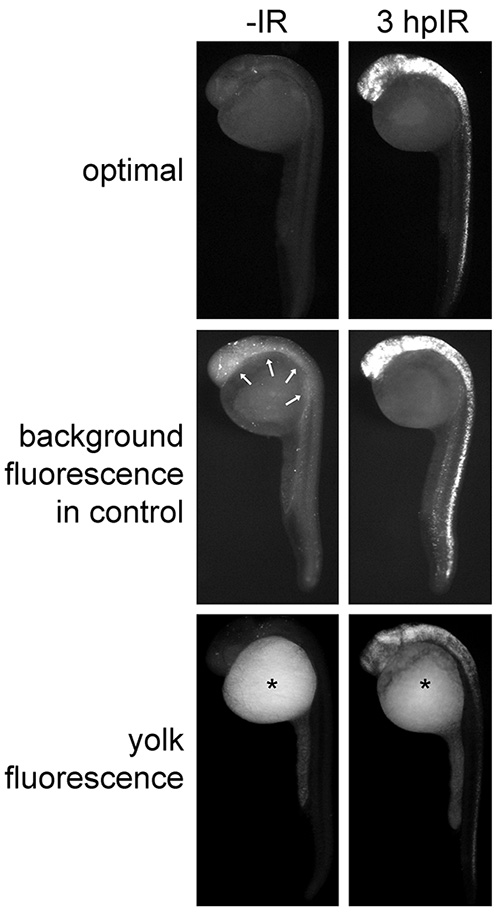
图4. 在27小时受精龄(hpf)胚胎上获得的最佳与次佳Casp3免疫荧光结果。 斑马鱼胚胎在24小时受精龄(hpf)时接受(或未接受)15 Gy辐照,并通过Casp3检测进行分析。在“最佳”组中,结果理想,凋亡细胞呈现明亮的荧光,而非凋亡细胞及卵黄部分背景荧光极低。在“对照组背景荧光”组中,箭头指示对照胚胎的动物组织中存在过高的背景荧光。在“卵黄荧光”组中,星号标记表明卵黄区域出现过度的非特异性荧光。
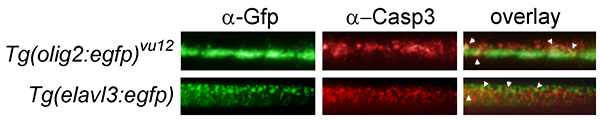
图5. 共标记实验近似揭示IR诱导凋亡的组织特异性。Tg(olig2:egfp)vu12 转基因系标记运动神经元和少突胶质细胞17,而 Tg(elavl3:egfp) 系标记所有正在分化的神经元18。每个转基因系在24 hpf时接受15 Gy辐照,并于3小时后使用小鼠抗GFP和兔抗活化Caspase-3一抗进行分析,随后分别使用绿色和红色荧光二抗。图中显示的是脊髓区域的放大图像(位于27 hpf、辐照后3小时胚胎的卵黄延伸末端背侧)。凋亡细胞似乎部分定位于 Tg(elavl3:egfp) 和 Tg(olig2:egfp)vu12 标记的细胞群中(见叠加图中的箭头),提示神经元和少突胶质细胞对辐射诱导的细胞凋亡具有敏感性。
讨论
本方案中所述的Casp3检测旨在操作简便,若按本文所述步骤进行,应能获得较高的信噪比。本方案的关键步骤包括:所有洗涤步骤均使用新鲜的1x PDT缓冲液,在一抗孵育后用PDT缓冲液进行充分时长的洗涤,轻柔操作胚胎,以及在整个实验过程中对试管或移液管中的所有胚胎进行仔细计数和追踪。
根据我们的经验,阳性对照无信号最常见的原因如下:1)洗涤步骤中用1x PBST替代了1x PDT;2)1x PDT缓冲液存放时间超过一个月 月,3)使用了错误的二抗,4)胚胎超过32 hpf,和/或5)单个离心管中分析了超过40个胚胎。当样本内出现结果不一致或变异时,通常是因为1)操作过程中未注意始终保持所有胚胎浸没在液体中,和/或2)胚胎孵育时未进行充分振荡。高背景噪音通常表现为胚胎组织中普遍存在的荧光弥散现象(参见 图4, “背景荧光”)。当出现以下情况时,可能导致信噪比较差:1)一抗孵育后胚胎洗涤时间不足,和/或 2)胚胎在PFA或甲醇中停留时间超过推荐时长。若胚胎在实验结束时无法保持完整:1)PFA固定后未逐滴添加溶液,和/或 2)孵育过程中摇床速度设置过高。
Casp3检测中固有的整体可视化有助于凋亡细胞的空间定位。然而,组织特异性是近似的,可能需要依赖共标记技术(参见 图5以及/或对胚胎进行切片,以精确定位发生凋亡的细胞类型。在本方案中,共标实验受限于本实验所用的特异性兔源抗体。目前我们尚未发现市面上有非兔源的抗活化型Caspase 3抗体,能够在斑马鱼胚胎整体免疫荧光染色中特异性标记凋亡细胞。因此,任何以兔为宿主产生的细胞类型特异性抗体均无法与Casp3检测法兼容用于共标实验。一种替代方案是进行TUNEL检测,该方法可使用小鼠源抗体标记凋亡细胞6。然而,我们发现对斑马鱼胚胎进行整体TUNEL检测时,实验结果对多种反应条件极为敏感,包括末端脱氧核苷酸转移酶(TdT)的浓度、胚胎在TdT酶中孵育的时间,以及每管中胚胎的数量(未发表观察结果)。因此,很难确定一种能够获得稳定且可重复结果的酶浓度条件。相较之下,更理想的替代方法是利用转基因斑马鱼胚胎,其在特定细胞类型中表达一种带有强效商业化抗体的荧光蛋白(如GFP)。随后,可通过使用小鼠抗Gfp一抗,再结合绿色荧光标记的抗小鼠二抗,进行共标实验。参见 图5 例如。
尽管Casp3实验方案在4细胞期至32 hpf的胚胎中可稳定、可靠地标记凋亡细胞,但其在32 hpf之后的应用受到限制,原因是抗体无法穿透较晚期胚胎的皮肤。可通过优化其他胚胎通透化技术(如胶原酶、胰蛋白酶、丙酮或乙醇处理)来改进该检测方法,以适用于较晚期胚胎的分析。然而,吖啶橙(AO)染色可在活体斑马鱼胚胎中进行,至少可应用于5日龄以内的胚胎9。因此,AO检测克服了胚胎发育阶段的限制,是一种快速分析凋亡细胞的方法(耗时1–2小时)。相比之下,Casp3检测需要对胚胎进行过夜固定,完成整个流程需2–4天。AO检测的缺点包括:由于胚胎处于活体状态,且凋亡细胞形成迅速并被快速清除,因此在处理多个样本时,高效地进行显微摄影记录可能具有挑战性。若需将胚胎固定于特定方向以便成像,这一问题尤为突出。此外,我们发现AO染色在经PFA固定后信号会减弱,因此无法与免疫荧光共标记实验兼容。
可通过使用测量图像荧光强度的软件程序,对活化型Caspase 3进行定量分析。我们已对电离辐射(IR)诱导的神经组织细胞凋亡进行了量化,该方法在其他文献中已有详细描述10。根据具体实验需求,对活化型Caspase 3的定量分析可能需要对胚胎进行进一步操作,例如平铺制样(flat-mounting),以获得适合组织分析的最佳方向。此外,分析的线性程度取决于待测组织的厚度。例如,我们通过检测脊髓浅层神经组织中的活化Caspase 3免疫荧光信号来分析电离辐射诱导的细胞凋亡,而非选择神经元密集的大脑组织进行分析4,10。
根据我们的经验,Casp3 检测法是在 4 细胞期至 32 hpf 期间分析斑马鱼胚胎细胞凋亡的最稳健且可靠的检测方法,尤其当分析过程需要充足时间进行记录时。当存在合适的抗体或转基因品系可用于鉴定特定细胞时,该检测法也十分适用于共标记,以确定发生凋亡的具体细胞类型。
披露
作者无任何利益冲突需要披露。
致谢
资金由亨茨曼癌症基金会(CJ,CT)、美国癌症协会资助项目#RSG-13-025-01-CSM(RS)以及美国国立卫生研究院T32 GM007464-36(SS)提供。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 ml 离心管 | Denville Scientific | c2170 | 无危害性。任何类似的 1.5 ml 塑料离心管均可使用。 |
| 10x 磷酸盐缓冲液(PBS) | Sigma Aldrich | P5493 | 无危害性。 |
| a-激活人 Caspase-3 抗体 | Fisher Scientific | BDB559565 | 吸入或吞咽可能有害。 |
| a-GFP 单克隆抗体(小鼠) | Life Technologies | 33-2600 | 吸入或吞咽可能有害。 |
| a-HuC/HuD 人神经元蛋白抗体,小鼠 IgG2b,单克隆 16A11 - 未标记 | Life Technologies | A21271 | 吸入或吞咽可能有害。 |
| 牛血清白蛋白 BSA 热激分离用 | Amresco | CAS 9048-46-8 | 无危害性。也可通过 Bioexpress 购买:0332-1006 |
| Alexa Fluor 488 驴抗小鼠 IgG | Life Technologies | A11029 | 使用稀释比例为 1:200。 吸入或吞咽可能有害。 |
| Alexa Fluor 488 驴抗兔 IgG | Life Technologies | A21206 | 使用稀释比例为 1:200。 吸入或吞咽可能有害。 |
| Alexa Fluor 568 驴抗兔 IgG | Life Technologies | A10042 | 使用稀释比例为 1:200。 吸入或吞咽可能有害。 |
| 二甲基亚砜(DMSO) | Sigma Aldrich | D8418 | 易燃。 |
| Dumont #5 不锈钢镊子(标准尖头/直头) | Fine Science Tools | 11251-20 | 尖锐! |
| FBS HyClone 胎牛血清 | Thermo-Fisher | SH3091003 | 无危害性。 |
| Fisher Scientific Ocelot 旋转混合仪 | Fisher Scientific | 05-450-21 | 任何具备手动速度控制的旋转混合仪均可使用。 |
| Instant Ocean 水族馆盐 | Petco | 1373684 | 无危害性。 |
| 甲醇(无丙酮) | Sigma Aldrich | M1775 | 易燃:吸入、摄入或接触有毒。 |
| 甲基纤维素 | Sigma Aldrich | M0387-1006 | 无危害性。 |
| 多聚甲醛 | Sigma Aldrich | P6148 | 易燃:吸入、摄入或接触有毒。 |
| 移液管头(斜角 80 短型/15.5 cm/0.15 mm 尖端直径) | Fine Science Tools | 10140-02 | 尖锐! |
| 蛋白酶 K(Pronase) | Roche | 11459643001 | 无危害性。 |
| Pyrex 点样板 | Fisher Scientific | 13-748B | 无危害性。 |
| 移液管,Samco 通用型 | Thermo-Scientific | 204 | 无危害性。 |
| Triton X-100 | Sigma Aldrich | T8787 | 刺激性:摄入或接触有害。 |
| Tween-20 | Sigma Aldrich | P7949 | 无危害性。其他品牌包括 VWR #97063-872。 |
参考文献
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
重印与许可
