通过脑血管自动调节机制,脑灌注可在一定压力范围内得以维持。然而,表征自动调节功能需要在受控频率下产生显著的血压波动。本方案将展示如何利用振荡性下体负压诱导血压波动,从而为投影寻踪回归分析提供数据,以量化自动调节曲线。
本文内容
摘要
摘要
在较宽范围的体循环压力下,脑血流灌注保持恒定的过程被称为“脑自动调节”。针对血压变化的血流缓冲效应在约15秒的短时间内即可发生,并随着时程延长而逐渐增强。因此,较慢的血压变化可被有效削弱,而较快的血压变化或波动则相对不受影响地传递至脑血流。对脑自动调节频率依赖性进行表征的主要困难在于,在目标频率范围(低于约0.07 Hz或约15秒)内,动脉压缺乏显著的自发性波动。振荡式下体负压(OLBNP)可用于诱导中心静脉回流产生振荡,从而引起与OLBNP频率一致的动脉压波动。此外,投影寻踪回归(PPR)提供了一种非参数化方法,可用于表征系统中固有的非线性关系,而无需 先验的 假设,并揭示脑自动调节的特征性非线性特性。OLBNP 随着负压振荡频率变慢,动脉压的波动幅度增大;然而,脑血流的波动则逐渐减小。因此,在 OLBNP 频率为 0.05 Hz 及以下(20 秒周期)时,PPR 显示出自调节作用越来越显著的区域。该方法的目标是实现在实验室条件下确定压力与脑血流之间特征性的非线性关系,可为整体脑血管调控机制提供独特见解,并有助于理解脑自动调节功能受损背后的生理改变(例如,脑外伤后,脑卒中 等等。).
引言
在广泛的全身血压范围内维持脑灌注恒定的过程被称为“脑自动调节”。早期对脑血流反应的观察1支持了脑血流对动脉压变化具有反向调节作用,这种调节对日常脑灌注的稳定具有重要意义。尽管脑自动调节特性的研究最初基于对持续性、可控的低血压和高血压状态的分析2,3,但人们认识到,压力引起的血管阻力变化是一种“振荡过程”3,其时间范围从10秒到90秒不等4。此外,在过去二十年中,逐搏测量脑血流速度的技术5表明,脑血流可在仅数个心动周期的极短时间内即受到调节6,7。这些逐搏数据显示,针对血压波动的血流缓冲效应在约15秒的短时间内即可有效发生,并随着时间延长而逐渐增强8。因此,血压与血流之间的关系表现为一种高通滤波器7,9-12,即缓慢的血压变化被有效抑制,而较快的血压振荡则相对不受影响地传递至脑循环。
表征脑自动调节频率依赖性的主要困难在于动脉压在目标频率范围内(低于约0.07 Hz或约15秒)缺乏显著的自发波动。若压力振荡幅度不足,则无法准确量化脑血流的响应。本实验室通过采用一种称为振荡性下体负压(oscillatory lower body negative pressure, OLBNP)的技术来应对这一限制。该技术因静脉跨壁压力降低,导致罐内负压水平与尾部静脉血容量变化呈比例地发生转移。当以固定时间间隔施加负压时,中心静脉回流的振荡将引起与OLBNP频率一致的动脉压波动。该方法已在不同实验室的多项研究中得到应用。8,14-17该技术因静脉跨壁压力降低,导致罐内负压水平与尾部静脉血容量变化呈比例地发生转移。当以固定时间间隔施加负压时,中心静脉回流的振荡将引起与OLBNP频率一致的动脉压波动。该方法已在不同实验室的多项研究中得到应用。8,15-18
即使采用能够在目标频率范围内引起动脉压显著波动的方法,仍存在一个复杂因素:大量证据表明,脑血管自身调节在最低频率下表现出显著的非线性特征。8 此外,目前尚无强有力的理论指导来阐明脑自动调节中非线性特性的本质。因此,我们在分析中采用了一种非理论性、数据驱动的方法,称为投影寻踪回归(Projection Pursuit Regression, PPR)。19 PPR 是一种非参数方法,用于表征系统中固有的非线性关系,无需对系统做任何假设 先验的 关于这些非线性的性质无需做出先验假设。这对于捕捉那些尚未通过明确的非线性模型来定义其生理机制的系统具有显著优势。PPR 分析揭示,脑自动调节所特有的非线性特征类似于 Lassen 于 1959 年首次描述的“经典自动调节曲线”图1).2,19 也就是说,在一定的动脉压范围内,脑血流量保持相对恒定,而在该范围之外则呈线性被动变化。当动脉压波动越缓慢时,这种特征性曲线形态越明显。因此,线性分析不足以全面研究脑自动调节功能,依赖线性方法可能会遗漏重要信息。
本文详细介绍了我们用于表征健康与疾病状态下脑自动调节功能的数据采集(OLBNP的实验室应用)和分析(PPR)方法。
方案
1. 振荡性下体负压(OLBNP)
- 仪器设置
- 心电图II导联(ECG):将三个(或更多)电极贴附于受试者躯干,以在整个研究过程中监测心率。
- 氯丁橡胶裙边:使用定制的氯丁橡胶裙边,将其密封至受试者髂嵴水平的下半身负压舱内。在受试者仰卧放入舱体前,先将裙边环绕其胸部,并确保心电图信号仍保持良好。裙边应贴合紧密,但不可过紧而限制呼吸。
- 下体负压舱:让受试者仰卧于床上,并将下体负压舱移至其身下。若下体负压舱配有可调节的自行车式坐垫(旨在减少运动伪影,同时不抵消负压吸力的作用),应确保受试者舒适地坐于其上。使用根据受试者腰围定制的有机玻璃隔板,以帮助密封舱体。用 duct tape 将氯丁橡胶裙边固定于下体负压舱周围,确保密封。
- LBNP舱压力:将LBNP舱连接至标准压力换能器。校准压力换能器至mmHg。
- 将自制的机械阀门和重复循环计时器连接到负压舱上。
注意:使用连接至两个电机的延时继电器来控制机械阀门,以在负压与环境压力之间交替切换。该延时继电器以固定时间间隔切换电机的电压,从而打开和关闭连接舱体与真空系统的阀门。由此产生的下体负压(LBNP)舱内压力波形近似为方波。调节循环时间以达到所需的OLBNP频率。 - 可变变压器与真空装置:将标准家用吸尘器连接至机械阀。将吸尘器插入可变变压器,以便调节输送至吸尘器的电压。开启吸尘器,并调节可变变压器,直至达到目标LBNP压力(例如, 30 mmHg)时为止。
- 动脉血压:连接无创光电容积脉搏波血压袖带(例如,Portapres,Finapres)连接至一只手的手指。通过与对侧手臂肱动脉的示波法测压值进行比较,以确保准确性。
- 2 MHz 经颅多普勒及探头固定装置
- 使用2 MHz脉冲波多普勒探头在太阳穴处检测大脑中动脉的M1段即, 经颞窗
- 调整探头角度、声束入射深度(约55 mm)、增益和发射功率,以最大化信号的频谱强度。
- 使用无背侧结构的固定装置将多普勒探头固定到位即, 不是头带),以避免受试者在负压振荡中移动时将运动伪影引入信号。
注意:脑血流量可单侧或双侧测量,但在无局灶性损伤(如卒中或创伤性脑损伤)存在的情况下,两侧半球的脑自身调节功能预期无差异。20
- 过期的一氧化碳2:使用连接至红外 CO₂ 监测仪的鼻导管2 分析仪用于监测呼出的 CO2 并指导受试者仅通过鼻腔呼吸。鉴于动脉血CO₂水平对呼吸调节具有显著影响2 对脑血流的影响,21 监测 CO2 在每一项研究中均贯穿始终。
- 数据采集
- 设置动脉压、脑血流、下体负压舱压力和呼出气CO的模拟信号到数字信号的转换2 以每通道至少 50 Hz 的频率进行采集。心电图以 1 kHz 采集。
注意:尽管后续分析处理的是较低频率的信息(≤0.07 Hz),但在研究过程中监测所采集信号的质量至关重要。50 Hz 的采样率可实现对血压和脑血流的准确可视化,以便检测伪迹。
- 设置动脉压、脑血流、下体负压舱压力和呼出气CO的模拟信号到数字信号的转换2 以每通道至少 50 Hz 的频率进行采集。心电图以 1 kHz 采集。
- 振荡性下体负压方案
- 打开真空泵,确保罐内压力稳定在 –30 mmHg。
- 将重复循环定时器设置为 33 秒,用于 0.03 Hz 的 OLBNP。
- 调整多普勒探头以确保获得最佳信号。
- 至少采集15个周期(0.03 Hz下500秒)的数据,以确保PPR估计值具有足够的置信度。若时间允许,应采集更多数据,以进一步提高信噪比。
- 通过改变重复周期定时器的持续时间,对 0.03 Hz–0.08 Hz 之间的任意频率重复上述步骤。
注意:按顺序应用频率,但在不同受试者之间随机改变起始频率。
2. 投影寻踪回归(PPR)
- 数据预处理
- 降采样与低通滤波
- 打开 Matlab。输入命令“data = resample(data, 1, SR/5)”(其中 SR 为原始采样率),将动脉压和脑血流信号降采样至 5 Hz。
注:可选地,使用截止频率为 0.4 Hz 的低通滤波器(19th 阶切比雪夫 II 型)。尽管后续处理已包含相关步骤,此滤波操作仍可生成不依赖于噪声较大的动脉压和脑血流信号峰值检测的平均波形,因此具有辅助作用。
- 打开 Matlab。输入命令“data = resample(data, 1, SR/5)”(其中 SR 为原始采样率),将动脉压和脑血流信号降采样至 5 Hz。
- 伪迹去除
- 以原始未降采样的波形作为参考,移除信号中存在伪迹的片段,并进行线性插值。若伪迹部分占总记录时长超过 10%,则完全舍弃该记录。
注:至此,波形已适合用于传统的线性分析方法,例如传递函数分析。
- 以原始未降采样的波形作为参考,移除信号中存在伪迹的片段,并进行线性插值。若伪迹部分占总记录时长超过 10%,则完全舍弃该记录。
- 带通滤波
- 在 Matlab 中输入:[B, A] = cheby1(1,1, [F – 0.005 F+0.005]/(SRd/2)) data = filtfilt(B, A, detrend(data, ‘linear’)),对压力和血流信号在 ± 0.005 Hz 范围内进行带通滤波(1st 阶切比雪夫 I 型,通带波纹 1 dB),中心频率为 OLBNP 频率(图 2),其中 F 为 OLBNP 的主导频率,SRd 为降采样后的采样率(步骤 2.1.1 后为 5 Hz),“data” 为降采样后的信号(动脉压或血流)。
注:此步骤可最小化潜在干扰,提高后续 PPR 分析的信噪比。尽管动脉压的主要波动出现在下肢负压的振荡频率上,但信号中的随机噪声可能干扰压力-血流关系的推导。若不进行带通滤波,结果在定性上相似,但解释的方差百分比(即,R2)会较低。19
- 在 Matlab 中输入:[B, A] = cheby1(1,1, [F – 0.005 F+0.005]/(SRd/2)) data = filtfilt(B, A, detrend(data, ‘linear’)),对压力和血流信号在 ± 0.005 Hz 范围内进行带通滤波(1st 阶切比雪夫 I 型,通带波纹 1 dB),中心频率为 OLBNP 频率(图 2),其中 F 为 OLBNP 的主导频率,SRd 为降采样后的采样率(步骤 2.1.1 后为 5 Hz),“data” 为降采样后的信号(动脉压或血流)。
- 降采样与低通滤波
- 投影寻踪回归估计
注:使用 R 统计计算语言与环境中的内置函数 'ppr',和/或通过其他平台自定义编写的函数,生成动脉压-脑血流关系的单个脊函数(M=1)。- 在 Matlab 中输入命令 “CVLabPPR(pressure,flow)”。输入研究编号 XXXYYY,其中 XXX 为三位字母的研究代码,YYY 为三位数字的受试者编号。以 YYYY-MM-DD 格式输入研究日期。输入数值化的测量序号(例如,“1” 表示第 1 天)。
- 输入 APM(若使用 Finapres 则输入 FP,若使用动脉导管则输入 AL)。输入血管名称(MCA、ACA 或 PCA)。对提示“您是否有右侧 MCA 测量数据?”输入“y”或“n”。对提示“您是否有左侧 MCA 测量数据?”输入“y”或“n”。
注:
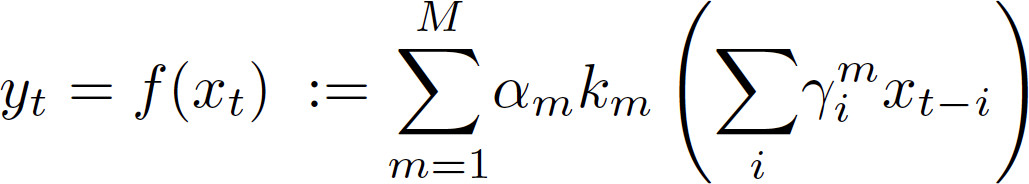
对于每个输入(xt — 动脉血压)和输出(yt — 脑血流),一个线性自回归传递函数(公式 1 — 括号内的项)通过非参数核函数(km;称为“脊函数”)进行映射,这些函数通过最小化均方误差确定。投影寻踪回归可包含多个脊函数(即,M > 1)。然而,尽管这会降低均方误差,但由于脊函数之间可能存在交互作用,可能使脊函数的解释变得模糊。由于主要目的是获得一个在生理学上可解释的动脉压与脑血流之间的关系,PPR 应限制为仅使用一个脊函数(M = 1)。 - 分段线性参数化。将脊函数参数化为分段线性函数,用于后续统计分析(图 3)。在 Matlab 中使用 Bruno Luong 的 Free-knot 样条逼近方法。输入命令 “BSFK(x, y, k, nknots)”,其中 k=2 表示线性拟合,nknots=3 表示划分为三个区域。
注:此方法可识别动脉压-脑血流关系发生变化的临界点,以及关系近似呈线性的区间。图 3 展示了结果的示意图。每个区间内压力-血流关系的增益(即 线性斜率)反映了该区间内脑自动调节的有效性。较低的增益表示对压力波动的反向调节更有效,而较高的增益则表示血流对压力变化的响应更趋于被动。
结果
已有研究采用从10 mmHg22到120 mmHg17的OLBNP幅度来增强动脉压波动,但30 mmHg的OLBNP已足够23,24,且未超出脑血管调节能力的范围17。该水平的OLBNP可引起约15–20 mmHg、频率为0.03 Hz的血压振荡,其幅度不大于从坐位转为站立位时发生的血压变化25。OLBNP产生动脉压波动的有效范围存在一定局限性。自动调节机制仅在约0.07 Hz及更低频率下起作用,因此高频上限通常不构成问题。然而,在低于0.03 Hz时难以产生低频振荡,原因是心血管系统会在LBNP诱导的动脉压变化完成一个周期之前即启动反向调节。如图4所示,在0.025 Hz的OLBNP刺激下,动脉压振荡的最大峰值实际上出现在0.05 Hz。尽管可通过0.03 Hz至0.08 Hz范围内的OLBNP来表征脑自动调节的频率响应,以界定自动调节发挥作用的时间尺度23,24,但使用0.03 Hz和0.08 Hz的OLBNP已足够,因其可代表自动调节功能的不同程度(即,从显著的自动调节区域到无或轻微调节的区域)。
当负压振荡频率变慢时,OLBNP 会引起更大的动脉压波动。图5展示了从0.08 Hz(12.5秒周期)到0.03 Hz(33秒周期)的OLBNP所引起的动脉压及相应的脑血流波动。在较高频率下,脑血流随动脉压同步波动。压力-血流关系(PPR)体现了这一点:在0.08 Hz、0.07 Hz(14秒周期)和0.06 Hz(16.6秒周期)等较高频率下,动脉压与脑血流之间存在成比例的线性关系。然而,在较慢的OLBNP频率下,尽管动脉压波动幅度增大,脑血流的波动却逐渐被更有效地抑制。因此,在OLBNP频率从0.05 Hz(20秒周期)、0.04 Hz(25秒周期)降至0.03 Hz时,PPR显示出越来越显著的自主调节区域。如图中所示,在0.03 Hz时,PPR曲线明显呈现出Lassen所描述的“经典自主调节曲线”(图1)。我们先前已证明,这种现象不能简单地用振荡频率变慢时动脉压波动幅度增加来解释。我们此前曾将PPR应用于48名个体在不同强度OLBNP(即不同幅度的血压波动)下的数据19。虽然我们未明确探讨自主调节范围与血压波动幅度之间可能存在的关系,但报道显示自主调节范围的变化仅约为6%。因此,我们之前的结果明确表明,PPR曲线随频率的变化不能完全由血压波动幅度的变化来解释。在同一项研究中,我们还评估了PPR对自主调节特性的表征在不同实验会话之间是否可重复。该分析显示,在0.03 Hz OLBNP期间,自主调节范围的斜率未发生变化(Lin一致性系数 = 0.96,p < 0.001),表明非线性的压力-血流关系在不同研究日之间具有一致性。
尽管脑血管床受到交感神经纤维的良好支配,但其在自动调节中的作用尚未被广泛接受。26 因此,我们此前的一些研究探讨了交感神经系统在脑血管自动调节中的潜在作用。24 我们发现交感系统在调节脑血流方面具有明确作用,但由于线性方法在表征自动调节方面的局限性,我们无法准确描述去除交感影响后该关系如何变化。应用PPR分析0.05 Hz频率下交感阻断前(基线)和阻断后的数据,结果如图6所示。整体曲线明显变得更加线性。此外,对自动调节表现最明显的0.03 Hz数据进行PPR分析显示,自动调节区的范围保持不变,但该区域内的斜率增加,反映出自动调节效能降低(图7)。
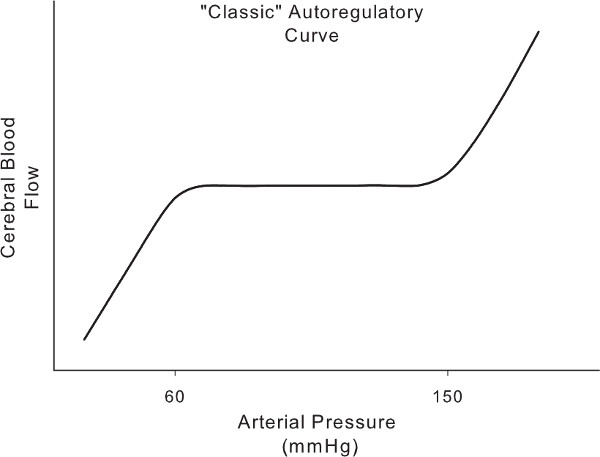
图1. 基于静水压的升降与稳态脑血流量之间关系所推导出的“经典”自身调节曲线。 在压力变化时血流量保持不变的区域(即,斜率为0)被两个区域所包围,在这些区域内,升高或降低的压力会导致脑血流量呈比例地变化。
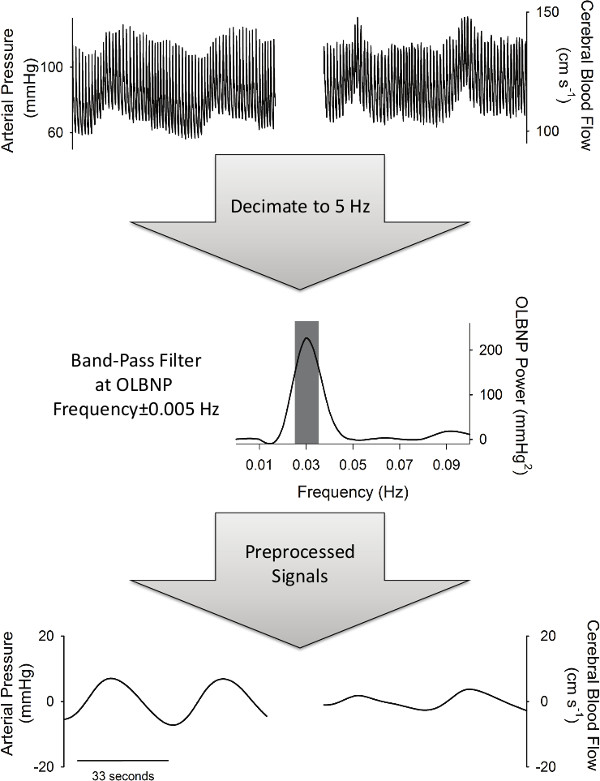
图 2. 进行 PPR 分析所需的预处理步骤。 信号首先被降采样至 5 Hz,然后在 OLBNP 频率范围内(±0.005 Hz)进行带通滤波。
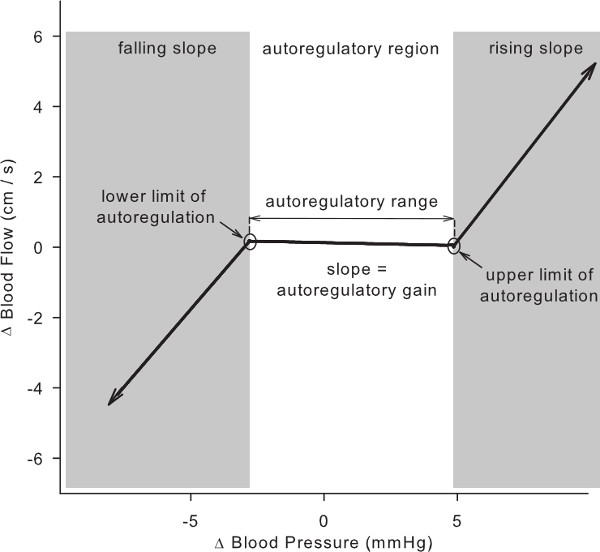
图3. 通过0.03 Hz OLBNP期间动脉压与脑血流量的PPR分析得出的脑血流自身调节曲线参数。
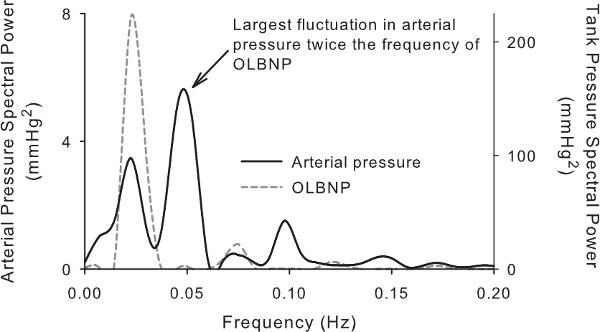
图 4. 功率谱显示当OLBNP频率低于0.03 Hz(33秒周期)时,动脉压波动幅度的变化。 注意到动脉压频谱功率在0.025 Hz和0.05 Hz(40秒和20秒周期)处有两个显著峰值,而LBNP频谱功率仅在0.025 Hz处出现一个峰值。此外,动脉压的最大波动出现在0.05 Hz,这会干扰对脑血流反应结果的解读。
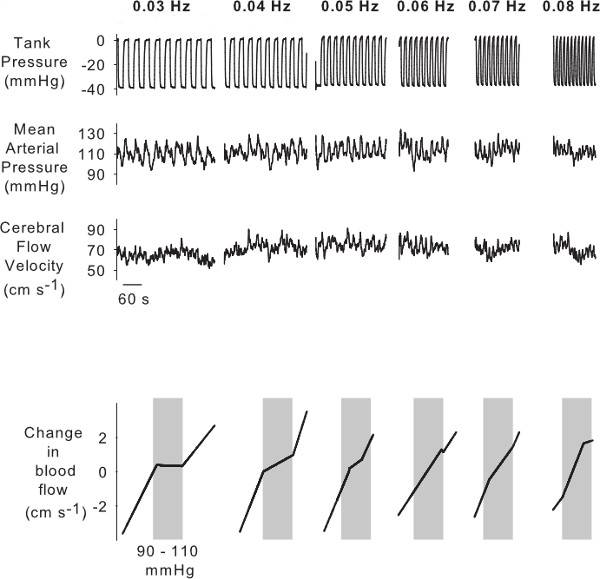
图 5. 不同频率(0.08 至 0.03 Hz)OLBNP 对动脉压和脑血流影响的示例。 随着 OLBNP 频率减慢,动脉压波动增大,而脑血流波动减小。下部图示中的 PPR 分析结果描述了这种自主调节功能。随着 OLBNP 频率减慢,脑血流的自主调节区域逐渐变得更加显著。
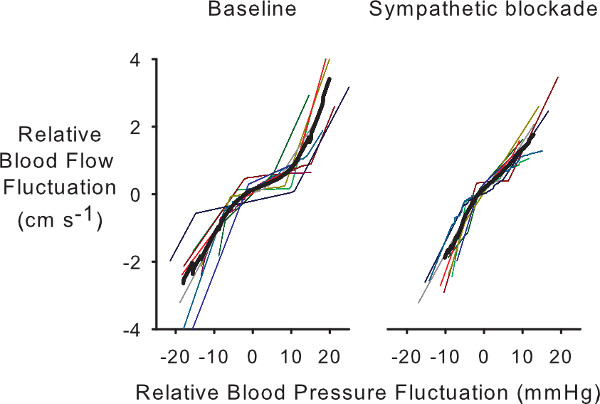
图6. 受试者在交感神经阻断前(基线状态)和阻断后,由0.05 Hz OLBNP数据得出的个体及平均PPR自身调节曲线。 注意交感神经阻断后狭窄的自身调节区域消失。
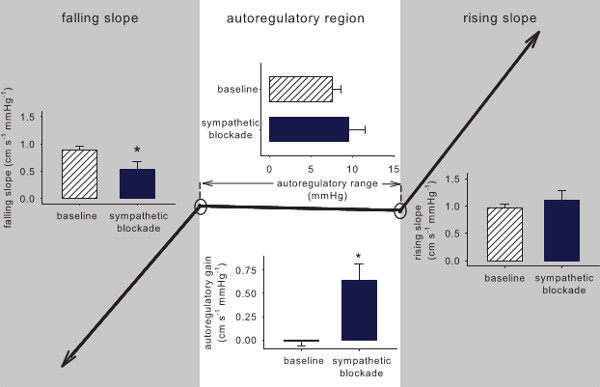
图7. 交感神经阻断前后0.03 Hz OLBNP数据中PPR参数的平均值。 交感神经阻滞对自身调节范围内的脑自动调节曲线具有显著影响,明显增加了其斜率(即,压力变化时脑血流变化更为成比例。
讨论
精确定义输入-输出关系可能需要输入(在本例中为压力)在足够宽的范围内主动变化,以观察输出响应。然而,在脑自动调节的频率范围内,自发发生的压力波动极不一致且振幅很小27。这正是自发性血压和血流变化呈现出时而高度相关、时而极度低度相关的关系,以及脑血流振荡看似在无明显动脉压力驱动的情况下出现的原因28。OLBNP22提供了一种关键技术,可产生频率和振幅可控且稳定的动脉压力振荡,用于评估脑血流的响应。尽管可能存在其他可提供类似探查手段的方法,但该方法能够严格检验动脉压力与脑血流速度之间依赖于频率和/或振幅的关系。
既往研究在探索脑血流自动调节的潜在测量工具时,曾采用动脉压与脑血流之间关系的线性模型例如, 传递函数分析)。当压力振荡相对较快时,可观察到压力与血流变化之间存在紧密的线性关系,且无衰减现象。 即, > ~10 秒。然而,较慢的振荡(> 约20秒后,压力与流量之间的关系逐渐偏离线性。8,24 如果关系并非高度线性相关(低 R2,低的交叉谱相干性)时,对传递函数增益和相位等线性指标的准确性无法确信。缺乏线性关系表明存在重要的非线性特征,这正是脑自动调节的典型表现。事实上,自动调节本身本质上难以通过线性方法进行表征;线性方法仅能提示自动调节的存在或缺失,但无法描述其特性及调节效能。
存在一些方法,其复杂性与线性方法相当,但能够评估输入(压力)与输出(流量)变量之间的非线性关系。投影寻踪回归仅是一种非参数、非理论性的多元回归方法。29,30 不预设一个 先验的 模型或假设输入与输出之间存在线性关系。这对于表征尚未完全理解的系统具有明显优势。然而需要注意的是,使用多个脊函数虽可提高解释的方差百分比,但会削弱对特征关系生理学意义的解释能力。因此,建议将投影寻踪回归限制为仅使用一个脊函数。尽管如此,采用单个脊函数的PPR方法仍可解释动脉压与脑血流量之间关系中相当大比例的方差,并揭示个体间一致的特征性非线性关系。
局限性与可能的改进
振荡性下半身负压需要特定且繁琐的设备和操作程序,因此不适用于临床环境下的评估。有可能通过足够长时间的静息状态记录来获取足够的数据,用于脑自动调节的PPR分析。然而,先前的研究表明,静息数据的投影寻踪回归分析效果显著低于对0.03 Hz OLBNP数据的分析。尽管静息状态下和0.03 Hz OLBNP期间量化得到的血压-血流关系存在关联19,但二者相关性较弱,仅表明静息状态下估计的血压-血流关系可能无法可靠地反映0.03 Hz OLBNP所获得的结果。一种解决方案是通过缓慢、深部的等碳酸呼吸或重复的下蹲-站立动作,在脑自动调节相关频率范围内产生更稳定且幅度更大的血压波动。这些方法已被证明能够可靠地引发较大的血压波动,可能产生足够宽范围的变化,从而观察到脑血流的响应情况31,32。
尽管平均而言,投影寻踪回归能够解释动脉压与脑血流波动之间显著部分的关系,但在少数情况下,其解释的方差可能较低(约6%19)。性能较差可能源于例如呼吸模式的影响,如果呼吸频率和潮气量未加控制的话。然而,每种生理学检测都可能存在一些异常观测值,本方法也不例外。大约每20次观测中出现1次测量不佳的情况,并不应削弱该方法的潜在应用价值。
未来应用与结论
在某些病理生理状况下,如卒中33和创伤性脑损伤34,特征性的压力-血流关系可能发生改变。如果能够在临床环境中获得准确的关系数据,那么基于投影寻踪回归的脑自动调节评估可能会有更广泛的应用,并可在无法使用OLBNP时作为有效的评估工具。简单的操作方法(例如,深呼吸、大腿袖带放气法、坐立站转换)和/或较长时间的静息记录,可能产生可用于推导脑自动调节参数的压力-血流关系,其结果可与OLBNP数据相媲美。然而,基于实验室的研究若能明确不同调节系统及其对自动调节非线性特征的贡献,将有助于深入理解脑血管调控机制,并有助于诊断脑自动调节功能的病理生理改变(例如,创伤性脑损伤后)。
披露
作者声明不存在任何竞争性经济利益。
致谢
本研究由国家心肺血液研究所资助项目HL-093113支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 经颅多普勒超声 | Compumedics DWL | Multi-Dop X 数字系统 | 2 MHz 探头 |
| 心电图与肱动脉血压监测 | GE | Dash 2000 | |
| 下体负压舱 | 爱荷华大学生物工程系 | 定制制造 | |
| 机械阀门 | 爱荷华大学生物工程系 | 定制制造 | |
| 循环周期定时器 | Macromatics | TR-50826-07 | |
| 压力传感器 | Gould | ||
| 光电容积脉搏波指套式血压监测仪 | Finapres Medical Systems | Finometer PRO | |
| CO2 气体分析仪 | VacuMed | #17515 CO2 分析仪,金版 | |
| 数据采集系统 | AD Instruments | 数据采集系统 - PowerLab |
参考文献
- Strandgaard, S., Paulson, O. B. Cerebral autoregulation. Stroke. 15, 413-416 (1984).
- Lassen, N. A. Cerebral blood flow and oxygen consumption in man. Physiol. Rev. 39, 183-238 (1959).
- Symon, L., Held, K., Dorsch, N. W. A study of regional autoregulation in the cerebral circulation to increased perfusion pressure in normocapnia and hypercapnia. Stroke. 4, 139-147 (1973).
- Rapela, C. E., Green, H. D. Autoregulation of Canine Cerebral Blood Flow. Circ. Res. 15, 205-212 (1964).
- Aaslid, R., Markwalder, T. M., Nornes, H. Noninvasive transcranial Doppler ultrasound recording of flow velocity in basal cerebral arteries. J. Neurosurg. 57, 769-774 (1982).
- Aaslid, R., Lindegaard, K. F., Sorteberg, W., Nornes, H. Cerebral autoregulation dynamics in humans. Stroke. 20, 45-52 (1989).
- Newell, D. W., Grady, M. S., Sirotta, P., Winn, H. R. Evaluation of brain death using transcranial Doppler. Neurosurgery. 24, 509-513 (1989).
- Hamner, J. W., Cohen, M. A., Mukai, S., Lipsitz, L. A., Taylor, J. A. Spectral indices of human cerebral blood flow control: responses to augmented blood pressure oscillations. J. Physiol. 559, 965-973 (2004).
- Blaber, A. P., et al. Complexity of middle cerebral artery blood flow velocity: effects of tilt and autonomic failure. Am J Physiol. 273, 2209-2216 (1997).
- Diehl, R. R., Linden, D., Lucke, D., Berlit, P. Spontaneous blood pressure oscillations and cerebral. 8, 7-12 (1998).
- Panerai, R. B., Rennie, J. M., Kelsall, A. W., Evans, D. H. Frequency-domain analysis of cerebral autoregulation from spontaneous fluctuations in arterial blood pressure. Med. Biol. Eng. Comput. 36, 315-322 (1998).
- Zhang, R., Zuckerman, J. H., Levine, B. D. Deterioration of cerebral autoregulation during orthostatic stress: insights from the frequency domain. J. Appl. Physiol. 85, 1113-1122 (1998).
- Wolthuis, R. A., Bergman, S. A., Nicogossian, A. E. Physiological effects of locally applied reduced pressure in. 54, 566-595 (1974).
- Esch, B. T., Scott, J. M., Warburton, D. E. Construction of a lower body negative pressure chamber. Adv. Physiol. Educ. 31, 76-81 (2007).
- Brown, C. M., Dutsch, M., Ohring, S., Neundorfer, B., Hilz, M. J. Cerebral autoregulation is compromised during simulated fluctuations in gravitational stress. Eur. J. Appl. Physiol. 91, 279-286 (2004).
- Hidaka, I., et al. Noise-enhanced heart rate and sympathetic nerve responses to oscillatory lower body negative pressure in humans. J. Neurophysiol. 86, 559-564 (2001).
- Tzeng, Y. C., Chan, G. S., Willie, C. K., Ainslie, P. N. Determinants of human cerebral pressure-flow velocity relationships: new insights from vascular modelling and Ca(2)(+) channel blockade. J. Physiol. 589, 3263-3274 (2011).
- Zhang, R., et al. Autonomic neural control of dynamic cerebral autoregulation in humans. Circulation. 106, 1814-1820 (2002).
- Tan, C. O. Defining the characteristic relationship between arterial pressure and cerebral flow. J. Appl. Physiol. 113, 1194-1200 (2012).
- Schmidt, E. A., et al. Symmetry of cerebral hemodynamic indices derived from bilateral transcranial Doppler. J. Neuroimaging. 13, 248-254 (2003).
- Paulson, O. B., Strandgaard, S., Edvinsson, L. Cerebral autoregulation. Cerebrovasc. Brain. Metab. Rev. 2, 161-192 (1990).
- Hamner, J. W., Morin, R. J., Rudolph, J. L., Taylor, J. A. Inconsistent link between low-frequency oscillations: R-R interval responses to augmented Mayer waves. J. Appl. Physiol. 90, 1559-1564 (2001).
- Hamner, J. W., Tan, C. O., Tzeng, Y. C., Taylor, J. A. Cholinergic control of the cerebral vasculature in humans. J. Physiol. 590, 6343-6352 (2012).
- Hamner, J. W., Tan, C. O., Lee, K., Cohen, M. A., Taylor, J. A. Sympathetic control of the cerebral vasculature in humans. Stroke. 41, 102-109 (2010).
- Narayanan, K., Collins, J. J., Hamner, J., Mukai, S., Lipsitz, L. A. Predicting cerebral blood flow response to orthostatic stress from resting dynamics: effects of healthy aging. Am. J. Physiol. Regul. Integr. Comp. Physiol. 281, 716-722 (2001).
- Lieshout, J. J., Secher, N. H. Point:Counterpoint: Sympathetic activity does/does not influence cerebral blood flow. Point: Sympathetic activity does influence cerebral blood flow. J. Appl. Physiol. 105, 1364-1366 (2008).
- Taylor, J. A., Carr, D. L., Myers, C. W., Eckberg, D. L. Mechanisms underlying very-low-frequency RR-interval oscillations in humans. Circulation. 98, 547-555 (1998).
- Giller, C. A., Mueller, M. Linearity and non-linearity in cerebral hemodynamics. Med. Eng. Phys. 25, 633-646 (2003).
- Friedman, J. H., Stuetzle, W. Projection pursuit regression. Am. Stat. Assoc. 76, 817-823 (1981).
- Friedman, J. H., Tukey, J. W. A projection pursuit algorithm for exploratory data analysis. IEEE Trans. Comp. 23, 881-889 (1974).
- Claassen, J. A., Levine, B. D., Zhang, R. Dynamic cerebral autoregulation during repeated squat-stand maneuvers. J. Appl. Physiol (1985). 106, 153-160 (2009).
- Taylor, J. A., Myers, C. W., Halliwill, J. R., Seidel, H., Eckberg, D. L. Sympathetic restraint of respiratory sinus arrhythmia: implications for vagal-cardiac tone assessment in humans. Am. J. Physiol. Heart Circ. Physiol. 280, 2804-2814 (2001).
- Aries, M. J., Elting, J. W., De Keyser, J., Kremer, B. P., Vroomen, P. C. Cerebral autoregulation in stroke: a review of transcranial Doppler studies. Stroke. 41, 2697-2704 (2010).
- Rangel-Castilla, L., Gasco, J., Nauta, H. J., Okonkwo, D. O., Robertson, C. S. Cerebral pressure autoregulation in traumatic brain injury. Neurosurg. Focus. 25, 7(2008).
重印与许可
