我们介绍了由分裂内含肽介导的蛋白水凝胶的合成。该水凝胶的构建单元是两种蛋白共聚物,每种共聚物包含一个三聚体蛋白的亚基(作为交联剂)以及一半的分裂内含肽。混合这两种蛋白共聚物可触发内含肽反式剪接反应,生成可自组装形成水凝胶的多肽单元。该水凝胶具有高度的pH和温度稳定性,与有机溶剂相容,并可 facile 地整合功能性球状蛋白。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
本文介绍了一种由分裂内含肽介导的蛋白质反式剪接反应催化的高稳定性蛋白质水凝胶的合成方法。该水凝胶的构建单元是两种蛋白质嵌段共聚物,每种共聚物均包含一个三聚体蛋白的亚基(作为交联剂)以及一半的分裂内含肽。其中一个嵌段共聚物中插入了一个高度亲水的无规卷曲结构以增强保水能力。两种蛋白质嵌段共聚物混合后触发内含肽反式剪接反应,生成两端带有交联剂的多肽单元,该单元可快速自组装形成水凝胶。该水凝胶在酸性和碱性条件下、温度高达50 °C时以及在有机溶剂中均表现出良好的稳定性。在剪切力导致断裂后,水凝胶可迅速重新形成。将“停靠站肽”引入水凝胶构建单元,可方便地实现“停靠蛋白”标记的目标蛋白的整合。该水凝胶与组织培养生长培养基相容,支持20 kDa分子的扩散,并可实现生物活性球状蛋白的固定化。通过包埋辣根过氧化物酶并验证其活性,展示了该内含肽介导的蛋白质水凝胶作为与有机溶剂相容的生物催化剂的应用潜力。
引言
完全由蛋白质构成的水凝胶有望显著推动组织工程、药物递送和生物制造等多个领域的发展1。与传统的合成聚合物水凝胶相比,它们具有生物相容性优势,并有可能以非侵入方式支持生物活性球状蛋白质的掺入。
在本研究中,我们描述了一种通过分裂型内含肽介导的蛋白质反式剪接反应形成的新型蛋白质水凝胶的开发过程,并介绍了其作为蛋白质固定化支架的应用(图1)。该水凝胶的构建单元是两种蛋白质嵌段共聚物,每种共聚物包含一个分裂型内含肽的N端或C端片段(IN和IC),以及一个多聚体交联蛋白的一个亚基。分裂型内含肽采用源自Nostoc punctiforme(Npu)的DnaE内含肽2,3,交联蛋白则采用来自Pyrococcus horikoshii的小型三聚体蛋白(12 kDa)CutA4,5。不同的交联蛋白通过内含肽催化的反式剪接反应连接,从而形成高度交联的蛋白质网络(水凝胶)。选择Npu内含肽是因为其反应动力学快(t1/2 = 63 秒)且反式剪接产率高(接近80%)2,3。选择CutA蛋白作为交联剂则因其具有极高的稳定性:CutA三聚体的变性温度接近150 °C,并能在含有高达5 M盐酸胍的溶液中保持其三聚体四级结构4,6。由于不同交联剂之间的亚基交换是导致物理水凝胶表面侵蚀的主要因素7,而CutA中极强的亚基间相互作用可有效抑制此类亚基交换,从而形成更稳定的水凝胶。其中一种构建单元还在中间区段包含一个高度亲水的肽段S-片段,以促进水分子的保留8。
混合两种水凝胶构建模块会启动IN与IC内含肽片段之间的反式-剪接反应,生成在两端均带有交联剂的较长多肽链。多个此类分子单元的交联剂相互作用,形成高度交联的水凝胶网络(图1A)。其中一种水凝胶构建模块中引入了特定的“对接站肽”(DSP),以促进“对接蛋白”(DP)标记的目标蛋白在水凝胶中的稳定固定。利用分裂内含肽介导水凝胶组装,不仅为蛋白水凝胶的合成提供了额外的灵活性,还能在水凝胶形成之前即完成目标蛋白的装载,从而实现目标蛋白在整个水凝胶中高密度且均匀的负载。
这种由内含肽介导的蛋白质水凝胶在水溶液中具有高度稳定性,在室温下存放3个月后几乎未检测到降解。该水凝胶在广泛的pH范围(6-10)和温度范围(4-50 °C)内均能保持稳定,并且与有机溶剂相容。该水凝胶可用于固定两种球状蛋白质:绿色荧光蛋白(GFP)和辣根过氧化物酶(HRP)。包埋后者的水凝胶可用于在有机溶剂中进行生物催化反应。
访问受限。请登录或开始试用以查看此内容。
方案
1. 质粒构建
注意:所有基因均根据制造商说明,使用 Phusion 高保真 DNA 聚合酶在标准 PCR 反应条件下进行扩增。用于克隆的引物此前已有描述9。所有构建体均列于表 1中。
- 为了生成 CutA-NpuN(N, 表1):
- 从质粒 pET30-CutA-Tip1 中 PCR 扩增 CutA 和 NpuN 基因10 和 KanR-IntRBS-NpuNC-CFN11分别使用相应的引物。
- 用适当的限制性内切酶消化这些片段,并将这些片段依次插入 pET26b 载体中 T7 启动子与C端6xHis标签之间的位点,以构建 N (图 2A).
- 生成 NpuC-S-CutA(C, 表1):
- PCR 扩增 NpuC、CutA 和 S 片段 [AG3(聚乙二醇)[PEG]10 来自质粒 KanR-IntRBS-NpuNC-CFN11pET30-CutA-Tip110 和 pQE9 AC10Atrp12分别使用相应的引物。
- 用相应的限制性内切酶消化这些片段,并将这些片段依次插入 pET26b 载体中 T7 启动子与C端6×组氨酸标签之间的位点,以构建 C (图2B).
- 生成 NpuC-S-SH3配体-CutA(C-SH3配体, 表1):
- 使用含有 SH3 的引物对 CutA 进行 PCR 扩增配体 (PPPALPPKRRR)和一段柔性连接子(GGGGS)2 生成SH3片段配体-CutA
- 替换 CutA 基因 C 含SH3片段配体-CutA
- 为了生成SH3-GFP(表1):
- 从质粒 pJD757 中扩增 SH3 基因13 使用适当的引物。
- 将该片段与GFP基因融合,并插入pET26b载体中T7启动子下游的位点图2CC端6xHis标签。
2. 蛋白质表达
- 将50 μl感受态化学转化的Escherichia coli BL21(DE3)细胞与适当的表达质粒进行转化。
- 转化后,对这些细胞进行连续稀释,并涂布于含有50 μg/ml卡那霉素的Luria-Bertani(LB)/琼脂平板上。
- 将含有转化细胞的平板在37 °C下培养约15小时。
- 培养结束后,挑选含有50–100个菌落的平板,将所有菌落重悬于5 ml LB液体培养基中。
- 将菌悬液转移至含有卡那霉素(50 μg/ml)的1 L LB液体培养基中,在37 °C、250 rpm振荡条件下培养细胞。监测600 nm处的吸光度(OD600),继续培养至OD600达到约0.8。
- 对于C和C-SH3lig,通过向培养物中加入异丙基-β-D-硫代半乳糖苷(IPTG)至终浓度1 mM以诱导蛋白表达,并在37 °C、250 rpm振荡条件下继续培养4小时。
- 对于N和SH3-GFP,将培养瓶浸入冰水浴中约5分钟,使培养物冷却至约18 °C。加入IPTG至终浓度1 mM以诱导蛋白表达,并在18 °C、250 rpm振荡条件下继续培养14–18小时。
- 蛋白表达完成后,在4 °C条件下以6,000 × g离心20分钟,收集菌体沉淀。将细胞沉淀储存于-80 °C,待后续使用。
3. 蛋白质纯化
- N蛋白的纯化(变性条件)
- 按每克湿菌体10 ml的比例,用缓冲液A(表2)重悬菌体沉淀。
- 将菌体悬液置于冰水浴中,通过超声破碎细胞(振幅10,脉冲1秒,暂停6秒,持续1分钟)。
- 在4 °C条件下,以16,000 × g离心裂解液20分钟。
- 弃去上清液。用含8 M尿素的缓冲液DA重悬沉淀,并在4 °C条件下以16,000 × g离心20分钟。
- 将上清液通过预先用缓冲液DA平衡的5 ml Ni-次氮基三乙酸(NTA)柱。
- 用含45 mM咪唑的缓冲液DA洗涤柱子30 ml,然后用含150 mM咪唑的缓冲液DA 20 ml洗脱纯化的蛋白。
- 通过以下任一方法(3.1.7.1或3.1.7.2)将蛋白样品中的尿素浓度降低至<1 mM:
- 使用截留分子量<20 kDa的透析袋,在4 °C下用DPBS缓冲液(表2)透析过夜。
- 将纯化的蛋白加入30 kDa超滤离心柱中,在2,800 × g、4 °C条件下离心至体积小于1 ml。向柱中加入14 ml DPBS缓冲液稀释蛋白样品。重复离心/稀释步骤三次。
- 完成缓冲液置换后,向纯化的蛋白中加入二硫苏糖醇(DTT)至终浓度为2 mM,并在2,800 × g、4 °C条件下使用30 kDa超滤离心柱浓缩蛋白至约100 mg/ml。
- 将浓缩后的蛋白分装,于-80 °C保存备用。
- C蛋白及C-SH3lig蛋白的纯化(天然条件)
- 按每克湿菌体10 ml的比例,用添加了1×蛋白酶抑制剂混合物的缓冲液B(pH 6.0)(表2)重悬菌体沉淀。使用酸性缓冲液以尽量减少目标蛋白的蛋白水解降解。
- 按照步骤3.1.2所述方法进行超声破碎。在4 °C条件下以16,000 × g离心裂解液20分钟,保留上清液。
- 将可溶性裂解液通过预先用缓冲液B平衡的5 ml Ni-NTA柱。
- 用含45 mM咪唑的缓冲液B洗涤柱子,然后用含150 mM咪唑的缓冲液B 20 ml洗脱目标蛋白。
- 对于C蛋白,直接跳至步骤3.2.6。对于C-SH3lig蛋白,需额外进行离子交换纯化步骤以去除部分降解的蛋白,具体操作见步骤3.2.5.1至3.2.5.3:
- 按照步骤3.1.7所述方法,将C-SH3lig中的NaCl浓度降低至<1 mM。
- 将目标蛋白上样至预先用磷酸钠缓冲液(50 mM,pH 7.0)平衡的5 ml阴离子交换琼脂糖珠柱。
- 采用梯度洗脱法,从含10 mM Tris-HCl(pH 8.0)的溶液逐步过渡到含相同缓冲液并添加1 M NaCl的溶液,从柱子上洗脱目标蛋白。在洗脱过程中收集各组分,根据十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)结果合并纯度最高的组分。
- 按照步骤3.1.7所述方法,将纯化的蛋白置换至DPBS缓冲液中。
- 向纯化的蛋白中加入DTT至终浓度为2 mM,并按照步骤3.1.8所述方法使用30 kDa超滤离心柱浓缩蛋白至约100 mg/ml。分装后于-80 °C保存备用。
- SH3-GFP蛋白的纯化
- 按每克湿菌体10 ml的比例,使用缓冲液A重悬菌体沉淀。
- 按照步骤3.1.2所述方法对菌体悬液进行超声破碎。
- 在4 °C条件下以16,000 × g离心裂解液20分钟,收集上清液。
- 将上清液(可溶性裂解液)通过预先用缓冲液A平衡的5 ml Ni-NTA柱。
- 用含45 mM咪唑的缓冲液A 30 ml洗涤柱子,然后用含150 mM咪唑的缓冲液A 20 ml洗脱纯化的蛋白。
- 采用与步骤3.1.7类似的方法将纯化的蛋白置换至DPBS缓冲液,并按照步骤3.1.8所述方法使用30 kDa超滤离心柱浓缩蛋白至约150 mg/ml。
- 将纯化的蛋白分装,于-80 °C保存备用。
- 含CutA蛋白样品的SDS-PAGE分析
- 用双蒸水稀释各纯化蛋白,使NaCl浓度降至约1 mM。在此NaCl浓度下,大多数CutA三聚体蛋白在SDS-PAGE凝胶中以单体形式迁移。
- 将样品与2× SDS上样缓冲液(0.5 M Tris-HCl,pH 6.8,20%甘油,10% w/v SDS,0.1% w/v溴酚蓝,2% β-巯基乙醇)混合,在95 °C孵育5分钟。
- 将样品上样至12% SDS-PAGE凝胶,在恒定电压200 V下电泳约50分钟。
- 按照标准操作流程使用考马斯亮蓝R250染色观察凝胶中的蛋白条带(图1C)。
4. 水凝胶的形成
注意:本研究中制备的样品水凝胶每种水凝胶构建单元的浓度均为 1.6 mM,除非另有说明。该蛋白质浓度可形成柔软且稳定的水凝胶。警告:为防止细菌污染,水凝胶中添加叠氮化钠(NaN3),终浓度为 0.5%(w/v)。叠氮化钠(NaN3)具有高毒性,必须严格按照材料安全数据表中的说明小心操作。
- 计算每种浓缩蛋白所需的体积,以在 100 μl 样品水凝胶中达到 1.6 mM 的终浓度。例如:
N 的浓度:100 mg/ml
N 的分子量:26.3 kDa(参见 表 1)
目标体积:100 μl,目标浓度:1.6 mM
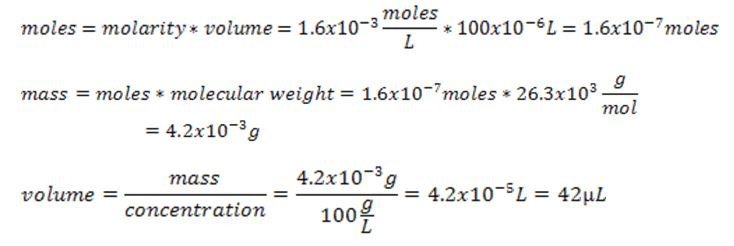
- 制备 100 μl 水凝胶(1.6 mM),在 2 ml 玻璃小瓶中混合 C(x μl,体积根据步骤 4.1 计算)、5% NaN3(10 μl)、100 mM DTT(5 μl)和 N(y μl,体积根据步骤 4.1 计算)。
- 向小瓶中加入 DPBS 缓冲液((85 - x - y) μl),使终体积达到 100 μl,并使用移液器枪头通过旋涡式动作手动混匀所有组分。注意:混合后溶液将变得非常黏稠。
- 将混合物在 8,000 × g 条件下离心 2 分钟,以去除气泡。
- 将混合物在室温下孵育过夜,使内含肽 trans-剪接反应完全。通过将管子倒置来确认水凝胶的形成。若已形成水凝胶,蛋白不会流动。
- 通过 SDS-PAGE 凝胶分析步骤 4.2 之前和步骤 4.5 之后采集的样品(各 0.5 μl),评估内含肽 trans-剪接的产率,方法如步骤 3.4 所述(图 1C)。
5. 通过对接蛋白(DP)与对接站肽(DSP)相互作用固定GFP
- 制备50 μl GFP功能化水凝胶(1.2 mM):在1.7 ml 微离心管中,按1:1摩尔比加入C-SH3lig(x μl,根据4.1节计算)和SH3-GFP(y μl,根据4.1节计算),于室温孵育30分钟。
- 向同一管中加入5% NaN3(5 μl)、100 mM DTT(2.5 μl)以及(42.5 - x - y) μl DPBS。加入N(y μl,根据4.1节计算),使N与C-SH3lig达到1:1摩尔比。用移液枪头以涡旋方式混匀样品。
- 将混合物在8,000 × g离心2分钟,随后于室温避光过夜孵育。孵育过程中形成包封SH3-GFP的水凝胶。
6. 使用1.6 mM水凝胶作为有机溶剂中酶促反应的固定化支架
- 以辣根过氧化物酶(HRP)作为模型酶。用DPBS配制HRP储备液(28 mg/ml 或 0.63 mM)。
- 制备包埋HRP的30 μl水凝胶(1.6 mM),在1.7 ml离心管中混合C(x μl,根据4.1节计算)、HRP(2 μl)、5% NaN3(3 μl)和DTT(1.5 μl,100 mM)。
- 加入N(y μl,根据4.1节计算)和DPBS(23.5 - x - y)μl。用移液枪头以旋涡方式混匀。
- 将混合物在8,000 × g离心2分钟,并在室温下孵育过夜。
警告:后续活性测定所用试剂具有高毒性。请遵循相应材料安全数据表(MSDS)中的特定安全建议。 - 进行酶促反应时,将水凝胶浸入1 ml反应混合液中,反应液包含N,N-二甲基-p-苯二胺(5.8 mM)、苯酚(5.8 mM)和叔-丁基过氧化氢(2.9 mM)溶于n-庚烷14中。使用移液枪头手动破坏凝胶,以增加水凝胶与溶剂的接触表面积。
- 通过酶标仪在546 nm处测定不同时间点样品的光吸收值,检测HRP产物——一种吲酚类染料(图5)。
访问受限。请登录或开始试用以查看此内容。
结果
一种由内含肽介导的蛋白质水凝胶形成的示意图如下所示 图1A水凝胶的基本组成单元是蛋白质共聚物 CutA-NpuN (N) 和 NpuC-S-CutA (C)图1A, 表1)。NpuN/C 是来自点状念珠藻(Nostoc punctiforme,Npu)天然分裂的 DnaE 内含肽的 N-端和 C-端片段。CutA 是一种稳定的三聚体蛋白,来源于 Pyrococcus horikoshii4,5在还原剂DTT存在下,将纯化的N端和C端混合可诱导形成第三种蛋白质——连接产物(J: CutA-S-CutA)。图1A 和 1C)。单独存在时,水凝胶构建单元N和C呈黏稠液体状(图1B将N与C混合后得到一种透明的半固体材料,倒置玻璃小瓶后该材料仍保留在瓶底,表明已形成水凝胶。15,16 (图1B)18,19.
访问受限。请登录或开始试用以查看此内容。
讨论
在本研究中,我们展示了由分裂内含肽介导的高稳定性蛋白质水凝胶的合成。利用分裂内含肽可使水凝胶在两种液相组分混合后条件性地形成。具体而言,分裂内含肽通过转剪接反应共价连接两个液相构建单元,形成具有末端交联结构的多肽链,进而快速自组装成水凝胶。 转-剪接反应,生成两端带有交联单元的多肽片段,该片段进而自组装形成水凝胶。通过混合诱导水凝胶的形成,可避免单组分蛋白水凝胶合成过程中因凝胶化导致层析纯化柱堵塞的技术难题。此外,该水凝胶在生理条件下即可形成,无需任何外源性化学诱导剂和/或物理刺激。
由内含肽介导的水凝胶在酸性和碱性缓冲液中以及生理温度下均保持高度稳定。每种单个构建单元仅需0.8 mM即可形成水凝胶(数据未显示),但较高蛋白质浓度(约1.6 mM)可形成机械稳定性更佳的水凝胶。该水凝胶的高度稳定性归因于以下两点:1)采用非常稳定的三聚体蛋白CutA作为交联剂;2)利用内含肽共价连接不同的交联剂。对SDS-PAGE凝胶进行密度分析显示,约80%的输入蛋白成功完成了分裂内含肽催化的反式-剪接反应。
访问受限。请登录或开始试用以查看此内容。
披露
不存在竞争性财务利益。
致谢
作者谨此感谢加州理工学院的 David Tirrell 博士惠赠质粒 pQE9 AC10Atrp12,感谢普林斯顿大学的 Tom Muir 博士惠赠质粒 KanR-IntRBS-NpuNC-CFN11,感谢日本石川县白山市金泽工业大学的 Takehisa Matsuda 博士惠赠质粒 pET30-CutA-Tip110,以及感谢加州大学伯克利分校的 Jay D. Keasling 博士惠赠质粒 pJD75713。本研究部分得到了美国国家科学基金会 CAREER 项目、美国空军青年研究员奖(YIP)以及 Norman Hackman 高级研究计划的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Phusion 高保真 DNA 聚合酶 | New England BioLabs | M0530S | |
| 有活性的 大肠杆菌 BL21 (DE3) | New England BioLabs | C2527I | |
| 劳里亚-伯特尼 | VWR | 90003-350 | |
| Bacto 琼脂培养基 | VWR | ||
硫酸卡那霉素 | VWR | ||
| IPTG | VWR | EM-5820 | |
| 咪唑 | VWR | EM-5720 | |
| 尿素 | VWR | EM-9510 | |
| 二硫苏糖醇(DTT) | Fisher | BP172-5 | |
| 蛋白酶抑制剂混合物 | 罗氏应用科学 | 11836153001 | |
| DPBS | VWR | 82020-066 | |
| 亮蓝 R | Acros Organics | A0297990 | |
| 叠氮化钠 | Fisher | AC190380050 | 注意:剧毒 |
| 辣根过氧化物酶 | Sigma | P8125-5KU | |
N,N-二甲基-p-苯二胺 | Fisher | AC408460250 | 注意:剧毒 |
| 苯酚 | Fisher | AC149340500 | 注意,剧毒 |
叔丁基过氧化氢 | Fisher | AC180340050 | 注意:剧毒 |
| 正庚烷 | Acros Organics | 120340010 | |
| [标题] | |||
| 摇床/培养箱 | Fisher Scientific | Max Q 6000 | |
| 离心 | Sorvall | RC 6 | |
| 超声波破碎仪 | QSonica | Misonix 200 | |
| 超滤管 | Amicon Ultra | UFC903024 | |
| Ni Sepharose High Performance HisTrap 柱 | GE Healthcare Life Sciences | 17-5248-01 | |
| HiTrap SP Sepharose FF 离子交换柱 | GE Healthcare Life Sciences | 17-5156-01 | |
| 酶标仪 | Molecular Devices | SpectraMax Gemini EM |
参考文献
- Banta, S., Wheeldon, I. R., Blenner, M. Protein Engineering in the Development of Functional Hydrogels. Ann. Rev. Biomed. Eng. 12, 167-186 (2010).
- Iwai, H., Zuger, S., Jin, J., Tam, P. H. Highly efficient protein trans-splicing by a naturally split DnaE intein from Nostoc punctiforme. FEBS Lett. 580, 1853-1858 (2006).
- Zettler, J., Schutz, V., Mootz, H. D. The naturally split Npu DnaE intein exhibits an extraordinarily high rate in the protein trans-splicing reaction. FEBS Lett. 583, 909-914 (2009).
- Tanaka, Y., et al. Structural implications for heavy metal-induced reversible assembly and aggregation of a protein: the case of Pyrococcus horikoshii CutA. FEBS Lett. 556, 167-174 (2004).
- Sawano, M., et al. Thermodynamic basis for the stabilities of three CutA1s from Pyrococcus horikoshii,Thermus thermophilus, and Oryza sativa, with unusually high denaturation temperatures. Biochemistry. 47, 721-730 (2008).
- Tanaka, T., et al. Hyper-thermostability of CutA1 protein, with a denaturation temperature of nearly 150 degrees C. FEBS Lett. 580, 4224-4230 (2006).
- Shen, W., Zhang, K., Kornfield, J. A., Tirrell, D. A. Tuning the erosion rate of artificial protein hydrogels through control of network topology. Nat. Mater. 5, 153-158 (2006).
- McGrath, K. P., Fournier, M. J., Mason, T. L., Tirrell, D. A. Genetically directed syntheses of new polymeric materials. Expression of artificial genes encoding proteins with repeating -(AlaGly)3ProGluGly- elements. J. Am. Chem. Soc. 114, 727-733 (1992).
- Ramirez, M., Guan, D., Ugaz, V., Chen, Z. Intein-triggered artificial protein hydrogels that support the immobilization of bioactive proteins. J. Am. Chem. Soc. 135, 5290-5293 (2013).
- Ito, F., et al. Reversible hydrogel formation driven by protein-peptide-specific interaction and chondrocyte entrapment. Biomaterials. 31, 58-66 (2010).
- Lockless, S. W., Muir, T. W. Traceless protein splicing utilizing evolved split inteins. Proc. Natl. Acad. Sci. U.S.A. 106, 10999-11004 (2009).
- Shen, W., Lammertink, R. G. H., Sakata, J. K., Kornfield, J. A., Tirrell, D. A. Assembly of an artificial protein hydrogel through leucine zipper aggregation and disulfide bond formation. Macromolecules. 38, 3909-3916 (2005).
- Dueber, J. E., et al. Synthetic protein scaffolds provide modular control over metabolic flux. Nat. Biotechnol. 27, (2009).
- Bruns, N., Tiller, J. C. Amphiphilic network as nanoreactor for enzymes in organic solvents. Nano Lett. 5, 45-48 (2005).
- Das, D., et al. Water gelation of an amino acid-based amphiphile. Chem. Eur. J. 12, 5068-5074 (2006).
- Cao, Y., Li, H. Engineering tandem modular protein based reversible hydrogels. Chem. Commun. , 4144-4146 (2008).
- Wu, X., et al. Structural basis for the specific interaction of lysine-containing proline-rich peptides with the N-terminal SH3 domain of c-Crk. Structure. 3, 215-226 (1995).
- Nguyen, J. T., Turck, C. W., Cohen, F. E., Zuckermann, R. N., Lim, W. A. Exploiting the basis of proline recognition by SH3 and WW domains: Design of n-substituted inhibitors. Science. 282, 2088-2092 (1998).
- Olsen, B. D., Kornfield, J. A., Tirrell, D. A. Yielding Behavior in Injectable Hydrogels from Telechelic Proteins. Macromolecules. 43, 9094-9099 (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
