与无细胞的HIV-1病毒颗粒不同,受感染的CD4+ T细胞可被浆细胞样树突状细胞(pDCs)有效识别。本文描述了一种将外周血单个核细胞(PBMCs)或分离的pDCs与HIV-1感染的T细胞共培养的方法,用于评估pDCs通过I型干扰素(IFN)释放所反映的天然免疫识别能力。
本文内容
摘要
摘要
HIV-1 的天然免疫识别需要被感染的 CD4+ T 细胞与浆细胞样树突状细胞(pDCs)直接接触。为了研究这一过程,本文所述方案使用 freshly isolated 的人外周血单个核细胞(PBMCs)或浆细胞样树突状细胞(pDCs),以检测 T 细胞系(MT4)或异源性原代 CD4+ T 细胞中的感染情况。为确保有效的识别反应,必须在采血后立即分离 PBMCs,并使用最佳比例的感染 T 细胞。此外,可采用多参数流式细胞术染色来确认 PBMC 样本中包含生理比例的不同细胞谱系。还可设置多种对照以评估 pDCs 的存活率和功能活性,包括特异性表面标志物的表达、细胞对已知 Toll 样受体(TLR)通路激动剂的反应性,以及确认无自发性 I 型干扰素(IFN)的产生。在该体系中,freshly isolated 的 PBMCs 或 pDCs 与 HIV-1 感染的细胞在 96 孔板中共培养 18–22 小时。共培养后的上清液用于检测具有生物活性的 I 型 IFN 水平,通过监测 HEK-Blue IFN-α/β 细胞中 ISGF3 通路的激活情况来实现。在共培养前后,可对靶细胞进行流式细胞术分析,以测定多个参数,包括感染细胞的比例、特定表面标志物的表达水平,以及感染细胞的差异性杀伤情况。尽管这些方案最初是为追踪 I 型 IFN 的产生而开发的,但它们也可能用于研究 pDCs 释放的其他免疫调节分子,并进一步揭示调控 HIV-1 天然免疫识别的分子机制。
引言
产生I型干扰素的浆细胞样树突状细胞(pDC)是抵御病毒感染的第一道防线,因此在先天免疫与适应性免疫之间起着至关重要的桥梁作用 1。尽管游离的HIV-1病毒颗粒难以被先天免疫系统识别,但HIV-1感染的CD4+ T细胞却能被pDC有效感知 2。该感知机制首先需要感染T细胞表面的病毒包膜糖蛋白(gp120)与pDC上的CD4分子发生初始接触,随后pDC捕获并内化病毒。接着,pDC通过TLR7识别转移来的HIV-1 RNA,激活Myd88/IRF7信号通路,最终诱导I型干扰素的产生 3。值得注意的是,pDC中存在的第二条感知通路由TLR9介导,但该通路会被病毒糖蛋白gp120与pDC特异性表面标志物BDCA2的相互作用所抑制 4。
pDC 的 TLR7 和 TLR9 感知通路可能通过 BST2(也称为 Tetherin 或 CD317)与另一种 pDC 特异性表面抑制性受体 ILT7 的相互作用而受到负向调控5。BST2 在 pDC 和某些癌细胞表面高水平表达,而在其他细胞类型(如 B 细胞、巨噬细胞和 T 细胞)中表达水平相对较低。重要的是,BST2 可在多种转化细胞系以及人源和鼠源原代细胞培养物中被 I 型干扰素(type-I IFN)诱导表达6。除了其免疫调节功能外,最近研究发现 BST2 还可通过将新生病毒颗粒交联至感染细胞表面,抑制 HIV-1 及其他包膜病毒颗粒的释放7。在 HIV-1 感染中,病毒编码的辅助蛋白 Vpu 被证明可作为 BST2 的拮抗剂。一般认为,Vpu 能下调 HIV-1 感染细胞表面的 BST2 表达——即其发挥锚定功能的部位,从而促进病毒的释放与传播7,尽管这一观点已受到质疑8,9。在缺乏 Vpu 的情况下,大量完整且成熟的子代 HIV-1 病毒颗粒会滞留在细胞表面。这些被锚定的病毒颗粒是否可作为免疫感知的有效靶标,目前仍是一个未解的问题。此外,Vpu 是否可通过调节 pDC 表面 BST2 的表达水平来干扰 I 型干扰素的产生,尚不明确。
早期为评估 HIV-1 感知而设计的研究采用无细胞的 HIV-1 颗粒进行,这类颗粒通常被认为是 I 型干扰素(type-I IFN)的弱诱导剂3,10-12。鉴于近期研究表明,外周血单个核细胞(PBMCs)和浆细胞样树突状细胞(pDCs)能够有效感知 HIV 感染的 CD4+ T 淋巴细胞2,13,14,本文在此描述一种简单的方法,用于体外(in vitro)检测 pDCs 在识别 HIV-1 感染细胞后所触发的天然免疫应答。
方案
一般注意事项
在培养细胞时,必须避免使用任何抗生素,因为即使受控的细菌感染也会被外周血单个核细胞(PBMCs)所感知。这种对细菌组分的感知将诱导产生干扰素背景信号,无法与特异性HIV-1识别所触发的干扰素反应相区分。此外,所有细胞都必须定期检测,以确保无支原体污染。
应尽可能使用无内毒素溶液。
对共培养中使用的不同细胞(PBMC、pDC、MT4 和 CD4+ T 细胞)进行流式细胞术表征是一个可选步骤,但强烈推荐,因为该步骤可提供对特定实验结果进行正确解读所需的宝贵信息。
1. 感染靶细胞的制备
- 在补充了10%胎牛血清(FBS)的RPMI 1640培养基中培养人CD4+ T细胞系MT4,该培养基在下文中简称为RPMI-1640完全培养基。
- 原代CD4+ T细胞的分离。
- 通过密度梯度离心法从人外周血中分离单个核细胞。
- 使用CD4+ T细胞阴性选择试剂盒,按照制造商的说明分离CD4+ T淋巴细胞。
- 用PHA-L(5 µg/ml)激活CD4+ T淋巴细胞48小时,随后将细胞维持在补充了重组IL-2(100 U/ml)的RPMI-1640完全培养基中。在分离后第5天感染原代T细胞。
- 靶细胞(MT4 T细胞系或异源性原代CD4+ T细胞)的感染。
- 在共培养前两天,用HIV-1病毒感染T细胞。在此处描述的具体示例中,使用了pNL4.3-GFP_ires_Nef野生型(WT)或pNL4.3-GFP_ires_Nef ΔVpu(dVpu)病毒。这些病毒株代表携带绿色荧光蛋白(GFP)标记的同源感染性分子克隆,仅在表达Vpu的能力上有所不同。
- 使用不同的感染复数(MOI),并选择感染水平相似的培养物用于共培养。在共培养当天,通过流式细胞术测定GFP+细胞的百分比作为感染的标志。仅使用感染细胞比例在20–50%范围内的培养物进行共培养。
可选步骤:此时可进行流式细胞术染色,以评估目的分子或配体(如 BST2 和 CD4)的表面表达情况。对于细胞表面染色,将 0.5 × 10⁶ 个 T 细胞重悬于 100 µl 洗涤液中,加入 1 µl anti-CD4_PerCP/Cy5.5 和 1 µl anti-BST2_A660。4°C 避光孵育 45 分钟,随后用流式细胞术洗涤液洗涤。若研究旨在评估 Vpu 介导的 BST2 拮抗作用,此时可按照先前所述方法进行 HIV-1 颗粒释放实验15。
2. 感应细胞的分离与富集(全PBMC或富集的pDC)
注意:当外周血单个核细胞(PBMCs)用于检测时,应在采血后半小时内开始分离,并及时进行操作。分离后应立即用于共培养或浆细胞样树突状细胞(pDC)富集。
- 通过密度梯度离心法从人外周血中分离单个核细胞。
可选步骤:进行多参数流式细胞术染色,以确认新鲜分离的外周血单个核细胞(PBMC)包含生理比例下的不同细胞谱系。进行细胞表面染色时,将106 个PBMC重悬于100 µl Fc封闭液中,在4 °C孵育15分钟。封闭后,加入1 µl抗-CD3_Pacific Blue(用于T细胞)、1 µl抗-CD14-PE_Texas Red(用于髓系细胞)、4 µl抗-BDCA2_APC以及1 µl抗-ILT7_PE(用于pDC)。在4 °C孵育45分钟,随后用流式细胞术洗涤液洗涤。 - 使用pDC阴性选择试剂盒富集pDC,按照制造商的推荐操作。建议操作迅速,保持细胞低温,并使用预冷的溶液。这可防止抗体在细胞表面发生帽化、非特异性细胞标记,并确保pDC的最大活性。
- 对新鲜分离的pDC进行多参数流式细胞术分析,以确认其纯度、富集百分比以及pDC特异性表面标志物(如ILT7和BDCA2)的相对含量。进行细胞表面染色时,将104 个pDC重悬于100 µl Fc封闭液中,在4 °C孵育15分钟。封闭后,加入1 µl抗-CD3_Pacific Blue、1 µl抗-CD14_PE_Texas Red、4 µl抗-BDCA2_APC以及1 µl抗-ILT7_PE。在4 °C孵育45分钟,随后用流式细胞术洗涤液(PBS,5 mM EDTA,5% FBS)洗涤。建议pDC纯度至少达到40%(若起始材料中pDC占0.4%,则相当于100倍富集)。
3. 感染的 CD4+ T 细胞与感应细胞(全 PBMC 或富集的 pDC)的共培养
- 在U型底96孔板中,每孔加入220 µl外周血单个核细胞(PBMCs,稀释至850,000个细胞/ml)或220 µl浆细胞样树突状细胞(pDCs,浓度范围为100,000至500,000个细胞/ml),再加入30 µl感染的T细胞(稀释至106 个细胞/ml)。
- 作为对照,单独接种PBMCs或pDCs以及T细胞。用RPMI 1640完全培养基将每孔体积调整至250 µl。
- 检测细胞对TLR7和TLR9通路已知激动剂的反应。为此,在U型底96孔板中每孔接种220 µl PBMCs(稀释至850,000个细胞/ml)或200 µl pDCs(浓度范围为100,000至500,000个细胞/ml),并分别加入TLR7激动剂(Imiquimod,终浓度:2.5 µg/ml)或TLR9激动剂(ODN 2216 CpG-A,终浓度:5 µM)。将细胞在37 °C、5% CO2条件下孵育18–22小时,后续处理方式与下文所述共培养实验类似。
- 将共培养体系在37 °C、5% CO2条件下孵育18–22小时,随后转移至V型底96孔板,以400 × g离心5分钟。
- 将上清液转移至平底96孔板。上清液可立即用于I型干扰素(type-I IFN)检测,或保存于-80 °C。
- 用2%多聚甲醛重悬共培养细胞,并通过流式细胞术进行分析。由于大小和颗粒度的差异,MT4细胞可根据其侧向散射(SS)与前向散射(FS)图谱与PBMCs或pDCs明显区分。若使用原代T细胞作为感染靶细胞,则可在共培养前用细胞示踪染料(如CFSE)对其进行标记。
- 使用HEK-Blue IFN-α/β报告细胞检测具有生物活性的I型干扰素(type-I IFN)。
注意:这些细胞系是通过将人STAT2和IRF9基因稳定转染至HEK293细胞中构建而成,从而获得完整的I型干扰素信号通路。此外,细胞中还含有由IFN-α/β可诱导的ISG54启动子调控的分泌型碱性磷酸酶(SEAP)报告基因。当I型干扰素刺激这些细胞时,可激活JAK/STAT/ISGF3通路,进而诱导SEAP的表达。- 将HEK-Blue IFN-α/β细胞维持在含10%胎牛血清(FBS)的DMEM培养基中。以每孔50,000个细胞的密度接种于平底96孔板中,终体积为180 µl。
- 每孔加入20 µl共培养上清液,设复孔。每块板还需设置一组内参标准对照(人IFNα,终浓度范围为100 U/ml至2,500 U/ml)。将板置于37 °C、5% CO2条件下孵育18–22小时。
- 使用QUANTI-Blue溶液检测碱性磷酸酶活性,该溶液在酶存在时由粉红色变为紫色/蓝色。按照生产商推荐方法配制QUANTI-Blue溶液。向平底96孔板每孔加入180 µl该溶液,再向每孔加入20 µl诱导后的HEK-Blue IFN-α/β细胞上清液,将板置于37 °C培养箱中孵育,直至标准IFN对照孔出现明显显色。
- 使用分光光度计在620–655 nm波长下测定SEAP水平,并根据IFN标准曲线的线性部分外推计算I型干扰素的浓度。
结果
所述共培养系统 图1 可对HIV-1的天然感应进行可控研究。由于原代细胞具有变异性,保持髓系细胞与T细胞(CD14+ 和 CD3+ 分别观察到,例如下图所示示例中的情况 图2A此外,新鲜分离的PBMC培养物中仅需含有少量活化的T细胞(与未活化的T细胞相比,具有较高的FS和较高的CD3水平)。各类细胞比例异常的PBMC往往无法产生适当的天然免疫应答。 体外,可能是由于正在进行的感染导致其表型已处于活化状态。最重要的是,需要评估 pDCs 的相对百分比,如图所示。 图 2B尽管该百分比可在0.2%至1.2%之间变动,但在此范围的两个极端情况下均会观察到异常的感知表型。采用阴性筛选法富集pDC时,通常可获得50–95%的pDC纯度,如下文两个实例所示。 图2B (92% 和 72%)。整个实验的典型示例如图所示 图3 和 4在此示例中,MT4细胞被pNL4.3-GFP_ires_Nef WT或delta Vpu感染,以在共培养时达到30%的感染率(图3A)。如先前所述,仅野生型病毒的感染导致表面 BST2 显著下调(图3B)。由于MT4细胞与外周血单个核细胞(PBMCs)在大小和颗粒度上存在差异,因此可通过流式细胞术轻松区分两者。图 4A)。共培养孵育后,仅有与已知TLR7或TLR9激动剂接触的PBMCs以及与HIV-1感染细胞接触的PBMCs释放了显著水平的I型干扰素(图 4B)。在单独的PBMCs、与模拟感染的MT4细胞共培养的PBMCs,或单独的感染性MT4细胞中均未检测到干扰素(IFN)。图 4B在此示例中,外周血单个核细胞(PBMCs)对HIV-1感染的MT4细胞的天然感知在Vpu存在时显著降低。
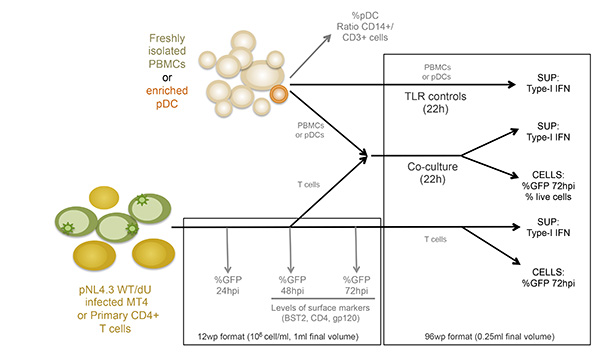
图 1:实验设计的示意图概述。SUP:上清液 点击此处查看大图。
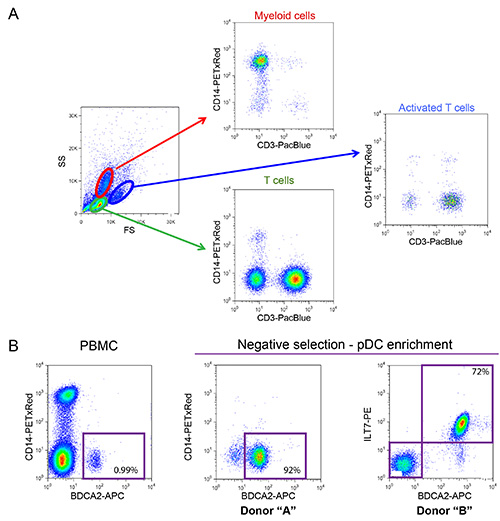
图2:新鲜分离的PBMCs及富集后pDCs的表型鉴定。(A)从健康供者分离的PBMCs中观察到髓系细胞与T细胞的正常分布(髓系细胞比例应在10–20%之间,T细胞比例在55–65%之间)。PBMC样本使用荧光标记抗体染色,抗体分别识别表面标志CD14(髓系谱系标志)和CD3(T细胞标志)。(B)pDCs的表型鉴定。在富集前,pDCs占PBMCs总细胞数的0.2–1.2%(图中示例为0.99%)。这些细胞可根据其表面特异性标志物(如BDCA2和ILT7)的表达进行鉴定。可通过阴性筛选显著富集pDCs数量,并去除潜在有害的污染细胞,例如CD14+髓系细胞(图中两个示例的富集率分别达到92%和72%)。点击此处查看大图。
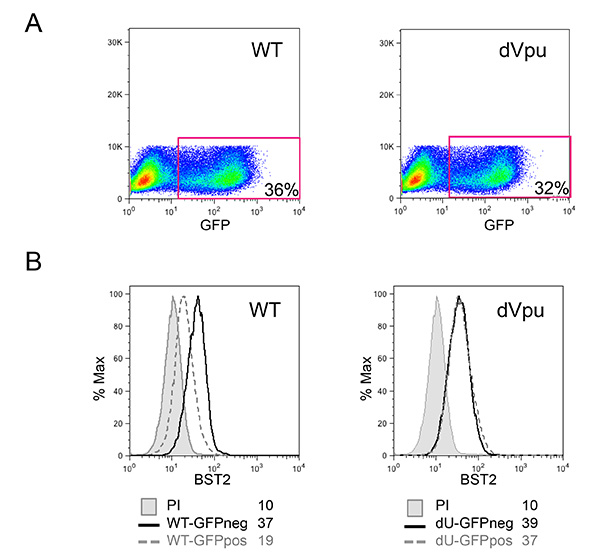
图3:HIV-1感染的靶向MT4细胞的表征。(A)通过GFP阳性细胞百分比确定感染pNL4.3-GFP_ires_Nef WT或dVpu的MT4细胞培养物中被感染细胞的百分比。(B)感染细胞表面BST2的表达水平通过表面染色进行评估。灰色填充的直方图代表用正常兔血清(未染色对照)染色的模拟感染细胞;其余直方图代表用抗BST2多克隆兔血清染色的细胞。实线直方图代表GFP阴性(neg)对照细胞;虚线直方图对应GFP阳性(pos)感染细胞。每个样本的平均荧光强度(MFI)值已在图中标注。流式细胞术的操作与分析方法如图2所述。点击此处查看高清大图。
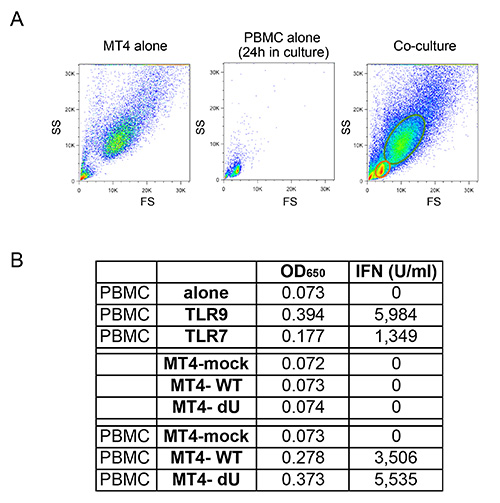
图 4:新鲜分离的PBMCs与感染的MT4 T细胞的共培养。(A)单独MT4 T细胞、单独PBMCs,以及PBMCs与MT4 T细胞共培养时流式细胞术FS/SS图谱的比较。由于大小和颗粒度的差异,MT4 T细胞在共培养体系中可通过流式细胞术与PBMCs明确区分。(B)PBMCs经TLR7或TLR9激动剂(ago)刺激,或与模拟感染(mock)及指定的感染了pNL4.3-GFP_ires_Nef WT或dVpu的MT4细胞共培养后,I型干扰素(type-I IFN)释放量的代表性结果。原始数据以OD650值表示,并转换为以U/ml表示的I型干扰素浓度。点击此处查看高清图像。
讨论
本文所述方案用于检测感染了GFP标记的HIV-1病毒的T细胞的感知能力,这些病毒仅在表达Vpu的能力上有所不同,如我们近期报告中所述18。然而,这些方法可轻松修改,以研究未标记病毒或其他缺失可能调节天然免疫感知的病毒基因的病毒的感知情况。如果所用病毒不表达GFP,则应在共培养前通过其他方法确定感染靶细胞的百分比,例如通过p24(衣壳蛋白)胞内染色结合流式细胞术,或通过p24 ELISA检测。此外,这些方案可适用于不同类型的靶T细胞,包括多种可获得的细胞系和原代细胞。
与早期用于研究 HIV-1 感知的方法相比,本论文所述方法具有多项优势。首先,已有多个研究团队证实,游离的 HIV-1 颗粒诱导 I 型干扰素(type-I IFN)的能力较弱2,13,14。此外,早期研究依赖于较老的基于 ELISA 的 IFNα 检测方法来定量产生的 I 型干扰素量。该检测技术的一个局限性在于,大多数早期的 IFNα ELISA 试剂盒仅能检测一种类型的 IFNα,而忽略了其他类型的 IFNα 和 IFNβ。使用本文所述的报告细胞系可克服这一局限,因为所有具有生物活性的人源 I 型干扰素的浓度均可被一次性测定。该技术灵敏度高,成本低于新一代 IFN ELISA 试剂盒,并且对于许多供体样本,可轻松检测到大量 I 型干扰素。尽管如此,本方案也可便捷地适配于其他 I 型干扰素检测方法,例如 ELISA。
关键步骤:必须严格控制所有细胞组分(包括靶细胞和效应细胞)的质量。需要监测并控制潜在的污染,即使没有明显症状。如我们此前所述,由抗生素控制的无症状细菌污染,以及可能存在的其他胞内病原体(如支原体),均可引发类似于HIV-1感染后所观察到的免疫反应,即I型干扰素(type-I IFN)的产生。此外,所有试剂必须不含脂多糖(LPS)或其他潜在的内毒素。同样,对外周血单个核细胞(PBMCs)和浆细胞样树突状细胞(pDCs)的监测也十分重要,因为人体样本可能因潜在的持续性感染而处于预激活状态,从而影响正常的感知功能。我们建议始终设置推荐的阴性对照,例如不加靶细胞的对照组,以及与模拟感染细胞共培养的对照组。感染细胞的存活状态对于pDC的正常感知也至关重要,因为与凋亡细胞共培养时不会诱导I型干扰素的产生2,14。
该技术的一个重要局限性在于需要使用 freshly isolated primary cells(新鲜分离的原代细胞)。本实验未测试使用先前冻存或长期培养的 PBMCs 或 pDCs 的情况。PBMCs 的分离过程劳动强度大,且这些细胞的存活时间非常有限。此外,在处理人血时应采用标准的防止血液传播病原体的防护措施。使用新鲜分离的人源细胞进行实验时常存在多种变异来源,其中包括分离细胞所采用的不同实验流程,以及供体间固有的个体差异。尽管无法避免供体之间的差异,但使用建议的阳性对照(例如检测 TLR7 和 TLR9 通路已知激动剂的反应)可为这些实验提供重要的内部对照。我们观察到,TLR9 通路对激动剂的强烈反应与 pDC 的健康反应相关,而有效的 HIV-1 应答则需要 TLR7 通路具有反应性3。
根据我们及其他研究者的观察2,通常无需从外周血单个核细胞(PBMCs)中富集浆细胞样树突状细胞(pDCs)。然而,若实验设计有特殊需求(例如需要耗竭特定pDC表面标志物),则优先采用阴性筛选而非阳性筛选,因为在筛选过程结束后,细胞不会残留抗体。分离后的pDCs在体外培养中会迅速发生凋亡。对于需要长期培养这些细胞的实验,可在培养基中添加IL-3。该细胞因子可促进pDC增殖并抑制其凋亡16。然而,IL-3的使用必须严格控制,因其可能诱导pDC成熟或分化。
本文所述方法通过将靶向的 HIV-1 感染细胞与新分离的外周血单个核细胞(PBMC)或浆细胞样树突状细胞(pDC)共同培养,以重建天然免疫识别过程的初始步骤。该方法无疑将有助于探索与 HIV 感染相关的早期天然免疫事件。尽管相关实验方案旨在检测 I 型干扰素(IFN),但其可轻松修改以检测 pDC 在识别感染细胞后释放的其他生物活性分子,包括:III 型干扰素(IFN-λ)、促炎性细胞因子(如 TNF-α 和 IL-6)以及趋化因子 CXCL10、CCL4 和 CCL517。
致谢
我们感谢 E. Massicotte 和 J. Lord 在流式细胞术和细胞分选实验中提供的专业技术支持。同时,我们还要感谢 IRCM 诊所的工作人员以及所有献血者提供血液样本。外周血样本来自健康成年献血者,所有献血者均按照蒙特利尔临床研究所(IRCM)研究伦理审查委员会批准的研究方案,根据《赫尔辛基宣言》签署书面知情同意书。以下试剂由美国国立卫生研究院(NIH)艾滋病试剂项目、艾滋病研究部(NIAID,NIH)提供:来自 Douglas Richman 博士的 MT4 细胞;以及来自 Hoffmann - La Roche Inc. 的 Maurice Gately 博士提供的人重组 IL-2(Human rIL-2)。
科恩博士是加拿大人类逆转录病毒学研究主席的获得者。本研究得到了加拿大卫生研究院(CIHR 111226)向科恩博士提供的资助,以及魁北克健康研究基金会(FRQ-S)艾滋病研究网络向贝戈博士和科恩博士提供的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| MT4 细胞 | NIH 艾滋病试剂计划 | 120 | 该试剂通过 NIH 艾滋病试剂计划、艾滋病部、NIAID、NIH 获得:由 Douglas Richman 博士提供 MT-4 细胞。 |
| HEK-Blu IFN-α/β 报告细胞 | Invivogen | HKB-IFNAB | |
| RPMI | Wisent | 350-000-CL | |
| DMEM | Wisent | 319-005-CL | |
| FBS | Wisent | 080-150 | |
| Ficoll-Pâque Plus | Myltenyi | 17-1440-03 | |
| CD4+ T 细胞分离试剂盒 II | Myltenyi | 130-091-155 | |
| Diamond 浆细胞样树突状细胞分离试剂盒 II | Myltenyi | 130-097-240 | |
| PHA-L | Sigma-Aldrich | O2769 | |
| 人重组 IL-2 | NIH 艾滋病试剂计划 | 136 | 该试剂通过 NIH 艾滋病试剂计划、艾滋病部、NIAID、NIH 获得:由 Hoffmann - La Roche Inc. 的 Maurice Gately 博士提供人重组 IL-2。 |
| 咪喹莫特 | Invivogen | TLRL-IMQS | |
| ODN 2216 CpG-A | Hycult Biotec | HC4037 | |
| 人 IFNα | PBL 干扰素来源 | 11100-1 | |
| QUANTI-Blue | Cedarlane | REP-QB2 | |
| 流式细胞术(抗体/试剂) | |||
| Fc 封闭液(配方如下): | 注:用洗涤液(PBS,5 mM EDTA,5% FBS)配制 | ||
| 10% 山羊血清 | Sigma-Aldrich | G 9023 | |
| 10% 兔血清 | Sigma-Aldrich | R 9133 | |
| 10% 小鼠血清 | Sigma-Aldrich | M 5909 | |
| 2.5 mg/ml 人 IgG | Sigma-Aldrich | I 4506 | |
| 抗 CD3_Pacific Blue | Biolegend | 300417 | |
| 抗 CD14_PE-TxRed | Life Technologie | MHCD1417 | |
| 抗 BDCA2_APC | Myltenyi | 130-090-905 | |
| 抗 ILT7_PE | Biolegend | 326408 | |
| 抗 CD4_PerCP/Cy5.5 | Biolegend | 317427 | |
| 抗 BST2_Alexa 660 | eBioscience | 50-3179 | |
| 多聚甲醛 | Sigma-Aldrich | P 6148 | |
| 细胞筛 | BD Falcon | 352340 | |
| Cyan ADP 仪器 | Beckman Coulter | CY20030 |
参考文献
- Colonna, M., Trinchieri, G., Liu, Y. J. Plasmacytoid dendritic cells in immunity. Nature immunology. 5, 1219-1226 (2004).
- Lepelley, A., et al. Innate sensing of HIV-infected cells. PLoS pathogens. 7, e1001284(2011).
- Beignon, A. S., et al. Endocytosis of HIV-1 activates plasmacytoid dendritic cells via Toll-like receptor-viral RNA interactions. The Journal of clinical investigation. 115, 3265-3275 (2005).
- Martinelli, E., et al. HIV-1 gp120 inhibits TLR9-mediated activation and IFN-{alpha} secretion in plasmacytoid dendritic cells. Proceedings of the National Academy of Sciences of the United States of America. 104, 3396-3401 (2007).
- Cao, W., et al. Regulation of TLR7/9 responses in plasmacytoid dendritic cells by BST2 and ILT7 receptor interaction. The Journal of experimental medicine. 206, 1603-1614 (2009).
- Bego, M. G., Mercier, J., Cohen, E. A. Virus-activated interferon regulatory factor 7 upregulates expression of the interferon-regulated BST2 gene independently of interferon signaling. Journal of virology. 86, 3513-3527 (2012).
- Neil, S. J., Zang, T., Bieniasz, P. D. Tetherin inhibits retrovirus release and is antagonized by HIV-1 Vpu. Nature. 451, 425-430 (2008).
- Miyagi, E., Andrew, A. J., Kao, S., Strebel, K. Vpu enhances HIV-1 virus release in the absence of Bst-2 cell surface down-modulation and intracellular depletion. Proceedings of the National Academy of Sciences of the United States of America. 106, 2868-2873 (2009).
- McNatt, M. W., Zang, T., Bieniasz, P. D. Vpu binds directly to tetherin and displaces it from nascent virions. PLoS pathogens. 9, e1003299(2013).
- Manel, N., et al. A cryptic sensor for HIV-1 activates antiviral innate immunity in dendritic cells. Nature. 467, 214-217 (2010).
- Yan, N., Regalado-Magdos, A. D., Stiggelbout, B., Lee-Kirsch, M. A., Lieberman, J. The cytosolic exonuclease TREX1 inhibits the innate immune response to human immunodeficiency virus type 1. Nature immunology. 11, 1005-1013 (2010).
- Fonteneau, J. F., et al. Human immunodeficiency virus type 1 activates plasmacytoid dendritic cells and concomitantly induces the bystander maturation of myeloid dendritic cells. Journal of virology. 78, 5223-5232 (2004).
- Ankel, H., Capobianchi, M. R., Frezza, F., Castilletti, C., Dianzani, F. Interferon induction by HIV-1-infected cells: a possible role of sulfatides or related glycolipids. Virology. 221, 113-119 (1996).
- Schmidt, B., Ashlock, B. M., Foster, H., Fujimura, S. H., Levy, J. A. HIV-infected cells are major inducers of plasmacytoid dendritic cell interferon production, maturation, and migration. Virology. 343, 256-266 (2005).
- Bego, M. G., Dube, M., Mercier, J., Cohen, E. A. Effect of calcium-modulating cyclophilin ligand on human immunodeficiency virus type 1 particle release and cell surface expression of tetherin. Journal of virology. 83, 13032-13036 (2009).
- Grouard, G., et al. The enigmatic plasmacytoid T cells develop into dendritic cells with interleukin (IL)-3 and CD40-ligand. The Journal of experimental medicine. 185, 1101-1111 (1997).
- Fitzgerald-Bocarsly, P., Jacobs, E. S. Plasmacytoid dendritic cells in HIV infection: striking a delicate balance. Journal of leukocyte biology. 87, 609-620 (2010).
- Bego MG,, Côté, É, Aschman, N., Mercier, J., Weissenhorn, W. Cohen ÉA. Exploits the Cross-Talk between BST2 and the ILT7 Receptor to Suppress Anti-HIV-1 Responses by Plasmacytoid Dendritic Cells. PLoS Pathog. 11 (7), e1005024(2015).
重印与许可
