本方案描述了对黑腹果蝇(Drosophila)唇瓣味觉神经元动作电位反应进行的细胞外记录。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
利用电生理技术可以深入研究昆虫的外周味觉反应。本文所述方法可使研究人员直接且定量地测量昆虫对味觉刺激的响应,从而反映昆虫神经系统从环境中味觉刺激所接收到的感觉输入。本实验方案详细阐述了实施该技术的全部关键步骤。文中明确了电生理记录装置组装过程中的关键环节,例如必要设备的选择以及适宜记录环境的设置。我们还介绍了如何制备合适的参考电极和记录电极,以及味觉刺激物溶液,以完成记录前的准备工作。我们详细描述了昆虫样本的制备方法,包括将玻璃参考电极插入果蝇体内以固定其喙部的操作步骤。文中展示了味觉神经元在受到糖类和苦味化合物刺激后所产生的电信号轨迹。该实验方案的部分操作具有较高的技术难度,因此我们提供了对一些常见技术问题的详尽说明,例如系统中信号缺失或噪声过强等问题,并提出了可能的解决方案。该技术存在一定的局限性,例如难以施加时间上复杂的刺激、无法在刺激呈现前立即观察到背景放电活动,或难以方便地使用水不溶性味觉化合物。尽管如此,该技术(包括本方案中提及的一些小的变体)仍是记录黑腹果蝇(Drosophila)神经元对味觉化合物响应的标准且广泛接受的实验方法。
引言
味觉使昆虫能够检测大量可溶性化学物质,在识别营养物质或拒绝有害或有毒物质方面发挥着重要作用。味觉还被认为通过信息素的检测在配偶选择中发挥作用1-5。这些重要而多样的功能使得昆虫味觉系统成为研究感觉系统如何将环境线索转化为相应行为输出的一个极具吸引力的研究对象。
基本单位 黑腹果蝇 味觉系统的味觉毛或感觉器。分子通过感觉器顶端的小孔进入感觉器2,6. 感觉器分布于唇瓣、足、翅缘和咽部6. 唇瓣上的感器数量和位置具有固定模式。根据长度,感器可分为三种形态类型:长型(L)、中等型(I)和短型(S)感器7,8每个感受器含有两个(I型)或四个(L型和S型)味觉感受神经元(GRNs)9不同的味觉受体神经元(GRNs)对不同类别的味觉刺激产生反应:苦味、糖、盐和渗透压7,10 并表达不同亚群的味觉受体8,11-13只有I型和S型感器含有对苦味有反应的味觉感受神经元8,10味觉受体神经元(GRNs)投射至食道下神经节(SOG),其被味觉分子激活的信号被传递至更高级的中枢神经系统进行解码,从而引发行为反应。6神经元数量相对较少,且易于进行分子和行为学分析,这使得 黑腹果蝇 味觉系统是研究一般性味觉系统的理想模型。通过基因突变或GAL4-UAS表达系统对该系统进行操作的相对简便性,也使其成为一项重要的研究工具14,15.
由于这些感受器突出于唇瓣表面,因此非常适合作为电生理学研究的理想靶点。可通过细胞外记录来监测味觉受体神经元(GRNs)的放电活动。传统上采用侧壁记录法,即通过将玻璃电极插入感受器内以记录神经元活性26。然而,该方法技术难度较高,且难以对每一份样本进行长时间记录。随后,尖端记录法逐渐成为首选方法9,16,该方法使用一个电极同时递送味觉刺激物并测量神经元的反应。该技术已被广泛用于研究黑腹果蝇(Drosophila melanogaster)8,10,17,18以及其他多种昆虫物种的味觉系统19-23。味觉放大器(tastePROBE amplifier)的开发极大推动了该技术的应用,该设备通过补偿参考电极与昆虫感受器之间较大的电位差,克服了尖端记录法的主要技术障碍,使得GRN的动作电位无需过度放大或滤波即可被准确记录24。另一项重要进展是使用三乙醇胺柠檬酸盐(tricholine citrate)作为记录电解质25。TCC可抑制对渗透压敏感的GRN反应,且不会激活对盐敏感的GRN,从而显著简化了苦味和糖类味觉刺激物所引发反应的分析过程25。
在此我们描述如何进行尖端记录 果蝇 唇瓣感器的电生理记录目前在Carlson实验室中进行。本实验方案将介绍如何搭建合适的电生理记录装置、如何准备果蝇样本以及如何开展味觉记录。我们还展示了一些通过记录特定亚群感器所获得的代表性数据 黑腹果蝇 感受器,以及使用该技术时可能遇到的一些常见问题和潜在解决方案。
访问受限。请登录或开始试用以查看此内容。
方案
以下方案符合耶鲁大学的所有动物护理指南。
1. 试剂与仪器准备
- 记录设备设置(图1A)。
- 选择一个用于搭建实验装置的房间,该房间应避免温度和湿度的大幅波动,并远离冰箱和离心机等电噪声和机械噪声源。
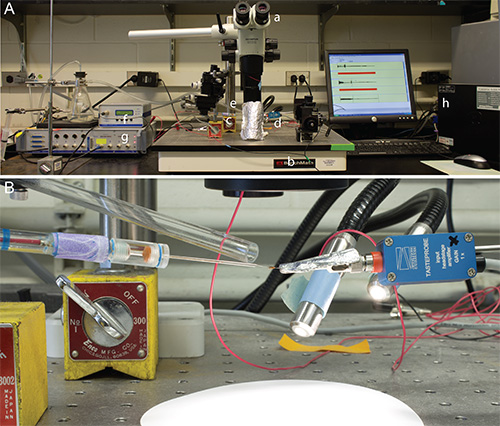
图1. (A)记录装置的总体布局。体视显微镜(a)安装在防震平台(b)上。 参比电极夹(c)通过显微操作器安装在与头级(d)相对的平台上。一根输送加湿气流至果蝇标本的出口塑料管(e)也安装在平台上。头级连接至放大器(f),放大器连接至数字采集系统(DAS)(g),DAS再连接至计算机(h)。(B)电极与出口管的配置:左侧为参比电极,右侧为记录电极,气流出口管朝向果蝇标本。 点击此处查看大图。 - 将体视显微镜安装在防震台或平台的中央位置。
- 使用磁性支架,将用于固定参比电极/昆虫标本和头级/记录电极的显微操作器分别安装在显微镜的左侧和右侧。
- 将出口塑料管安装在显微镜后方第三个显微操作器上,调整方向使管口对准果蝇标本的位置(见图1B)。
- 使用柔性塑料管将出口塑料管连接至一个部分装水的真空瓶。连接小型水族泵,使空气通过瓶中的水产生气泡,从而在出口塑料管中形成加湿气流并吹向果蝇标本。
- 将光纤光源安装在防震台之外,调整其输出方向,使光线通过位于标本正下方的白色卡片纸反射后照射标本。确保光源不直接接触防震台。注意:将光源通过纸片反射具有双重优势:一是提高对比度,使感受器更易于观察;二是避免直射光对标本造成加热。
- 根据供应商手册,将tastePROBE放大器插入数字采集系统(DAS),并将DAS连接至个人计算机。插入脚踏开关并布置于工作区下方。注意:为放大器和DAS提供电隔离的电源插座是理想选择。
- 使用鳄鱼夹、绝缘电线和电工胶带将显微镜、显微操作器和光源的金属部件连接至防震台以实现电气接地。通过连接至建筑物接地或已通过电源插头接地的DAS,实现金属平台的电气接地。
- 在个人计算机上安装适用于所选DAS的采集软件。注意:确保数字采集驱动程序与计算机的操作系统兼容。
- 设置软件中的信号放大倍数(10–100倍)、信号滤波(通常采用100 Hz–3,000 Hz的贝塞尔带通滤波器)和采样率(至少10 kHz)。注意:味觉神经元的信号幅度通常在0.5–2 mV范围内,因此应设置合适的显示比例以便观察。注意:100 Hz滤波有助于排除外部电噪声,但会改变峰电位的形状,可能增加高级峰电位分类的难度。也可选用1 Hz滤波器。
- 可选地,可在整个防震台周围设置法拉第笼。然而,通常使用小片铝箔即可有效降低外部环境或操作者引入的噪声。
- 选择一个用于搭建实验装置的房间,该房间应避免温度和湿度的大幅波动,并远离冰箱和离心机等电噪声和机械噪声源。
- 玻璃电极制备

图2. 参比电极与记录电极。 放大后的玻璃毛细管照片,显示拉制后的参比电极(A为尖端断裂,B为未断裂)和记录电极(C)。白色标尺代表2 mm。 点击此处查看大图。- 使用拉针仪从玻璃毛细管拉制参比电极。注意:不同拉针仪的程序设置各不相同。应尽量获得非常长且平缓的锥形过渡。由于电极尖端将在果蝇标本制备前被打断(图2A和2B),因此尖端孔径并不关键;但需确保电极锥形部分的直径既不过细(否则无法有效固定唇瓣),也不过粗(否则可能损伤味觉神经元或导致唾液腺破裂)。
- 使用含丝硼硅酸盐玻璃毛细管,通过拉针仪拉制记录电极。应使锥形过渡比参比电极更平缓,尖端孔径约为10–15 μm(图2C)28。
- 味刺激溶液制备
- 使用Beadle-Ephrussi任氏液(B&E)作为参比电极的电解质。配制1升B&E溶液:将7.5 g NaCl、0.35 g KCl和0.279 g CaCl2∙2H2O溶解于1升超纯水中。分装后于-20 °C保存。
- 若需测量苦味或糖类味觉受体神经元(GRN)的反应,使用30 mM三氯化胆碱柠檬酸盐溶液(TCC)作为记录电极的电解质及味刺激溶液的溶剂25。若需测量水敏细胞的反应,则可使用1–3 mM氯化钾溶液。
- 配制味刺激溶液时,称取适量粉末状味刺激物,加入TCC中配制成初始储备液。以此储备液进行系列稀释,获得所需测试浓度。注意:若味刺激物在水中不易溶解,可使用乙醇等其他溶剂配制初始储备液。此时应使用不含味刺激物的TCC加溶剂作为对照溶液。
- 长期保存时分装于-20 °C。根据味刺激物的化学性质,将一份工作浓度溶液于4 °C保存,可用于记录实验最多一周。
2. Drosophila 准备

图3. 记录前果蝇的准备。 (A)参考电极插入果蝇背部胸部的位置。白色箭头指示参考电极。(B)参考电极的中间位置:电极已穿过颈部和头部,但喙尚未完全伸出。(C,D)参考电极处于最终位置的果蝇,电极尖端位于喙盘内,且喙完全伸出。点击此处查看高清图像。
- 从在温湿度受控条件下良好培养的果蝇种群中收集新羽化的果蝇,并在新鲜的培养小瓶中饲养5-10天后再进行记录。
- 在准备果蝇前,将显微镜载片置于冰上冷却15-30分钟。
- 使用直径为0.5 mm的细长塑料针(如脊椎穿刺针)和1 ml注射器,用B&E溶液填充玻璃参比电极,并轻轻敲击以去除任何气泡。用镊子折断电极尖端一小部分,并在解剖显微镜下观察,利用毛细作用将剩余气泡用纸巾吸出。
- 将装有B&E溶液的参比电极小心滑入参比电极持针器的金属丝上,注意避免引入气泡。
- 使用由 tubing、mesh 和 pipette tip 制成的果蝇吸取器,将果蝇吸入P200移液枪头中29;将其放入冰桶中冷却30-60秒。
- 将显微镜载片从冰上取出,擦去表面水分,置于显微镜下。轻轻敲击移液枪头,使果蝇落入载片上。
注意:果蝇应被充分固定,以便于操作。 - 在低倍镜下,用一对镊子轻轻移除前足,同时用另一对镊子固定胸部。将果蝇腹面朝下、背面朝上放置。注意:在整个制备过程中,务必始终避免镊子接触唇瓣,以尽量减少机械损伤。
- 用一对镊子固定果蝇位置,将参比电极插入背部后胸中线处。建议进针角度约为45度,方向朝向头部(图3A)。
- 用塑性黏土固定参比电极持针器,使果蝇在高倍显微镜下清晰可见。通过两对镊子推动果蝇向参比电极持针器方向滑动,从而调整玻璃电极穿过颈部和头部的角度与位置。注意:操作应迅速而平稳;在果蝇仍处于低温导致的麻痹状态时完成此步骤更为容易(图3B)。
- 用一对镊子轻轻拉伸喙部,同时继续将果蝇沿玻璃参比电极向下滑动,直至电极尖端进入唇瓣内部且喙部完全伸展(图3C和图3D)。注意:操作时需格外小心,避免参比电极刺破喙部组织或撑开唇瓣边缘,以免损伤果蝇和/或味觉神经元,影响记录质量。
3. 唇瓣感器的记录

图 4. 果蝇记录实验。 (A)左侧为果蝇唇瓣制备样本,右侧为记录电极对准接触位置,高倍放大下观察。 (B)记录电极与唇瓣上单个感觉毛接触,高倍放大下观察。 点击此处查看高清图像。
- 在记录过程中触碰任何设备之前,请务必通过触摸防震台或平台的金属表面使自己接地!注意:切勿将静电传递到前置放大器上,否则可能损坏电路。
- 将参考电极架固定在记录装置气浮台上的显微操作器上。将唇瓣的一个叶置于显微镜视野中,在高倍镜下(通常至少140倍),并与加湿气流对齐。
- 打开加湿气流、计算机、数据采集系统(DAS)和放大器。启动数据采集软件。
- 用目标味觉刺激物冲洗并填充玻璃记录电极。
- 使用注射器和塑料管将超纯水抽吸通过玻璃管至少十次,每次少量,以冲洗玻璃记录电极28。
- 用味觉刺激物至少冲洗记录电极五次。将味觉刺激物填充至电极约三分之一到一半体积,然后从管路中取下。如有气泡,轻敲释放或重新填充电极。
- 迅速而平稳地将电极滑入前置放大器的银丝上,避免引入气泡。
- 使用装有味觉刺激物的记录电极刺激单个感器。
- 使用显微操作器将记录电极与目标感器对齐。
- 踩下脚踏开关以启动放大器的采集模式。
- 使用显微操作器的微调旋钮小心推进记录电极,直至其与感器尖端接触并开始记录。
- 1–2秒后移开电极。
- 如需,可对其他感器重复步骤3.5。注意:同一感器两次刺激之间至少需间隔1分钟。若长时间使用单一味觉刺激物进行记录,溶液可能干燥,导致电极尖端溶液浓度升高。可通过将玻璃电极尖端轻轻接触光滑纸张,利用毛细作用去除少量液体来缓解此问题。
- 如需记录对另一种味觉刺激物的反应,请冲洗并更换记录电极中的刺激物,然后重复步骤3.4。注意:在不同味觉刺激物之间彻底冲洗电极至关重要,以避免交叉污染。
- 定期保存带有标识信息(如日期、基因型和味觉刺激物)的数据文件。注意:在记录过程中,为便于后续数据分析,必须书面记录每次刺激所使用的味觉刺激物及感器的身份信息。
访问受限。请登录或开始试用以查看此内容。
结果
图5A 显示了L型感器对糖类物质蔗糖的反应。同一感器对苦味化合物小檗碱无反应。图5B 显示,含有对苦味敏感神经元的I型感器在响应小檗碱时产生较大振幅的动作电位,而在响应蔗糖时产生较小振幅的动作电位。L型感器对溶剂对照TCC仅有微弱的基础反应,而I型感器对TCC几乎无反应(图5)。有关唇瓣味觉受体神经元(GRNs)对盐和水反应的更多信息,请参见Hiroi10。

访问受限。请登录或开始试用以查看此内容。
讨论
由于形态和解剖结构的差异,唇瓣上的感器在记录信号的难易程度上有所不同。有时某个感器对任何味觉刺激物均无反应,即使该刺激物已知可引发阳性反应。这种情况的发生频率因感器类型而异。L型感器的反应通常最为稳定,且因其长度较长而相对容易接触。一般来说,S型感器的反应也较稳定,但由于其较短的长度以及在唇瓣上的位置,实现良好接触较为困难。I型感器的接触难易程度取决于制备样本的角度,可能较易接近,但其无反应的情况更为常见。在任意一只果蝇的制备样本中,I型感器无反应的比例可能高于L型或S型感器。遗传背景也会影响味觉反应的稳定性。例如,某些转基因果蝇的反应稳定性可能低于野生型,推测原因是转基因影响了果蝇的整体健康状况。我们观察到,w-突变型果蝇尤其难以进行有效记录。
一个常见的技术问题是信号缺失,即 未观察到任何峰电位(图6A)。首先,有时某个特定的感器可能无反应,而同一只果蝇上属于同一类别的其他感器却可能有反应。其次,记录电极或参考电极中可能存在气泡。如果怀疑是记录电极的问题,可通过简单地取出并重新填充玻璃电极,轻轻...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了NRSA博士前资助1F31DC012985(授予R.D.)以及美国国立卫生研究院(NIH)对J.C.的资助。
我们感谢林内亚·韦斯博士(Dr. Linnea Weiss)对文稿提出的有益意见,感谢瑞安·约瑟夫博士(Dr. Ryan Joseph )在图表整理方面提供的帮助,以及弗雷德里克·马里昂-波尔博士(Dr. Frederic Marion-Poll)提供的宝贵技术建议。同时,我们还要感谢四位审稿人所提出的建设性意见。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 体视变焦显微镜 | Olympus | SZX12 DFPLFL1.6x PF 目镜:WHN10x-H/22 | 配备长工作距离台式支架,可实现约 150 倍放大 |
| 防震台 | Kinetic Systems | BenchMate2210 | |
| 微操纵器 | Narishige | NMN-21 | |
| 磁力支架 | ENCO | 型号 #625-0930 | |
| 参比电极夹 | Harvard Apparatus | ESP/W-F10N | 可安装在 5 ml 移液管上以扩展操作范围 |
| 银丝 | World Precision Instruments | AGW1510 | 直径 0.3–0.5 mm |
| 铁架台 | 通用型 | ||
| 出液塑料管 | 通用型,直径 1 cm | ||
| 柔性塑料管 | Nalgene | 8000-0060 | VI 级,内径 1/4 英寸 |
| 500 ml 锥形瓶 | 通用型,带侧臂 | ||
| 水族泵 | Aquatic Gardens | Airpump 2000 | |
| 光纤光源 | Dolan-Jenner Industries | Fiber-Lite 2100 | |
| 白色卡片/纸 | Whatman | 1001-110 | |
| 数字采集系统 | Syntech | IDAC-4 | 替代方案:National Instruments NI-6251 |
| 前置放大器 | Syntech | DTP-1 | 味觉探针 |
| 味觉探针放大器 | Syntech | DTP-1 | 味觉探针 |
| 鳄鱼夹 | Grainger | 1XWN7 | 任何品牌均可 |
| 绝缘电线 | 通用型 | ||
| 金连接针 | World Precision Instruments | 5482 | |
| 个人计算机 | Dell | Vostro | 需确认与数字采集系统及软件的兼容性 |
| 采集软件 | Syntech | Autospike | Autospike 适用于 IDAC-4;也可使用 LabView 配合 NI-6251 |
| 铝箔和/或法拉第笼 | 用于电磁噪声屏蔽 | ||
| 硼硅酸盐玻璃毛细管 | World Precision Instruments | 1B100F-4 | |
| 拉针仪 | Sutter Instrument Company | Model P-87 Flaming/Brown 微量移液管拉针仪 | |
| Beadle 和 Ephrussi 林格液 | 参见实验方案部分的配方 | ||
| 三氯柠檬酸,65% | Sigma | T0252-100G | |
| 体视显微镜 | Olympus | VMZ 1x–4x | 可实现 10–40 倍放大 |
| 冰桶 | 通用型 | ||
| p200 移液器吸头 | 通用型 | ||
| 脊髓穿刺针 | Terumo | SN*2590 | |
| 1 ml 注射器 | Beckton-Dickenson | 301025 | |
| 果蝇吸取器 | 由 P1000 移液器吸头、柔性塑料管和网筛组装而成 | ||
| 模型黏土 | 通用型 | ||
| 镊子 | Fine Science Tools By Dumont | 11252-00 | #5SF(超细尖头) |
| 10 ml 注射器 | Beckton-Dickinson | 301029 | |
| 塑料管 | Tygon | R-3603 |
参考文献
- Glendinning, J. I., Jerud, A., Reinherz, A. T. The hungry caterpillar: an analysis of how carbohydrates stimulate feeding in Manduca sexta. The Journal of experimental biology. 210, 3054-3067 (2007).
- Yarmolinsky, D. A., Zuker, C. S., Ryba, N. J. Common sense about taste: from mammals to insects. Cell. 139, 234-244 (2009).
- Thistle, R., Cameron, P., Ghorayshi, A., Dennison, L., Scott, K. Contact chemoreceptors mediate male-male repulsion and male-female attraction during Drosophila courtship. Cell. 149, 1140-1151 (2012).
- Toda, H., Zhao, X., Dickson, B. J. The Drosophila female aphrodisiac pheromone activates ppk23(+) sensory neurons to elicit male courtship behavior. Cell reports. 1, 599-607 (2012).
- Lu, B., LaMora, A., Sun, Y., Welsh, M. J., Ben-Shahar, Y. ppk23-Dependent chemosensory functions contribute to courtship behavior in Drosophila melanogaster. PLoS Genet. 8, e1002587(2012).
- Stocker, R. F. The organization of the chemosensory system in Drosophila melanogaster: a review. Cell and tissue research. 275, 3-26 (1994).
- Hiroi, M., Marion-Poll, F., Tanimura, T. Differentiated response to sugars among labellar chemosensilla in Drosophila. Zoological Science. 19, 1009-1018 (2002).
- Weiss, L. A., Dahanukar, A., Kwon, J. Y., Banerjee, D., Carlson, J. R. The Molecular and Cellular Basis of Bitter Taste in Drosophila. Neuron. 69, 258-272 (2011).
- Falk, R., Bleiser-Avivi, N., Atidia, J. Labellar taste organs of Drosophila melanogaster. Journal of Morphology. 150, 327-341 (1976).
- Hiroi, M., Meunier, N., Marion-Poll, F., Tanimura, T. Two antagonistic gustatory receptor neurons responding to sweet-salty and bitter taste in Drosophila. Journal of neurobiology. 61, 333-342 (2004).
- Clyne, P. J., Warr, C. G., Carlson, J. R. Candidate taste receptors in Drosophila. Science (New York, N.Y.). 287, 1830-1834 (2000).
- Cameron, P., Hiroi, M., Ngai, J., Scott, K. The molecular basis for water taste in Drosophila. Nature. 465, 91-95 (2010).
- Croset, V., et al. Ancient protostome origin of chemosensory ionotropic glutamate receptors and the evolution of insect taste and olfaction. PLoS Genet. 6, e1001064(2010).
- Brand, A. H., Perrimon, N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development (Cambridge, England). 118, 401-415 (1993).
- Parks, A. L., et al. Systematic generation of high-resolution deletion coverage of the Drosophila melanogaster genome. Nature genetics. 36, 288-292 (2004).
- Hodgson, E. S., Lettvin, J. Y., Roeder, K. D. Physiology of a primary chemoreceptor unit. Science (New York, N.Y.). 122, 417-418 (1955).
- Dahanukar, A., Lei, Y. T., Kwon, J. Y., Carlson, J. R. Two Gr genes underlie sugar reception in Drosophila. Neuron. 56, 503-516 (2007).
- Lee, Y., Kim, S. H., Montell, C. Avoiding DEET through insect gustatory receptors. Neuron. 67, 555-561 (2010).
- Descoins, C., Marion-Poll, F. Electrophysiological responses of gustatory sensilla of Mamestra brassicae (Lepidoptera, Noctuidae) larvae to three ecdysteroids: ecdysone, 20-hydroxyecdysone and ponasterone. A. J Insect Physiol. 45, 871-876 (1999).
- Glendinning, J. I., Davis, A., Ramaswamy, S. Contribution of different taste cells and signaling pathways to the discrimination of "bitter" taste stimuli by an insect. The Journal of neuroscience : the official journal of the Society for Neuroscience. 22, 7281-7287 (2002).
- Sanford, J. L., Shields, V. D., Dickens, J. C. Gustatory receptor neuron responds to DEET and other insect repellents in the yellow-fever mosquito, Aedes aegypti. Die Naturwissenschaften. 100, 269-273 (2013).
- Merivee, E., Must, A., Milius, M., Luik, A. Electrophysiological identification of the sugar cell in antennal taste sensilla of the predatory ground beetle Pterostichus aethiops. J Insect Physiol. 53, 377-384 (2007).
- Popescu, A., et al. Function and central projections of gustatory receptor neurons on the antenna of the noctuid moth Spodoptera littoralis. Journal of comparative physiology. A, Neuroethology. 199, 403-416 (2013).
- Marion-Poll, F., Der Pers, J. V. an Un-filtered recordings from insect taste sensilla. Entomologia Experimentalis et Applicata. 80, 113-115 (1996).
- Wieczorek, H., Wolff, G. The labellar sugar receptor of Drosophila. J. Comp. Physiol. A. Neuroethol Sens. Neural Behav. Physiol. 164, 825-834 (1989).
- Morita, H. Initiation of spike potentials in contact chemosensory hairs of insects. III. D.C. stimulation and generator potential of labellar chemoreceptor of calliphora. Journal of cellular and comparative physiology. 54, 189-204 (1959).
- Lacaille, F., et al. An inhibitory sex pheromone tastes bitter for Drosophila males. PLoS One. 2, e661(2007).
- Benton, R., Dahanukar, A. Electrophysiological recording from Drosophila taste sensilla. Cold Spring Harbor protocols. 2011, 839-850 (2011).
- Pellegrino, M., Nakagawa, T., Vosshall, L. B. Single sensillum recordings in the insects Drosophila melanogaster and Anopheles gambiae. J. Vis. Exp. , e1725(2010).
- Axon Instruments. The Axon Guide for Electrophysiology & Biophysics Laboratory Techniques. , (1993).
- Fujishiro, N., Kijima, H., Morita, H. Impulse frequency and action potential amplitude in labellar chemosensory neurones of Drosophila melanogaster. Journal of insect physiology. 30, 317-325 (1984).
- Marion-Poll, F., Tobin, T. R. Software filter for detecting spikes superimposed on a fluctuating baseline. Journal of neuroscience. 37, 1-6 (1991).
- Meunier, N., Marion-Poll, F., Lansky, P., Rospars, J. P. Estimation of the individual firing frequencies of two neurons recorded with a single electrode. Chem Senses. 28, 671-679 (2003).
- Marion-Poll Lab Website. , Available from: http://taste.versailles.inra.fr/fred (2013).
- Meunier, N., Marion-Poll, F., Rospars, J. P., Tanimura, T. Peripheral coding of bitter taste in Drosophila. Journal of neurobiology. 56, 139-152 (2003).
访问受限。请登录或开始试用以查看此内容。
重印与许可
