囊性纤维化跨膜传导调节因子(CFTR)的异源表达与纯化是囊性纤维化药物研发中的重大挑战和限制因素。本方案描述了两种可用于功能与结构研究的、适用于毫克级产量的CFTR分离方法。
本文内容
摘要
摘要
囊性纤维化跨膜传导调节因子(CFTR)蛋白的功能缺陷会导致囊性纤维化(CF),这是一种常染色体隐性遗传病,目前使患者的平均预期寿命低于<40岁。开发新型药物分子以恢复CFTR的活性是治疗囊性纤维化的重要目标,而分离出具有功能活性的CFTR蛋白是实现这一目标的重要步骤。
我们描述了两种从真核异源表达系统酿酒酵母(S. cerevisiae)中纯化CFTR蛋白的方法。与原核表达系统类似,酿酒酵母(S. cerevisiae)可在实验室中快速生长且成本低廉,同时还能对大型膜蛋白进行转运及翻译后修饰。在任何膜蛋白的纯化过程中,选择用于溶解和纯化的去垢剂是关键步骤。在筛选了CFTR在多种去垢剂中的溶解性后,我们选择了两种性质不同的去垢剂用于纯化,从而使最终获得的CFTR样品可根据后续计划进行的实验进行优化调整。
本方法中,我们比较了在十二烷基-β-D-麦芽糖苷(DDM)和1-十四酰基-sn-甘油-3-磷酸-(1'-rac-甘油)(LPG-14)中纯化CFTR蛋白的效果。通过本方法在DDM中纯化的蛋白在功能检测中表现出ATP酶活性。而在LPG-14中纯化的蛋白则具有高纯度和高得率,可用于翻译后修饰的研究,并适用于小角X射线散射和电子显微镜等结构生物学方法,但其ATP酶活性显著降低。
引言
囊性纤维化(CF)是欧洲和北美最常见的遗传性疾病,发病率约为每2,500例活产婴儿中有1例。当囊性纤维化跨膜传导调节因子(CFTR)蛋白发生突变,导致其在上皮细胞质膜上的功能丧失时,便会引发CF1。该缺陷最严重的后果是不可逆的肺损伤,使患者预期寿命缩短至<40岁2,3。
CFTR 是一种 ATP 结合盒(ABC)转运蛋白,但在进化过程中已转变为一种离子通道1,4。尽管其在细胞质膜中的功能已发生显著改变,CFTR 仍与其他 ABC 转运蛋白保持较高的序列同源性。有趣的是,CFTR 的特化区域(即其调控区以及 N-末端和 C-末端)与其他后生动物的 ABC 转运蛋白之间并无明显的序列相似性,因此目前尚无线索可解释这些序列在 CFTR 中的起源。 根据其一级结构,CFTR 被归类为 ABC 转运蛋白家族中的 C 亚家族成员,但目前尚无有力证据表明其与该亚家族之间存在残留的功能关联。已有部分文献报道 CFTR 具有谷胱甘肽转运活性5-7,这与其它 C 亚家族成员的功能相符8,9;然而,也有研究指出还原型谷胱甘肽可能抑制 CFTR 的 ATP 酶活性,而非表现出 ABC 转运蛋白典型的底物诱导激活效应10。离子电导的测量具有足够高的灵敏度,可用于研究单个 CFTR 分子的通道活性1,CFTR 通道的特性已被作为时间、温度、ATP 浓度、膜电位和磷酸化状态的函数进行监测,同时也可在多种小分子抑制剂、增效剂和调节剂存在的情况下进行观察。这些研究极大地增进了我们对 ABC 转运蛋白功能机制的理解。然而,CFTR 的大量表达及其后续纯化一直极具挑战性,目前仅有少数实验室取得成功10-13。
开发更有效药物的需求十分紧迫,但这一过程因缺乏用于小分子筛选的纯化CFTR蛋白而受到阻碍。解决CFTR蛋白的表达与纯化问题,将能够实现高通量药物筛选,以纠正囊性纤维化(CF)中的主要缺陷,同时也将为高分辨率结构研究开辟途径,从而指导合理药物设计。此外,该蛋白一些相对基础的生化特性,例如其功能性寡聚状态、相互作用蛋白以及ATP酶活性,至今仍缺乏充分表征。我们此前已报道过在S. cerevisiae14中大规模表达带有GFP和His标签的小鼠CFTR的实验方案,现进一步描述CFTR的纯化方法。我们已利用这些方法纯化了五种CFTR的直系同源物,并以鸡CFTR的纯化为例展示相关数据。在膜蛋白纯化过程中,选择用于溶解和纯化的去垢剂是关键步骤。在筛选了多种去垢剂中CFTR的溶解性后,我们选定了两种性质不同的去垢剂用于纯化。十二烷基-β-D-麦芽糖苷(DDM)是一种非离子型去垢剂,已被广泛用于膜蛋白的结构与功能研究15-21。离子型去垢剂1-十四酰基-sn-甘油-3-磷酸-(1'-rac-甘油)(LPG-14)对CFTR具有高效的溶解除能力,并已在此前用于功能性膜蛋白的纯化10,22,23,包括从S. cerevisiae24中纯化CFTR。
方案
1. 缓冲液的配制
- 配制100倍浓度的蛋白酶抑制剂(PI)混合液:将96 mg AEBSF、3.5 mg 胰凝乳蛋白酶抑制剂(chymostatin)、10 mg E64、16.5 mg 亮肽素(leupeptin)、16.5 mg 胃蛋白酶抑制剂(pepstatin)、348 mg PMSF 和 4 mg 亮氨酰氨肽酶抑制剂(bestatin)溶于20 ml DMSO中。分装为每管1 ml,于-20 °C保存。配制100倍浓度的苯甲脒(benzamidine)储备液:将720 mg溶于20 ml超纯水(ddH₂O)中。2O),分装为1 ml等份,于-20 °C保存。此量足以进行一次纯化。所有缓冲液中,PI和苯甲脒储存液均按1:100稀释使用。
- 配制“mPIB”缓冲液(0.3 M Tris pH 8,0.3 M 蔗糖,2 mM DTT)和“CFTR”缓冲液(50 mM Tris pH 8,20% (v/v) 甘油,1 mM DTT),并冷却至 4 °C。使用前,根据用于重悬细胞沉淀的 mPIB 体积,按 1:100 比例加入蛋白酶抑制剂混合物和 1:100 比例的苯甲脒例如,使用3.5 ml PI和3.5 ml 苄胺(benzamidine),总体积为350 ml mPIB。
- 配制溶解缓冲液。溶血磷脂酰甘油-14(LPG)溶解缓冲液(50 mM Tris pH 8,10% (v/v) 甘油,50 mM NaCl,1 mM DTT,蛋白酶抑制剂(PIs)和 4% (w/v) LPG)和十二烷基麦芽糖苷(DDM)溶解缓冲液(50 mM Tris pH 8,20% (v/v) 甘油,1 M NaCl,1 mM DTT,蛋白酶抑制剂,4% (w/v) DDM)。可将缓冲液置于超声水浴中(35 W,40 kHz)超声处理以促进去垢剂分散,但避免涡旋混合,以免产生气泡。使用前冷却至 4 °C。
- 用于LPG纯化的CFTR纯化缓冲液为50 mM Tris、10% (v/v) 甘油、50 mM NaCl、1 mM DTT、0.1% (w/v) LPG-14以及蛋白酶抑制剂。配制350 ml该缓冲液,另配制150 ml相同缓冲液并添加1 M 咪唑。将两种缓冲液的pH均调至8.0。
- 用于DDM中纯化的缓冲液包含50 mM Tris pH 8、20% (v/v) 甘油、1 M NaCl、1 mM DTT、0.1% (w/v) DDM。配制该缓冲液350 ml,另配制含1 M 咪唑的相同缓冲液150 ml。将两种缓冲液的pH均调节至8。
- 用于含LPG的凝胶渗透色谱(GPC)缓冲液,配制50 mM Tris pH 8、10% (v/v) 甘油、50 mM NaCl、1 mM DTT、0.05% (w/v) LPG-14。使用DDM进行GPC时,配制缓冲液为50 mM Tris pH 8、20% (v/v) 甘油、1 M NaCl、1 mM DTT、0.1% (w/v) DDM。所有缓冲液和ddH₂O2O用于GPC柱时,应先经滤膜(0.2 μm)过滤并脱气后使用。
- SDS-PAGE上样缓冲液(2倍工作浓度):50 mM Tris-HCl pH 7.6,5%(v/v)甘油,5 mM EDTA,0.02%(w/v)溴酚蓝。分装为700 μl每份,于-20 °C保存。使用前,每700 μl缓冲液中加入200 μl 20%(w/v)十二烷基硫酸钠(SDS)和100 μl 新鲜配制的0.5 M DTT。与样品在室温下孵育至少10分钟后再上样。切勿加热;加热会导致GFP变性,并可能引起CFTR聚集。
- 为制备用于重组的脂质储备液,溶解按重量比4:1的混合物 E. coli 氯仿和甲醇(2:1 体积比)中的脂质和胆固醇,在玻璃小瓶中用氮气吹干2 在氮气下孵育2小时以形成脂质膜。加入不含NaCl的GPC缓冲液,使脂质浓度达到40 mg/ml,并通过反复涡旋和超声处理(35 W,40 kHz)使溶液澄清。
- ATP酶活性检测中,通过将SCH28080溶于DMSO配制成1 mM的溶液,NaSCN溶于ddH₂O配制成1 M的溶液,分别制备100倍浓缩储备液。2O 和寡霉素溶于 100% (v/v) 乙醇至终浓度为 2.5 mM,分装后于 -20 °C 保存。配制 100 ml ATP 酶缓冲液,含 50 mM Tris(pH 7.4)、150 mM NH4Cl,5 mM MgSO₄4 和 0.02% (w/v) NaN3可于室温保存,并用于多项检测。使用前立即配制5 mM ATP储备液,并置于冰上保存。(注意:使用Na2ATP以防止磷酸盐在检测中产生过强的背景信号)。配制SDS终止液(12%(w/v)SDS溶于ddH₂O中)。2O
- 使用前立即配制Chifflet检测试剂缓冲液A(3% (w/v) 抗坏血酸,0.5% (w/v) 钼酸铵,0.5 M HCl)和缓冲液B(2% (w/v) 柠檬酸钠,2% (w/v) 亚砷酸钠,2% (v/v) 乙酸)。
2. 酵母微粒体的分离
- S. cerevisiae 表达鸡CFTR的细胞按O’Ryan所述方法培养 等 (2012)14将20 L发酵产物分装成两份,于-80 °C保存,可储存长达6个月。
- 快速解冻一份细胞,在每克细胞中加入3 ml预冷的mPIB重悬。
- 使用直径为425-600 μm的玻璃珠,在珠磨机中破碎细胞。使用五次 细胞破碎过程采用1分钟破碎与1分钟间歇交替进行。(间歇至关重要,可确保破碎过程中细胞不会过热。)
- 通过离心1 ml珠磨机裂解液样品来监测细胞破碎情况。在台式离心机中离心(12,000 × g,4 °C,5 min)。将上清液用mPIB在比色皿中稀释至1:50,测定A380. 如果 A380 > 0.1,或尽管已进行多次重复的珠击破碎循环但OD值不再上升,则进入下一步。否则,重复步骤2.3–2.4。
- 离心总细胞裂解液(12,000 x g,4 °C,20 分钟)。保留上清液。弃去沉淀(含有未破碎的细胞和线粒体);但如果对细胞破碎效率存在任何疑问(参见 2.4),则也保留沉淀。
- 将上一步的上清液离心(200,000 × g,4 °C,1.5 小时)。弃去上清液,用 CFTR 缓冲液重悬沉淀的微粒体膜。若微粒体用于后续以 DDM 进行纯化,则在 CFTR 缓冲液中添加 1 M NaCl。
- 重复对重悬的膜组分进行离心(100,000 × g) g,4 °C,1 小时)并弃去上清液。
- 将沉淀的微粒体用最小体积的CFTR缓冲液重新悬浮(终体积5–15 ml,微粒体总蛋白量70–200 mg)。可采用Bradford法测定微粒体蛋白的总浓度。25此外,应测量膜的荧光发射光谱(激发波长 = 485 nm,发射波长 = 500–600 nm),并应显示出明显的GFP荧光峰(最大值位于512 nm)。CFTR可在SDS-PAGE凝胶上通过GFP荧光条件扫描进行特异性检测(图1).
- 将重悬的微粒体浸入液氮中速冻,于 -80 °C 保存,或继续进行步骤 3。
3. 微粒体的溶解
- 若为冷冻状态,使用前需立即在10 °C水浴中解冻微粒体。
- 为溶解膜成分,将微粒体与等体积的相应溶解缓冲液(步骤1.3)混合,使终浓度为2%(w/v)的去垢剂和5 mg/ml的微粒体蛋白浓度。在4 °C条件下振荡孵育(试管旋转仪)1小时。保留200 μl用于分析。
- 将混合物离心(100,000 × g), 4 °C,45 分钟)。移除含有溶解膜蛋白的上清液,经 0.45 μm 注射器滤器过滤后置于冰上保存。测定上清液的荧光值(同步骤 2.8)。
- 将不溶性组分重悬于1% (w/v) SDS溶液中,体积与可溶性组分相等。测定该组分的荧光值,并保留50 μl等分试样用于SDS-PAGE分析。
4. CFTR的镍亲和纯化
- 将两个 5 ml 镍-Sepharose 柱串联连接。先用 2 个柱体积(CV)的 20%(v/v)乙醇洗涤,随后用 2 CV 的 ddH2O 洗涤,然后用含 1 M 咪唑的溶解缓冲液(步骤 1.4–1.5)洗涤 2 CV。再用不含咪唑的溶解缓冲液重复洗涤 2 CV。
- 向溶解后的样品(步骤 2.8)中加入咪唑,使其终浓度为 5 mM,然后手动将样品上样至层析柱,或在使用自动液相色谱仪时注入样品环中。
- 以 0.5 ml/min 的流速将溶解后的样品上样至层析柱,并以相同流速用 2 CV 不含咪唑的缓冲液洗涤,以去除未结合的物质。用 50 ml Falcon 管收集洗脱组分。
- 第一次洗涤时,使用含 40 mM 咪唑的纯化缓冲液 3 CV,流速为 1 ml/min。收集 2 ml 的组分。
- 第二次洗涤时,使用含 100 mM 咪唑的纯化缓冲液 3 CV。收集 2 ml 的组分。
- 用含 400 mM 咪唑的纯化缓冲液 3 CV 从 HisTrap 柱上洗脱 CFTR。收集 2 ml 的组分。
- 检测洗脱组分中的荧光信号(步骤 2.8)。
- 保留峰值组分的部分样品用于 SDS-PAGE 分析。其余峰值组分样品迅速冷冻后于 -80 °C 保存,或直接进入下一步纯化流程。
5. CFTR 的凝胶渗透色谱(GPC)纯化
- 用 1.2 个柱体积的 ddH2O 平衡色谱柱(Superose 6 10/300 GL),随后用 1.2 个柱体积的 GPC 缓冲液进行平衡。
- 在步骤 5.1 期间,在 4 °C 下使用 100,000 MWCO 的离心浓缩管,对 GFP 荧光最强的 Ni 亲和纯化组分进行浓缩。若在 DDM 中进行纯化,避免将样品浓缩至蛋白浓度超过 0.3 mg/ml,否则将导致显著的样品损失。从浓缩装置中取出截留液,并在 4 °C 下以 100,000 ×g 离心 30 分钟,以沉淀大颗粒物质。
- 将此样品上样至色谱柱,并用 1.2 个柱体积的 GPC 缓冲液进行等度洗脱。收集 0.5 ml 的组分。
- 按照第 2.8 节方法测定 GFP 荧光,以确定含有 CFTR 的组分。保留每管少量样品(例如 50 μl),用于 SDS-PAGE 分析。
- 用液氮速冻各组分,并在 -80 °C 下保存。
6. CFTR 的重建
- 将脂质(步骤 1.8)以 100:1(w/w)的脂质-蛋白比例加入纯化的 CFTR 中,在 4 °C 下孵育 1 小时。同样设置仅含脂质的对照组,用相同体积的 GPC 缓冲液替代纯化蛋白。
- 使用疏水性吸附珠从蛋白/脂质混合物中去除去垢剂。用 5 CV 的 ddH2O、5 CV 的 70%(v/v)乙醇、5 CV 的 ddH2O 以及 5 CV 不含去垢剂的 GPC 缓冲液依次洗涤吸附珠。每毫升纯化蛋白中加入 200 mg 洗涤后的吸附珠,于 4 °C 轻柔振荡过夜孵育。
- 用细头移液器吸头将重构成分从吸附珠中转移至新的离心管中。
7. ATP酶活性的测定
- 使用改良的Chifflet法26,27,在96孔板中测定CFTR特异性ATP酶活性。用磷酸钠储备液(0.65 mM)配制0–20 nmol磷酸标准品,终体积为50 µl。使用CFTR缓冲液与ATP酶缓冲液1:1混合液稀释磷酸盐储备液。
- 将重组CFTR和空白脂质体分别与1:100(v/v)ATP酶抑制剂(步骤1.9)在冰上孵育10分钟。每组至少使用5 μg重组CFTR。
- 加入ATP(步骤1.9),使其终浓度为2 mM,在25 °C孵育1小时。通过向各孔(包括标准品孔)加入40 μl 10%(w/v)SDS(步骤1.9)终止反应。
- 每孔加入100 μl缓冲液A(步骤1.10),孵育10分钟。再向每孔加入100 μl缓冲液B(步骤1.10),在适用于96孔板的紫外/可见光分光光度计中于800 nm波长处测定吸光度。
- 利用磷酸盐标准品将800 nm处的吸光度转换为释放的磷酸量。通过减去背景信号(仅含脂质体的孔)计算ATP水解速率。
- 对于未重组的CFTR,使用CFTR缓冲液进行背景读数,并遵循相同实验流程。
结果
上述方案是一种高效分离富含CFTR微粒体的方法,在细胞破碎及粗制微粒体制备过程中,CFTR的回收率几乎达到完全(图1)。其他细胞破碎方法也可有效采用。我们曾使用法国压力细胞(French pressure cell),以及其他高压/空化装置(也可结合红宝石靶撞击)进行操作,均获得同等效率。出于操作便捷性和设备初始成本较低的考虑,我们认为珠击法(bead-beating method)为最佳选择。
使用LPG溶解并纯化CFTR获得了 80 μg 蛋白/L 培养液在 >90% 纯度(图2)。高产量归因于LPG对CFTR的有效增溶(比较 图2b,第2道和第4道)。此外,CFTR与柱材料的高效且紧密结合导致未结合组分中CFTR的损失极小,并且在洗涤组分中未检测到CFTR图2,第3、5和6泳道)。洗脱蛋白的纯度为 >90%,通过考马斯亮蓝染色的SDS-PAGE凝胶结合CFTR条带及杂质条带的密度测定法估算。凝胶过滤色谱(GPC)将LPG纯化的CFTR与低分子量杂质分离图4,下图)
使用DDM纯化CFTR的方案可获得约60%的纯度和每升约50 μg的产量(图3)。对凝胶过滤层析(GPC)在约10 ml处洗脱的组分进行负染电镜(EM)分析(图4)显示,DDM纯化的CFTR包含直径为20–30 nm的聚集体以及直径约10 nm的较小颗粒(数据未显示)。这些小聚集体可能具有可逆的结合与解离特性,因为使用截留分子量为1 MDa的超滤膜无法去除电镜下可见的聚集体。LPG纯化的样品无法吸附至辉光放电处理的载网,因此采用未染色组分进行冷冻电镜(cryo-EM)分析。结果显示,样品颗粒大小相对较小(直径6–8 nm),且具有高度均一性(数据未显示)。
最后,检测了纯化蛋白的ATP酶活性(图5)。作为ABC蛋白家族的一员,CFTR具有两个核苷酸结合结构域(NBDs),能够结合和/或水解ATP。实验数据显示,以LPG增溶状态纯化的蛋白无法水解ATP,而在DDM存在时仅表现出较弱的ATP酶活性(图5,空心柱)。在添加脂质并去除去垢剂后,经DDM纯化的样品其ATP酶活性提高了4倍(13 nmol ATP/min/mg蛋白)。对使用LPG分离的CFTR,在添加脂质并去除LPG后,其活性也得到恢复,但最终活性低于经DDM纯化并重组的样品(1.5 nmol ATP/min/mg蛋白)。
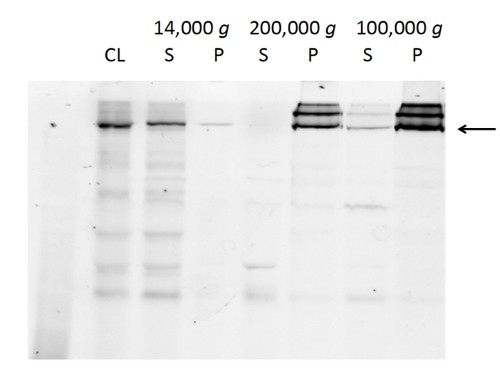
图 1. 在微粒体分离和洗涤过程中不同离心步骤的细胞裂解液(CL)、上清液(S)和沉淀(P)中鸡CFTR蛋白水平的监测。 通过GFP标签的凝胶内荧光显影SDS-PAGE凝胶。细胞破碎后在14,000 × g离心的上清液几乎含有全部CFTR(包括降解产物)。在200,000 × g超速离心后,全长CFTR全部沉淀,部分片段仍留在上清液中。盐洗涤微粒体在100,000 × g超速离心后,几乎所有CFTR均进入沉淀,同时进一步去除了部分片段。
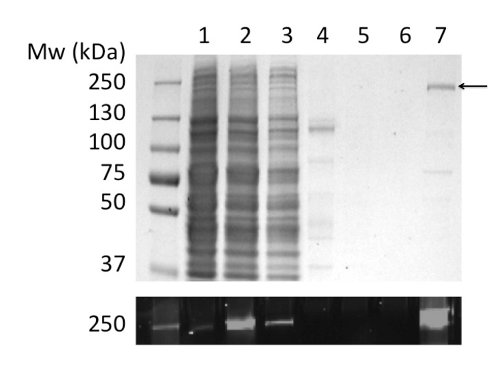
图2. 通过固定化金属离子亲和层析法在LPG中纯化鸡CFTR蛋白。 各组分通过SDS-PAGE分析,随后进行考马斯亮蓝染色(上图)和GFP标签的荧光检测(下图)。泳道:(1) 微粒体。(2) LPG溶解的微粒体。(3) 未结合物质。(4) 不溶性物质。(5) 和 (6) 分别为40 mM和100 mM咪唑洗涤组分。(7) 用400 mM咪唑洗脱的组分。
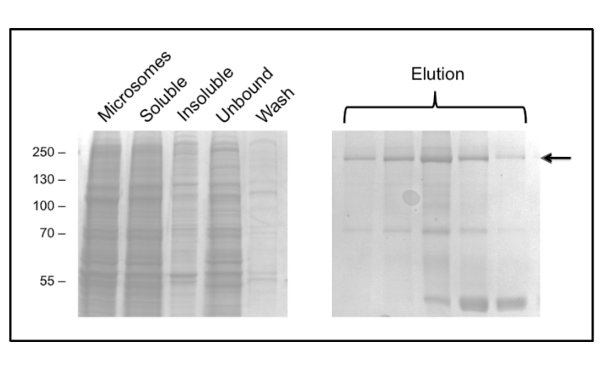
图3. 通过固定化金属离子亲和层析法在DDM中纯化鸡CFTR。 各组分经SDS-PAGE分析后进行考马斯亮蓝染色。左侧图显示洗脱前的各组分;右侧图显示连续的洗脱组分,箭头所指为CFTR。后续组分中富含一种40 kDa的污染物,质谱鉴定该污染物为核糖体蛋白L3。
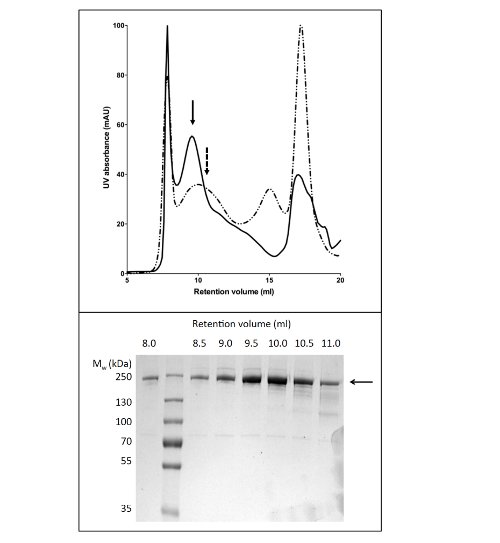
图 4. 通过凝胶过滤色谱纯化鸡CFTR蛋白。 经镍亲和色谱纯化的CFTR蛋白被浓缩后上样至GPC柱。上图显示了在含有LPG-14(实线)或DDM(虚线)的缓冲液中纯化的CFTR的洗脱曲线叠加图。SDS-PAGE分析(下图)显示,CFTR的洗脱体积介于8至11 ml之间。
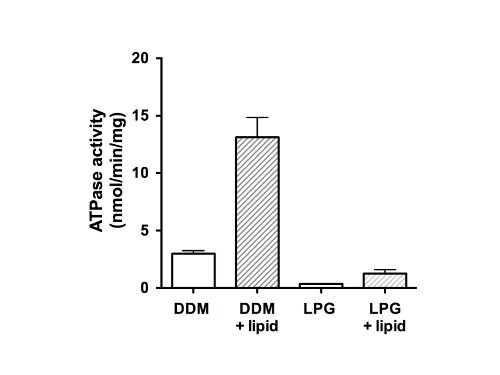
图5. 纯化的鸡CFTR组分的ATP酶活性。 在ATP酶抑制剂混合物存在下,采用改良的Chifflet法26检测在DDM或LPG中纯化的蛋白(空心柱),以消除F型、P型和V型ATP酶的背景活性。在去除去垢剂并添加脂质后也测定了ATP水解速率(实心柱)。图中显示了均值和标准差(n=3)。有脂质与无脂质条件下ATP酶活性的均值差异,以及DDM与LPG中的活性差异均具有统计学意义(p<0.05)。
讨论
我们此前已描述了一种小鼠CFTR过表达的方法14。自该方案发表以来,我们利用相同的系统表达并纯化了多种不同的CFTR直系同源物。迄今为止测试的所有直系同源物在LPG去垢剂中均能良好纯化,而DDM纯化在不同直系同源物之间的效果则表现出较大差异(数据未显示)。这种灵活性体现了酵母表达系统的优势:可以相对快速地筛选大量构建体,从而选择出适用于特定目的的构建体。
在用 DDM 溶解之前,先用含有 1 M NaCl 的缓冲液洗涤酵母微粒体,可获得更纯净的微粒体制备物,并减少后续步骤中的杂质。此步骤在 LPG 方案中并非必需,因为最终的 CFTR 样品在不进行微粒体洗涤的情况下纯度已超过>90%。此外,在 DDM 中进行纯化时,需对溶解和纯化所用的缓冲液进行若干调整,主要是添加额外的甘油和盐。这些调整共同显著增强了 DDM 溶解蛋白与层析柱的结合能力。
DDM 纯化方法仍有改进空间,特别是需要去除一种 40 kDa 的主要污染物。根据质谱分析,该污染物来源于酵母核糖体亚基 L3,该蛋白似乎对镍树脂具有内在亲和力。L3 蛋白中并无明显的多聚组氨酸序列,但当其结合于核糖体时的三维结构(PDB = 1FFK)显示,折叠后的 L3 亚基可能形成一个多聚组氨酸簇。在 LPG 纯化产物中该条带问题较小,可能归因于 LPG 去垢剂更为剧烈的性质。
尽管在DDM中的纯化效果似乎不如LPG,但像DDM这样的温和去垢剂可能更适用于功能和结构分析,并且已被用于多项膜蛋白的X射线晶体学研究15-21。此外,我们的结果表明,与在DDM中纯化相比,使用LPG会导致CFTR的ATP酶功能丧失。因此,我们建议在需要高纯度CFTR的应用中选择基于LPG的纯化方案,例如翻译后修饰的表征或抗体的制备;而在需要保持蛋白质活性和完整天然构象的应用中,则推荐采用基于DDM的纯化方案作为更优选择。
综上所述,本实验方案描述了一种可重复的CFTR蛋白纯化方法,该方法使用两性离子去污剂LPG-14或非离子型去污剂DDM进行CFTR的分离。因此,本方法所涵盖的CFTR纯化条件范围较以往报道的方法更为广泛10-13。此外,当本方法与高产量酵母培养系统(如20 L发酵罐)以及高通量细胞收获系统(如6 L低速离心转子)联用时,可获得毫克级的纯化CFTR蛋白。所获得的CFTR蛋白带有可切割的GFP标签,便于在各种生物化学与生物物理检测中对蛋白进行便捷监测。
本文所述试剂(含鸡CFTR的质粒或冷冻酵母细胞)可通过美国囊性纤维化基金会获取。
披露
作者对本研究不存在竞争性财务利益或其他冲突性利益。
致谢
本工作由美国囊性纤维化基金会(CFF)通过其CFTR三维结构联盟资助。TR由英国囊性纤维化信托基金研究生奖学金资助,NC由英国生物技术和生物科学研究生理事会(BBSRC)研究生奖学金资助。我们感谢CFF CFTR三维结构联盟的同事们提供的帮助与建议,以及在密码子优化的鸡CFTR序列和纯化标签设计方面给予的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 μm 注射器滤器 | Sartorius | FC121 | |
| 100 kDa 截留分子量离心浓缩管(PES 膜) | Vivaspin | VS0641 | |
| 2 ml 微量离心管 | Sarstedt | 72.695 | |
| 40Ti 转子 | Beckman Coulter | 337901 | |
| 50 ml 无菌 Falcon 管 | Sarstedt | 62.547.254 | |
| 三磷酸腺苷二钠盐(Na2ATP) | Sigma-Aldrich | A26209 | |
| 液相色谱系统 | GE Healthcare | 28-4062-64 | |
| 氨基乙基苯磺酰氟(AEBSF) | Sigma-Aldrich | A8456 | |
| 玻璃珠振荡细胞破碎仪 | BioSpec | 1107900 | |
| 台式离心机 | HERMLE | Z300 | |
| 台式离心机 | Eppendorf | 5417R | |
| 台式微量离心机 | Fisher | 13-100-511 | |
| 盐酸苄脒 | Sigma-Aldrich | 434760 | |
| 疏水性 SM-2 吸附珠 | BioRad | 152-3920 | |
| 溴酚蓝 | Sigma-Aldrich | 114391 | |
| 离心管 | Beckman Coulter | 357000 | |
| 凝胶成像系统 | BioRad | 170-808 | |
| 胆固醇 | Sigma-Aldrich | C8667 | |
| 抑肽酶 | Sigma-Aldrich | C7268 | |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | D8418 | |
| 二硫苏糖醇(DTT) | Sigma-Aldrich | 43815 | |
| E. coli 总脂质提取物 | Avanti lipids | 100500 | |
| 环氧琥珀酰-亮氨酰胺基丁烷(E-64) | Sigma-Aldrich | E3132 | |
| 酸洗玻璃珠 | Sigma | G8772 | |
| 甘油 | Fisher | 65017 | |
| HisTrap HP 柱(5 ml) | GE Healthcare | 17-5247-05 | |
| 快速考马斯亮蓝染色液 | Novexin | ISB1L | |
| 离心机 JA-17 转子 | Beckman Coulter | 369691 | |
| 亮抑蛋白酶肽 | Merck | 108975 | |
| 溶血磷脂酰甘油-14(LPG) | Avanti lipids | 858120 | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| 凝胶电泳槽 SDS-PAGE 系统 | BioRad | 165-8006 | |
| n-十二烷基-β-D-麦芽糖吡喃苷(DDM) | Affymetrix | D310S | |
| NaCl | Sigma-Aldrich | S6191 | |
| NaN3 | Sigma-Aldrich | S2002 | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| 寡霉素 | Sigma-Aldrich | 75351 | |
| 超速离心机 | Beckman Coulter | 392050 | |
| 预染蛋白质标准品 | Fermentas | SM1811 | |
| 脱盐柱(Sephadex G-25) | GE Healthcare | 17-0851-01 | |
| 胃蛋白酶抑制剂 A | Sigma-Aldrich | P4265 | |
| 苯甲基磺酰氟(PMSF) | Sigma-Aldrich | P7626 | |
| SCH28080 | Sigma-Aldrich | S4443 | |
| 十二烷基硫酸钠(SDS) | Sigma-Aldrich | L37771 | |
| 硫氰酸钠(NaSCN) | Sigma-Aldrich | 251410 | |
| 凝胶过滤 10/300 GL 柱 | GE Healthcare | 17-5172-01 | |
| Tris 碱 | Formedium | TRIS01 | |
| 超速离心管 | Beckman Coulter | 355618 | |
| 涡旋混合器 | Star Labs | N2400-0001 | |
| 超声波水浴仪 | Ultrawave | F0002202 | |
| 多功能酶标仪 | BioTek | BTH1MF |
参考文献
- Aleksandrov, A. A., Aleksandrov, L. A., Riordan, J. R. CFTR (ABCC7) is a hydrolyzable-ligand-gated channel. Pflugers Arch. 453, 693-702 (2007).
- Dodge, J. A., Lewis, P. A., Stanton, M., Wilsher, J. Cystic fibrosis mortality and survival in the UK: 1947-2003. EUR RESPIR J. 29, 522-526 (2007).
- O'Sullivan, B. P., Freedman, S. D. Cystic fibrosis. Lancet. 373, 1891-1904 (2009).
- Rommens, J. M., et al. Identification of the cystic fibrosis gene: chromosome walking and jumping. Science. 245, 1059-1065 (1989).
- Kariya, C., et al. A role for CFTR in the elevation of glutathione levels in the lung by oral glutathione administration. Am J Physiol Lung Cell Mol Physiol. 292, (2007).
- Gould, N. S., Min, E., Martin, R. J., Day, B. J. CFTR is the primary known apical glutathione transporter involved in cigarette smoke-induced adaptive responses in the lung. Free Radic Biol Med. 52, 1201-1206 (2012).
- Childers, M., Eckel, G., Himmel, A., Caldwell, J. A new model of cystic fibrosis pathology: lack of transport of glutathione and its thiocyanate conjugates. Med Hypotheses. 68, 101-112 (2007).
- Cole, S. P., et al. Overexpression of a transporter gene in a multidrug-resistant human lung cancer cell line. Science. 258, 1650-1654 (1992).
- Conseil, G., Deeley, R. G., Cole, S. P. Polymorphisms of MRP1 (ABCC1) and related ATP-dependent drug transporters. Pharmacogenet Genomics. 15, 523-533 (2005).
- Ketchum, C. J., Rajendrakumar, G. V., Maloney, P. C. Characterization of the adenosinetriphosphatase and transport activities of purified cystic fibrosis transmembrane conductance regulator. Biochemistry. 43, 1045-1053 (2004).
- Ramjeesingh, M., et al. A novel procedure for the efficient purification of the cystic fibrosis transmembrane conductance regulator (CFTR). Biochem J. 327 (Pt 1), 17-21 (1997).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Rosenberg, M. F., Kamis, A. B., Aleksandrov, L. A., Ford, R. C., Riordan, J. R. Purification and crystallization of the cystic fibrosis transmembrane conductance regulator (CFTR). J Biol Chem. 279, 39051-39057 (2004).
- O'Ryan, L., Rimington, T., Cant, N., Ford, R. C. Expression and purification of the cystic fibrosis transmembrane conductance regulator protein in Saccharomyces cerevisiae. J Vis Exp. , (2012).
- Oldham, M. L., Chen, J. Snapshots of the maltose transporter during ATP hydrolysis. Proc Natl Acad Sci USA. 108, 15152-15156 (2011).
- Pinkett, H. W., Lee, A. T., Lum, P., Locher, K. P., Rees, D. C. An inward-facing conformation of a putative metal-chelate-type ABC transporter. Science. 315, 373-377 (2007).
- Dawson, R. J. P., Locher, K. P. Structure of a bacterial multidrug ABC transporter. Nature. 443, 180-185 (2006).
- Gerber, S., Comellas-Bigler, M., Goetz, B. A., Locher, K. P. Structural basis of trans-inhibition in a molybdate/tungstate ABC transporter. Science. 321, 246-250 (2008).
- Ward, A., Reyes, C. L., Yu, J., Roth, C. B., Chang, G. Flexibility in the ABC transporter MsbA: Alternating access with a twist. Proc Natl Acad Sci USA. 104, 19005-19010 (2007).
- Kadaba, N. S., Kaiser, J. T., Johnson, E., Lee, A., Rees, D. C. The high-affinity E. coli methionine ABC transporter: structure and allosteric regulation. Science. 321, 250-253 (2008).
- Aller, S. G., et al. Structure of P-Glycoprotein Reveals a Molecular Basis for Poly-Specific Drug Binding. Science. 323, 1718-1722 (2009).
- Koehler, J., et al. Lysophospholipid micelles sustain the stability and catalytic activity of diacylglycerol kinase in the absence of lipids. Biochemistry. 49, 7089-7099 (2010).
- Tian, C., et al. Preparation, functional characterization, and NMR studies of human KCNE1, a voltage-gated potassium channel accessory subunit associated with deafness and long QT syndrome. Biochemistry. 46, 11459-11472 (2007).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal Biochem. 72, 248-254 (1976).
- Chifflet, S., Torriglia, A., Chiesa, R., Tolosa, S. A method for the determination of inorganic phosphate in the presence of labile organic phosphate and high concentrations of protein: Application to lens ATPases. Analytical Biochemistry. 168, 1-4 (1988).
- Rothnie, A., et al. The importance of cholesterol in maintenance of P-glycoprotein activity and its membrane perturbing influence. Eur Biophys J. 30, 430-442 (2001).
重印与许可
