ScanLag 是一种高通量方法,可并行测量数千个细胞的生长延迟(即滞后时间)以及菌落的生长速率。利用 ScanLag 进行筛选,能够在单个变异体水平上区分长滞后时间与生长缓慢。
本文内容
摘要
摘要
生长动态是微生物的基本特征。在微生物学中,精确量化生长是一个重要目标。生长动态既受微生物倍增时间的影响,也受从一种培养条件转移到另一种条件时生长延迟(即滞后期)的影响。ScanLag 方法能够在单个细胞起源的菌落水平上表征这两个独立的特性,从而生成滞后时间与生长时间的二维分布图。在 ScanLag 方法中,通过由内部开发的应用程序控制的一组商用扫描仪,自动检测传统营养琼脂平板上菌落的出现时间。将培养皿放置于扫描仪上,应用程序定期获取图像。随后,通过另一应用程序对菌落生长进行自动化分析,返回每个菌落的出现时间和生长速率。其他参数,如菌落的形状、纹理和颜色,也可被提取,用于细胞亚群的多维图谱构建。最后,该方法还能够回收具有特定生长表型的稀有变异体,以便进一步表征。该技术可应用于细菌学研究,用于鉴定可能导致对抗生素持久性耐受的长滞后现象,也可作为一种低成本的通用表型筛选技术。
引言
细菌已进化出应对多种应激条件的能力。适应应激的一个普遍特征是生长动态发生变化1,2。生长动态主要由两个参数表征:指数生长速率和滞后期,后者指适应新环境所需的时间。尽管已有大量高通量方法专注于生长速率的测定,但滞后期往往被忽视,尽管它是表征适应新环境的关键参数。传统上,对环境变化适应能力的量化依赖于繁琐的手工方法3,4。近年来,已发展出用于单细胞分析的先进技术5,6。然而,仍难以区分生长延迟后的正常生长(即滞后期)2,3与缓慢生长。为此,研究人员建立了一种自动化方法——ScanLag7,用于区分这两种相似的表型。
在抗生素治疗条件下,研究滞后期分布的重要性呈现出一个显著的例子。许多抗生素和其他应激条件仅杀死处于活跃生长状态的细胞,因此处于“滞留”状态的细胞得以存活8。为了监测滞后期,可以在显微镜下观察单个细胞,并记录其首次分裂所需的时间。该方法的主要缺点是动态时间范围有限:早期开始生长的细胞以指数速率覆盖培养表面,从而有效抑制了具有较长滞后期细胞的生长。使用流动腔可在一定程度上缓解这一问题5,但可追踪的细胞数量有限,且无法观察到在群体大多数细胞已开始生长后才退出滞后期的细菌比例。尽管存在这些局限性,已有若干研究通过单细胞显微镜技术评估了不同应激水平对滞后期分布的影响9-12。另一种监测滞后期分布的方法是通过浊度测量13,14。将大量平行培养物(每个培养物起始于单个细胞)在光密度检测仪中培养,以随时间测量培养物中的细菌数量。该方法受限于外推的精确度以及微孔板中孔的数量。
开发了一种名为ScanLag的自动化方法,能够评估细菌群体中即使仅占极小比例且具有很长滞后期的个体的滞后期时间及生长时间分布。该方法基于在常规营养琼脂平板上检测菌落15(图1)。为了实现检测的自动化16,17,构建了一套由商用扫描仪18组成的阵列系统,并通过自主研发的软件控制其定期获取平板图像。所设计的软件可自动分析图像并提取定量参数19,20,例如每个菌落的出现时间及其生长时间(本文中定义为菌落从20像素增长至80像素所需的时间)。本文详细介绍了该方法,包括系统的搭建以及经过改进、具备更优用户界面的自动化图像分析软件的使用。
该方法可被改进用于测量菌落的其他特征,例如形态和颜色。对这类参数的测量将使该系统可用于多维表型组学研究。由于该方法能够从单个细胞检测菌落,因此可揭示出通过群体水平测量无法检测到的新表型。该技术能够检测并分离稀有变异体,并有助于筛选所需性状。
方案
1. 构建实验装置
- 选择具有以下光学分辨率的平板扫描仪:4,800 dpi;硬件分辨率: 4,800 × 9,600 dpi;色彩位深度:48 bit,且能够在相应的温湿度条件下正常运行。
- 与通常用于商用扫描仪的纸张不同,培养皿具有显著的体积。菌落位于琼脂层表面,距离扫描仪表面约5 mm。注意:对于大多数扫描仪,菌落仍可保持在焦距范围内。
- 某些扫描仪制造商不允许将多个同类型的扫描仪连接至同一台计算机。请确保可以连接多个扫描仪,并能被唯一识别。
- 按以下说明准备配件:
- 准备若干块无菌黑色毛毡布用于覆盖培养皿(图1 步骤2)。
- 为固定培养皿,准备与扫描仪匹配的白色培养皿支架(材料与方法),支架上设有6个与培养皿尺寸相匹配的孔(图1 步骤3)。
- 如微生物生长需要,将扫描仪置于温度可控的环境中。将扫描仪连接至计算机。
- 可选:将继电器连接至计算机,并旁路扫描仪的电源开关,以避免温度梯度影响。
注意:继电器单元适用于对温度极为敏感的微生物。它可在扫描时关闭扫描仪,防止电子元件导致扫描表面受热不均。仅使用扫描仪的部分扫描区域也可达到类似效果。
2. 安装扫描管理器
- 从 http://www.phys.huji.ac.il/bio_physics/nathalie/publications.html 将所有“扫描管理器”应用程序文件复制到指定目录中。
- 根据计算机管理->设备管理器->成像设备中显示的扫描仪名称,配置 ScanningManager.exe.config 文件(图 2)。
- 如需解决“扫描管理器”应用程序的故障问题,请参阅 readme 文件。
- 有关“扫描管理器”应用程序的更多文档信息,请参阅 Documentation.html。
3. 进行实验
- 准备培养皿(图 1):
- 将菌液稀释至约 2,000 CFU/ml。取 0.1 ml 菌液均匀涂布于培养皿表面。
- 为增强菌落与培养皿之间的对比度并吸收水分,在培养皿表面覆盖一片无菌黑色毛毡布,然后盖上皿盖。
- 将培养皿放入扫描仪的支架中。
- 启动扫描管理器(图 3):从已连接的扫描仪列表中选择参与扫描的设备,设置采集图像的次数(重复次数)、连续图像之间的时间间隔(时间间隔)以及实验开始前的延迟时间(开始时间)。
4. 图像分析
注意:提供了使用 MATLAB 中“ScanLag”软件分析图像的计算方法概要,该软件可从 http://www.phys.huji.ac.il/bio_physics/nathalie/publications.html 免费获取,供非商业用途使用。软件手册中详细列出了其他可用功能,并附有示例代码。
- 将每个扫描仪获取的图像分别归类到不同的文件夹中。
- 在 Matlab 命令窗口中运行以下程序。运行这些程序所需的参数在软件手册中有定义。
- 运行 PreparePictures 以执行预处理:在预处理过程中,对来自同一扫描仪的图像进行对齐,并从每组图像序列中裁剪出每个培养皿图像,同时从时间戳中提取每幅图像的采集时间。
- 运行 TLAllPlates 以分别对每个培养皿中的菌落进行检测与追踪,并为每个菌落分配一个唯一的识别编号。
- 对提取的数据进行分析:测量每个被检测菌落的大小随时间的变化。为获取菌落出现时间的分布,请在 Matlab 命令窗口中使用以下函数(更多详细信息参见软件手册):
- 运行 ScanLagApp,以显示某个特定培养皿的分析结果,以及菌落面积随时间变化的曲线图(图4)。
- 使用滑块调整培养皿的当前时间,该时间也会在菌落面积图上以对应的垂直线标示。
- 点击某个菌落可查看其对应的曲线,反之,点击曲线也可定位其对应的菌落。确定目标菌落后,可通过从对应的培养皿中挑取该菌落来获取其表型信息。
- 通过选择某个菌落并点击“排除”按钮,过滤自动分析中的异常数据。点击“排除”后,该菌落编号将变为黄色。
- 完成对每个培养皿分析结果的检查后,汇总所有结果:
- 运行 AddHistograms 以生成菌落出现时间的直方图。
- 运行 plotDeathCurve 以生成表示该分布的存活曲线。
- 运行 GetAppearanceTimes 以获取实验中所有菌落的出现时间。
- 运行 ScanLagApp,以显示某个特定培养皿的分析结果,以及菌落面积随时间变化的曲线图(图4)。
结果
以滞后期分布提取为例,图5展示了ScanLag在筛选实验中随时间识别和追踪单个培养皿上具有特定特征的各个菌落的能力。
当微生物培养物不均一时,不同的亚群可能在检测过程中显现出来。例如,图6展示了出现时间的定量结果,从而揭示了大肠杆菌(E. coli.)突变菌株中双峰型滞后时间分布。
细胞的生长速率会影响菌落出现的时间。当菌落以相同速率生长时,较晚出现可归因于滞后期(图7)。
为了验证该方法确实能够测量单个细胞的滞后期,我们将ScanLag的结果与单细胞显微镜观察所得结果进行了比较;此验证的详细内容已在先前发表的文章中描述7。该方法能够监测的细胞数量远超显微镜所能评估的范围。通过显微镜和ScanLag获得的分布结果在很大程度上相互重叠。ScanLag的分布略宽一些;理论分析预测其展宽程度约为细胞分裂时间的标准差。若不同菌株的生长时间存在差异,则需要借助其他方法进一步探究其延迟出现的原因。
研究了早期出现的菌落对后期菌落出现的影响。对照实验7证实,只要每块平板上的菌落总数不超过200个,后期菌落的出现时间不受影响(图8)。另一项对照实验证实,菌落在平板上的位置不影响其出现时间7。
平板分析已校准至特定阈值,该阈值可能需要根据培养基中的营养成分或微生物类型进行调整。然而,如图9所示,该分析在较宽范围的阈值下均表现出较强的稳健性。
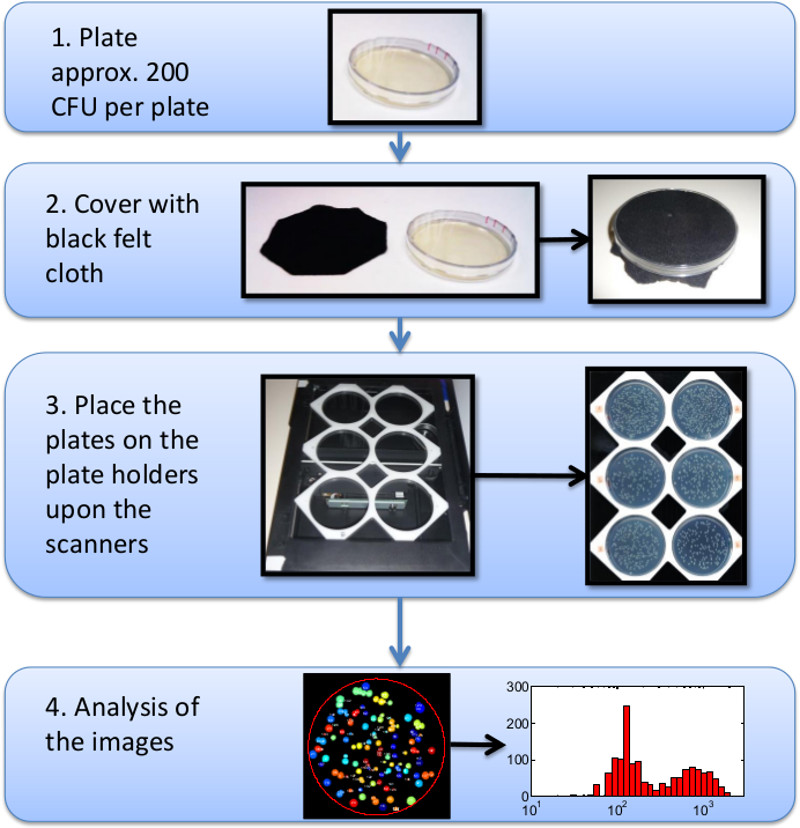
图1. 构建菌落表型分布所需步骤的示意图。
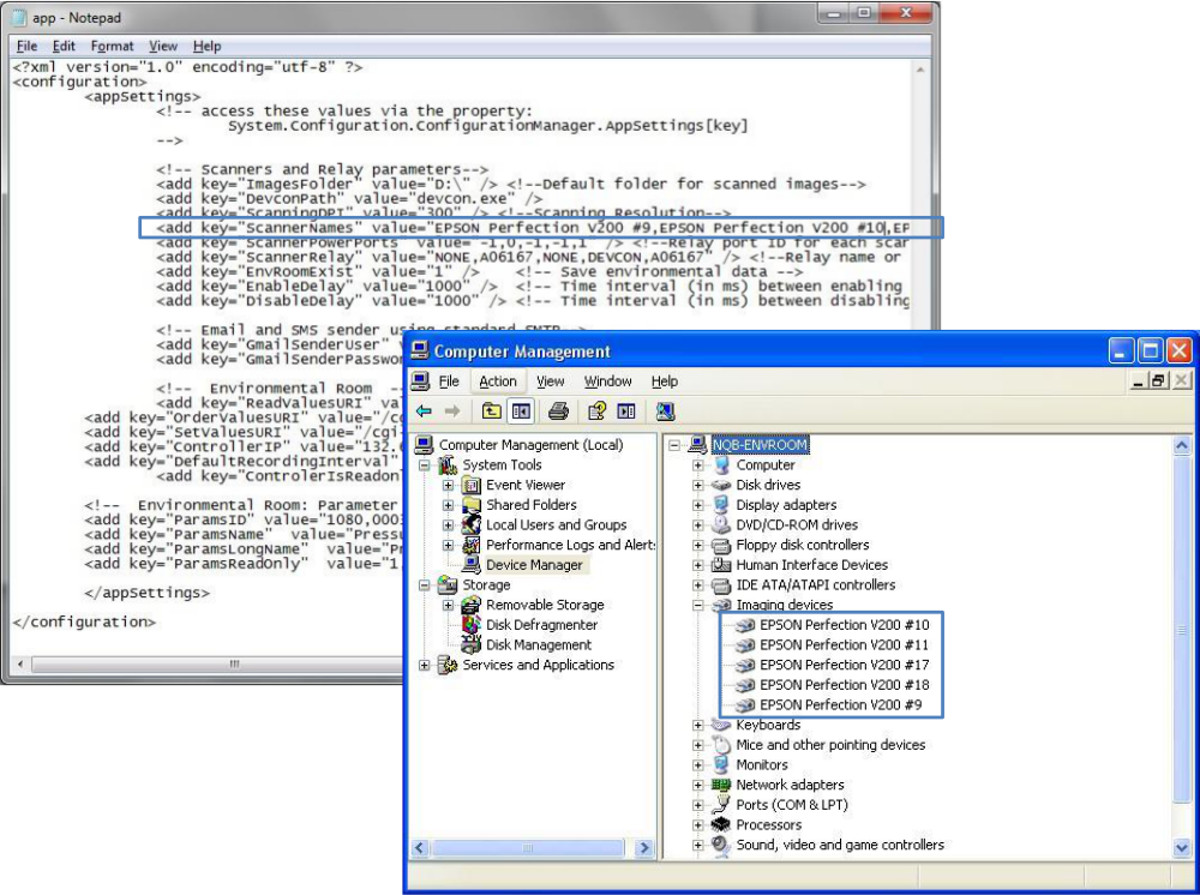
图2. 设备管理器的截图,显示了所连接扫描仪的名称以及配置文件内容。 请点击此处查看该图的放大版本。
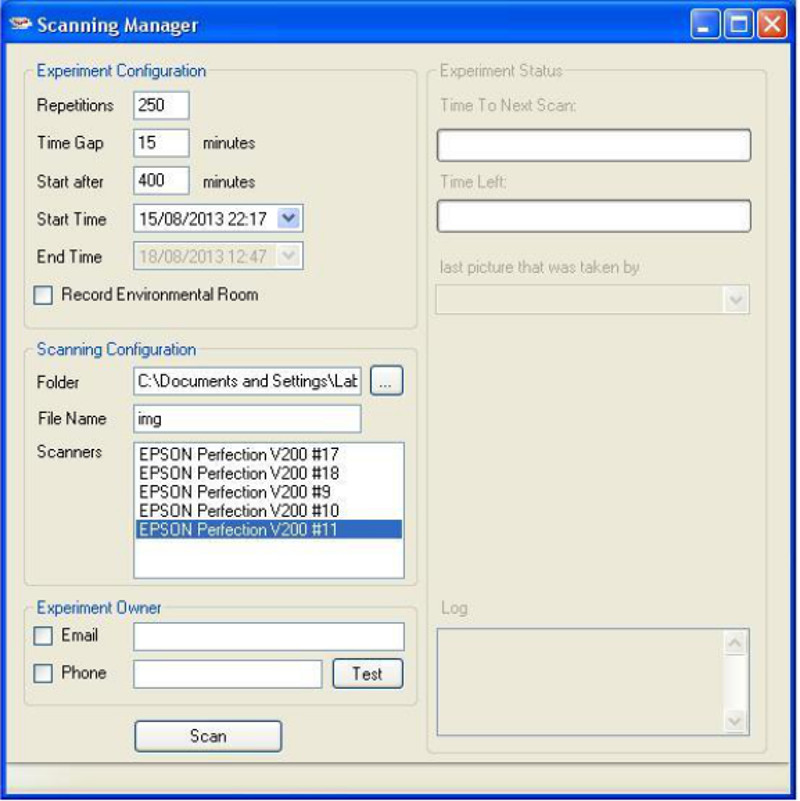
图3. Scanning Manager 界面截图。

图4. ScanLagApp 的界面截图。 左侧窗格显示培养皿图像,右侧窗格显示各菌落的生长曲线,具体操作详见使用手册。部分菌落面积曲线上出现的尖峰,是由于两个或多个菌落发生融合所致。当菌落融合时,其面积按合并后的总面积计算。
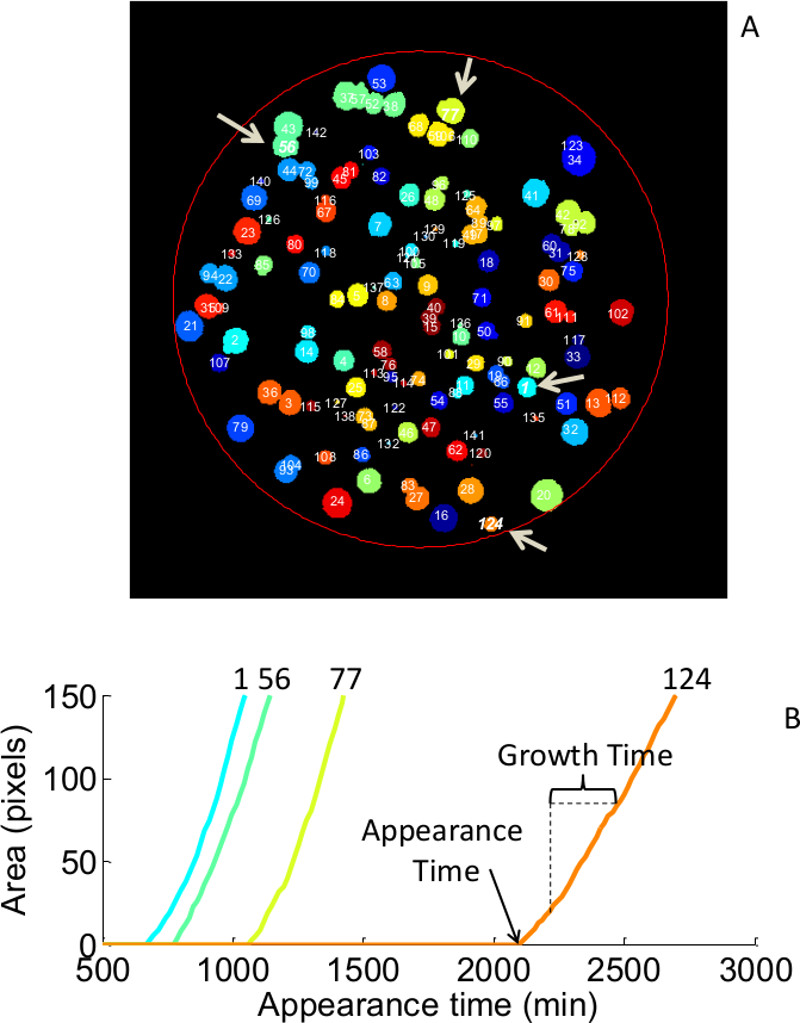
图5. 一块培养皿分析的代表性结果。(A)实验结束时检测程序输出结果的图像。每个菌落区域均被识别、着色,并分配唯一的编号。箭头所指为B图中测量的代表性菌落。菌落的检测基于设定的强度阈值(对于LB琼脂或M9琼脂上的E. coli菌落,该阈值为0.03;对于其他培养基或细菌,可在ProcessPictures函数中调整此阈值)。仅统计面积大于10像素的物体(该阈值可在MatchColonies函数中修改)。菌落的检测始于约105个细菌。 (B)该培养皿中四个代表性菌落的面积(像素)随时间变化的曲线图。每个菌落的“出现时间”是指该菌落被检测到的时间点。每个菌落的“生长时间”在此定义为从20像素增长至80像素所需的时间(这些边界可通过getAppearanceGrowthByVec函数进行调整)。软件会排除在达到上限前已发生融合的菌落。由于每个菌落均被赋予唯一的编号和颜色,因此可根据其特征轻松识别特定菌落。例如,菌落#1、56、77和124在两幅图中均被高亮显示。
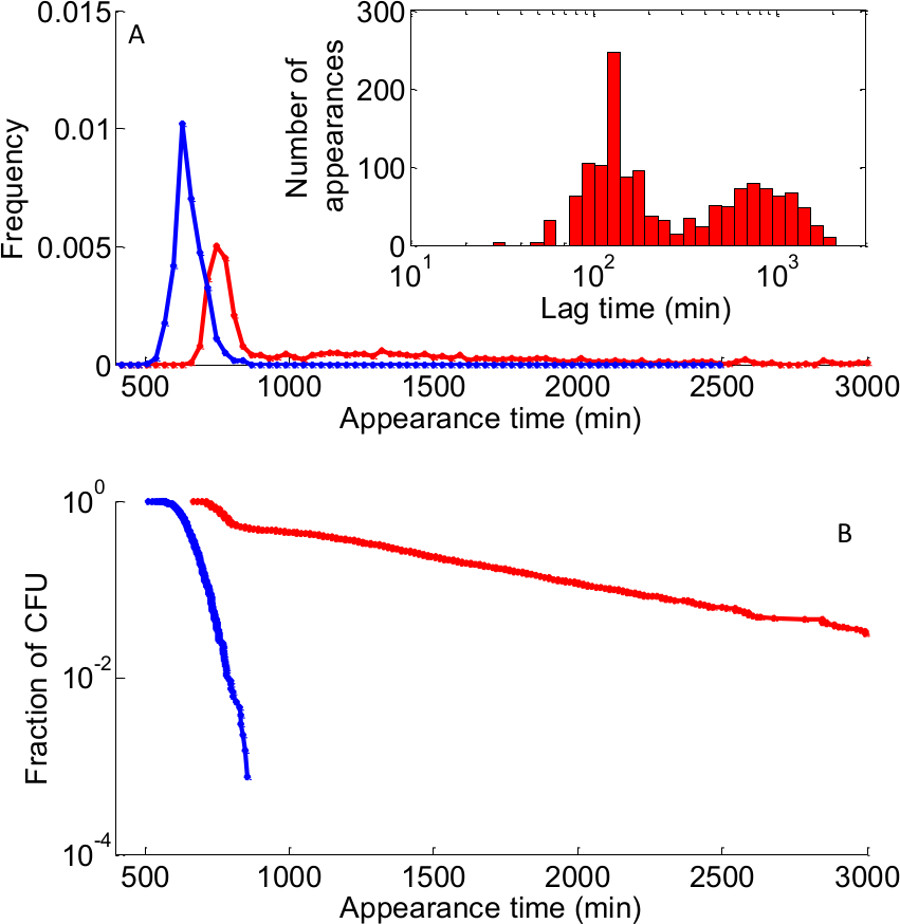
图6. 出现时间的定量分析可揭示双峰滞后期分布。 两种不同菌株的ScanLag分析出现时间直方图比较。蓝色线:指数生长的野生型菌株(总计:1,320个菌落);红色线:富含滞缓细菌的高持留突变体(总计:1,529个菌落)。(A) 归一化的出现时间直方图。指数生长细胞的出现峰值代表生长至可检测菌落大小所需的典型时间。插图:将突变菌株的直方图减去指数培养物的峰值时间后,以对数间隔的区间表示实际滞后期,显示双峰滞后期分布。(B) 同(A)数据的生存函数,采用对数刻度表示。该图示可增强突变菌株晚期出现部分的可视化效果。
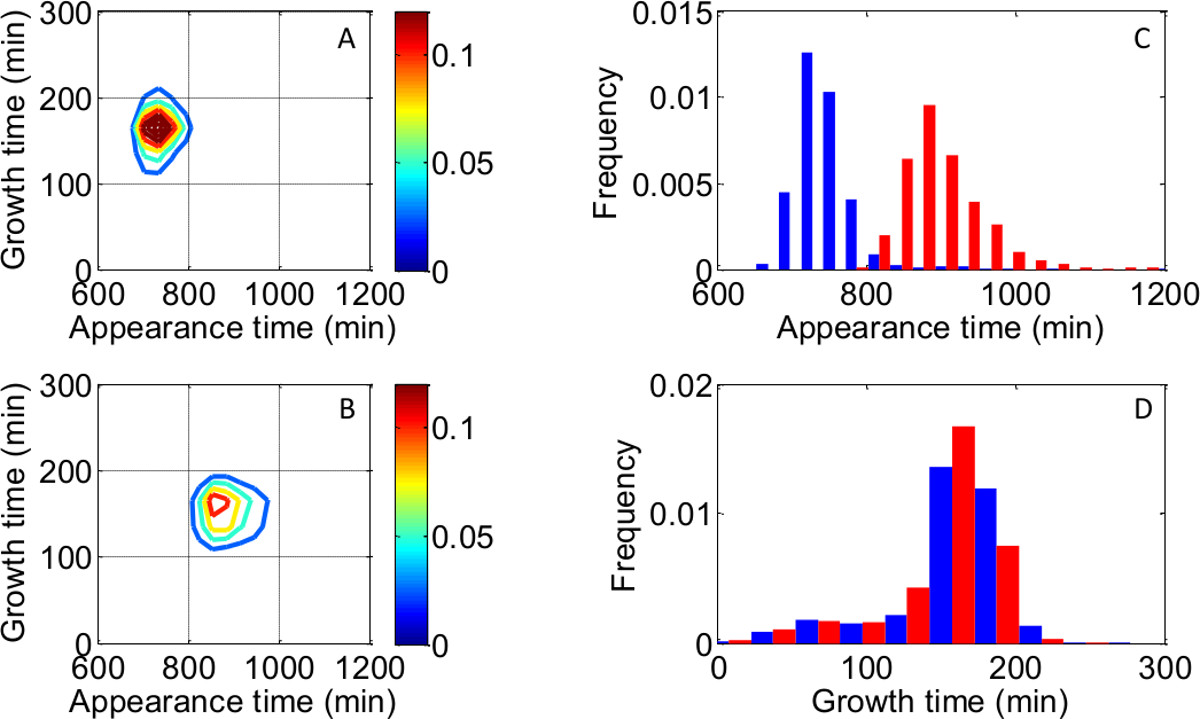
图7. 菌落出现时间分布与生长时间分布。 (A)和(B)显示了两种不同条件下菌落出现时间与生长时间的二维直方图(软件排除了在达到上限阈值前已合并的菌落)。(C) 比较两种菌株的直方图可观察到其出现时间存在差异,而(D)的生长时间则相似。请点击此处查看该图的高清版本。
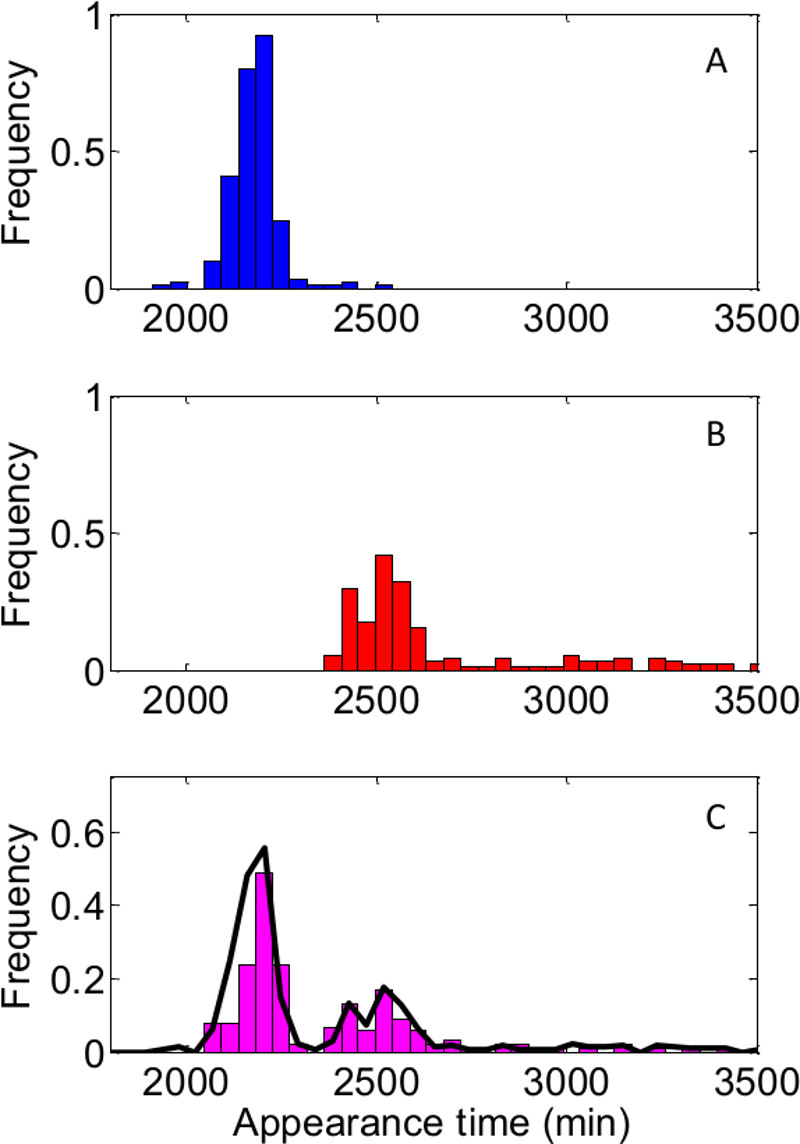
图8. 早期菌落的出现不影响后期菌落的出现。(A)单独接种的野生型细胞的滞后期分布。(B)冷敏感菌株单独接种后转移至许可温度的滞后期分布。(C)在相同条件下共同接种的两种菌株的滞后期分布。黑色线条表示根据分别测量每种菌株所得数据预期的分布。只要每平板菌落数总量低于200,预期分布与实测分布之间即具有良好一致性。
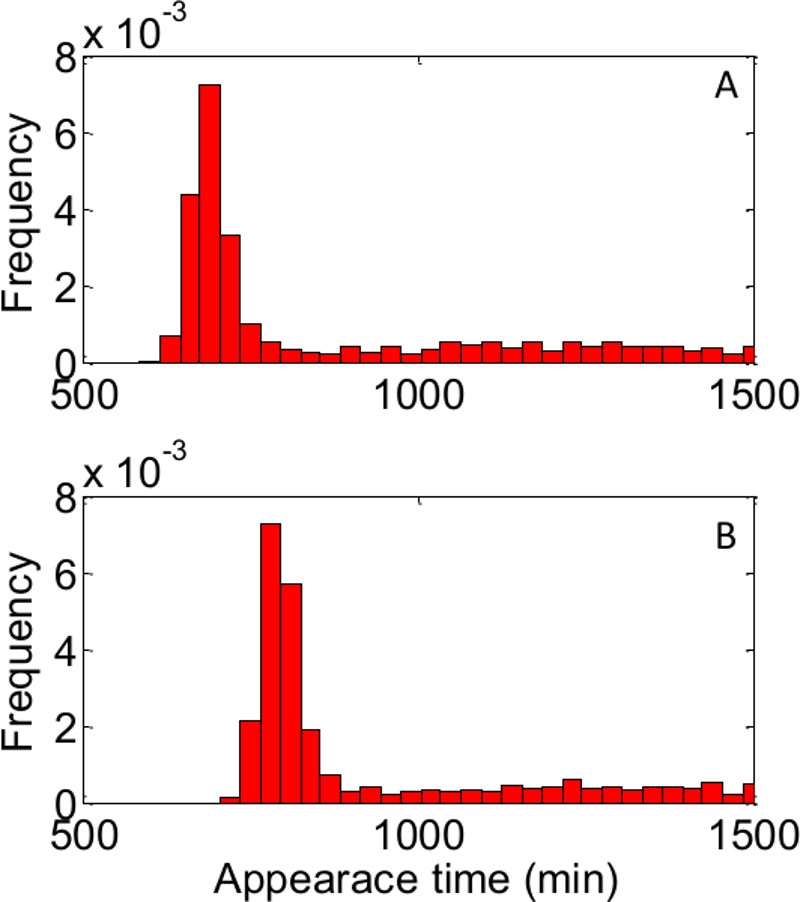
图9. 检测阈值不影响菌落出现分布的形状。 对同一数据集使用两种不同的阈值大小分析菌落出现分布;(A)阈值大小为10像素;(B)阈值大小为50像素。每个直方图中的细胞数量:约1,500个。不同的检测阈值仅导致检测时间的偏移。
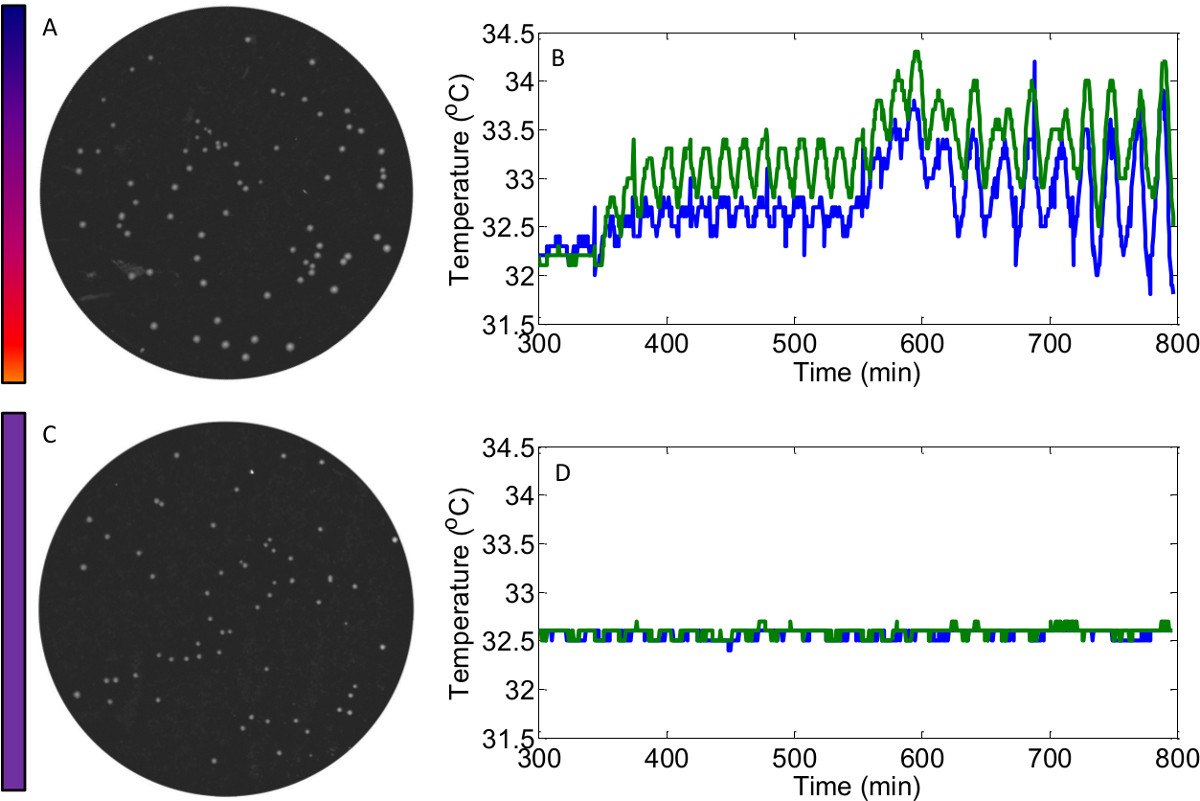
图10. 扫描仪表面温度稳定性测量结果。(A)在无电源管理的情况下于扫描仪上培养的枯草芽孢杆菌(Bacillus subtillis)菌落平板图像。底部表面温度较高,因此菌落生长更快。平板旁的渐变线为热梯度的示意图。(B)使用两个热电偶沿扫描仪表面进行温度稳定性测量。扫描仪在每次扫描及长时间运行过程中会逐渐升温。(C)启用电源管理后,温度分布均匀,菌落生长速率相近。(D)与(B)相同,但启用了电源管理模块。温度稳定性为±0.2 °C。
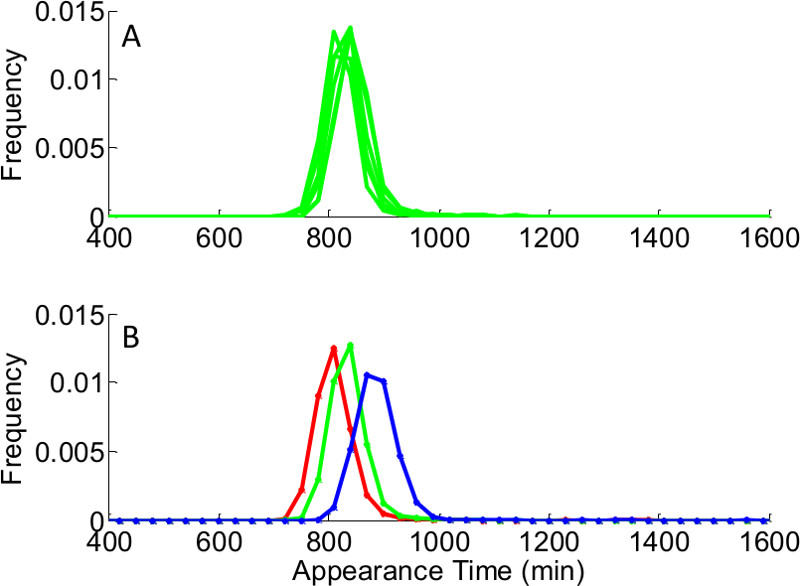
图11. 出现时间分布的差异可能源于固体培养基体积的不同。将相同的细菌培养物接种于含有不同体积LB琼脂的平板上,导致琼脂表面高度不同。不同的高度引起平板透明度的差异,从而导致检测时间不同。对不同平板间的差异进行了检测,并比较了不同高度条件下的差异。(A)含30±0.5 ml LB琼脂、体积相等的平板之间的典型差异。(B)不同高度条件之间的差异:分别测量了含20±0.5 ml(红色)、30±0.5 ml(绿色)和40±0.5 ml(蓝色)LB琼脂的平板的出现时间分布。每种条件均为6个不同平板的平均值。只要平板体积在±5 ml范围内,其透明度相似,从而导致出现时间分布也相似。
讨论
基于直接观察的显微方法通常被视为研究单细胞行为的“金标准”。ScanLag 能够测量细菌群体中滞后期的分布,其提供的数据与单细胞分析获得的分布高度一致,且可达到更高的统计精度。
要使该方法取得良好效果,必须完成几个关键步骤:首先,切勿降低扫描仪分辨率,分辨率应设置为 4,800 × 9,600,以获得高质量图像。其次,需注意,若缺少电源管理模块(步骤 1.6),平板表面可能产生温度梯度,从而影响微生物生长。另一个重要步骤是过滤诸如灰尘等缺陷,这些缺陷可能被软件误识别为菌落。软件内置的背景扣除功能通常可消除此类缺陷,但有时仍需手动剔除“假”菌落。
主要的故障排除步骤可能涉及解决因多种原因导致的板间差异:(a)微生物的生长速率受温度影响。由于培养箱内通风不均或培养皿所处位置不同,可能导致温度和湿度条件不一致。(b)扫描仪的电子元件可能会发热,从而在扫描仪表面产生温度梯度。图10展示了此类空间热梯度对Bacillus细菌的影响,以及在实施电源管理模块(步骤1.6)前后对扫描仪表面温度的测量结果。请注意,对于较新型号的扫描仪,该模块可能并非必需;如果仅使用扫描仪表面的一部分区域,则可能无需电源管理。(c)不同琼脂培养基透明度的平板可能导致检测信号水平不同。图11展示了不同体积的营养琼脂所导致的不同浑浊度下的检测容差。
从实验操作上看,ScanLag 技术易于实施,仅需将微生物接种于标准的培养皿上,并将其放置在扫描仪表面即可。所开发的软件可控制整个实验流程,图像采集过程完全自动化,菌落追踪的图像分析也由系统自动完成。此外,该系统可实现规模化扩展,能够同时测量多种不同条件下的样本。最后,该方法依赖于商用办公扫描仪,因此成本较低。
该技术可拓展用于研究不同于大肠杆菌 K-12(E. coli K-12)的微生物,但需考虑若干因素。首先,必须评估早期出现的菌落对后期菌落的影响,具体方法详见先前发表的研究7。对于大肠杆菌 K-12(E. coli K-12),每块平板上的菌落形成单位(CFU)最大密度为 200。其他菌株由于菌落大小不同,或菌落间可能存在不同的相互作用,可能需要采用不同的接种密度。其次,平板分析所用的软件具有特定的阈值设定,该阈值可能需要根据固体培养基与菌落之间的对比度进行调整。该软件还可进一步拓展,用于提取除滞后期和生长速率之外的其他菌落特征。软件代码开源,可修改以提取菌落形态、亮度、平滑度和颜色等参数。
由于测量对象是由单个细胞衍生出的菌落,该数据能够揭示出通过群体水平测量无法获得的新表型。在抗生素存在的情况下,滞后期分布的重要性得以显现。已知许多抗生素仅对生长中的细胞有效;因此,只要细胞处于滞后期而不发生生长,就能免受这些抗生素的影响21。在抗生素处理过程中不同时间点评估存活细菌数量时15,22,23,通常会发现一个被称为持留菌的亚群。在某些情况下,对抗生素治疗的耐受性源于延长的滞后期。利用该实验装置,可揭示这种滞后期,且其分布常呈现非平凡特征24(图6)。该方法还可用于分离稀有突变体。例如,在将诱变处理后的菌群涂布平板后,可根据表型识别突变体并直接进行分离,无需筛选步骤。该装置还可通过测量菌落生长情况随邻近菌落密度的变化,监测细胞间的相互作用,从而量化群体感应或细菌群游扩散等现象。未来利用该方法所揭示的多维信息,将有助于更精确地表征微生物群体,并推动医学与环境研究的发展。
披露
作者无任何利益冲突可披露。
致谢
感谢 Eliq Oster 提供的枯草芽孢杆菌(Bacillus subtillis)图像。本工作由欧洲研究理事会(#260871)和以色列科学基金会(#592/10)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 细菌琼脂 | BD | 214010 | |
| Difco LB 肉汤 | BD | 240230 | |
| 90 mm 培养皿 | Miniplast | 20090-01 | |
| Epson Perfection v37 | Epson | B11B207201 | 平板扫描仪,光学分辨率:4,800 dpi,硬件分辨率: 4,800 × 9,600 dpi,彩色位深度 48 位。 |
| Epson Perfection v200 | Epson | B11B188011 | |
| Epson Perfection 3490 | Epson | B11B177011 | |
| ADU200 USB 继电器 | ONTRAK | ||
| 无菌黑色毛毡布片 | 定制 | 约 100 × 100 mm | |
| 白色培养皿支架 | 定制 | 表面尺寸,带 6 个直径 99 mm 的孔 | |
| 与培养皿尺寸匹配的 Delerin 环 | 定制 | 内径:72 mm 外径:86 mm 顶部外径:90 mm |
参考文献
- Bochner, B. R. Global phenotypic characterization of bacteria. FEMS Microbiol Rev. 33, 191-205 (2009).
- Monod, J. The growth of bacterial cultures. Annual Reviews in Microbiology. 3, 371-394 (1949).
- Penfold, W. J. On the Nature of Bacterial Lag. J Hyg (Lond. 14, 215-241 (1914).
- Powell, E. O. Growth rate and generation time of bacteria, with special reference to continuous culture. J Gen Microbiol. 15, 492-511 (1956).
- Elfwing, A., LeMarc, Y., Baranyi, J., Ballagi, A. Observing growth and division of large numbers of individual bacteria by image analysis. Applied and Environmental Microbiology. 70, 675-678 (2004).
- Hertog, A., et al. Simplified automated image analysis for detection and phenotyping of Mycobacterium tuberculosis on porous supports by monitoring growing microcolonies. PloS one. 5, (2010).
- Levin-Reisman, I., et al. Automated imaging with ScanLag reveals previously undetectable bacterial growth phenotypes. Nature Methods. 7, (2010).
- Lewis, K. Persister cells. Annual review of microbiology. 64, 357-372 (2010).
- Metris, A., George, S. M., Baranyi, J. Use of optical density detection times to assess the effect of acetic acid on single-cell kinetics. Applied and Environmental Microbiology. 72, 6674-6679 (2006).
- Niven, G. W., Fuks, T., Morton, J. S., Rua, S. A. C. G., Mackey, B. M. A novel method for measuring lag times in division of individual bacterial cells using image analysis. Journal of Microbiological Methods. 65, 311-317 (2006).
- Niven, G. W., Morton, J. S., Fuks, T., Mackey, B. A. Influence of environmental stress on distributions of times to first division in Escherichia coli populations, as determined by digital-image analysis of individual cells. Applied and Environmental Microbiology. 74, 3757-3763 (2008).
- Pin, C., Baranyi, J. Single-cell and population lag times as a function of cell age. Applied and Environmental Microbiology. 74, 2534-2536 (2008).
- Guillier, L., Pardon, P., Augustin, J. C. Influence of stress on individual lag time distributions of Listeria monocytogenes. Applied and Environmental Microbiology. 71, 2940-2948 (2005).
- Metris, A., George, S. M., Peck, M. W., Baranyi, J. Distribution of turbidity detection times produced by single cell-generated bacterial populations. Journal of Microbiological Methods. 55, 821-827 (2003).
- Balaban, N. Q., Merrin, J., Chait, R., Kowalik, L., Leibler, S. Bacterial persistence as a phenotypic switch. Science. 305, 1622-1625 (2004).
- Glaser, D. A., Wattenburg, W. H. An automated system for the growth and analysis of large numbers of bacterial colonies using an environmental chamber and a computer-controlled flying-spot scanner. Ann N Y Acad Sci. 139, 243-257 (1966).
- Guillier, L., Pardon, P., Augustin, J. C. Automated image analysis of bacterial colony growth as a tool to study individual lag time distributions of immobilized cells. Journal of Microbiological Methods. 65, 324-334 (2006).
- Michel, J. B., Yeh, P. J., Chait, R., Moellering, R. C., Kishony, R. Drug interactions modulate the potential for evolution of resistance. Proceedings of the National Academy of Sciences of the United States of America. 105, 14918-14923 (2008).
- Ernebjerg, M., Kishony, R. Distinct Growth Strategies of Soil Bacteria as Revealed by Large-Scale Colony Tracking. Applied and Environmental Microbiology. 78, 1345-1352 (2012).
- Rotem, E., et al. Regulation of phenotypic variability by a threshold-based mechanism underlies bacterial persistence. Proceedings of the National Academy of Sciences of the United States of America. 107, 12541-12546 (2010).
- Bigger, J. The bactericidal action of penicillin on staphylococcus pyogenes. Irish Journal of Medical Science. 19, 585-595 (1944).
- Hofsteenge, N., van Nimwegen, E., Silander, O. K. Quantitative analysis of persister fractions suggests different mechanisms of formation among environmental isolates of E. coli. BMC Microbiol. 13, 25 (2013).
- Moyed, H. S., Bertrand, K. P. Hipa a Newly Recognized Gene of Escherichia-Coli K-12 That Affects Frequency of Persistence after Inhibition of Murein Synthesis. Journal of Bacteriology. 155, 768-775 (1983).
- Balaban, N. Q. Persistence: mechanisms for triggering and enhancing phenotypic variability. Current Opinion in Genetics & Development. 21, 768-775 (2011).
重印与许可
