光遗传学已成为行为神经科学研究中的一种强大工具。本方案提供了激光系统设计与搭建的逐步指南,并给出了进行多重且同步实验操作的完整方案 体内 与大多数啮齿类动物行为测试范式兼容的光遗传学刺激
本文内容
摘要
摘要
在清醒、自由活动的动物中,以细胞类型特异性、空间精确性和高时间分辨率来探测特定神经环路的能力,一直是神经科学家在系统层面探索调控复杂行为状态的神经回路时长期追求的工具。光遗传学是一种前沿技术,正在彻底改变神经科学领域,也是首个能够对神经信号事件与行为之间的因果关系进行系统性检验的方法之一。通过结合光学与遗传学手段,可在哺乳动物细胞中表达光敏感离子通道(视蛋白),从而实现对神经信号的双向调控。本实验方案描述了如何将特定波长的光递送至清醒、自由活动啮齿类动物脑深部结构中表达视蛋白的细胞,以实现神经环路的调控。文中还讨论了光传输的理论原理,并将其作为实验设计中的考量因素加以阐述。 体内 光遗传学刺激。该方案详细介绍了简单和复杂激光装置的设计与构建,并描述了允许多个动物同时进行刺激的固定策略,以实现高通量行为学测试。
引言
光遗传学在其探索驱动正常及与疾病相关行为状态的神经回路元件的过程中,彻底改变了系统神经科学。研究发现,光敏微生物视蛋白1可在哺乳动物细胞中实现功能性表达,这为利用光对神经活动进行前所未有的高时空精度控制提供了平台2。与传统的电生理学或药理学方法调控神经活动不同,光遗传学能够在异质性神经元群体中,基于遗传特征或空间投射特异性地控制特定细胞类型,并在生理学相关的时间尺度上进行操作。随后引入的神经-光学界面为向自由活动的动物递送光刺激提供了实用工具3。这使得研究人员能够在清醒活动的啮齿类动物中实时调控特定神经回路,从而因果性地检验这些神经回路在调控与神经及精神疾病相关行为状态中的作用4-6。因此,光遗传学代表了一种强大而有效的工具,适用于任何致力于研究动物模型中脑活动与行为或生理指标之间功能关系的实验室。
成功设计并完成一个光遗传学实验涉及多个步骤和注意事项(参见 图1)。本实验方案的目的是为研究人员提供在清醒活动啮齿类动物中进行光遗传学刺激所需的工具、组件以及理论与实践知识。目前,激活微生物视蛋白通道主要使用两个波长范围:蓝色光谱(通常为473 nm)和绿黄色光谱(通常为532 nm或591 nm)。激光器和发光二极管(LEDs)均可作为光源,用于向脑组织传递特定波长的光。然而,由于LED发出的光是非相干光,在耦合至光遗传实验所需的小芯径光纤时,会导致光的有效传输变得困难 体内 啮齿类动物刺激。选择合适的激光组件是至关重要的初始步骤,需根据实验室中光遗传学的预期用途来决定。本方案描述了两种基本配置,它们在组装和使用难易程度上有所不同:单通道预耦合激光系统和双激光系统(参见 图2)。由制造商预耦合的单激光系统在到达后基本可立即使用,几乎无需安装设置,但其缺点是终端用户可自定义的程度极低。双激光系统则能够通过同一根光纤传递两种不同波长的激光。随着组合型光遗传学的发展,这一特性将变得愈发重要,因为不同波长可用于激活或抑制在空间上共定位的不同细胞类型。此外,该功能对于双稳态步进函数视蛋白(bi-stable step function opsins)的应用也至关重要,此类视蛋白的光流分别由蓝光和黄光启动和终止。7,8双激光系统也可根据用户需求进行定制,用户可自行添加或移除组件(例如, 外部快门、光束滤光片、在线功率计)根据需要从光路中移除。由于其多功能性,如果光遗传学将成为实验室持续使用的工具,则推荐采用双激光系统。然而,激光耦合可能带来一定挑战,因此本方案提供了一种快速、简便且可靠的耦合机制。需注意,本方案详细描述了光学元件的组装过程,并使用了针对纤芯直径为200 μm、数值孔径(NA)为0.22的阶跃折射率多模光纤优化的光纤跳线和组件。市场上也可购得不同纤芯尺寸和NA值的光纤,但为了在光纤连接点避免光损耗,所有组件的理想配置应保持纤芯尺寸和NA值相匹配。作为替代方案,在光纤连接处,光可以从较小纤芯传输至较大纤芯,和/或从低NA光纤传输至高NA光纤,而不会造成额外的光损耗。
提供了可同时对多只小鼠进行刺激的固定策略,以实现高通量的行为学测试。所提供的实验方案假定使用慢性植入式光纤进行行为学测试,但也可根据需要修改用于急性刺激方案。急性植入式光纤在将光遗传学刺激与药理学干预相结合时具有优势,因为可使用同一根套管将药物和光纤尖端递送至相同位置。然而,对于多日行为学测试,强烈推荐使用慢性植入式光纤,因其可减少因光纤反复插入和拔出造成的组织损伤,并提高光纤定位的一致性,从而确保组织照明的准确性3。当与本文所述的固定装置配置结合使用时,可实现多日连续可靠的行为记录。事实上,已有报道显示,在光纤植入数月后仍能实现稳定的光传输9,因此理论上可支持持续多日甚至数周的慢性刺激与行为学测试范式。本方案中还增加了有关硬件组件的补充说明,以便读者根据自身需求选择最适合的产品,包括成本较低的替代品以及可自行制备的组件。同时提供了在装置搭建和实际操作过程中具有实用价值的重要提示。
方案
!警告:本实验方案涉及使用3b类激光器,必须接受适当培训并遵循相应的安全准则。操作激光器时必须始终佩戴安全护目镜,其中光路准直过程具有特别高的风险。请联系激光器供应商以确定能够为特定激光器提供最大衰减效果的护目镜。如有条件,建议参加所在机构提供的激光安全培训课程。严禁在没有适当安全护目镜和培训的情况下操作激光器。
1. 激光装置设置
在第1节中,适当步骤被标注为(A)或(B),以分别区分单激光系统和双激光系统。
- 将激光器固定在面包板上。面包板是优良的热导体,可作为散热装置,在长时间使用过程中防止激光器内部组件因过热而损坏。
- (A) 使用合适的固定装置将预耦合激光器固定在10英寸×12英寸的光学面包板上(或根据需要选用其他尺寸) ¼-20” 六角头螺钉和垫圈(图2A)。如果面包板上的孔与激光器安装孔不对应,请使用小型“台式夹具”将激光器固定在面包板上。
- (B)如果待使用的两台激光器的光束高度差异较大(>约1 cm)时,使用小型4英寸×6英寸面包板为其中一台激光器搭建平台。使用 ¼-20” 带垫圈的圆头螺钉,然后使用圆头螺钉或台钳将激光器固定到较小的板上,如图所示 图2B将另一台激光器使用顶丝螺丝或可变高度的台式夹具直接固定在光学平台上。
关键步骤: 面包板、螺丝和光学元件有英制和公制两种规格,购买时需保持统一;本方案默认使用英制。 - (A) 将一根带厚护套的平接/物理接触(FC/PC)跳线连接到耦合器上(称为耦合器跳线;参见 图3)物理连接在激光器前端的图2A).
- (B)将接头旋入一个 ¾” 光学柱,然后使用 J-B Kwik 或类似的环氧树脂将耦合器与柱顶端之间的接头进行粘接,以防止使用过程中松动或错位。将该柱固定在光学平台板上(由于平台板上的孔位并不总能与光学元件所需的放置位置对齐,因此需使用柱固定座、基座适配器和夹紧叉来确保耦合器的光学柱稳固就位)。将一根带厚护套的跳线(耦合器跳线)连接至耦合器背面。
- (B) 将蓝色激光的第一面转向镜插入运动学镜架中,并使用 ¾” 光学支杆。将该支杆连接至基座适配器和夹持叉上。将夹持叉与支杆组件置于蓝光激光器正前方,调节镜面角度为45度° 将激光导向二向色镜。使用光学平台上的孔洞网格图案作为粗略对准的参考。初步定位后,使用一个 ¼”-20 内六角螺钉,用于将夹紧叉固定到面包板上(参见 图2B、C).
- (B) 将二向色镜插入一个运动学镜架中,并将其固定在1英寸光学支杆上,然后直接固定到光学平台上。将二向色镜置于蓝光激光反射镜的最左侧,并与之对齐。将二向色镜以45度角倾斜放置。° 调整角度,使从第一面镜子反射的蓝光进入耦合器,然后拧紧将运动学镜架固定到支架上的螺丝(参见 图2B、C).
- (B)将黄光激光器的第一面转向镜固定到 ¾” 光学支柱。将光学支柱连接至基座适配器和夹持叉上。将夹持叉与支柱组件置于黄色激光器正前方,并将反射镜调整至45度角° 调整角度,使黄光射向第二转向镜。用夹紧叉固定位置 ¼”-20 号帽形螺钉和垫圈
- (B)将黄光激光器的第二面转向镜固定在1英寸光学支杆上。调整镜面角度,使来自第一面镜的黄光光束经其反射后穿过二向色镜并进入耦合器图 2C将支架直接固定在面包板上,并在镜面角度调整合适后拧紧固定螺丝。后续步骤中将使用运动学镜架对镜面进行精细调节。
- (B)将中性密度滤光轮连接到 ¾” 光学柱插入柱架,柱架固定于安装底座上。使用单个夹具将整体装置固定在面包板上第一和第二面黄色镜片之间 ¼”-20 内六角螺钉。该轮用于调节到达耦合器的黄色激光光功率。
提示: 在将各组件安装到底座之前,先逐一拧紧所有部件(例如,用于将运动学镜架固定在支架顶部的螺丝,以及用于将底座适配器固定在支架底部的螺纹)。使用所提供的内六角扳手插入光学支架上的通孔,以获得足够的扭矩。这样可以防止组件在使用过程中松动,从而避免需要重新校准。 - 将FC/PC转FC/PC L型支架适配器安装到光学面包板上。
- 可选:将一个 1 x 2 50/50 微型立方体光纤分束器直接固定在面包板上,以实现同时输出 体内 对两个或更多动物进行刺激。此外,可添加手柄以辅助移动面包板组件(如图所示)。 图2A).
2. 激光耦合(非接触式耦合)
本部分涉及双激光装置(图2B)。请先校准内层蓝色激光光路,再校准外层黄色激光光路。
!注意:使用低光功率耦合(约 1 mW)以确保眼睛安全。开启激光器时需佩戴安全护目镜,直至光强测量完成并确认安全为止。
- 将激光器背面的开关设置为“Curr”(电流)和晶体管-晶体管逻辑模式(TTL+),以实现持续照明(相对于模拟模式)。确保驱动器前面的电源旋钮处于零位。先打开驱动器电源,再开启激光器钥匙开关,以启动激光器。
- 缓慢调节激光驱动器前面的功率旋钮,使激光输出功率约为 1 mW。等待 10 至 15 分钟(或按照制造商说明)让激光器预热。
- 将光纤跳线测试仪直接连接至耦合器跳线的自由端,并开启电缆测试仪图3A)。调整耦合器的角度,使红光束沿直线返回至二向色镜的中心。从光纤测试仪发出的红光光路,正是入射激光需遵循的路径,以便成功耦合进入激光器。
- 进行粗调对准:使用运动学镜片上的横向和水平调节旋钮,引导激光光束进入耦合器。必要时可松开底座夹具,以轻微调整镜片和耦合器的位置。运动学镜架应保留一定的调节余量,用于后续精细调节。此时若耦合器连接的尾纤未发出蓝光,无需担心。
- 放置一张半透明纸 直接地 位于二向色镜前方、二向色镜与耦合器之间。在此纸上将分别看到来自激光器的蓝点和来自光缆测试仪的红点。应使用透光性足够的纸张,以便从纸张同一侧同时观察到红点和蓝点。
- 进行精细调整 首先 转向镜(即, 靠近激光器的那个(非二向色镜),通过仔细调节横向和纵向旋钮,使红点中心与蓝点对齐。
- 将纸张移回耦合器方向,使其靠近耦合器 直接地 在耦合器前方并调节其上的旋钮 第二 (即, 二向色镜,用于将激光束与红光束对准。
- 重复步骤 2.6 & 2.7,直至蓝/黄色光束和红色光束在两个位置的中心完全对齐(即, 直到红色和蓝色光束共线。
- 从耦合器跳线中拔下电缆测试仪。此时,激光应从耦合器跳线的末端发出。
- 使用功率计测量耦合器跳线光纤端面发射的光功率,以确定耦合效率。将功率计的光电二极管设置为 500 mW 档位,并调整波长设置(λ)根据所用激光的不同,呈现蓝色(473 nm)或黄色(635 nm)光谱。
- 将光纤尖端垂直置于光电二极管上以获取功率读数。比较进入耦合器的光功率与光纤末端发射出的光功率。耦合效率为 >80% 被认为是非常好的耦合效率。有时对第二面转向镜进行极微小的调整可略微提高耦合效果。通常情况下,当耦合光纤末端输出的光斑呈现为一个微小、紧凑且位于中心的光点(周围无环状结构)时,光进入光纤纤芯的耦合效率达到最佳。
- 重复步骤 2.1–2.11 以实现黄光激光耦合,但使用黄光激光的两个导向镜(参见 图2C)。请勿调整二向色镜的位置,否则蓝激光的准直将丢失。
3. 体内光遗传学刺激
确保涉及动物使用的任何操作均按照当地和国家指南进行,并经相应的机构动物护理和使用委员会批准。
- 光纤设置(参见 图3B 以识别下文所述不同类型跳线)。若需刺激单只小鼠,使用直接连接在面包板上的 FC/FC L型转接头,将耦合器跳线与一根粗护套跳线相连(参见 图4A)。若需从一台激光器同时刺激两只动物,使用 1×2 50/50 微型立方体分束器将耦合器跳线连接至两根粗护套跳线(参见 图4B)。若需刺激三只或更多动物,使用已固定在面包板上的 1×2 微型立方体,将耦合器跳线连接至多模光纤分路器(参见 图4C)。
- 将换向器/旋转接头连接至粗护套跳线或光纤分路器的自由端。换向器至关重要,因其允许光纤随啮齿类动物的运动而自由旋转,从而防止跳线因扭力积聚而受损。过大的扭力可能导致跳线扭曲、断裂,并干扰动物在测试过程中的自然活动。
- 将动物用跳线连接至换向器。
- 将一个带切口的连接套管安装到动物跳线的金属插针自由端(图5)。切勿将套管完全推入插针;应留出约 0.5 cm 的套管部分外露,以便与固定在动物身上的植入式光纤插针连接(图6)。
关键步骤:购买套管时,务必选择带有切口设计的型号,以便在连接和拆卸时套管可扩张,适配植入式光纤的插针。若套管过紧,在尝试将套管从植入物上拔下时可能导致植入物从颅骨脱落,从而对动物造成严重创伤。一旦发生此类情况,应立即将该动物退出实验,并接受兽医紧急治疗。 同样,在首次使用新套管前,应通过反复插拔插针对其进行“磨合”,直至其断开时所需的力度符合预期。
提示:在拆卸紧固于插针上的套管时,光纤容易断裂。为避免此问题,可通过将细小木棒插入套管的开口端,将插针向外推出(标准棉签的手柄尺寸合适)。 - 使用 BNC 电缆将蓝色激光驱动器连接至脉冲发生器,并开启脉冲发生器。
- 佩戴适当的防护眼镜。将激光器背面的开关设置为“Curr”和“TTL+”模式。确保驱动器前面板上的功率旋钮处于零位,然后开启激光器(先开启驱动器,再打开激光钥匙)。
- 调节激光器前面板上的功率旋钮,使动物跳线光纤末端输出的光功率为 5 - 10 mW(使用光功率计测量)。5 - 10 mW 为一般性指导值——激活特定体积脑组织所需的精确光强应在实验开始前根据 Aravanis et al.3 的方法进行计算。
- 将蓝色激光切换至“Analog”模式以进行体内刺激。注意:黄色 DPSS 激光器在恒定照明时应使用 TTL+ 模式。开启后等待 10-15 分钟,使激光器充分预热。
- 轻柔地固定小鼠,并将动物跳线上的切口套管连接至慢性植入式光纤(参见 图6)。确保两根光纤末端彼此紧密接触。利用连接套管上的切口作为观察窗,确认两者之间实现直接接触。 关键步骤: 有时动物植入式光纤的金属插针表面会积聚碎屑,影响正常连接。 此时,应在连接前使用乙醇擦拭纸轻轻清洁动物头部的插针。切勿强行将连接套管推过插针,以免对动物造成严重创伤。若清洁后仍无法实现光纤端面的物理接触,应将该动物退出实验。
提示:植入式光纤与动物跳线连接处可能出现光泄漏。啮齿类动物若感知到该泄漏光,可能引入实验干扰10。可在跳线上安装热缩管,并将其滑至连接点处,以减少杂散光。 - 在开始行为学测试前,让小鼠恢复数分钟。
提示:根据即将进行的行为学测试类型,建议在正式实验前 2 - 3 天让小鼠适应连接和束缚 过程,因为连接操作所需的抓握可能引发动物应激反应,从而干扰行为学结果。 - 将小鼠放入行为学测试装置,确保连接线无缠绕或卡滞。在刺激过程中,切勿让动物无人看管。即使使用了换向器,跳线在长时间使用后仍可能缠绕,进而影响行为学测试的正常进行。
- 使用脉冲发生器以预定频率脉冲蓝色激光,以激活目标光敏蛋白。对于黄色激光的使用:可通过外部快门控制脉冲,或直接使用不反光、不可燃的遮挡物阻断光路来实现脉冲化。
4. 术后 在体 刺激参数的考虑
本部分并非旨在提供完整的实验方案,而是作为指导,列出后续应考虑的附加操作步骤 体内 光遗传学刺激
- 实验结束后,通过组织学方法确认病毒注射和光纤植入的位置,以准确解读行为学实验结果。根据机构规定实施动物安乐死。 用冰冷的磷酸盐缓冲液(PBS)和含4%(w/v)多聚甲醛的PBS灌注动物。
- 用镊子或止血钳牢固夹住暴露的金属套管,将植入的光纤迅速而平稳地整体拔出。每次实验结束后,通过测量光纤末端的光输出来检测植入光纤的完整性至关重要。
- 用多聚甲醛对脑组织进行后固定,时间至少为 24–48 小时,然后对目标区域进行切片。(若使用冷冻切片机,切片前需将脑组织在 30% 蔗糖溶液中孵育数天)。采用标准免疫组织化学流程检测相应的视蛋白标记荧光团。 即, 绿色荧光蛋白(GFP)、增强型黄色荧光蛋白(eYFP)或 mCherry。
- 在显微镜下检查视蛋白表达部位和光纤植入位置,并根据所选坐标目视确认病毒注射和植入位置是否准确。
结果
采用 体内 光遗传学刺激的效果完全取决于所靶向的神经环路、所使用的动物模型以及调控参数。在当前演示目的下,酪氨酸羟化酶::Cre 小鼠腹侧被盖区(VTA)的多巴胺神经元被转导了稳定的阶跃功能视蛋白(SSFO)。8或对照病毒(eYFP),并长期植入光纤。使用 TH::Cre 转基因小鼠可确保视蛋白表达仅限于 VTA 中的 TH+ 细胞(多巴胺能神经元)。 图 7 此处展示了使用当前所述激光装置对多只小鼠进行同步刺激所获得的代表性行为学结果。在此实验中,小鼠被系留并同时使用独立激光器进行刺激(每台激光器对应3只小鼠,具体设置如前文所述)。 图 4C)并记录其运动行为1小时。反复刺激VTA中的多巴胺神经元导致了一种过度活跃的表型,该表型在整个刺激期间持续存在。在eYFP小鼠中未观察到运动行为的改变(参见 视频 1)。行为测试结束后,进行免疫组织化学分析以验证病毒对腹侧被盖区多巴胺神经元的精准靶向,并通过目视检查确认纤维束位置(参见 图 7).

图 1. 实验步骤 体内 光遗传学刺激。 设计与执行实验通常包含四个基本步骤。 体内 光遗传学刺激。本方案详细阐述了将激光光源发出的光递送至行为啮齿类动物深部脑结构的具体步骤,包括:1) 激光系统组装与光耦合;2) 将多只动物连接至同一光源以实现高通量行为测试的栓系策略;以及 3) 提供确认光递送靶向策略的指导原则。 – 数据解读所必需的关键步骤。注:虽然本方案并非专为用于固定目的的慢性植入光纤而设计,但建议在将光遗传学刺激与行为测试结合使用时采用此方案。请同时参阅 Ung 等人 & Arenkiel, 201218 与斯巴达 等人., 20129 用于慢性光纤的自主生产与植入。实线 = 本方案涵盖的步骤。

图 2. 用于 体内 光遗传学刺激. (A) 单激光系统用于 体内 刺激。该激光器由制造商预先进行物理耦合,最终用户几乎无需进行设置。 (B) 双激光系统。通过使用反射镜将两束激光引导至非接触式耦合器,实现双激光耦合至单根光纤。该配置最具灵活性,可根据需要增减光学元件,但在实现高效激光耦合方面更具挑战性。 (C) 双激光系统示意图 (B) 图中标明了激光器和反射镜的布置位置,并描绘了相应的激光光束路径(箭头所示)。此处,二向色镜 “D” 用于偏转蓝光波长,同时将黄光波长透射至耦合器。 “C” 并接入所连接的耦合器跳线。B = 蓝色激光器;C = 非接触式耦合器;D = 二向色镜;FW = 滤光轮;M = 反射镜;Y = 黄色激光器。 请点击此处查看此图的放大版本。
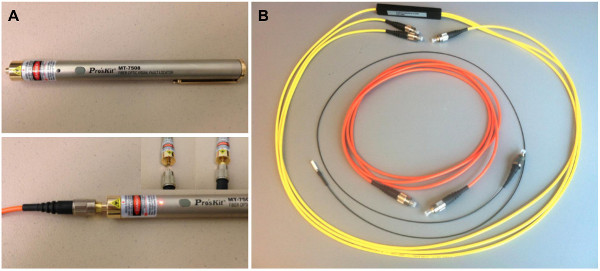
图 3. (A) 非物理耦合方案中使用的电缆测试仪。 底部:电缆测试仪直接连接至跳线。插图中展示了测试仪与电缆的连接点。 (B) 本方案中提及的跳线. 从外到内:多模光纤分路器、黑色护套动物跳线(白色氧化锆分路套管连接于平切端)、厚护套跳线(亦称为 “耦合器连接线”)。厚护套跳线额外采用聚氯乙烯(PVC)管包裹以增强保护。此类线缆采用行业标准色标区分不同光纤类型,其中橙色代表多模光纤。动物实验用跳线护套较薄,以确保行为测试期间动物活动所需的灵活性。请注意,线缆不使用时,应在FC/PC端头盖上防尘帽。 请点击此处查看此图的放大版本。

图4. 用于……的拴系策略 体内 光遗传学刺激:(A) 单只动物,(B) 两只动物;(C) 三只或四只动物。 可能的配置并不限于上文所示。 – 通过适配器、光纤分路器以及分支跳线(可商用或定制)的独特组合,可实现多种配置。注:跳线与光纤分路器两端均采用FC/PC连接器(图中仅展示一端)。 请点击此处查看此图的放大版本。
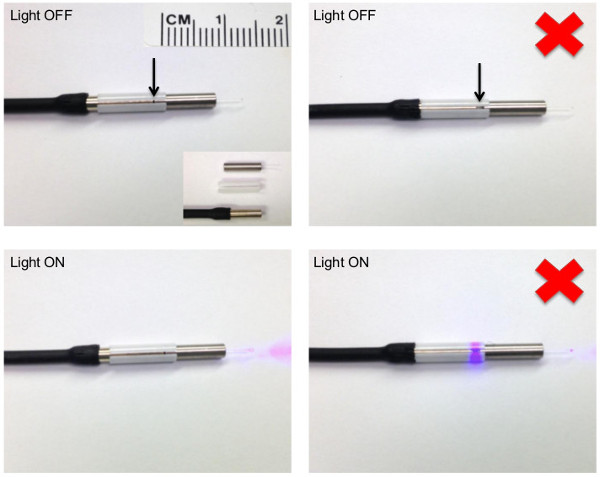
图 5. 正确与错误(红色叉号) 使用分体式套管将跳线连接至可植入光纤。 (左侧面板) 使用氧化锆分体套管将跳线连接到可植入光纤的插芯(此处展示的装置未固定于动物体上)。箭头指向跳线与可植入光纤之间的连接点。请与 (右侧面板) 在连接套管缝隙处可见跳线与植入式光纤之间存在间隙。请注意连接不当可能导致漏光(右下角)。左上图底部插图展示了所使用的各个组件。插图从上至下依次为:Doric 植入式光纤套管、白色氧化锆分体式套管、黑色护套动物跳线的平端(FC)接头(完整跳线如 图 3B)。请注意,所有面板中连接套管均未与跳线的 FC 端齐平。预留约 0.5 厘米的悬垂部分,以便连接至固定在动物体内的植入式光纤。 请点击此处查看此图的放大版本。
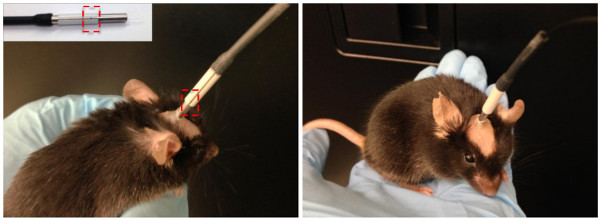
图6. 植入光纤连接跳线的小鼠侧面(左)与正面(右)视图。 利用连接套管上的开槽,辅助观察跳线与植入光纤陶瓷插芯的正确连接情况。连接点以红色虚线框突出显示,并在上方插图中亦有描绘。 请点击此处查看此图的放大版本。

图7. 代表性结果。(左) 行为学指标 体内 光遗传学刺激。采用所述激光装置与束缚方案可获取的行为示例。在光遗传学刺激酪氨酸羟化酶(TH)::Cre小鼠(n = 7-8/组)腹侧被盖区(VTA)期间,记录其运动活动。这些小鼠的VTA中分别转导了阶跃功能视蛋白(AAV5-DIO-SSFO-eYFP)或对照病毒(AAV5-DIO-eYFP)。如图所示,每组三只小鼠同时束缚至同一台激光器。 图 4C 并使用447或473纳米光脉冲(每次持续5秒,每15分钟施加一次)进行刺激。双向重复测量方差分析显示存在显著的组别×时间交互作用(F3,39 = 15.27, p < 0.0001)以及时间的主效应显著(F3,39 = 4.67,p = 0.007),即光遗传学刺激仅在SSFO小鼠中增加了运动活动(邦费罗尼事后检验 p < 0.0001,相对于 t = 0 - 15 时间区间),导致其运动活动总体水平高于 eYFP 小鼠(组别主效应:F1,39 = 10.69,p = 0.0061;邦费罗尼事后检验 p < 0.01(t = 15 - 30 且 p) < 0.001(t = 30 - 45 和 t = 45 - 60 时)。纤维规格:200 μ核心,0.22数值孔径。光辐照度 = 6 - 66 毫瓦/平方毫米2,对应光纤尖端距病毒注射位点0.1-0.6毫米,在连接前光纤尖端输出光功率为5毫瓦。误差棒代表平均值的标准误。eYFP 对比 SSFO:**p < 0.01;***p < 0.001;时间效应:#### p < 0.0001. (右侧) 病毒与光纤植入的组织学确认。使用徕卡 TCS SP5 扫描激光显微镜采集的共聚焦荧光图像,用于观察小鼠腹侧被盖区内的光纤植入位置(虚线标示)及病毒介导的表达(绿色)。 体内 光遗传学刺激。多巴胺能神经元(TH+)呈蓝色。 请点击此处查看此图的放大版本。
视频 1。 体内 光遗传学刺激:在 TH::Cre 小鼠中使用 SSFO 进行 VTA 刺激期间的多动行为。 请点击此处观看此视频。
| 表 1. 激活常用视蛋白所需的光照强度。 | ||||
| 视蛋白变体 | λ | 功率密度(/毫米)2) | 特性 | |
| 开/关动力学 | ||||
| 光学激发:快速作用通道视紫红质 | ||||
| ChR22 | 470 | 1 - 5 毫瓦 | 1.21/12 毫秒 | 最高可达 40 Hz |
| ChETA19 | 490 | 5 mW | 0.86/8.5 毫秒 | 最高 200 Hz 的激发频率 |
| ChIEF20 | 450 | 1.65 毫瓦 | 1.62/12 毫秒 | 非脱敏型ChR2 |
| C1V18 | 540 - 630 | 8 mW (540 nm) | 5/34 毫秒,波长 540 纳米 | 红移 |
| 3.2 mW (630 nm) | 630纳米处67毫秒(开启) | |||
| 光学激发:慢速作用通道视紫红质 | ||||
| 稳定阶跃函数视蛋白 (SFO)8 | 470/590 | 8 μW (470nm) | 20 毫秒/29 分钟 | 新型 SFO 变体;开放状态持续时间更长。由 470 nm 光激活,由 590 nm 光关闭 |
| 光学抑制 | ||||
| eNpHR3.021 | 560 - 630 | 3 - 5 mW | 2.5 毫秒<10 毫秒 | 持续抑制 30 分钟22 在恒定光照条件下* |
| ArchT3.011,23 | 520 - 560 | 1 - 5 毫瓦 | 2/<10 毫秒 | 相较于 eNpHR3.0,具有更高的灵敏度与更大的光电流。 |
| 本表格仅供参考;神经调控所需的具体光辐照度应另行独立确认。 | ||||
| 实验验证对于确认光敏蛋白、靶向策略及光刺激参数能否以预期方式调控神经元放电至关重要。5. | ||||
| 功率密度(毫瓦/平方毫米)2) 指照射于特定脑组织区域的光功率,而非光纤尖端发射的光功率。 | ||||
| *始终尽可能使用最低光照强度,尤其是在进行长时间光刺激时。 | ||||
表 1. 激活常用视蛋白所需的光照强度。
缩写
AAV = 腺相关病毒
DPSS = 二极管泵浦固态
eYFP = 增强型黄色荧光蛋白
FC/PC = 平面切割/物理接触
GFP = 绿色荧光蛋白
PBS = 磷酸盐缓冲盐水
PVC = 聚氯乙烯
mW = 毫瓦
NA = 数值孔径
SSFO = 稳定阶跃函数视蛋白
TH = 酪氨酸羟化酶
TTL = 晶体管-晶体管逻辑
V = 电压
VTA = 腹侧被盖区
讨论
当前描述的激光装置和固定策略可与多种啮齿类动物行为学实验相兼容。事实上,已有多种行为学实验在其前后或同时被采用, 体内 光遗传学刺激,包括情绪行为任务、行为条件反射、学习与记忆范式、睡眠、觉醒以及奖赏性任务等(参见 Nieh 等6 有关全面综述,请参见相关文献)。光遗传学改变了传统行为学实验的实施方式,使得原本需要多日完成的研究现在可压缩为单次实验 session,在同一受试个体中,通过比较光照“开启”与“关闭”不同时间段内的行为表现来进行分析5值得注意的是,包含门道、封闭隔间或其他障碍物的行为学装置可能需要进行改造,以适应连接光纤的通行。
所述的光纤连接策略允许使用单个激光器同时刺激多只小鼠。因此,通过使用多个激光器和测试设备,可实现高通量的光遗传学行为学检测。然而,能够同时刺激的动物数量将受限于每根光纤末端所能达到的最大光功率。光纤末端的最大输出功率取决于以下三个因素:1)激光器的初始输出功率;2)耦合效率;以及 3)光束分束的次数。对于一个初始功率为 100 mW 的蓝光激光器,若耦合效率约为 80%,并最多进行 4 次分束(如图 4C所示),在使用芯径为 200 μm、数值孔径(NA)为 0.22 的光纤跳线时,光纤末端的平均输出功率可在 5–10 mW 范围内(注:旋转连接器的光传输损耗预计 <15%)。测量光纤末端的光输出对于确定足以激活视蛋白的光功率至关重要,因为不同视蛋白对光的敏感性不同,因此其激活所需的光功率密度(mW/mm2)也不同11。例如,稳定的阶跃函数视蛋白(SSFO)具有光子累积效应,因此激活所需光功率密度极低(<8 μW/mm2)8;相比之下,传统的通道视紫红质(ChR2)至少需要 1 mW/mm2 的光照强度才能引发动作电位2。表 1 提供了目前常用视蛋白激活所需最低光辐照度的快速参考。最后需注意,光在脑组织中传播时会发生散射和吸收,因此对深层脑区需要更高的光功率3。一个有用的在线资源位于 http://www.stanford.edu/group/dlab/cgi-bin/graph/chart.php,该工具可根据光纤芯径、数值孔径、所用光的波长以及光纤末端的初始光功率,计算光在不同脑组织深度处的强度。有关这些计算所依据理论原理的出色综述,可参见 Foutz et al. (2012)12。Aravanis et al. (2007)3 和 Tye et al. (2012)13 展示了如何将这些原理和计算应用于实验设计。在实验开始前进行此类计算,对于确保视蛋白激活所需的足够光辐照度至关重要。鉴于上述因素,建议购买更高功率的激光器以保证足够的输出功率。输出功率在 100–200 mW 范围内的激光器通常足以补偿小芯径光纤、多路光纤分束、耦合效率不足以及传输损耗7。然而,若使用高功率激光器,则必须谨慎操作,避免因长时间和/或高强度光照导致的神经损伤或与热和光相关的实验假象7。对于in vivo实验,安全的光功率密度范围应不超过 75 mW/mm214 。
选择购买何种类型的激光器可能是一个复杂的问题,因为需要考虑许多因素。例如,直接半导体激光器提供的脉冲输出比半导体泵浦固体(DPSS)激光器更稳定、更可重复,并且在实验室环境中长期使用时可靠性更高。然而在某些情况下,即使控制电压为0 V,由于激光器控制电路持续向激光二极管施加偏置电流,直接半导体激光器仍可能发射较低的光功率(约0.1 mW)。这种“自发”发射的光谱比同一激光器产生的激光发射更宽,因此可在激光器与耦合器之间安装窄带通(或称“净化”)滤光片来特异性地降低该自发发射(见部件清单)。该滤光片在激光工作时也会使输出功率降低约50%,因此应相应选购更高功率的激光器。需要注意的是,黄色DPSS激光器极为敏感,若使用脉冲发生器进行快速调制,可能会出现不稳定行为并缩短使用寿命。调节黄色激光器功率时,应在激光器处于TTL+模式下运行时,通过在光路中放置外部密度滤光轮来实现(第1.7节)。或者,购买绿色532 nm DPSS激光器是一种经济有效的替代方案,可同时激活卤视紫红质和古菌视紫红质。
在设计和采购激光组装系统的光纤组件时,必须考虑光纤的数值孔径(NA)。光纤的数值孔径决定了可在光纤端面接收和发射的光线角度范围。若将高NA光纤与低NA光纤连接,该接口处将产生显著的光损耗,因此在同一个系统中应保持光纤NA的一致性(或确保沿光路方向NA逐渐增大)。光纤NA对所照射脑组织体积的影响相对较小,因为脑组织具有高度散射性,且来自激光源的光通常会“未完全填充”高NA光纤;然而,NA为0.22和0.37的光纤仍被广泛使用。类似地,从大纤芯光纤向小纤芯光纤耦合也会导致显著损耗,因此在从激光源到动物植入端的光路中,应始终确保纤芯直径相等或逐渐增大。一般而言,光纤端口在不使用时应始终加盖保护,以防止灰尘和颗粒物积聚。定期清洁光纤端面和连接器(70%异丙醇效果良好)有助于确保最大的光功率输出,并建议在每天实验开始前通过“假植入体”检测光功率输出。
在行为学测试过程中,必须采取措施控制病毒感染、外源蛋白表达、可见光以及可能的组织加热效应和伪影对动物行为的影响。因此,适当的对照组应由转导了对照病毒的动物组成例如, GFP、eYFP、mCherry)接受完全相同的光刺激参数。实验验证是至关重要的最后一步,因为用于分析的行为学数据完全依赖于视蛋白和光纤在目标脑区的正确表达与定位。具体而言,若在某动物中未检测到免疫组织化学信号,或信号表达或光纤位置偏离目标区域,则该动物的行为学数据应从实验中剔除。此外,必须在手术植入前以及动物处死后检测光纤末端的光输出强度,以确保有足够的光功率激活视蛋白。对于实验后光纤中出现严重光损耗的动物,>30%)9,应考虑剔除该动物的数据。剔除标准应事先确定 先验的最后,必须考虑用于调节神经元放电的脉冲频率,该参数取决于所靶向的脑结构和神经元亚型。尽管已有文献报道了多种神经元亚型的光遗传学光刺激参数,但调节神经元放电的能力仍需通过独立实验加以验证。 体内 或脑片电生理记录。
随着对激光使用及激光装置改造的熟练掌握,可将不同波长的激光耦合至单个动物的多根光纤,或通过同一根光纤传递,以实现组合式光遗传学操控8。鉴于红移型通道视紫红质的快速发展8、蓝移型超极化视蛋白的工程化设计15、双稳态阶跃函数视蛋白的应用8,16,17,以及具有不同激活光谱的视蛋白种类不断扩充11,多波长刺激将变得愈发重要。光遗传学工具箱的这一扩展,将前所未有地实现对脑内及跨脑区多种神经元亚型的精确控制,从而阐明其在调控复杂行为状态中的作用。
披露
作者声明无任何利益冲突。
致谢
这些研究由美国国立卫生研究院(NIH)提供的资助(MH082876,DA023988)支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1. 激光系统设置 | |||
| 100 mW 473 nm 或 488 nm 半导体激光系统 <2% 稳定性(数量:1) | 奥密克戎 | Luxx/Phoxx 473/488-100 | 可选配件包括带钥匙开关和LED显示屏的遥控盒 |
| 100 mW 594 nm DPSS 激光器(数量:1) | 科尔博特 | 0594-04-01-0100-300 | 04-01 系列黄光激光器;对光纤回返反射敏感 |
| 200 mW 532 nm DPSS激光器;5%功率稳定性(数量:1) | 上海激光器 | GL532T3-200 | 卤视紫红质和古菌视紫红质激活的经济型黄光DPSS激光替代方案 |
| 非接触式激光多模光纤耦合器(数量:1) | OZ Optics | HPUC-23-400/700-M-20AC-11 | 适用于双激光系统;规格:33 mm,400–700 nm 波段光密度(OD);FC 接口,配备焦距 f = 20 mm 透镜及带支架的激光头适配器 #11 |
| 铝制光学平台,12" × 18" x 1/2", 1/4"-20 螺纹(数量:1) | Thorlabs | MB1213 | 用于双激光系统 |
| 铝制光学平台,10" ×12" x 1/2". 1/4"-20 螺纹(数量:1) | Thorlabs | MB1012 | 对于单激光系统 |
| 铝制光学平台,4" × 6" x 1/2", 1/4"-20 螺纹(数量:2) | Thorlabs | MB4 | 用于蓝光激光;双激光系统 |
| 紧凑型可调高度夹具,1/4"-20 次轻敲(数量:4) | Thorlabs | CL3 | |
| 3/4" 不锈钢柱(数量:1) | Thorlabs | TR075 | |
| 1" 不锈钢柱(数量:4) | Thorlabs | TR1 | |
| 带弹簧加载六角锁紧手拧螺钉的支架(数量:2) | Thorlabs | PH1 | |
| 底座适配器(数量:3) | Thorlabs | BE1 | |
| 小型夹紧叉(数量:3) | Thorlabs | CF1253 | |
| 用于1的运动学支架" 可见激光质量反射镜光学组件(数量:3) | Thorlabs | KM100-E02 | |
| 中性滤光密度转轮(数量:1) | Thorlabs | NDC-50C-2M | |
| 1" 长通二向色镜 50%(数量:1) | Thorlabs | DMLP505 | |
| 用于1的运动学支架" 光学(数量:1) | Thorlabs | KM100 | 用于二向色镜 |
| 20 件套带支架六角扳手工具组(数量:1) | Thorlabs | TC2 | |
| 1/4"-20 内六角螺钉及五金套件(数量:1) | Thorlabs | HW-KIT2 | |
| 安装底座1" × 2.3" x 3/8" (数量:1) | Thorlabs | BA1S | |
| FC/PC 至 FC/PC L型支架耦合套筒(数量:2) | Thorlabs | ADAFCB1 | 也可提供双通道 FC/PC L型支架 |
| 面包板提手(数量:3) | Thorlabs | BBH1 | |
| Ø1" 带通滤光片,中心波长 = 450 ± 2 nm,FWHM = 10 ± 2 nm(数量:1) | Thorlabs | FB450-10 | 用于自发发射的二极管激光器 |
| 2. 激光耦合 | |||
| ! 激光防护眼镜(数量:每位用户在每个波长下各需 1 副) | 各种 | ! 咨询激光设备供应商,确保正确选择护目镜,以为所购激光器提供最大程度的光衰减保护 | |
| 光纤电缆测试仪(数量:1) | 日食 | 902-186N | |
| 一步式光纤连接器清洁器(数量:1) | Thorlabs | FBC1 | |
| 耦合器跳线(0.75米)(数量:1) | Thorlabs | 0.75 m² 200 μm 芯,0.22 数值孔径,FC/PC 连接器,多模光纤;用于双激光系统 | |
| 耦合器跳线(0.5米)(数量:1) | Thorlabs | 0.5 m 200 μm 芯,0.22 数值孔径,FC/PC 连接器,多模;用于单激光系统 | |
| Doric mini cube(数量:2) | DORIC | DMC_1x2_FC-2FC | |
| 紧凑型功率和能量计控制台(数量:1) | Thorlabs | PM100D | 数字 4" LCD |
| C系列薄型功率传感器 5 - 500 mW(数量:1) | Thorlabs | S130C | 可提供多种类型的检测器;请与供应商确认 |
| 3. 体内 光遗传学刺激 | |||
| 多模光纤分路器(数量:2) | FONT 加拿大 | 大芯径光纤1×2分路器,50/50分光比,FC接口,加固型。订购时可指定长度、芯径尺寸和数值孔径;提供更具成本效益的小芯径规格可选 | |
| 任意波形函数发生器(双通道)(数量:1) | Rigol | DG1022 | 可同时控制最多2台激光器 |
| 光纤旋转接头(换向器)(数量:6 - 8) | DORIC* | FRJ_1X1_FC-FC | *也可通过 Thorlabs 和 Prizmatix 获取 |
| 动物用光纤跳线(定制单根光纤套管,带10 mm插针,FC/PC接头)(数量:8) | DORIC | MFP_200/240/900-0.22_2m_FC-MF2.5 | 长度、纤芯尺寸和数值孔径可在订购时指定;或者,也可在内部定制生产(参见 Sparta) 等 2012)9. |
| PFP 陶瓷分体套管,2.5 mm 内径,11.40 mm 长度(25 个/包)(数量:1) | 精密光纤产品 | SM-CS1140S1 | 用于将动物体内植入的光纤连接至带有平头套管(FC)端的光传输光纤跳线 |
| 透明防尘盖 Ø2.5 mm 套管(25 个/包)(数量:1) | Thorlabs | CAPF | |
| FC/PC 和 FC/APC 连接套筒用金属帽(数量:1) | Thorlabs | CAPF1 | |
| 厚护套跳线(定制订单)(数量:4) | Thorlabs | 200 μ多模光纤,FC/PC接头,纤芯直径为m,数值孔径为0.22;订购时可指定长度、纤芯尺寸和数值孔径 |
参考文献
- Zhang, F., et al. The microbial opsin family of optogenetic tools. Cell. 147, 1446-1457 (2011).
- Boyden, E. S., Zhang, F., Bamberg, E., Nagel, G., Deisseroth, K. Millisecond-timescale genetically targeted optical control of neural activity. Nat Neurosci. 8, 1263-1268 (2005).
- Aravanis, A. M., et al. An optical neural interface: in vivo control of rodent motor cortex with integrated fiberoptic and optogenetic technology. J Neural Eng. 4, S143-156 (2007).
- Sidor, M. M. Psychiatry's age of enlightenment: optogenetics and the discovery of novel targets for the treatment of psychiatric disorders. J Psychiatry Neurosci. 37, 4-6 (2012).
- Tye, K. M., Deisseroth, K. Optogenetic investigation of neural circuits underlying brain disease in animal models. Nat Rev Neurosci. 13, 251-266 (2012).
- Nieh, E. H., Kim, S. Y., Namburi, P., Tye, K. M. Optogenetic dissection of neural circuits underlying emotional valence and motivated behaviors. Brain Res. 1511, 73-92 (2013).
- Yizhar, O., Fenno, L. E., Davidson, T. J., Mogri, M., Deisseroth, K. Optogenetics in neural systems. Neuron. 71, 9-34 (2011).
- Yizhar, O., et al. Neocortical excitation/inhibition balance in information processing and social dysfunction. Nature. 477, 171-178 (2011).
- Sparta, D. R., et al. Construction of implantable optical fibers for long-term optogenetic manipulation of neural circuits. Nat Protoc. 7, 12-23 (2012).
- Kravitz, A. V., Owen, S. F., Kreitzer, A. C. Optogenetic identification of striatal projection neuron subtypes during in vivo recordings. Brain Res. 1511, 21-32 (2013).
- Mattis, J., et al. Principles for applying optogenetic tools derived from direct comparative analysis of microbial opsins. Nat Methods. 9, 159-172 (2012).
- Foutz, T. J., Arlow, R. L., McIntyre, C. C. Theoretical principles underlying optical stimulation of a channelrhodopsin-2 positive pyramidal neuron. J Neurophysiol. 107, 3235-3245 (2012).
- Tye, K. M., et al. Amygdala circuitry mediating reversible and bidirectional control of anxiety. Nature. 471, 358-362 (2011).
- Cardin, J. A., et al. Targeted optogenetic stimulation and recording of neurons in vivo using cell-type-specific expression of Channelrhodopsin-2. Nat Protoc. 5, 247-254 (2010).
- Chow, B. Y., et al. High-performance genetically targetable optical neural silencing by light-driven proton pumps. Nature. 463, 98-102 (2010).
- Diester, I., et al. An optogenetic toolbox designed for primates. Nat Neurosci. 14, 387-397 (2011).
- Berndt, A., Yizhar, O., Gunaydin, L. A., Hegemann, P., Deisseroth, K. Bi-stable neural state switches. Nat Neurosci. 12, 229-234 (2009).
- Ung, K., Arenkiel, B. R. Fiber-optic implantation for chronic optogenetic stimulation of brain tissue. J Vis Exp. , e50004(2012).
- Gunaydin, L. A., et al. Ultrafast optogenetic control. Nat Neurosci. 13, 387-392 (2010).
- Lin, J. Y., Lin, M. Z., Steinbach, P., Tsien, R. Y. Characterization of engineered channelrhodopsin variants with improved properties and kinetics. Biophys J. 96, 1803-1814 (2009).
- Gradinaru, V., et al. Molecular and cellular approaches for diversifying and extending optogenetics. Cell. 141, 154-165 (2010).
- Goshen, I., et al. Dynamics of retrieval strategies for remote memories. Cell. 147, 678-689 (2011).
- Han, X., et al. A high-light sensitivity optical neural silencer: development and application to optogenetic control of non-human primate cortex. Front Syst Neurosci. 5 (18), (2011).
重印与许可
