光镊技术已被用于通过从单个RNA分子的5’和3’端进行拉伸来研究RNA折叠。本文描述了用于光镊实验的RNA分子合成、仪器校准以及操纵单个分子的常用方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
人类基因组的很大一部分能够转录但不进行翻译。在后基因组时代,RNA的调控功能已被证明变得越来越重要。由于RNA的功能往往取决于其形成多种替代结构的能力,因此很难直接从序列预测RNA的三维结构。单分子方法显示出解决RNA结构多态性问题的潜力,能够逐个分子地监测其结构变化。本文介绍了一种利用光镊精确操控单个RNA分子折叠与结构的方法。首先,描述了合成适用于单分子力学研究的分子的方法;接着,讨论了确保光镊正常运行的各种校准步骤;随后,解释了多种实验操作。为展示该技术的应用价值,文中以机械展开RNA发夹结构和单个RNA“吻式”复合物的结果作为例证。在这些实例中,纳米操控技术被用于独立研究各个结构域(包括二级和三级结构)的折叠过程。最后,讨论了该方法的局限性及其未来的应用前景。
引言
光镊技术的发展长期以来一直伴随着其在生物学研究中的应用。当光捕获效应首次被发现时,Arthur Ashkin 观察到污染水中的细菌可以被捕获在激光焦点处1。自那时起,细菌捕获已成为一代又一代生物物理学生无意中进行的有趣实验,同时也成为研究微生物生理学的重要研究工具2,3。光捕获技术利用聚焦的激光束来固定微小物体1。实际上,光阱的作用类似于一个光学弹簧,通过被捕获物体相对于阱中心的位移(ΔX)来测量作用在其上的力(F)。在较小范围内,F = κ x ΔX,其中 κ 为光阱的弹簧常数。光阱能够以皮牛顿(pN)精度对微小物体施加力,并以纳米(nm)精度测量其位置。在过去的二十年中,光镊已成为生物物理学中最常用的单分子技术之一。该技术已被用于研究 DNA4-6、RNA7-9 和蛋白质10,11 的折叠与力学性质。光镊还被用于观察 DNA 复制12、RNA 转录13 和蛋白质合成14,15,以及许多其他生物分子事件16-18。
单分子方法主要用于RNA结构研究,以探索RNA复杂的折叠能景。由于RNA化学组成简单且碱基配对规则明确,一个RNA序列通常可以折叠成多种稳定的、互斥的结构。长期以来人们已知,RNA结构多态性(如核糖开关中发生的多态性19,20)在基因调控中发挥着重要作用。最近一项全基因组范围的调查发现,仅几摄氏度的温度变化即可显著影响细胞转录组中大量RNA的结构及其蛋白质合成21。这一实例提示,替代性RNA折叠的生物学作用可能比先前认为的更为重要且广泛存在。然而,结构多态性为传统的生物化学与生物物理方法带来了挑战,因为这些方法检测的是大量分子的平均性质。例如,核糖开关的“开启”和“关闭”构象是互斥的,从异质结构中获得的平均结构不太可能准确反映任一具有生物学意义的构象。此外,非翻译区RNA和mRNA通常会形成特定结构,它们与蛋白质及调控性RNA的相互作用往往需要部分或完全解折叠原有结构才能进行。因此,研究RNA的解折叠与再折叠成为RNA生物学中的一个重要课题。为应对这一挑战,单分子方法已被用于通过逐个研究单个RNA分子来揭示其结构多态性22-27。
与常用的单分子荧光方法相比,基于光镊的机械解折叠技术具有能够通过施加外力操控单个分子的构象,并以纳米级精度进行测量的优势。这种纳米操控能力可用于监测单个结构域的解折叠/折叠过程,从而解析大型RNA分子的层级折叠机制28。此外,可引导单条RNA链折叠成多种构象中的一种;或通过机械力诱导已有结构重折叠为不同的构象29。在生理条件下,RNA结构可因温度变化或配体结合而发生改变。直接操控分子结构的能力为RNA结构研究开辟了新的途径。原则上,其他力学技术如原子力显微镜和磁镊也可用于研究单个RNA分子的折叠过程。然而,由于空间分辨率相对较低,这些技术的应用受到较大限制30。
利用光镊可以通过机械力使RNA结构解折叠。
机械解折叠的优势是多方面的。力可以用于解折叠二级结构和三级结构,而金属离子和配体诱导的折叠主要局限于三级结构。温度和变性剂会显著影响水和溶质的活性。相比之下,力是局部施加以扰动分子结构,其对周围环境的影响可忽略不计。此外,热熔法最适合研究小型RNA结构的折叠热力学,而光镊技术已被用于研究各种尺寸的RNA结构,范围从一个七碱基对的四环发夹结构28到一个400个核苷酸的核酶31。此外,RNA结构可以在中温条件下通过机械方式解折叠。相比之下,在热熔实验中为解折叠RNA,通常需要将温度升至远高于生理温度,这会显著加剧RNA的水解,尤其是在存在Mg2+离子的情况下。
需要注意的是,力的力学效应取决于其施加于结构的方式。施加的力会改变折叠能景。例如,当力作用于发夹结构时,碱基对会逐个依次断裂(图1a)。解旋分叉沿螺旋轴方向传播,而螺旋轴与施加的力方向垂直。相比之下,当最小的吻合复合物受到拉力时,两个平行于施加力方向的吻合碱基对共同承担受力(图1b)。由于发夹结构与吻合复合物相对于施加力的方向具有不同的几何构型,因而表现出不同的力学响应,这一特性可用于区分二级结构与三级结构的折叠28,32。有关力学解折叠的理论方面已有综述8,9,30。本文概述了建立和实施单分子力学解折叠实验的基本方法。
实验装置。在我们的机械拉伸实验中,用于光镊操作的RNA样品由目标RNA序列及其两侧的双链DNA/RNA手柄组成(图2)7。整个分子可通过链霉亲和素-生物素以及地高辛-抗地高辛抗体相互作用,分别连接至两个表面包被的微米级小球(Spherotech)。其中一个微球由测力光镊捕获,另一个则固定在微移液管尖端。通过操控光镊或移动微移液管,可改变两个微球之间的相对距离。利用该方法,可对连接两个微球的单个RNA分子进行拉伸和松弛操作。
样品制备。用于光镊实验的RNA样品的制备包含若干步骤(图3)。首先,将对应于目标RNA的DNA序列克隆至质粒载体中。随后,进行三轮PCR反应,以生成两个手柄序列以及用于转录的模板。该转录模板包含手柄区域及插入的序列。全长RNA通过体外转录合成。最后,将RNA与化学修饰的手柄退火结合,形成可用于光镊操作的分子。
光镊的校准与操作。本研究所使用的微型光镊(Minitweezers)基本设计基于双光束光镊系统33。经过多项改进,微型光镊相较于第一代光镊表现出极高的稳定性。目前,多个国家的多个研究团队已在单分子研究中应用该微型光镊系统14,15,34-37。该装置的构建、校准与操作细节,包括教学视频,均可在“光镊实验室”网站(http://tweezerslab.unipr.it)获取。本文将详细描述日常使用中所需的各项改进措施及校准流程。
访问受限。请登录或开始试用以查看此内容。
方案
1. 单分子镊子实验用RNA分子的制备
- 克隆目标序列。将对应于RNA结构的DNA序列克隆至载体中。
- 转录模板的合成与纯化。通过PCR合成转录模板。[place table 1 here] 随后使用PCR纯化试剂盒纯化PCR产物,并将样品浓缩至>200 ng/µl。由于纯化的DNA将用于转录,因此在洗脱和浓缩步骤中应使用无RNase的水。
- 体外转录。在37 °C下进行过夜体外转录以最大化RNA产量。[place table 2 here] 转录完成后,加入1 µl DNase I,在37 °C孵育15分钟以消化DNA模板。使用二氧化硅离心柱纯化RNA。
- 生物素标记的接头A的合成。首先,使用引物Af和Ar通过PCR扩增生成未修饰的接头A,并将扩增的DNA浓缩至>200 ng/µl。随后,通过引物延伸反应将生物素修饰引入PCR产物中。[place table 3 here] 注意:生物素标记的接头A(biotin-HA)可在不经过纯化的情况下直接用于退火。由于biotin-HA将与RNA退火,因此两个步骤中均必须使用无RNase的水。
- 地高辛标记的接头B的合成。使用引物Bf和地高辛修饰的寡核苷酸Dig-Br通过PCR合成地高辛标记的接头B(dig-HB)(Figure 3)。随后纯化PCR产物,并将样品浓缩至>200 ng/µl。
- RNA与接头的退火。将RNA与接头进行退火。[place tables 4 and 5 here]
- 退火样品的纯化。向退火后的样品中加入3倍体积的乙醇并充分混匀。将混合物在-70 °C下保存至少1小时。在15,800 x g条件下离心,弃去上清液。使用冻干机干燥沉淀。将沉淀溶解于100 µl无RNase的水中。注意:样品现已准备好使用,可于-20 °C保存。
2. 光镊的校准与操作
- 校准视频显示器的像素尺寸
- 使用光镊捕获已知直径的微球(尺寸标准)。
- 利用成像软件捕获被捕获微球的图像(图4)。
- 基于质心法,使用成像软件确定微球的直径。
- 重复此过程,以测定不同尺寸微球的直径。
- 通过线性回归拟合测得的直径与已知直径,获得单个像素的物理尺寸。
- 验证距离校准
- 使用光镊捕获一个微球。
- 利用图像采集软件确定其质心的像素位置,并使用Minitweezers记录其位置。
- 将微球移动至不同位置,并重复位置测定。
- 利用已校准的像素尺寸,将微球的X和Y位置从像素单位转换为米(m)单位。
- 比较视频测量与Minitweezers记录的X和Y位置值。两组数值应一致。由于图像分辨率为> 0.1 µm,每次测量之间应将微球移动超过1 µm以确保准确性。若距离校准结果与Minitweezers中存储的数值不一致,则需重新校准仪器。
- 光阱刚度校准
- 使用光镊捕获一个微球并保持其静止。
- 通过旁路高速数据采集系统以> 5 kHz的采样率记录3秒的光阱作用力。
- 利用软件对微球运动的记录生成功率谱,并将功率谱拟合为洛伦兹函数(图5)38:
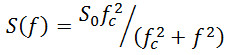 (公式1)
其中 S(f) 表示频率 f 处的功率,fc 为拐角频率,S0 为渐近功率。拐角频率 fc 是热运动功率下降至渐近值一半时的频率。由于 fc 随激光功率和微球尺寸变化,需对每个被捕获的微球单独进行校准。 - 根据 fc 计算光阱的弹簧常数 κ:
 (公式2)
其中 γ 为微球的拖曳系数(公式3)。使用该弹簧常数可根据力的变化确定RNA的伸长变化。
- 斯托克斯定律检验
- 使用光镊捕获一个微球,并以不同速度前后移动该微球。
- 利用Minitweezers记录微球的运动及其所受作用力。
- 计算微球的半径。
注:球形粒子在流体中运动所产生的摩擦力 Fd 可由斯托克斯定律描述:
 (公式3)
其中 r 为球体半径,v 为速度,η 为流体的动力黏度,可从参考表中查得。将测得的作用力作为 Fd,可利用公式3(图6)计算微球半径,其结果应与图像采集软件测定的数值一致。斯托克斯定律检验可有效验证仪器整体的校准状态与性能。
3. 单个RNA分子的纳米操作
- 制作微流控装置。
- 在2号盖玻片上钻六个孔(每个直径2 mm)图7a)并在双面聚酰亚胺胶带(双面 Kapton 胶带)上切割三个狭缝(宽度 2 mm)图7b使用激光雕刻机。
- 使用两层双面 Kapton 胶带将两片盖玻片夹合,制成流动腔。将微量移液管和两根旁路管插入胶带之间图7c).
- 将流室通过流体孔与金属支架对齐后安装固定图7d).
- 将腔室的流体通道通过聚乙烯管连接至装有选定缓冲液的10 ml注射器图7e).
- 将整个腔室安装到双物镜之间的光镊装置上。确保腔室带有流体通道的前面朝向右侧。缩回右侧物镜,并插入框架的黄铜插针(图7e将螺丝拧入镊子上的安装孔,拧紧螺丝以固定腔室位置。
- 将退火后的样品与磁珠混合。将退火后的样品与包被抗地高辛抗体的磁珠(dig-beads)混合,室温孵育5–10分钟。通常情况下, 1 µl 退火样品与 5 µl 在1 ml缓冲液中重悬磁珠。注意:加入流动池的磁珠用量应根据旁路管中能够输送出适量磁珠的原则进行选择。退火样品与磁珠之间的比例难以精确量化。理想情况下,大多数磁珠不含RNA,仅有少数磁珠可能携带单个RNA分子。由于退火样品和磁珠悬液均难以定量,目前唯一可行的最佳方法是调整两者的混合比例,并在光镊系统上测试混合物的效果。
- 将珠子输送至流动室中的反应位点(即在微移液管尖端上方几微米处 图7c).
- 将链霉亲和素包被的磁珠(strep-beads)悬液加入1 ml注射器中。
- 将注射器连接至通向流室底部通道的流体管路(图7a).
- 推动注射器,使链霉亲和素磁珠流入腔室。
- 使用电机控制软件移动整个腔室,将光镊移至底部旁路管开口附近(图7b然后使用轨迹球操作光镊以捕获链霉亲和素包被的微珠。
- 使用电机控制软件将微珠移至微移液管尖端附近。
- 拉动连接至微移液管的注射器,将微珠吸入微移液管中。
- 轻轻按压注射器,使液体流经中间通道,以冲洗掉多余的链霉亲和素磁珠。
- 类似地,将样品与dig-beads的混合物(见步骤3.2)加入到腔室的上层通道中。
- 利用光镊捕获一个磁珠,并将其移近链霉亲和素包被的珠子。
- 通过施加流体清洗中间通道。注意:选择链霉亲和素珠(strep-beads)和地高辛珠(dig-beads)的尺寸不同,以便在显微镜下观察时能够直观区分图4).
- 在一对微珠之间“钓取”单分子连接
- 将 dig-bead 垂直放置在 strep-bead 顶部(图4).
- 通过操控光镊将磁珠移向链霉亲和素包被的珠子。在计算机上打开力-距离曲线窗口,以实时观察力的变化。
- 当两个微珠接触后,将 dig-微珠垂直移离 strep-微珠。
- 若未形成特定接触,作用力几乎保持为零。当两个微珠通过分子连接时,随着微珠分离,作用力显著增加。该过程通常被称为“钓鱼”,常在每对微珠上重复多次,以获得有效的单分子连接。
访问受限。请登录或开始试用以查看此内容。
结果
由于空间限制,单个RNA分子的纳米操作仅通过展示RNA发夹结构及具有三级结构的RNA的机械解折叠示例来说明。
操作单个发夹分子
一旦在微珠之间建立了牵引,即可使用用户自定义的程序来操控牵引的延伸长度和施加的力。通常采用四种常见的操控程序。
力-斜坡实验最直观且常见的操纵单个RNA的实验方法是沿手柄螺旋轴方向(如图所示垂直方向)反复拉伸和松弛该分子 图4)。力, F和捕获位置, Y随时间记录。分子的延伸长度, e,可通过以下方式计算 e = Y - F/κ,其中为光镊的弹簧常数。拉伸结果可表示为力-伸长曲线(图8a)。双链手柄的拉伸表现为正斜率上升曲线。手柄的松弛曲线与拉伸曲线重合。简单两态折叠发夹的结构转变显示为具有负斜率的“撕裂”峰,表明发生了一次协同的单步去折叠转变39...
访问受限。请登录或开始试用以查看此内容。
讨论
镊取样品制备过程中的修饰与故障排除
克隆载体的选择。尽管此处描述的通用方案(图3)不需要特殊的克隆载体,但优选不含内在T7或T3启动子的载体,以便于转录时可通过PCR在所需位置引入启动子。
接头序列与长度。对接头的序列没有特定要求,但建议保持相近的 GC 与 AT 比例,避免使用同聚物序列和高度重复的序列。在已发表的研究中,两个接头通常保持相似的长度,使目标RNA结构大致位于中间位置。先前的研究表明,接头总长度在 500 至 10,000 个碱基对之间变化时,会对测得的动力学参数产生轻微影响46,47。
退火混合物的质量检测与定量。除了带有接头的预期RNA外,最终产物还包含未退火的DNA接头和RNA,以及其他副产物。纯化这些镊子分子既困难又不经济。取而代之的是,退火后的混合物可直接用于镊子实验,因为只有正确退火的核酸才能被连接到两...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了美国国家科学基金会(NSF)资助(MCB-1054449)以及奥尔巴尼大学RNA研究所跨学科合作 Pilot Research Program 项目对 PTXL 的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 微型镊子 | Steven B. Smith Engineering | http://tweezerslab.unipr.it | |
| 数据采集卡 | National Instruments | USB-6351 | |
| 视频采集卡 | National Instruments | PCI-1407 | |
| Labview 编程软件 | National Instruments | ||
| NI Vision Builder | National Instruments | ||
| 激光雕刻机 | Epilogue laser systems | Zing-16 | |
| PCR 纯化试剂盒 | Qiagen | 28104 | |
| MEGAscript T7 试剂盒 | Life Technologies | AM1334 | |
| MEGAclear 试剂盒 | Life Technologies | AM1908 | |
| 生物素-11-UTP | Thermo Fisher | FERR0081 | |
| T4 DNA 聚合酶 | New England Labs | M0203 | |
| 链霉亲和素包被微球 | Spherotech | SVP-20-5 | |
| 抗地高辛包被微球 | Spherotech | DIGP-20-2 | |
| 尺寸标准微球 | Spherotech | PPS-6K | |
| 聚酰亚胺胶带 | Kaptontape.com | KPPTDE-1 | |
| 2 号盖玻片 | Thermo Fisher | 12-543D |
参考文献
- Ashkin, A. Optical trapping and manipulation of neutral particles using lasers. Proceedings of the National Academy of Sciences of the United States of America. 94, 4853-4860 (1997).
- Maier, B. Using laser tweezers to measure twitching motility in Neisseria. Current opinion in microbiology. 8, 344-349 (2005).
- Wang, S., Arellano-Santoyo, H., Combs, P. A., Shaevitz, J. W. Measuring the bending stiffness of bacterial cells using an optical trap. Journal of visualized experiments JoVE. , (2010).
- Smith, S. B., Cui, Y., Bustamante, C. Overstretching B-DNA the elastic response of individual double-stranded and single-stranded DNA molecules. 271, Science. New York, N.Y. 795-799 (1996).
- Strick, T. R., Allemand, J. F., Bensimon, D., Bensimon, A., Croquette, V. The elasticity of a single supercoiled DNA molecule. 271, Science. New York, N.Y. 1835-1837 (1996).
- Bryant, Z., et al. Structural transitions and elasticity from torque measurements on DNA. Nature. 424, 338-341 (2003).
- Liphardt, J., Onoa, B., Smith, S. B., Tinoco, I., J,, Bustamante, C. Reversible unfolding of single RNA molecules by mechanical force. 292, Science. New York, N.Y. 733-737 (2001).
- Li, P. T. X., Vieregg, J., Tinoco, I. How RNA unfolds and refolds. Annu Rev Biochem. 77 (27), 21-24 (2008).
- Woodside, M. T., Garcia-Garcia, C., Block, S. M. Folding and unfolding single RNA molecules under tension. Current opinion in chemical biology. 12, 640-646 (2008).
- Cecconi, C., Shank, E. A., Bustamante, C., Marqusee, S. Direct observation of the three-state folding of a single protein molecule. 309, Science. New York, N.Y. 2057-2060 (2005).
- Shank, E. A., Cecconi, C., Dill, J. W., Marqusee, S., Bustamante, C. The folding cooperativity of a protein is controlled by its chain topology. Nature. 465, 637-640 (2010).
- Morin, J. A., et al. Active DNA unwinding dynamics during processive DNA replication. Proceedings of the National Academy of Sciences of the United States of America. 109, 8115-8120 (2012).
- Larson, M. H., Landick, R., Block, S. M. Single-molecule studies of RNA polymerase one singular sensation every little step it takes. Molecular cell. 41, 249-262 (2011).
- Wen, J. D., et al. Following translation by single ribosomes one codon at a time. Nature. 452, 598-603 (2008).
- Qu, X., et al. The ribosome uses two active mechanisms to unwind messenger RNA during translation. Nature. 475, 118-121 (2011).
- Pease, P. J., et al. Sequence-directed DNA translocation by purified FtsK. 307, Science. New York, N.Y. 586-590 (2005).
- Dumont, S., et al. RNA translocation and unwinding mechanism of HCV NS3 helicase and its coordination by ATP. Nature. 439, 105-108 (2006).
- Greenleaf, W. J., Woodside, M. T., Block, S. M. High-resolution, single-molecule measurements of biomolecular motion. Annual review of biophysics and biomolecular structure. 36, 171-190 (2007).
- Serganov, A., Nudler, E. A decade of riboswitches. Cell. 152, 17-24 (2013).
- Breaker, R. R. Prospects for riboswitch discovery and analysis. Molecular cell. 43, 867-879 (2011).
- Wan, Y., et al. Genome-wide measurement of RNA folding energies. Molecular cell. 48, 169-181 (1016).
- Dalgarno, P. A., et al. Single-molecule chemical denaturation of riboswitches. Nucleic acids research. 41, 4253-4265 (2013).
- Wood, S., Ferre-D'Amare, A. R., Rueda, D. Allosteric tertiary interactions preorganize the c-di-GMP riboswitch and accelerate ligand binding. ACS chemical biology. 7, 920-927 (2012).
- Brenner, M. D., Scanlan, M. S., Nahas, M. K., Ha, T., Silverman, S. K. Multivector fluorescence analysis of the xpt guanine riboswitch aptamer domain and the conformational role of guanine. Biochemistry. 49, 1596-1605 (2010).
- Greenleaf, W. J., Frieda, K. L., Foster, D. A., Woodside, M. T., Block, S. M. Direct observation of hierarchical folding in single riboswitch aptamers. 319, Science. New York, N.Y. 630-633 (2008).
- Frieda, K. L., Block, S. M. Direct observation of cotranscriptional folding in an adenine riboswitch. 338, Science. New York, N.Y. 397-400 (2012).
- Neupane, K., Yu, H., Foster, D. A., Wang, F., Woodside, M. T. Single-molecule force spectroscopy of the add adenine riboswitch relates folding to regulatory mechanism. Nucleic acids research. 39, 7677-7687 (2011).
- Li, P. T. X., Bustamante, C., Tinoco Jr, I. Unusual Mechanical Stability of A Minimal RNA Kissing Complex. Proc Natl Acad Sci USA. 103, 15847-15852 (2006).
- Li, P. T. X., Bustamante, C., Tinoco Jr, I. Real-time control of the energy landscape by force directs the folding of RNA molecules. Proc Natl Acad Sci USA. 104, 7039-7044 (2007).
- Tinoco Jr, I., Li, P. T. X., Bustamante, C. Determination of ther modynamics and kinetics of RNA reactions by force. Q Rev Biophys. 39, 325-360 (2006).
- Onoa, B., et al. Identifying kinetic barriers to mechanical unfolding of the T thermophila ribozyme. 299, Science. New York, NY. 1892-1895 (2003).
- Li, P. T., Tinoco Jr, I. Mechanical unfolding of two DIS RNA kissing complexes from HIV-1. J Mol Biol. 386, 1343-1356 (2009).
- Smith, S., Cui, Y., Bustamante, C. Optical-trap force transducer that operates by direct measurement of light momentum. Methods Enzymol. 361, 134-162 (2003).
- Stephenson, W., et al. The essential role of stacking adenines in a two-base-pair RNA kissing complex. J Am Chem Soc. 135, 5602-5611 (2013).
- Kaiser, C. M., Goldman, D. H., Chodera, J. D., Tinoco Jr, I., Bustamante, C. The ribosome modulates nascent protein folding. 334, Science. New York, NY. 1723-1727 (2011).
- Bizarro, C. V., Alemany, A., Ritort, F. Non-specific binding of Na+ and Mg2+ to RNA determined by force spectroscopy methods. Nucleic acids research. 40, 6922-6935 (2012).
- Bosaeus, N., et al. Tension induces a base-paired overstretched DNA conformation. Proceedings of the National Academy of Sciences of the United States of America. 109, 15179-15184 (2012).
- Berg-Sørensen, K., Power Flyvbjerg, H. spectrum analysis for optical tweezers. Rev Sci Instrum. 75, 594-612 (2004).
- Stephenson, W., et al. Combining temperature and force to study folding of an RNA hairpin. Phys Chem Chem Phys. 16, 906-917 (2014).
- Evans, E., Ritchie, K. Dynamic strength of molecular adhesion bonds. Biophys J. 72, 1541-1555 (1997).
- Dudko, O. K., Hummer, G., Szabo, A. Intrinsic rates and activation free energies from single-molecule pulling experiments. Phys Rev Lett. 96, 108101(2006).
- Dudko, O. K., Hummer, G., Szabo, A. Theory analysis, and interpretation of single-molecule force spectroscopy experiments. Proc. Natl Acad Sci USA. 105, 15755-15760 (2008).
- Li, P. T. X., Collin, D., Smith, S. B., Bustamante, C., Tinoco Jr, I. Probing the Mechanical Folding Kinetics of TAR RNA by Hopping, Force-Jump and Force-Ramp Methods. Biophys J. 90, 250-260 (2006).
- Elms, P. J., Chodera, J. D., Bustamante, C. J., Marqusee, S. Limitations of constant-force-feedback experiments. Biophysical journal. 103, 1490-1499 (2012).
- Li, P. T. X. Analysis of Diffuse K+ and Mg2+ Ion Binding to a Two-Base-Pair Kissing Complex by Single-Molecule Mechanical Unfolding. Biochemistry. 52, 4991-5001 (2013).
- Wen, J. D., et al. Force unfolding kinetics of RNA using optical tweezers. I. Effects of experimental variables on measured results. Biophys J. 92, 2996-3009 (2007).
- Manosas, M., et al. Force Unfolding Kinetics of RNA using Optical Tweezers II. Modeling Experiments Biophys J. 92, 3010-3021 (2007).
- Vilfan, I. D., et al. An RNA toolbox for single-molecule force spectroscopy studies. Nucleic acids research. 35, 6625-6639 (2007).
- Li, P. T. X. Formation of a metastable intramolecular RNA kissing complex by nanomanipulation. Soft Matter. 9, 3246-3254 (2013).
- Chen, G., Chang, K. Y., Chou, M. Y., Bustamante, C., Tinoco Jr, I. Triplex structures in an RNA pseudoknot enhance mechanical stability and increase efficiency of -1 ribosomal frameshifting. Proceedings of the National Academy of Sciences of the United States of America. 106, 12706-12711 (2009).
- Chen, G., Wen, J. D., Tinoco Jr, I. Single-molecule mechanical unfolding and folding of a pseudoknot in human telomerase RNA. 13, RNA. New York, N.Y. 2175-2188 (2007).
- Tinoco, I., Chen, G., Qu, X. RNA reactions one molecule at a time. Cold Spring Harbor perspectives in biology. 2, a003624(2010).
- Dudko, O. K., Graham, T. G., Best, R. B. Locating the barrier for folding of single molecules under an external force. Physical review letters. , 107-208301 (2011).
- Djebali, S., et al. Landscape of transcription in human cells. Nature. 489, 101-108 (2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
