本文介绍了一种靶向siRNA“泛素组”筛选方法,用于鉴定介导HIF1A低氧细胞反应的新型泛素及类泛素调控因子。 该方法可适用于任何具有可靠报告基因活性读数的生物学通路。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蛋白质与泛素及泛素样分子(UBLs)之间的翻译后修饰正逐渐成为一个动态的细胞信号转导网络,调控多种生物学通路,包括缺氧反应、蛋白质稳态、DNA损伤应答以及转录过程。 为了更深入地理解UBLs如何调控与人类疾病相关的通路,我们构建了一个包含1,186个siRNA双链池的人源siRNA“泛素组”文库,靶向所有已知和预测的UBL系统通路组分。该文库可用于多种表达不同生物学通路报告基因的细胞系进行筛选,以确定哪些UBL组分作为特定通路的正向或负向调控因子。 本文中,我们描述了一种利用该文库筛选HIF1A介导的缺氧细胞应答中泛素组调控因子的实验方案,采用基于转录的荧光素酶报告系统。 在正式筛选前,需首先进行初步的实验优化,以确立适合该细胞系的筛选参数,随后分三个阶段进行筛选:初筛、复筛和三筛/去卷积筛选。 相较于全基因组siRNA文库,靶向性siRNA文库的应用正日益广泛,其优势在于仅报告研究者最关注通路中的相关成员。 尽管siRNA筛选存在固有局限性,特别是由siRNA脱靶效应引起的假阳性结果,但通过一系列严谨设计的对照实验,仍可有效识别出真正的新调控因子,从而克服这些不足。
引言
蛋白质与泛素及泛素样分子(UBLs)的修饰构成一个广泛的生物化学系统,可调控多种生物学通路和应激反应。 UBLs 共价连接到靶蛋白后可产生多种结果,调节底物的稳定性、定位、功能或相互作用组1。 UBL 修饰的酶促反应步骤最初在泛素中被确立,现已成为大多数 UBLs(包括 SUMO、NEDD8、ISG15 和 FAT10)修饰的范式。 修饰发生时,首先由 E1 激活酶激活 UBL 双甘氨酸基序的羧基,形成高能硫醇中间体,随后转移至 E2 结合酶活性位点的半胱氨酸上。 然后,E2 与结合底物的 E3 连接酶相互作用,介导 UBL 转移至(通常为)靶向赖氨酸残基,形成支链(异肽键)连接2。 可进行多轮连续修饰,在底物上构建异肽链;对于泛素而言,可通过其七个赖氨酸中的任意一个,或通过其N端甲硫氨酸形成线性泛素链。 这些修饰形成具有不同功能的特定拓扑结构,例如产生新的相互作用基序,或在特异性蛋白酶切除 UBL 之前将蛋白质靶向降解。 以泛素为例,存在两种 E1 酶、30–40 种 E2 结合酶、至少 600 种 E3 连接酶以及约 100 种去泛素化酶(DUBs)。 尽管其他约 10 种 UBLs 的通路相对简单,但整体泛素化系统的复杂性赋予了特定 UBL 修饰在生物学效应上的巨大多样性。 然而,尽管 UBL 生物学已取得重大进展,这些泛素化组分中大多数在细胞内的确切功能仍不清楚。
由于短干扰核糖核酸(siRNA)能够特异性靶向细胞内的mRNA并促使其降解,从而可在不同生物学背景下研究单个基因的功能,因此siRNA已成为反向遗传学中一种强有力的工具3。全基因组筛选已被用于鉴定和验证多种细胞过程中的新调控因子,并为更广泛的科学界提供了大量有价值的数据。 然而,尽管全基因组筛选已被证明极为有用,但靶向筛选正变得越来越受欢迎,因为其成本更低、速度更快、数据管理负担更小,且仅聚焦于研究者最感兴趣的基因组成员。 因此,为了更深入地理解UBL家族组分所参与的细胞过程,我们构建了一个针对已知及预测的泛素组(ubiquitome)全部组分的人源siRNA文库。 该文库包括UBL蛋白、E1激活酶、E2结合酶、E3连接酶、含泛素结合结构域(UBD)的蛋白以及去泛素化酶(DUBs)。 该文库可用于针对多种不同生物学问题的报告细胞系进行筛选,从而无偏倚地鉴定出调控这些通路的新型UBL组分。
以下实验方案描述了如何开展严格的靶向siRNA泛素化组筛选,以鉴定HIF1A依赖性缺氧应答中的新型调控因子。 在正常氧张力下,HIF1A会发生脯氨酰羟基化,从而被Von Hippel Lindau(VHL)E3连接酶复合物识别并靶向降解4。 缺氧会抑制脯氨酰羟基化,导致HIF1A稳定,并进一步结合缺氧反应元件(HREs),驱动基因表达。本文描述了一种利用U20S骨肉瘤细胞进行的筛选,该细胞稳定表达由三个串联拷贝的缺氧反应元件(Hypoxia Response Element, HRE)驱动的萤火虫荧光素酶(U20S-HRE细胞)5。 若能够获得可靠的报告基因活性读数,并可结合适当的阳性和阴性对照,则本方案可适用于任何生物学通路的研究。
访问受限。请登录或开始试用以查看此内容。
方案
1. 检测开发阶段
注意:在启动siRNA筛选之前,必须进行检测方法开发阶段,以确定使用报告细胞系进行筛选的重要参数。此阶段需要投入大量精力,因为这将为后续筛选的成功奠定基础。
- 为表征U20S-HRE报告细胞系对缺氧的响应性,接种2 x 75 cm²培养瓶2 在添加了10% FBS的杜尔贝科改良伊格尔培养基(DMEM)中,将U20S-HRE细胞培养至80-90%汇合度。
- 从一个细胞培养瓶中吸除培养基,用 10 ml PBS 洗涤两次,加入 2 ml 0.05% 胰蛋白酶-EDTA 溶液消化细胞,并于 37 °C 5 分钟后,将细胞重悬于 8 ml DMEM 10% FBS 中,并反复吹打以形成均匀的细胞悬液。
- 移液器 20 μl 将悬液取等量两份加入细胞计数室,插入自动细胞计数仪中。在细胞计数仪软件中点击“显示图像”,确保细胞处于对焦状态。点击“计数”,记录细胞密度。对另一份重复样进行相同操作,并计算平均细胞密度。用含10%胎牛血清的DMEM将细胞稀释至浓度为60,000个细胞/ml。
- 使用多通道移液器,加入 100 μl (6,000 个细胞) 稀释后的细胞加入相同的三列中例如 A5-H5、A6-H6 和 A7-H7)的 5 块无菌白色壁 96 孔检测板中,并转移至湿润的 37 °C 5% CO₂ 培养箱2 过夜。注意:这些培养板将用于测定不同缺氧暴露时间(0 小时、2 小时、6 小时、10 小时和 24 小时)下的缺氧依赖性荧光素酶输出。
- 次日结束时,记录时间,并将24小时低氧组培养板放入设定为1%氧气的低氧工作站中。次日早晨,计算24小时组培养板从低氧工作站取出前10小时、6小时和2小时的具体时间;在对应时间点,分别将10小时、6小时和2小时组培养板加入低氧工作站。
- 配制30 ml 2倍浓缩的荧光素酶裂解/检测缓冲液(50 mM Tris磷酸盐,pH 7.8;16 mM MgCl₂;7 mM 1,4-二硫苏糖醇;0.2% Triton X-100)2;2 mM DTT;2% Triton-X-100;30% 甘油;1 mM ATP;1% BSA;0.25 mM 荧光素 8 μM Na4P2O7)。注意:请按照所列顺序添加组分,并在加入荧光素和 Na 之前,确保 BSA 至少溶解 30 分钟4P2O7.
- 在适当的时间从低氧工作站中取出所有培养板。添加 100 μl 向检测板的相应孔中加入 2x 荧光素酶裂解/检测缓冲液,并用透明封膜覆盖。将板置于板式摇床上,以 500 rpm 振摇 10 分钟,充分裂解细胞。
- 将板堆转移至自动化的96孔板化学发光仪支架中。在“Protocols”菜单下选择“abs 595”,然后在“well selection”菜单下的屏幕板图中选中所有需要读取的孔。点击“run”以测量每个孔的发光值,随后计算每块板的平均读数。通过将每块缺氧板的平均读数除以常氧(0小时缺氧)对照板的平均读数,计算报告基因活性的缺氧依赖性倍数增加。注意:为适用于筛选,必须观察到显著的缺氧依赖性荧光素酶反应。报告基因活性增加5至10倍被视为优良。
- 制备一张主控板,其中包含四孔高表达对照(HIF1A siRNA)重复孔(A1-D1),四孔低表达对照(FIH1 siRNA)重复孔(A12-D12),四孔仅缓冲液对照重复孔(E1-H1),以及四孔非靶向siRNA对照重复孔(E12-H12),所有siRNA文库的浓度均为200 nM。注意:高表达和低表达对照是基于已知可分别增强和抑制缺氧反应的通路调控因子所确立的。或者,也可使用文库中的部分样本进行检测方法开发,以确定合适的对照。
- 使用多通道移液器转移 10 μl 每种对照 siRNA 加入无菌白色壁板中。制备转染混合物 0.1 μl 转染试剂在 10 μl 每孔加入低血清培养基(1:100),并转移 10 μl 向每个对照孔中加入转染混合物,轻轻吹打混匀,将培养板静置20-60分钟,以使转染复合物形成。
- 将第二个烧瓶中的 U20S-HRE 细胞制备成浓度为 75,000 个细胞/ml 的细胞悬液。使用多通道移液器加入 80 μl (6,000 个细胞) 细胞悬液加入各转染混合物中。将培养板转移至湿润的 37 °C 5% CO₂ 培养箱2 孵育24小时后,转移至低氧工作站继续培养24小时,随后按照步骤1.6-1.8所述进行荧光素酶检测。
- 使用公式 Z = 1 – [3 × (高对照标准差 + 低对照标准差) / (高对照均值 – 低对照均值)] 计算高对照和低对照的Z因子。注意:Z因子在0.5–1之间表示实验质量优异,应尽可能达到该范围。
2. 初筛
注意:一旦确定了检测开发阶段的这些基本条件,即可采用以下方案,在96孔板中以三复孔形式进行初筛。
- 培养 7 x 75 cm2 将U20S-HRE细胞接种于添加了10% v/v胎牛血清(FCS)的DMEM培养基中,培养至80-90%汇合度。
注意:以下步骤 2.2–2.13 应在第 1 天完成。 - 通过制备含有主控板的复制1开始 200 μl 按照步骤1.9所述准备每种对照,并将siRNA泛素组文库的稀释系列解冻至少30分钟。注意:每个孔包含4种siRNA的混合物,共组装于17块96孔板中,其中第1列和第12列留空用于对照。
- 在超净工作台中,使用数字1-17对17个带盖的无菌白色壁板检测板进行标记(或条形码编号),分别对应siRNA文库系列中的每一块板。
- 离心主控板和siRNA泛素组文库,短暂离心(2,000 × g,1分钟),以确保所有siRNA聚集于孔底。
- 使用自动化液体分配器进行机器人“点样” 10 μl 从主控板上将每种对照品使用同一96孔吸头架分别转移至17块检测板中。
- 为每块文库板(共17块)使用新的96孔吸头盒,进行转移 10 μl 使用自动液体分配器将每种泛素化组siRNA加入对应的检测板中。
- 根据1.10中确定的比例,为17块检测板配制40 ml转染试剂。注意:此体积额外包含20 ml,以补偿细胞分配器中的“死体积”。“死体积”指细胞分配器管路系统内始终存在的液体体积。
- 使用自动细胞分配器进行转移 10 μl 向17块检测板的每孔中加入转染试剂。将检测板置于摇床上短暂振荡(500 rpm,1分钟),使siRNA与转染试剂充分混合,随后于室温静置20–60分钟,以形成siRNA:转染试剂复合物。
- 洗涤两块75 cm的培养瓶2 用 10 ml PBS 将 U20S-HRE 细胞培养瓶清洗两次,并加入 2 ml 胰蛋白酶-EDTA 消化细胞 37 °C 孵育5分钟。向每个培养瓶中加入8 ml含10% FBS的DMEM培养基,反复吹打数次以形成均匀的细胞悬液。合并两个培养瓶中的细胞,转移至一个无菌的50 ml塑料离心管中。
- 通过移液计算细胞浓度 20 μl 将细胞重复加入细胞计数板,使用自动细胞计数仪读取两次数据,计算平均细胞浓度,具体操作如步骤1.3所述。
- 在无菌塑料容器中,用含10% FBS的DMEM稀释细胞,制备155 ml细胞悬液,使细胞浓度为每毫升75,000个细胞。注意:此体积足够用于17块培养板,并额外包含25 ml细胞分配器的死体积。
- 在细胞悬液中加入无菌磁力搅拌子,并置于超净工作台内的搅拌器上,以减少细胞聚集。用细胞悬液平衡自动分液器,并设置其分液程序 80 μl 每孔细胞数(6,000 个细胞)。
- 依次将17块培养板放置于自动细胞分配仪上,分配细胞。记录时间,将培养板每5块叠为一叠,然后将叠放好的培养板放入湿润环境中 37 °C 5% CO₂ 培养箱2 24 小时。注意:siRNA 混合物的终浓度为 20 nM。 100 μl 总体积
注意:以下步骤 2.14–2.15 应在第 2 天进行。 - 在第2天启动第二次重复实验,操作步骤参照第1天重复实验1(2.2-2.13)的方案。
- 转染24小时后,在无菌环境下将第1组重复实验的培养板转移至设定为1%氧气的缺氧工作站中,孵育24小时以诱导HRE报告基因表达。
注意:以下步骤 2.16–2.20 应在第 3 天进行。 - 启动第三次重复实验,按照第1天中重复1(2.2–2.13)所述步骤进行。
- 转染24小时后,在无菌环境中将2号重复组的培养板转移至设定为1%氧气的低氧工作站,孵育24小时以诱导HRE报告基因表达。
- 在从低氧工作站中取出第1组重复培养板前2小时,按1.6节所述配制200 ml的2×荧光素酶裂解/检测缓冲液。注意:该体积额外包含20 ml,以确保缓冲液储液槽始终被充分覆盖。
- 在24小时低氧暴露后,从低氧工作站中取出第1组重复实验板,使用自动液体分配器加入 100 μl 向每个检测板中加入2倍体积的荧光素酶裂解/检测缓冲液,并用透明膜覆盖。
- 将培养板置于细胞振荡器上,以500 rpm振荡10分钟,充分裂解细胞。依次将每块培养板转移至发光仪板式读数仪中,按照步骤1.8所述记录发光信号。
注意:以下步骤 2.21–2.22 应在第 4 天进行。 - 转染24小时后,在无菌环境下将第3组重复实验的培养板转移至氧浓度设定为1%的缺氧工作站中,孵育24小时以诱导HRE报告基因表达。
- 按照重复组1所用的步骤2.18-2.20,读取重复组2的平板。
注意:以下步骤 2.23 应在第 5 天进行。 - 按照步骤2.18-2.20对重复组3的培养板进行读数,该步骤与重复组1所用步骤相同。
- 汇总初筛的3次重复实验结果,使用1.12中给出的公式计算每块板的Z因子。注意:若任何一块板的Z因子低于0.5,建议重新进行该块板的实验以提高数据质量。
- 使用以下公式计算高值和低值对照的变异系数(CV):100 × 对照的标准差 / 对照的平均值。注意:CV 应尽可能低,通常可接受的变异范围为 10-15%。如果变异显著高于此范围,建议重复进行该板实验。
- 通过以下公式计算每块板上每个siRNA的激活百分比:[(高值对照均值 – siRNA评分) / (高值对照均值 – 低值对照均值)] × 100。此外,使用公式[样本数据/非靶向对照(NT)均值]计算每个siRNA的非靶向(NT)倍数。对激活百分比和NT倍数分别计算三个重复的平均值,并汇总所得数值。
- 使用原始数据,通过以下公式计算斯皮尔曼等级相关系数(SRCC),以确定三个重复平板之间的相关程度:
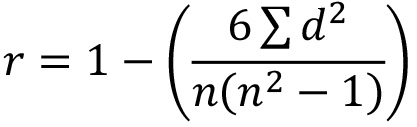
其中,r = SRCC;d = 每对秩次中两个数值之间的差值;n = 数据对的数量。注意:平板重复之间的良好相关性将得到接近1的值。若某一重复平板相对于其他两个平板显示出较低的SRCC,应进一步调查,并考虑重复该平板实验。 - 确定哪些 siRNA 具有足够的重要性以进行二次筛选(最多 80 个)。采用用户自定义的阈值例如 选择所有激活率低于5%或高于95%,或NT倍数变化小于0.5或大于1.5的siRNA,或应用生物信息学方法或基于知识的推理,筛选出位于同一UBL通路内的显著siRNA簇。注意:通常结合上述多种方法来确定进入二次筛选的siRNA。
3. 二次筛选
注意:根据初筛结果中最多80个感兴趣的siRNA进行验证性二次筛选。每个重复可方便地接种于一块96孔板上,并包含与初筛相同的完整对照(见2.2节)。验证初筛中鉴定出的调控因子是否可重复地引发相同的表型非常有用,这有助于优化分类决策,确定哪些阳性结果应进入最终的三级/去卷积筛选。
- 在含10% FBS的DMEM培养基中,将1个75 cm2 培养瓶的U20S-HRE细胞培养至80–90%融合度。
- 记录初筛中阳性结果的孔板编号及位置,并规划其在用于二次筛选的挑取主板上的新位置,预留第1列和第12列用于对照。按照步骤1.9制备对照主板,但每种对照总体积为50 μl。
- 解冻泛素组文库的第二套稀释系列(预留用于挑取单个siRNA混合物),解冻时间至少30分钟。短暂离心板子(2,000 × g离心1分钟),然后将50 μl二次筛选用siRNA加入挑取主板上的对应新位置。
- 采用与初筛相同的基本实验流程进行二次筛选,但作如下修改:(a) 在同一天内完成全部三个重复,每个重复使用一块独立的检测板;(b) 相应调整各试剂的使用体积。
4. 三级/去卷积筛选
注意:三级筛选或去卷积筛选通常从二次筛选中选出最多20个siRNA进行。该步骤旨在检测原始四联混合物中每个单独siRNA介导的基因敲低效应。通常情况下,来自同一混合物的至少两个独立siRNA双链应能引发相同的表型,方可较为可信地认为所观察到的表型并非由siRNA脱靶效应所致。为进一步提高本阶段结果的可信度,可针对目标基因额外设计并测试其他独立的siRNA双链,以验证其是否能够引发相同的表型。这些实验结果可用于计算H分数,其中H ≥ 0.6时(即 其中至少5个独立的siRNA中有3个能引发表型的情况被视为可接受6.
- 在 DMEM 培养基中添加 10% FBS,将一皿 75 cm2 的 U20S-HRE 细胞培养至 80–90% 汇合度。
- 通过规划三级筛选主板上每个命中靶点的四个独立 siRNA 双链体的位置,制定三级筛选的板图,将第 1 列和第 12 列留空用于对照。按照步骤 1.9 准备对照主板,但每种对照总体积为 50 μl。
- 解冻去卷积/单个 siRNA 板,根据板图(4.2)将 50 μl 的单个 siRNA(200 nM)加入三级筛选主板的每个孔中,以实现三个 10 μl 的重复以及约 20 μl 的富余量。
- 采用与初筛相同的基本实验流程进行三级筛选,但作如下修改:(a)在同一天内对每个重复使用一块独立的检测板完成全部三个重复;(b)相应调整试剂的使用体积。
注意:理想情况下,单个siRNA双链的阈值应与pool的阈值设定为相同的严格度 cutoff。然而,在可接受的情况下,单个siRNA的阈值可放宽10%-20%,特别是当至少有另一个双链位于设定阈值范围内时。值得注意的是,单个siRNA的作用效果可能低于pool的效果;相反,在某些情况下,单个siRNA单独存在时对细胞表型的影响可能强于其在pool中的表现(即使已考虑浓度因素)。
访问受限。请登录或开始试用以查看此内容。
结果
在开始筛选之前,需先确定 U20S-HRE 细胞对缺氧的响应性。U20S-HRE 细胞表达一种报告基因构建体,该构建体包含三个串联的缺氧反应元件(HRE)下游融合的萤火虫荧光素酶基因,当细胞处于缺氧环境时,HIF1A/HIF1B 异源二聚体可结合于该元件(图 1A)。将细胞置于缺氧工作站中处理不同时间,以确定最适合筛选的缺氧暴露时长。U20S 细胞中 HIF2A 表达水平较低,因此荧光素酶信号主要依赖于缺氧介导的 HIF1A 稳定化7。U20S-HRE 细胞在缺氧条件下分别暴露 0 小时、2 小时、4 小时、6 小时和 24 小时后,荧光素酶活性呈现缺氧依赖性的诱导升高(图 1B)。其中,缺氧暴露 24 小时可诱导活性升高约 10 倍(图 1B),因此该条件适用于 siRNA 筛选。
为建立合适的高值和低值对照,使用针对 HIF1A 和 FIH1 的 siRNA 对 U20S-HRE 细胞进行反向转染。细胞转染对照 24 小时后,再暴露于低氧环境 24 小时,...
访问受限。请登录或开始试用以查看此内容。
讨论
在哺乳动物细胞中进行全基因组范围的siRNA筛选已被证明在鉴定特定生物通路的新型调控因子方面具有极高的价值。本文中,我们描述了利用靶向泛素化相关基因的siRNA筛选方法,以鉴定介导HIF1A在缺氧条件下细胞应答的调控因子。 靶向筛选正变得越来越有吸引力,因为这类筛选通常成本更低、耗时更短、易于管理,并且仅报告研究者感兴趣的通路组分 7, 10, 11。
在检测方法开发阶段必须投入大量工作,以确保基础细胞报告系统适用于筛选,并能够实现良好的重复性和低变异性。 同时,选择稳健的阳性和阴性对照也至关重要,以便建立一个清晰的信号窗口,使文库中的调控因子能够落入该范围内。 此外,这些对照可在每次筛选的每块检测板中作为内部对照,有助于快速识别单个检测板可能出现的任何问题。
高通量筛选中一个常见问题是边缘效应,这可能是由于培养板外周孔与内部孔之间局部湿度差异所导致。 设置适当的对照并绘制培养板结果的热图有助于识别这一问题。 我们发现,通过在培养板底...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作由惠康基金会、葛兰素史克(GSK)以及苏格兰细胞信号研究所(现为英国医学研究理事会蛋白质磷酸化与泛素化研究单元的一部分)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 自动化液体分配器 | Fluid-X | XPP-721 | http://www.fluidx.eu/BIOTRACK/xpp-721-liquid-handling-system.html |
| 白色壁板检测板 | Greiner Bio One | 655083 | http://www.greinerbioone.com/en/row/articles/catalogue/article/37_11/13221/ |
| 透明板膜 | Perkin Elmer | 1450-461 | http://www.perkinelmer.co.uk/Catalog/Product/ID/1450-461 |
| siRNA文库 | Thermo Scientific | On-Target Plus | http://www.thermoscientificbio.com/rnai-and-custom-rna-synthesis/sirna/on-targetplus-sirna/search-gene/ |
| 转染试剂 | Invitrogen | Lipofectamine RNAimax | http://www.invitrogen.com/site/us/en/home/Products-and-Services/Applications/Protein-Expression-and-Analysis/Transfection-Selection/lipofectamine-rnaimx.html |
| 减血清培养基 | Invitrogen | Optimem | http://products.invitrogen.com/ivgn/product/31985062?ICID=search-product |
| DMEM | Invitrogen | 41965-039 | http://products.invitrogen.com/ivgn/product/41965039# |
| FBS | Invitrogen | 16000-044 | https://products.invitrogen.com/ivgn/product/16000044?ICID=search-product# |
| 胰蛋白酶-EDTA | Invitrogen | 25300-054 | https://products.invitrogen.com/ivgn/product/25300054?ICID=search-product# |
参考文献
- Hochstrasser, M. Origin and function of ubiquitin-like proteins. Nature. 458, 422-429 (2009).
- Schulman, B. A., Harper, J. W. Ubiquitin-like protein activation by E1 enzymes: the apex for downstream signalling pathways. Nat Rev Mol Cell Biol. 10, 319-331 (2009).
- Siomi, H., Siomi, M. C. On the road to reading the RNA-interference code. Nature. 457, 396-404 (2009).
- Kaelin, W. G., Ratcliffe, P. J. Oxygen sensing by metazoans: the central role of the HIF hydroxylase pathway. Mol Cell. 30, 393-402 (2008).
- Melvin, A., Mudie, S., Rocha, S. The chromatin remodeler ISWI regulates the cellular response to hypoxia: role of FIH. Mol Biol Cell. 22, 4171-4181 (2011).
- Bhinder, B., Djaballah, H. A simple method for analyzing actives in random RNAi screens: introducing the "H Score" for hit nomination & gene prioritization. Comb Chem High Throughput Screen. 15, 686-704 (2012).
- Bett, J. S., et al. The P-body component USP52/PAN2 is a novel regulator of HIF1A mRNA stability. Biochem J. 451, 185-194 (2013).
- Zhang, J. H., Chung, T. D., Oldenburg, K. R. A Simple Statistical Parameter for Use in Evaluation and Validation of High Throughput Screening Assays. J Biomol Screen. 4, 67-73 (1999).
- Birmingham, A., et al. Statistical methods for analysis of high-throughput RNA interference screens. Nat Methods. 6, 569-575 (2009).
- Stagg, H. R., et al. The TRC8 E3 ligase ubiquitinates MHC class I molecules before dislocation from the ER. J Cell Biol. 186, 685-692 (2009).
- Zhang, Y., et al. RNF146 is a poly(ADP-ribose)-directed E3 ligase that regulates axin degradation and Wnt signalling. Nat Cell Biol. 13, 623-629 (2011).
- Jackson, A. L., et al. Expression profiling reveals off-target gene regulation by RNAi. Nat Biotechnol. 21, 635-637 (2003).
- Birmingham, A., et al. 3' UTR seed matches, but not overall identity, are associated with RNAi off-targets. Nat Methods. 3, 199-204 (2006).
- Whither RNAi. Nat Cell Biol. 5, 489-490 (2003).
访问受限。请登录或开始试用以查看此内容。
重印与许可
