理解环境异质性在物种共存中的作用通常集中在群落物种组成外部的异质性类型上。我们提供了利用经历植物-土壤反馈调控的土壤来创建土壤异质性处理的新颖且详细的方法,即与群落组成相关的内在异质性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
共存理论通常将环境异质性视为独立于群落组成;然而,生物反馈(如植物-土壤反馈,PSF)对植物表现具有显著影响,并产生依赖于群落组成的环境异质性。要理解PSF在植物群落构建中的重要性,除了平均PSF效应外,还需理解异质性在PSF中的作用。本文描述了一种调控植物诱导的土壤异质性的实验方案。我们展示了两个示例实验:(1)在田间设置6个土壤斑块的网格,用于测量植物种群的响应;(2)在温室中设置2个土壤斑块,用于测量单株植物的响应。土壤可采集自田间同种或异种植物根系影响区(包括根际及紧邻根际的土壤)。为避免土壤样本的伪重复,需进行多次重复采样。随后将这些土壤分别置于独立斑块中以构建异质性处理,或混合后用于均质化处理。应注意确保异质性和均质化处理所经历的土壤扰动程度相同。之后将植物种植于这些土壤处理中,以评估植物诱导的土壤异质性对植物表现的影响。我们证明,植物诱导的异质性导致的结果与传统共存模型的预测不同,这可能是由于这些反馈具有动态特性。未来需要发展整合了受群落构建过程影响的环境异质性的理论,并开展更多实证研究,以明确当群落内在的异质性与群落组成无关的外在异质性相比,何时会导致不同的群落构建结果。
引言
群落生态学的主要目标之一是解释和预测群落构建过程。然而,植物群落的多样性通常高于共存理论所预测的水平1,而恢复生态学家需要理解共存机制,才能成功恢复多样化的本地群落2。环境异质性是一种理论上重要的机制,有助于解释高水平的群落多样性,但针对异质性的实验操作较为少见3,且主要集中于非生物异质性(例如,参见Lundholm4的综述)。包含异质性的理论通常假设异质性是群落构建过程中的外源性因素。外源性异质性由景观类型等独立于群落组成的因素所决定。外源性异质性可通过生态位分化促进物种共存(参见Melbourne et al.3的综述,例如 Pacala 和 Tilman5 以及 Chesson6)。然而,与植物群落相关的大部分环境异质性可能是群落内源性的,即在群落构建过程中逐渐形成,并依赖于群落中物种的组成。内源性异质性可源于生物反馈作用,这种反馈可通过负频率依赖性促进物种共存(例如 Bever et al.7)。本文中,我们描述了一种操纵植物诱导的土壤异质性的新方法,这是一种源于植物-土壤反馈、具有群落内源性的土壤异质性类型。
植物-土壤反馈(PSF)是指植物通过影响土壤结构、化学性质或生物群落,进而影响后续植物在该土壤中的生长表现;在本地植物群落中,PSF对植物生长表现具有显著的平均效应8。关于PSF的研究通常采用从野外采集土壤或通过实验处理土壤的方法,然后比较植物在同种植物来源土壤与异种植物来源土壤或灭菌土壤中的生长表现9。若植物在同种植物来源土壤中的表现优于对照土壤,则PSF为正向;若植物在对照土壤中表现更优,则PSF为负向。相互的负向PSF可导致物种间的频率依赖性共存7。尽管PSF的平均效应已有较充分的研究描述8,但PSF在空间异质性方面的效应仍知之甚少10。
由于植物-土壤反馈(PSF)发生在单个植株的尺度上7,且植物在时空分布上常呈非随机性,因此PSF很可能导致土壤异质性,我们将这种异质性称为植物诱导的土壤异质性。与许多其他类型的异质性(例如景观地形)不同,这种异质性是群落构建过程中内在的特征,因此可能对群落组装产生不同于外在异质性的效应。为了理解此类异质性对植物生长表现和共存的影响,我们需要能够操控植物诱导的土壤异质性的实验方法。本文展示了一种此类方法,该方法利用两种植物物种驯化的土壤,构建一个包含两种不同来源土壤独立斑块的异质性处理,以及一个将两种来源土壤均匀混合的同质性处理。这种土壤混合可能至少对应于野外的两种合理情景:(1)扰动(例如啮齿动物活动、农业耕作)导致不同来源的土壤发生混合;或(2)两个物种的植物生长位置相近,使其根系影响区相互交错并趋于均质化。
我们展示了两个利用植物诱导的土壤异质性来回答不同生态组织层次关键问题的示例实验:(1)植物种群是否对植物诱导的土壤异质性产生响应?以及(2)单个植物是否对植物诱导的土壤异质性产生响应?我们描述了一项在野外进行的实验,使用6个土壤斑块来回答第一个问题;以及一项在温室中进行的实验,使用2个土壤斑块来回答第二个问题。量化植物种群和个体对土壤异质性的响应,对于理解异质性如何影响群落构建至关重要。
访问受限。请登录或开始试用以查看此内容。
方案
1. 采集野外土壤以制备异质性和均质性土壤处理
- 在相似生境和土壤类型中选择两种共同出现的植物物种作为研究对象(例如 图1a)。根据实验所用土壤样本的大小,确定所需土壤的量(例如 实验所需的土样量应为焦点物种主根区(即根团所包含的体积)的三分之一至二分之一,以及实验所需样方的数量(见下文方案2和方案3)。
- 对于 酸模属 种(spp.)图1a),使用尺寸为 10 cm × 10 cm × 18 cm(长 × 宽 × 深)的土壤区域,以近似模拟植物基部周围半径 10 cm、深度达 18 cm 的根区范围(5,655 cm³3 从单株植物根系影响的这一特定区域采集的土壤可得到3个土壤样本,每个体积为1,800 cm³3).
- 实地调查以定位两种目标物种的成年个体。避免选择根区可能与另一种目标物种重叠的个体例如 酸模属 位于其他物种0.25米范围内的个体)。用标记针标出为获取所需土壤量而需取样的个体数量。
- 标记每组随机选择的20个个体 酸模属 spp.,共20个实验单元(2个物种 × 2种土壤处理 × 5次重复),每个实验单元需要来自每个目标物种的3个土壤样本(如下方方案2所述)。
- 对土壤采集设备(铁锹、手套、运输容器)使用约1:10的漂白剂(5–10% NaClO)与水的混合液进行灭菌,以去除所有土壤颗粒。使用前将设备晾干,以避免漂白剂对土壤生物群的影响。使用实验室胶带为每件设备贴上标签,标明其将用于采集或运输的目标物种,以防止交叉污染。例如 为物种A和物种B分别标记一把铲子。
- 在开始土壤采集前,检查天气和土壤状况,避免在近期降水事件后采集过湿(泥泞或完全饱和)的土壤,或在降水过程中进行采样,以尽量减少土壤压实。同时避免采集过干(非常坚硬且难以插入铲子)的土壤,以便于后续将土壤与根系分离。
- 从两种目标物种的标记个体中采集田间土壤样本,每种采集多个独立批次,以避免伪重复(例如 单个含有稀有病原体的土壤样品随后在实验重复组间发生混合)
- 使用已适当标记的无菌铲子挖取物种A(按步骤1.1定义)个体的完整根区,用已适当标记的无菌手套去除土壤中可见的粗根,并将土壤放入已适当标记的无菌运输容器中例如 (桶)。对于每个区组包含4个实验单元的实验,且每个个体植株的根区土壤足以提供1个实验单元所需(如1.2.1节所述),则需对物种A的另外3个个体重复此操作。
- 对物种B重复第1.5.1节步骤。
- 将两种物种的重复土壤样品运送至实验地点。将土壤放入实验的第1区组中的实验单元(如以下协议2或协议3所述),每个区组包含各处理组合对应的实验单元即 每个物种 × 每种土壤处理
- 重复第1.5.3节
- 重复实验中其余样本块的1.5.1–1.5.4步骤。每次重复取样时,应从距离前次取样位置至少1米远的个体组中采集土壤,以尽量减少伪重复。

图 1. 操控植物诱导土壤异质性的野外实验设计示例。 (a)根据研究植物-土壤反馈效应的标准方案9,从野外同种植物(α)和异种植物(β)根系影响区采集土壤。 (b)将来自植物A的土壤(α土壤)和来自植物B的土壤(‘β’土壤)组合成异质性土壤处理,并按网格排列;均质化土壤处理则由这两种来源的土壤等量混合而成。在此示例中,将野外土壤网格插入埋入地下的大直径盆中,并在每个网格周围填充粗的灭菌沙子。该图改编自 Brandt et al.10
2. 一个创建异质性和均质性土壤网格以测量植物种群响应的野外实验示例
- 使用重复的野外土壤采集样品(方案1)制备异质性处理(即交替的网格单元中分别含有来自物种A或物种B的土壤)和均质性处理(即每个网格单元中含有物种A与物种B土壤按1:1比例混合的土壤)(图1b),用于本实验第1区组的以下操作步骤。
- 使用约1:10的次氯酸钠溶液(5–10% NaClO)与水的混合液对土壤操作器具(铲子、手套、塑料网格)进行灭菌,以彻底清除所有土壤颗粒。使用前将器具晾干,以避免漂白剂对土壤生物群的影响。使用实验室胶带为每件器具贴上标签,标明其专用于处理的目标物种土壤,防止交叉污染(例如,一把铲子专用于物种A,另一把专用于物种B),并为塑料网格标注其将用于异质性或均质性土壤处理。
- 将可移动的塑料网格放入埋入地下的花盆中(或其他足够容纳该网格的地块或容器),准备填入野外采集的土壤(例如,每个网格单元1,800 cm3,如步骤1.1.1所述)。使用按所需尺寸定制的网格,例如一个2×3的网格,共6个单元,每个单元的尺寸依据步骤1.1确定(图1b)。
- 对于交替土壤斑块类型的异质性处理,将来自物种A的土壤铲入标记为α土壤的网格单元,将来自物种B的土壤铲入标记为β土壤的网格单元(图1b)。
- 对于均质性处理,将物种A和物种B的土壤交替铲入每一个网格单元中,注意均匀分布两种土壤类型,避免形成分层现象(图1b)。以1,800 cm3的示例土壤斑块(第1.1.1节)为例,每个网格单元中应各加入900 cm3的两种土壤。
- 在制备异质性和均质性土壤处理时,应确保扰动程度一致(即将土壤团块破碎至相同程度),以避免土壤扰动程度的差异对土壤异质性效应造成混淆。
- 若大花盆内塑料网格外围仍存在空隙(如图1b所示),则用无菌沙填充该区域。采用任何标准方法对沙子进行灭菌(例如高压灭菌、γ射线辐照)。
- 将塑料网格垂直从花盆中取出,保持土壤斑块完整。此操作可使不同个体的根系在土壤中相互作用,并使每株植物能够接触多个斑块,这对于植物根系生长进入多个土壤斑块(即网格单元)至关重要。
- 对第二对实验单元重复步骤2.1.2–2.1.4,以构建一个完整的实验区组(即为每种目标物种分别准备一个异质性土壤网格和一个均质性土壤网格,共4个实验单元)。
- 对实验中剩余的区组,使用其余的土壤重复采集样品(方案1)重复步骤2.1。在整个实验区域中随机化区组及区组内的样地位置,如需要,可在样地周围铺设园艺地布,以最大限度减少外部植被造成的遮荫(图中未示出)。
- 将目标物种的种子种植到每个实验花盆的每个网格单元中(2种目标物种 × 2种土壤处理)。使用混合种子以避免植物基因型或种子表面微生物群落对土壤处理产生混杂效应。例如,将每种Rumex spp.的种子单独用可溶于水的胶水粘附在塑料牙签上,并在12个种植位置(每个网格单元2个位置)进行种植,以便清晰识别各个种植个体(图1a)。
- 通过定期普查标记的种子种植位置,测量实验单元的种群响应,如萌发率和存活率(例如,使用步骤2.3中的牙签标记法)。在测量任何响应指标时,应尽量减少对土壤的扰动,以防止不同斑块间的土壤混合。
- 根据目标物种预期的种群响应速率确定合适的普查间隔。例如,对于萌发较快的Rumex spp.,可进行每周一次的普查。
- 根据目标物种的生活史特征确定实验持续时间。例如,对于短寿命多年生的Rumex spp.,实验应至少持续2年,以获取所有生活阶段的数据。
3. 一个温室实验示例:利用盆栽中异质性和均质化土壤测量单个植物的响应
- 使用来自重复田间土壤采集(方案1)的土壤,为实验的第1区组制备异质性处理(即 每个花盆的一半填充从物种A或物种B采集的土壤)和均质性处理(即 花盆中含有物种A和物种B土壤的1:1混合物)(图2a),具体步骤如下。
- 在运输容器(例如 桶)中,在装盆前将每种物种采集的田间土壤与无菌沙子混合,制成1:1的混合物。这样做可减轻土壤压实并改善花盆中的排水,尤其有助于冲洗根系,便于将根系与土壤分离。使用任何标准方法(例如 高压灭菌、γ射线辐照)对沙子进行灭菌。
- 在将每批田间土壤与沙子混合时,确保产生相同程度的扰动(即 将土壤团块破碎至相同程度)。
- 使用约1:10的次氯酸钠溶液(5–10% NaClO)与水的混合液对土壤操作设备(铲子、手套、塑料板)进行灭菌,以去除所有土壤颗粒。使用前将设备晾干,以避免次氯酸对土壤生物的影响。使用实验室胶带标记每件设备,标明其将用于处理的目标物种的土壤,防止交叉污染(例如,一把铲子标记用于物种A,另一把用于物种B),并标记硬质塑料板的每一侧,以表明在异质性土壤处理中每侧将装填的土壤类型。
- 利用两种目标物种的田间土壤-沙子混合物(来自第3.1.1节)建立异质性土壤处理。
- 将硬质塑料板置于花盆中央,将花盆分为两半(图2a)。选择花盆尺寸,使其一半的体积等于适当的土壤斑块大小(步骤1.1)。例如,对于图1a中的Rumex spp.,使用直径15 cm、深度18 cm的花盆(总体积3,181 cm3)。
- 两名研究人员同时使用适当标记的铲子,将各自物种采集的田间土壤添加到花盆的相应一侧(例如 物种A的α土壤),在填充过程中保持两侧均匀。
- 通过垂直向上提起塑料隔板将其移除,使土壤斑块保持完整。这使得植物能够在同一花盆内接触两种土壤斑块,这是植物感知异质性的关键。
- 对另外3个实验单元重复第3.3.1–3.3.3节操作,以完成异质性土壤处理的一个完整区组(2个物种 × 异质性处理中的2种土壤斑块类型;图2)。
- 利用两种目标物种的田间土壤-沙子混合物(来自第3.1.1节)建立均质性土壤处理。
- 重复第3.3.1节操作。两名研究人员同时使用适当标记的铲子,将α和β土壤均匀添加到花盆的两侧,使两种土壤类型在每个斑块内均匀分布,并避免形成分层。然后重复第3.3.3节操作。
- 对第二个实验单元重复第3.4.1节操作,以完成均质性土壤处理的一个完整区组(每个目标物种各一个花盆)。
- 对实验中剩余的区组,使用剩余的土壤重复采集样本(方案1),重复步骤3.2–3.4。在温室台面上随机排列区组及区组内的小区。
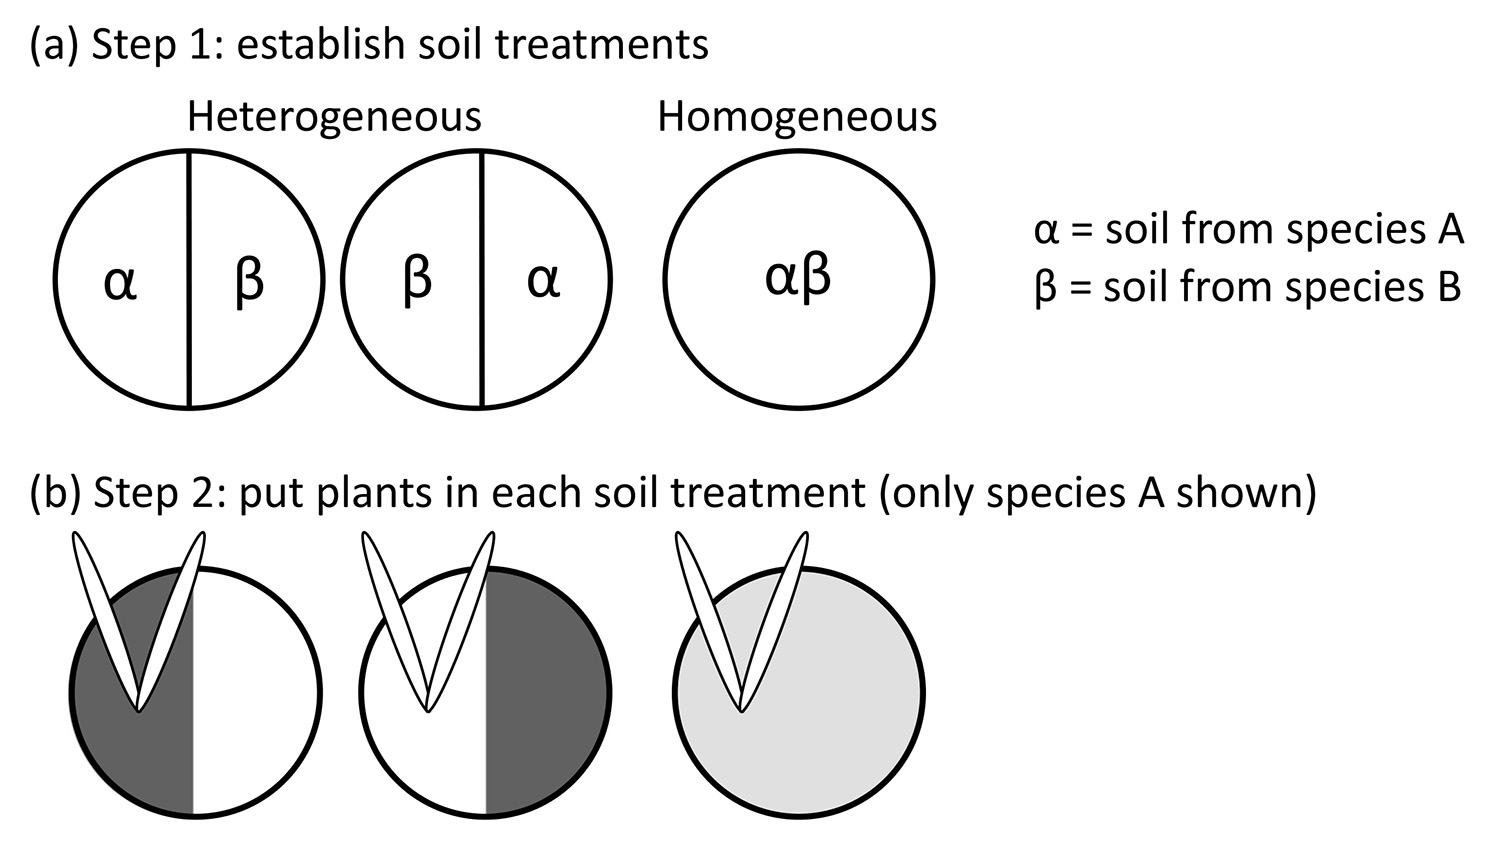
图 2. 操控植物诱导土壤异质性的温室实验设计示例。 (a)从野外物种 A 的根系影响区(α 土壤)和物种 B 的根系影响区(β 土壤)采集的土壤,分别放置于花盆的两个半区(非均质处理),或在整个花盆内混合均匀(均质处理)。(b)随后将物种 A 的植物种植到非均质处理的每种土壤斑块类型中,以及均质处理的一侧。此处仅显示一个物种(A)种植于该设计中。一个完全互作的设计应包括第二个目标物种(B)的植物,种植于每种土壤处理及非均质处理中的各类土壤斑块中。
- 将目标物种A和B的幼苗分别种植于每种土壤斑块类型中,采用析因设计(2个物种 × 3种土壤斑块类型 [α土壤、β土壤以及α与β土壤的均质混合物]); 图2b).
- 测量能够反映植物表现的任何个体植物响应指标,例如植株大小、生物量生产或功能性状。所测量的适宜性状取决于目标物种及关注的科学问题。
- 继续实验,直至植株相对于土壤斑块显得较大(例如 约1.5倍于土壤斑块宽度(针对莲座状生长的草本植物),以确保植物根系能够同时生长进入两个土壤斑块。因此,实验持续时间将取决于目标物种的生长速率。
- 在植物根系受限于花盆之前收获植物和/或测量响应指标(即 根系生长受限于花盆的空间,导致根系在盆底盘绕;若希望植株对土壤环境产生真实响应,则应避免此情况。例如,盆栽受限的植株根系不太可能像田间植株那样在整个土壤剖面中进行类似的觅养行为。
访问受限。请登录或开始试用以查看此内容。
结果
物种在种群和个体水平上对植物诱导的土壤异质性表现出多种响应方式(图3 和 图4),这对群落构建具有重要意义。为了确定植物种群是否响应植物诱导的土壤异质性,按照方案2在野外建立了实验,使用了三对近缘物种。在三个月内每周调查植物种群,计算播种种子的总萌发比例以及第一生长季中幼苗的总死亡比例(其中死亡率代表存活率的倒数)(图3)。我们发现植物种群对植物诱导的土壤异质性存在显著响应,表明本实验成功操控了影响植物种群的异质性环境。某些物种对土壤混合表现出非加和性响应,即在均质处理(αβ土壤斑块)中观察到的响应并非由构成该处理的两种土壤类型(α,即同种植物土壤斑块;β,即近缘种植物土壤斑块)单独作用的中间状态。例如,Solanum carolinense 在同种与近缘种土壤的均质混合环境中萌发率较低,而 Rumex crispus 的死亡率较高,相较于单独的任一土壤类型(图3)10。这些结果揭示了均质土壤环境可能促进物种共存的潜在机制:某一物种萌发减少或死亡...
访问受限。请登录或开始试用以查看此内容。
讨论
在自然群落中,植物诱导的土壤异质性极有可能存在,因为植物对其土壤环境以及后续生长于该土壤中的植物具有显著且常为物种特异性的效应(例如 Petermann 等13)。然而,我们对这种异质性在植物群落中所起作用的理解仍十分有限10,14。本文介绍一种通过在田间采集不同来源(即 不同物种根系影响区)的土壤来操控植物诱导土壤异质性的方法。该实验方案中的关键步骤在于避免将植物诱导的土壤异质性与其他影响植物响应的变量混杂,具体包括:(1)避免将从田间采集并放入实验单元的土壤样本出现伪重复;(2)确保放入异质性和均质性土壤处理中的田间土壤所受扰动程度相同。若异质性和均质性处理所用的土壤来自田间不同的个体植株或采样地点,则可能发生土壤样本的伪重复,这一问题可通过从空间分布较远的多个位置分批重复采样来避免(步骤 1.5)。例如,若田间某一植株根区存在一种稀有病原体,而该植株的土壤仅被用于两种土壤处理中的一种,则伪重复会影响研究结果。此外,田间采样点可能在管理方式、植被历史或土壤性质方面存在差异;因此,每个采样点的土壤应同时用于两种实验处理,并对潜在的混杂因素...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
感谢凯斯西储大学的Squire Valleevue和Valley Ridge农场,包括A. Locci、C. Bond和A. Alldridge,在建立共同园地过程中提供的帮助。J. Hooks、L. Huffman、L. Gonzales、S. C. Leahy、B. Ochocki、A. Ubiles、C. Yu、X. Zhao和N. M. Zimmerman提供了野外协助。A.J.B.和J.H.B.的研究由J.H.B.在凯斯西储大学的启动资金支持。G.A.D.获得了由霍华德·休斯医学研究所资助、凯斯西储大学本科生暑期研究项目提供的资助。本研究还得到了美国国家科学基金会对J.H.B.的资助(项目编号:DEB 1250170)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 铁铲 | 任意 | NA | 最好准备至少两把铁铲,每种来源土壤各用一把。 |
| 小铲子 | 任意 | NA | 必须准备至少两把相同尺寸的小铲子,每种来源土壤各用一把。 |
| 手套 | 任意 | NA | 可使用园艺手套。 |
| 稀释漂白剂 | 任意 | NA | 我们使用约1:10比例稀释的家用漂白剂(含5-10% NaClO)与水混合,用于在采集不同土壤之间对所有设备进行灭菌。 |
| 塑料网格 | 任意 | NA | 定制。我们在田间实验中使用的网格由温室墙体施工用的塑料板材制成。但任何可塑性强的硬质塑料均可使用。准备三个网格有助于在不需每次更换实验单元时都进行灭菌的情况下,实现互换的异质处理和同质处理。 |
| 塑料隔板 | 任意 | NA | 定制。我们使用硬质塑料板,裁剪至适合花盆最小宽度,使其能够滑入花盆底部,用于温室实验。若研究人员希望在不需每次更换实验单元之间对隔板进行灭菌的情况下,随机化区组内实验单元的填充顺序,则准备至少两块隔板(分别用于异质和同质处理)会更为方便。 |
| 桶或手推车 | 任意 | NA | 用于运输土壤的任何容器。 |
| 种子 | 任意 | NA | 我们通过手工在野外采集种子。如条件允许,也可从园艺供应商处订购种子。 |
| 塑料牙签 | Soodhalter Plastics, Inc. | 805KP | 在田间实验中,我们将单粒种子粘在牙签上进行播种,以便于监测个体的萌发和存活情况。 |
| 水溶性胶水 | Elmer's | Elmer's Glue-all | 任何水溶性胶水均可用于将种子粘附在塑料牙签上。 |
| 花盆 | 任意 | NA | 花盆尺寸取决于所用实验植物种类及所需土壤斑块数量(例如 2 或 6)。 |
| 沙子 | 任意 | NA | 可将粗砂与野外采集的土壤混合,以改善花盆中的排水性能。 |
| 实验室标签胶带 | 任意 | NA | 可用胶带标记处理土壤时所用设备的来源物种信息。 |
| 标记旗 | 任意 | NA | 可在采集土壤前使用标记旗在野外标识个体植株位置。 |
| 地布 | 任意 | NA | 在野外实验中可使用地布以最大限度减少实验样地外植物的生长。 |
参考文献
- Agrawal, A. A., et al. Filling key gaps in population and community ecology. Front. Ecol. Environ. 5, 145-152 (2007).
- Suding, K. N. Toward an era of restoration in ecology: successes, failures, and opportunities ahead. Ann. Rev. Ecol. Evol. System. 42, 465-487 (2011).
- Melbourne, B. A., et al. Invasion in a heterogeneous world: resistance, coexistence or hostile takeover. Ecol. Lett. 10, 77-94 (2007).
- Lundholm, J. T. Plant species diversity and environmental heterogeneity: spatial scale and competing hypotheses. J. Veg. Sci. 20, 377-391 (2009).
- Pacala, S. W., Tilman, D. Limiting similarity in mechanistic and spatial models of plant competition in heterogeneous environments. Am. Natural. 143, 222-257 (1994).
- Chesson, P. General theory of competitive coexistence in spatially-varying environments. Theor. Pop. Biol. 58, 211-237 (2000).
- Bever, J. D., Westover, K. M., Antonovics, J. Incorporating the soil community into plant population dynamics: the utility of the feedback approach. J. Ecol. 85, 561-573 (1997).
- Kulmatiski, A., Beard, K. H., Stevens, J. R., Cobbold, S. M. Plant-soil feedbacks: a meta-analytical review. Ecol. Lett. 11, 980-992 (2008).
- Bever, J. D., et al. Rooting theories of plant community ecology in microbial interactions. Trends. Ecol. Evol. 25, 468-478 (2010).
- Brandt, A. J., de Kroon, H., Reynolds, H. L., Burns, J. H. Soil heterogeneity generated by plant-soil feedbacks has implications for species recruitment and coexistence. J. Ecol. 101, 277-286 (2013).
- R: A language and environment for statistical computing. , Foundation for Statistical Computing. Vienna, Austria. (2012).
- Crawley, M. J. The R Book. , John Wiley & Sons, Ltd. (2007).
- Petermann, J. S., Fergus, A. J. F., Turnbull, L. A., Schmid, B. Janzen-Connell effects are widespread and strong enough to maintain diversity in grasslands. Ecology. 89, 2399-2406 (2008).
- Reynolds, H. L., Haubensak, K. A. Soil fertility, heterogeneity, and microbes: towards an integrated understanding of grassland structure and dynamics. Appl. Veg. Sci. 12, 33-44 (2009).
- Sokal, R. R., Rohlf, F. J. Biometry, 3rd edn. , W. H. Freeman. (1995).
- Klironomos, J. N. Feedback with soil biota contributes to plant rarity and invasiveness in communities. Nature. 417, 67-70 (2002).
- Mommer, L., van Ruijven, J., Jansen, C., van de Steeg, H. M., de Kroon, H. Interactive effects of nutrient heterogeneity and competition: implications for root foraging theory? Funct. Ecol. 26, 66-73 (2012).
- Felsenstein, J. Phylogenies and the comparative method. Am. Natural. 125, 1-15 (1985).
- Burns, J. H., Strauss, S. Y. More closely related species are more ecologically similar in an experimental test. Proc. Natl. Acad. Sci. U.S.A. 108, 5302-5307 (2011).
- Fukami, T., Nakajima, M. Community assembly: alternative stable states or alternative transient states. Ecol. Lett. 14, 973-984 (2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
