经颅磁刺激(TMS)已被证明是研究言语知觉中发音运动皮层作用的有用工具。 本文介绍了如何从唇部肌肉记录运动诱发电位(MEPs),以及如何通过重复性TMS干扰唇部运动表征。
本文内容
摘要
摘要
经颅磁刺激(TMS)已被证明是研究言语运动皮层在言语感知中作用的有力工具。研究人员已采用单脉冲和重复性 TMS 刺激运动皮层中的口唇代表区。通过在该皮层区域施加单次 TMS 脉冲,并利用贴附于口唇肌肉的电极记录 TMS 诱发的运动诱发电位(MEPs)(肌电图;EMG),可评估口唇运动代表区的兴奋性。较大的 MEPs 反映皮层兴奋性增强。研究表明,在聆听言语以及观察与言语相关的运动时,兴奋性均会升高。 TMS 还可用于干扰口唇运动代表区。15 分钟的低频阈下重复刺激可抑制运动兴奋性达 15–20 分钟。这种由 TMS 引起的口唇运动代表区干扰会损害后续高难度言语感知任务的表现,并调节听觉皮层对言语声音的反应。这些发现支持运动皮层参与言语感知的观点。本文介绍了如何定位运动皮层中的口唇代表区,以及如何确定适用于单脉冲和重复性 TMS 实验的适当刺激强度。
引言
言语感知是一项具有挑战性的技能,需要对复杂且高度可变的传入听觉信号进行编码。尽管听觉皮层在言语处理中起着关键作用这一点并无争议,但控制发音器官运动的运动区域是否参与其中(例如 言语产生过程中嘴唇的运动是否也参与言语感知,仍是当前积极研究和科学争论的课题1-5运动表征参与言语感知的观点并非新颖。根据利伯曼(Liberman)的言语感知运动理论6,7 听者通过模拟说话过程来感知言语 "预期的发音动作" 说话者的。TMS 已被证明是研究言语感知过程中构音运动皮层假设作用的有力工具(综述见 8)。本文重点介绍使用单脉冲和重复性经颅磁刺激(TMS)技术对唇部运动表征区进行刺激。
单脉冲经颅磁刺激为研究运动皮层与言语加工之间的关联提供了一种高效的方法8-10单个经颅磁刺激脉冲作用于初级运动皮层(M1)可诱发运动诱发电位(即 对侧目标肌肉中可通过肌电图(EMG)记录的运动诱发电位(MEPs)。从手部肌肉(第一背侧骨间肌;FDI)记录的MEPs约在刺激脉冲后24毫秒达到峰值,而从唇部肌肉(口轮匝肌;OO)记录的MEPs约在15毫秒达到峰值 脉冲后(参见 图1)。这反映了从运动皮层到唇部和手部肌肉的距离差异;投射至唇部的皮质-脑干通路比投射至手部的皮质-脊髓通路更短。诱发运动诱发电位(MEP)所需的脉冲强度在不同受试者之间存在显著差异,最可能的原因是神经解剖结构以及颅骨厚度的个体差异。11. 运动诱发电位(MEP)的幅值依赖于运动系统的功能状态,当目标肌肉处于收缩状态时,相同强度的刺激脉冲诱发的MEP幅值大于肌肉放松时的幅值。MEP测量为定位每位受试者不同肌肉的皮质表征区域以及在不同受试者之间标准化经颅磁刺激(TMS)强度提供了准确的方法。该方法还提供了一种直接的测量手段(即 运动兴奋性相对于某一感兴趣独立变量的MEP幅值。例如,单脉冲TMS研究显示,刺激唇部表征区可诱导出更大的MEP(即 听语音和观看与语音相关的唇部运动时兴奋性增强10,12,13一项结合正电子发射断层扫描(PET)与单脉冲经颅磁刺激(TMS)的研究表明,在听觉言语感知过程中,言语运动系统的兴奋性部分受到左侧后部额下回活动的调节14.
尽管单脉冲经颅磁刺激(TMS)可在言语感知过程中揭示运动系统的兴奋性变化,但无法表明运动皮层是否参与了言语加工。重复性经颅磁刺激(rTMS)可用于诱导暂时性干扰(即 "虚拟损伤") 在运动皮层15。这一点 "虚拟损伤" 该方法能够在对运动系统特定区域进行可控的短期干扰期间,研究言语感知。 "虚拟损伤" 由经颅磁刺激(TMS)引起的效应与患者的真实病灶不同,后者通常覆盖广泛的皮层区域,导致大脑随时间发生功能重组。患者研究通常将患者的行为与对照组进行比较,很少提供卒中或病灶发生前的基线行为表现信息。通过使用重复性经颅磁游戏副本(rTMS),可以考察受试者在有或无运动干扰条件下执行言语感知任务的能力,从而检验这些干扰是否影响任务表现。
亚阈值低频重复经颅磁刺激可用于暂时干扰口唇运动表征,已被用于研究发音运动皮层在言语感知中的作用16-18在这些实验中,采用了单相脉冲序列,因为已有研究表明,与 双相rTMS19. 以低于1 Hz的频率施加15分钟阈下单相TMS脉冲后,从嘴唇记录到的运动诱发电位(MEP)幅度减小 即 运动兴奋性受到抑制18. 这种rTMS诱导的干扰还会损害听者对发音部位不同的两个语音之间声学连续体进行范畴化感知的能力(例如 “ba”与“da”以及“pa”与“ta”的辨别)。唇部运动皮层受到干扰后表现受损,表明运动系统参与了言语感知过程。而手部运动表征的干扰则对语音范畴感知无影响。这些结果与早期研究发现一致:与难度、任务结构和反应类型相匹配的色彩辨别对照任务相比,对前运动皮层施加低频重复经颅磁刺激(rTMS)会损害被试在噪声背景下音素辨别任务中的表现。20这些研究表明,重复经颅磁刺激(rTMS)是探究可能支持言语产生与感知的听觉-运动环路的一种极为有效的方法。低频rTMS还可与神经影像技术结合使用,以进一步深入研究这一问题(见讨论部分)。
方案
1. 准备
- 要求参与者填写安全筛查表(参见 例如 21)。注意:具有经颅磁刺激(TMS)禁忌证的参与者不应接受刺激;最常见的禁忌证包括:睡眠不足、服用药物(例如 抗抑郁药)以及癫痫家族史。
- 向参与者解释 TMS 操作流程及实验细节,并获取知情同意。
- 使用酒精清洁参与者右手第一背侧骨间肌(FDI 肌)肌腹上方的皮肤 以及参考电极放置部位(例如 FDI 肌的肌腱部位),并在这些部位贴附电极。
- 使用酒精清洁右侧眼轮匝肌(OO 肌)所在区域的皮肤,并 将一个电极贴附于上唇右侧角,另一个电极贴附于下唇右侧角。
- 使用酒精清洁接地电极放置部位周围的皮肤(例如 前额部位),并贴附电极。
- 将电极导线连接至附属于肌电图(EMG)记录系统的电极盒中。
- 当参与者主动收缩和放松手部及唇部肌肉时,检查所记录的 EMG 信号(可通过 例如 Spike2 软件进行视觉观察)。若参与者在放松唇部和手部肌肉时信号噪声较大,可尝试绞合电极导线、重新清洁电极接触部位的皮肤,和/或要求参与者不要交叉双腿、脱鞋并将双脚置于地面(以实现更好的接地效果)。
- 使用耳塞保护参与者的听力。
- 将帽套戴在参与者头部,以便标记 TMS 线圈的位置。
2. 运动手区表征的定位
- 在帽顶上标记顶点(可通过粘贴小标签或使用记号笔),并测量从顶点到左侧耳前点的距离。从顶点向左侧耳前点方向移动该距离的33%,标记此位置。
- 放置中心 将8字形TMS线圈置于该位置,线圈手柄方向与正中线成45度角。
- 输送第一个TMS脉冲 例如 通过踩下脚踏板。选择低强度(例如 如果受试者的运动阈值未知,则使用最大刺激强度的40%。若手部未观察到运动诱发电位(MEP)或肌肉抽动,可轻微移动线圈和/或增加刺激强度。
- 当诱发出运动诱发电位(MEP)时,保持以5 mm为步长在该区域周围移动线圈,以找到一个合适的位置 "热点", 即 诱发最大运动诱发电位(MEPs)的位点及线圈方向,并在每次刺激之间至少保持5秒的间隔。观察受试者的手部,以确定哪些肌肉出现抽动。当找到MEPs幅度最大的位置后,标记该位点 "热点" 线圈在盖子上的方向。
3. 运动唇部表征的定位
- 沿直线从FDI位点向左眼外角方向标记一个距离2-3 cm的点(口轮匝肌运动代表区的位置比手部代表区更靠前且偏下)。
- 将线圈放置在此标记点上。要求受试者收缩口唇肌肉;这会降低运动阈值,从而更容易找到口轮匝肌的运动代表区。
- 告知受试者,与之前刺激部位相比,此处的经颅磁刺激(TMS)脉冲可能感觉更强烈,并可能在面部感受到抽动感(由于外周刺激)以及不自主的眼睑眨动。要求受试者在任何时刻若感到刺激不适或疼痛,或希望停止刺激时,立即通知实验人员。
- 给予初始脉冲刺激。若未诱发出运动诱发电位(MEP),可轻微移动线圈和/或增加刺激强度。每次脉冲之间至少保持5秒的间隔。当诱发出MEP后,以5 mm为步长,在该区域周围继续移动 线圈,以寻找口轮匝肌(OO肌)的"热点"。注意:口唇MEP的波形常为多相波,且不同受试者之间的波形可能存在差异。此外,口唇肌肉的运动阈值通常高于手部肌肉。
4. 单脉冲实验中强度的定义
- 如果需要从收缩的口轮匝肌记录运动诱发电位(MEPs),则训练受试者维持恒定的收缩水平。注意:提供关于肌电(EMG)信号强度的视觉反馈(例如 使用Spike2软件)有助于训练过程;当受试者能够将收缩水平稳定维持至少1分钟时,可停止训练。
- 将线圈置于口轮匝肌(OO肌)的热点位置。以固定强度给予10次脉冲刺激,每次脉冲之间至少间隔5秒。通过目视检查评估MEP的大小。如果MEP幅值过小或某些试验中未引出MEP,则增加刺激强度,并再次给予10次脉冲。持续增加强度,直至每次试验均能稳定引出明显的MEP(例如 当唇部肌肉放松时MEP幅值约为0.3 mV,或肌肉收缩时约为1 mV)。在单脉冲实验中使用该强度。注意:在发表的研究中报告刺激器强度是一种良好的科研实践。
5. 定义 rTMS 实验中的运动激活阈值
- 要求受试者尽可能用力收缩唇部肌肉。通过目测肌电(EMG)信号确定此次最大收缩的振幅。
- 要求受试者降低嘴唇的收缩程度。指导其达到约为最大收缩程度20%的水平,并维持该收缩水平持续1分钟。给予受试者短暂休息,根据需要重复练习多次。注意:提供关于EMG信号强度的视觉反馈(例如 使用Spike2软件有助于训练;当受试者能够将收缩水平稳定保持至少1分钟时,可停止训练。
- 在受试者以最大收缩力的20%收缩嘴唇的同时,于口轮匝肌(OO)的热点位置给予10次脉冲刺激,记录诱发出的运动诱发电位(MEP)次数。若在10次试验中诱发出MEP(峰-峰幅值至少为0.2 mV)的次数少于5次,则提高刺激强度;若诱发出MEP的次数超过5次,则降低刺激强度。重复此过程,直至找到可在至少50%的试验中诱发出MEP的最低刺激强度(即活动运动阈值)。
- 让受试者放松唇部肌肉,并以主动运动阈值的强度给予10次脉冲刺激。检查是否未引出任何运动诱发电位(MEPs)。即 刺激强度为亚阈值)。若未诱发出MEP,采用该强度(即 在rTMS刺激序列期间(唇部肌肉放松时)达到100%的主动运动阈值。如果诱发出MEP,返回步骤5.3。
6. 低频 rTMS
- 在rTMS刺激序列期间,以最高1 Hz的频率持续给予TMS脉冲,持续15分钟。当使用由两个刺激器组成的MagStim BiStim系统时,应交替触发这两个刺激器(即 每个刺激器每3秒发放一次脉冲),以产生频率为0.66 Hz的单相脉冲序列。注意:可使用Spike2软件结合剑桥电子公司(Cambridge Electronics)的EMG采集系统来生成触发脉冲序列。注意:实际操作中,使用MagStim BiStim系统和标准线圈时,0.66 Hz脉冲序列的最大刺激强度为最大输出强度的65%。此限制与每个刺激器的最大脉冲频率(0.33 Hz)、线圈过热以及受试者的舒适度有关。
- 在rTMS刺激过程中,持续监测口唇和手部肌肉的记录,以确保未诱发出运动诱发电位(MEP),避免出现兴奋性升高或向邻近皮层区域扩散的效应。同时观察受试者是否有不适表现或警觉水平的变化。
- 在刺激进行7.5分钟后更换线圈,以防止过热。注意:若使用在刺激过程中具备冷却功能的特殊线圈,则可省略此步骤;线圈发热可能影响磁场强度。
结果
单脉冲实验结果
在单脉冲实验中,因变量为运动诱发电位(MEP)的幅度。MEP的大小通常以峰-峰幅值13,18或曲线下面积10来测量。唇部MEP可从静息状态的肌肉或轻度收缩的肌肉中记录。在后一种情况下,经颅磁刺激(TMS)脉冲可使用较低强度施加,因为肌肉收缩会降低运动阈值。在整个实验过程中保持收缩水平恒定非常重要,因为收缩强度会影响MEP的幅值:收缩越强,MEP越大。因此,如果从收缩的肌肉中记录MEP,在确定TMS刺激强度之前,必须先训练受试者维持恒定的收缩水平。视觉反馈有助于训练过程(参见方案4.1)。有时阈值过高,导致TMS脉冲强度使受试者感到不适,从而无法完成实验。此外,有时难以定位唇部肌肉的皮层表征区域或记录到稳定的MEP,尤其是在唇部肌肉处于放松状态时。在发表的研究中报告无法完成实验的受试者数量是一种良好的实践做法。图1展示了同一受试者在肌肉放松和不同收缩程度下记录的MEP。TMS脉冲强度在三种不同的收缩水平下保持恒定。当肌肉收缩时,运动兴奋性增加,因此MEP也随之增大。
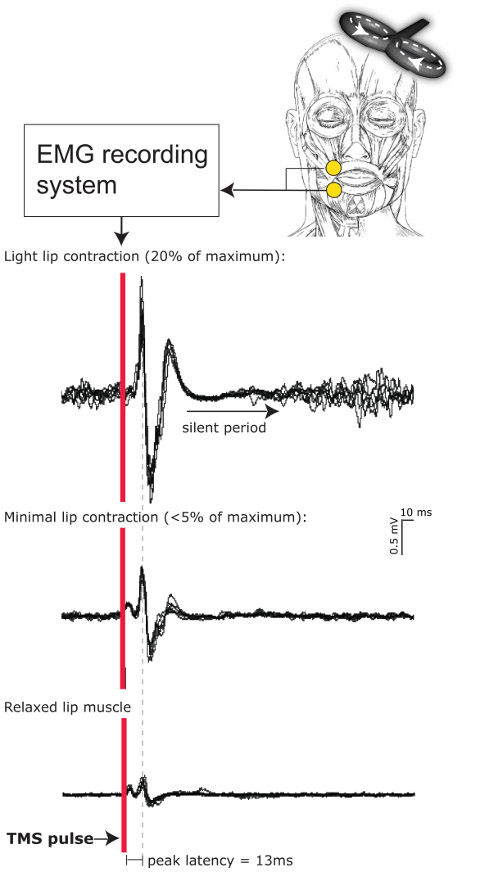
图1. 肌肉收缩对唇部肌肉运动诱发电位(lip MEPs)的影响。 受试者在(1)放松嘴唇,(2)尽可能轻微地收缩嘴唇时,记录其运动诱发电位(MEPs)。< 最大值的5%),以及(3)当其唇部收缩约达最大收缩程度的20%时。在所有三种条件下,单相性经颅磁刺激(TMS)脉冲的强度均保持一致(最大强度的58%)。每种条件下记录6次运动诱发电位(MEPs)(图中为叠加显示)。该图显示,随着收缩程度的增加,MEPs的幅度也随之增大。在收缩程度最强的条件下,皮质静息期清晰可见。 请点击此处查看此图的放大版本。
在听言语和观看与言语相关的唇部运动时,唇部表征的运动兴奋性会增加。图2展示了在听言语和非言语噪音、观看眼部运动以及观看与言语相关的唇部运动期间记录到的唇部MEP10。本研究中,MEP从轻度收缩的唇部肌肉中记录。收缩程度作为协变量纳入MEP分析中,用于校正MEP的大小。与基线条件相比,在听言语和观看与言语相关的唇部运动期间,左侧M1刺激诱发的唇部MEP显著增强;而右侧M1刺激诱发的唇部MEP在任何条件下均未出现调制。
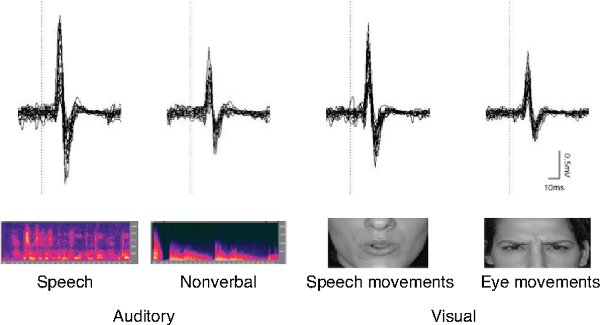
图 2. 一名参与者在感知听觉与视觉言语时的运动诱发电位(MEPs)。 运动诱发电位(MEPs)记录自轻微收缩的唇部肌肉,同时对左侧运动皮层进行刺激。在聆听言语及观察与言语相关的唇部运动过程中,MEPs 出现增强。该图改编自10。
最近一项研究探讨了在观察视觉口腔运动过程中,唇部运动皮层兴奋性变化的特异性13。图3展示了在观察已知语言(英语)、未知语言(希伯来语)、非言语性口腔运动(做鬼脸)以及静止面部时记录到的唇部运动诱发电位(MEP)的Z分数。这些Z分数是相对于所有条件的平均值计算得出的。经颅磁刺激(TMS)脉冲施加于左侧初级运动皮层(M1),并在放松状态下的唇部肌肉记录MEP。在观察已知语言时记录到的MEP大于观察未知语言或非言语性口腔运动时的MEP。在观察静止面部时记录到的MEP与观察英语言语时相当。这些发现表明,唇部运动皮层参与了言语交流过程中视觉信号的处理。请点击此处查看该图的放大版本。
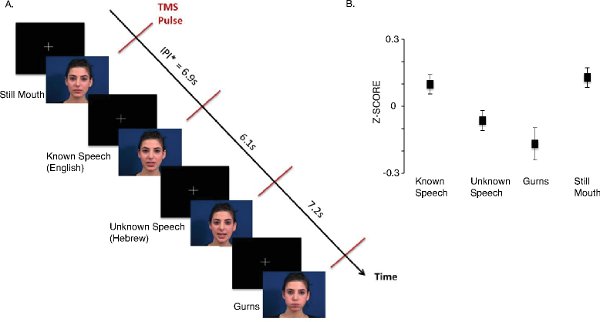
图3. 视觉言语感知过程中的运动兴奋性。 A. 参与者观看了已知言语的视频即 英语),未知语音(即 希伯来语)、非言语的口腔动作(即 gurns)和静止的嘴。每个视频播放期间给予一次TMS脉冲。脉冲间间隔(IPI)在5至8秒之间变化。 B. 该图显示 在观看视频期间从唇部记录的运动诱发电位(MEP)标准化振幅(± 标准误),z分数相对于所有条件的均值进行计算。观察已知言语时的MEP显著大于观察未知言语(p = 0.001)或咕哝声(p < 0.05)。不同条件下MEP幅值的差异反映了运动皮层中口唇表征兴奋性的差异。图示经修改自13. 请点击此处以查看此图的放大版本。
重复经颅磁刺激实验的结果
已有研究表明,对手部运动代表区施加低频重复经颅磁刺激(rTMS)可降低运动兴奋性,并在此区域引起暂时性功能中断(即“虚拟损伤”)15。对口唇运动代表区施加rTMS同样可降低该区域的兴奋性18。图4展示了在左侧初级运动皮层(M1)的口唇代表区进行15分钟低频刺激后,运动诱发电位(MEP)幅度的变化。记录自口唇的MEP在重复TMS刺激结束后7分钟受到抑制,但在15分钟后已开始恢复。这种兴奋性的抑制表明,低频rTMS使运动皮层中口唇代表区的功能中断持续约15分钟。
在言语运动皮层施加经颅磁刺激(TMS)所引起的干扰会损害参与者在高难度言语感知任务中的表现。图5展示了TMS干扰唇部表征后对相同-差异辨别任务表现的影响18。参与者在低频重复性TMS刺激前后均接受成对合成音节的呈现,其任务是判断两个音节是否相同。TMS引起的干扰损害了参与者区分由唇部发音的合成语音与非唇部发音语音的能力(如“ba”与“da”,以及“pa”与“ta”)。然而,这种干扰并未影响他们区分两种均不由唇部发音的语音的能力(如“ka”与“ga”,以及“da”与“ga”)。这表明唇部表征以发音器官特异性的方式参与了言语感知过程。
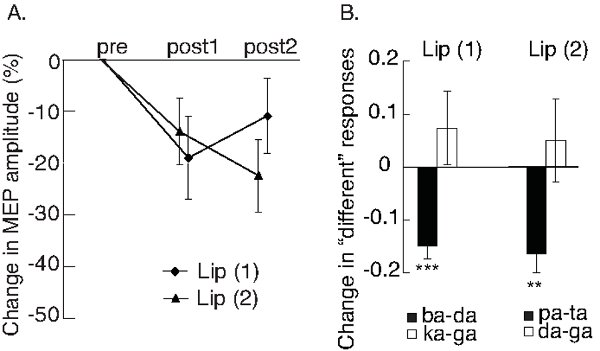
图 4. rTMS 对运动兴奋性和语音辨别能力的影响。A. 该图显示了在实验1和实验2中,右侧半球唇部运动皮层接受15分钟低频rTMS刺激后,唇部肌肉记录的rTMS后MEP峰-峰振幅相对于rTMS前MEP的平均变化(± 标准误)。rTMS后MEP分别在rTMS结束后约7分钟(post1)和约15分钟(post2)记录。在实验1和实验2中,rTMS后MEP振幅均显著受到抑制。B. 参与者被呈现由两个语音音素之间八步声学连续体合成的语音刺激。“跨类别”音对的选择基于为每位参与者 individually 确定的类别边界位置。参与者在对唇部运动表征区进行低频rTMS刺激前后完成相同-不同辨别任务。图中绘制了“不同”反应比例的变化(± 标准误)。rTMS后,参与者对包含唇部发音语音音素的跨类别音对(‘ba’ vs. ‘da’ 和 ‘pa’ vs. ‘ta’)的辨别能力较rTMS前下降;而对其他音对的辨别能力保持稳定。图示内容改编自18。**p < .01,***p < .001。请点击此处查看该图的放大版本。
讨论
在过去的二十年中,经颅磁刺激(TMS)已成为认知神经科学领域广泛应用的一种方法,因为它能够提供与神经影像学互补的信息。TMS 还为言语科学研究者提供了新的工具,用于探究言语运动产生系统是否参与言语感知过程。具体而言,TMS 为实验性检验控制言语构音的神经回路在听言语时是否被易化,以及这些神经回路是否对言语感知有所贡献,提供了一种重要的手段。
本文描述了如何使用经颅磁刺激(TMS)刺激口唇运动区表征,以及单脉冲和重复性TMS技术如何被用于研究运动皮层在言语感知中的作用。此处报道的研究提供了证据,表明运动皮层参与了人脑中的言语处理过程。其他TMS范式也被用于探究运动系统中的言语处理机制。在听觉音节呈现之前,对口唇和舌头运动区表征施加双脉冲TMS,已被证明可分别促进对口唇和舌头发音音节的识别22。配对线圈范式可用于研究言语感知过程中口唇运动区表征与其他皮层区域之间的有效连接性23。研究发现,在聆听言语时,口唇运动区表征与颞顶交界区及额下皮层之间的有效连接性增强,而在聆听白噪声时则无此现象。在颞顶交界区施加持续性θ脉冲刺激(cTBS)会消除其与口唇运动区表征之间的有效连接性,进一步证明这些皮层区域在聆听言语时存在功能耦合23。与低频rTMS相比,cTBS的优势在于,相对较短的cTBS刺激序列(例如 40秒)即可在运动皮层引发持续较久的干扰效应(长达60分钟)24。然而,cTBS对运动兴奋性的影响在不同受试者之间表现出高度变异性25。
将经颅磁刺激(TMS)与其他测量全脑活动的神经影像技术相结合,有助于揭示TMS对邻近及更远端皮层区域神经过程的影响。在感知和认知过程中,脑区之间无疑存在相互作用,因此,诱发的神经活动变化不仅局限于刺激部位,还可能通过功能连接网络影响远端脑区,这一现象并不令人意外。 "虚拟损伤" 某一脑区的活动会调节参与同一过程的其他脑区的功能。为了深入理解言语感知的神经基础,有必要探究在聆听言语时,构音运动皮层如何与颞上回的听觉区域相互作用,以及这些相互作用如何影响言语感知。将经颅磁刺激(TMS)与脑成像技术相结合,为回答这些问题提供了有效手段。例如,可以利用脑电图(EEG)、脑磁图(MEG)、功能磁共振成像(fMRI)和正电子发射断层扫描(PET)来研究TMS对构音系统造成的干扰如何影响颞上回对言语信号的加工。结合低频重复TMS与EEG的实验表明,TMS对构音运动皮层的干扰能够调节听觉系统对言语声音的自动辨别,但不影响非言语声音的辨别,这表明这些系统在言语加工过程中存在相互作用16结合重复经颅磁刺激(rTMS)与脑磁图(MEG)也是研究听觉-运动相互作用时序特征的有力方法17.
然而,言语产生与感知之间的联系仍未被充分理解。将经颅磁刺激(TMS)与言语任务及其它神经影像技术相结合,可帮助科学家更好地理解言语感知和产生的神经基础及其是否存在重叠。
披露
作者无任何利益冲突需要披露。
致谢
R.M. 获得医学研究理事会(职业发展研究员项目)的支持。J.R. 获得惠康信托基金(授予 K.E.W 和 R.M. 的项目资助)的支持。 我们感谢 Jennifer Chesters 在制作视频过程中提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 经颅磁刺激仪 | Magstim Limited, Wales, U.K. | Magstim BiStim(连接两台 MagStim 200) | |
| 2 个经颅磁刺激线圈 | Magstim Limited, Wales, U.K. | 70 毫米双圆形线圈,D70 Alpha | |
| 记录肌电图信号用的电极 | Covidien llc, MA, USA. | Kendall 新生儿心电电极,22 毫米 × 30 毫米 | |
| 电极盒(用于肌电图记录) | Cambridge Electronic Design Limited, U.K. | CED 1902-11/4 电极适配器 | |
| 数据采集单元(用于肌电图) | Cambridge Electronic Design Limited, U.K. | Micro1401-3 | |
| 放大器(用于肌电图) | Cambridge Electronic Design Limited, U.K. | 1902 | |
| 肌电图记录与分析软件 | Cambridge Electronic Design Limited, U.K. | Spike2,版本 7 |
参考文献
- Hickok, G. The role of mirror neurons in speech and language processing. Brain Lang. 112, 1-2 (2010).
- Hickok, G., Houde, J., Rong, F. Sensorimotor integration in speech processing: computational basis and neural organization. Neuron. 69, 407-422 (2011).
- Lotto, A. J., Hickok, G. S., Holt, L. L. Reflections on mirror neurons and speech perception. Trends Cogn Sci. 13, 110-114 (2009).
- Pulvermuller, F., Fadiga, L. Active perception: sensorimotor circuits as a cortical basis for language. Nat Rev Neurosci. 11, 351-360 (2010).
- Scott, S. K., McGettigan, C., Eisner, F. A little more conversation, a little less action--candidate roles for the motor cortex in speech perception. Nat Rev Neurosci. 10, 295-302 (2009).
- Liberman, A., Mattingly, I. G. The motor theory of speech perception revised. Cognition. 21, 1-36 (1985).
- Liberman, A. M., Cooper, F. S., Shankweiler, D. P., Studdert-Kennedy, M. Perception of the speech code. Psychological Review. 74, 431-461 (1967).
- Mottonen, R., Watkins, K. E. Using TMS to study the role of the articulatory motor system in speech perception. Aphasiology. 26, 1103-1118 (2012).
- Fadiga, L., Craighero, L., Buccino, G., Rizzolatti, G. Speech listening specifically modulates the excitability of tongue muscles: a TMS study. Eur J Neurosci. 15, 399-402 (2002).
- Watkins, K. E., Strafella, A. P., Paus, T. Seeing and hearing speech excites the motor system involved in speech production. Neuropsychologia. 41, 989-994 (2003).
- Stokes, M. G., et al. Simple metric for scaling motor threshold based on scalp-cortex distance: application to studies using transcranial magnetic stimulation. J Neurophysiol. 94, 4520-4527 (2005).
- Murakami, T., Restle, J., Ziemann, U. Observation-execution matching and action inhibition in human primary motor cortex during viewing of speech-related lip movements or listening to speech. Neuropsychologia. , (2011).
- Swaminathan, S., et al. Motor excitability during visual perception of known and unknown spoken languages. Brain Lang. 126, 1-7 (2013).
- Watkins, K., Paus, T. Modulation of motor excitability during speech perception: the role of Broca's area. J Cogn Neurosci. 16, 978-987 (2004).
- Chen, R., et al. Depression of motor cortex excitability by low-frequency transcranial magnetic stimulation. Neurology. 48, 1398-1403 (1997).
- Mottonen, R., Dutton, R., Watkins, K. E. Auditory-motor processing of speech sounds. Cereb Cortex. 23, 1190-1197 (2013).
- Mottonen, R., van de Ven, G. M., Watkins, K. E. Attention fine-tunes auditory-motor processing of speech sounds. J Neurosci. 34, 4064-4069 (2014).
- Mottonen, R., Watkins, K. E. Motor representations of articulators contribute to categorical perception of speech sounds. J Neurosci. 29, 9819-9825 (2009).
- Sommer, M., Lang, N., Tergau, F., Paulus, W. Neuronal tissue polarization induced by repetitive transcranial magnetic stimulation. Neuroreport. 13, 809-811 (2002).
- Meister, I. G., Wilson, S. M., Deblieck, C., Wu, A. D., Iacoboni, M. The essential role of premotor cortex in speech perception. Curr Biol. 17, 1692-1696 (2007).
- Rossi, S., Hallett, M., Rossini, P. M., Pascual-Leone, A. Safety, ethical considerations, and application guidelines for the use of transcranial magnetic stimulation in clinical practice and research. Clin Neurophysiol. 120, 2008-2039 (2009).
- D'Ausilio, A., et al. The motor somatotopy of speech perception. Curr Biol. 19, 381-385 (2009).
- Murakami, T., Restle, J., Ziemann, U. Effective connectivity hierarchically links temporoparietal and frontal areas of the auditory dorsal stream with the motor cortex lip area during speech perception. Brain Lang. 122, 135-141 (2012).
- Huang, Y. Z., Edwards, M. J., Rounis, E., Bhatia, K. P., Rothwell, J. C. Theta burst stimulation of the human motor cortex. Neuron. 45, 201-206 (2005).
- Hamada, M., Murase, N., Hasan, A., Balaratnam, M., Rothwell, J. C. The role of interneuron networks in driving human motor cortical plasticity. Cereb Cortex. 23, 1593-1605 (2013).
重印与许可
标签
