在蜜蜂中建立了同时对两个不同脑神经簇或两个不同解剖通路进行的细胞外长期记录。这些记录使得能够在活体动物中,在单个神经元水平以及神经元集群水平上,研究不同脑区之间神经活动处理的时间特性。
本文内容
摘要
摘要
在哺乳动物和昆虫中,神经信息均在不同高级和低级脑区中进行处理。这些脑区通过汇聚性和发散性的解剖连接相互耦合,包括前馈和反馈回路。此外,同源信息部分通过平行通路被传递至不同的脑区,有时甚至进入相同的脑区域。为了理解这些连接策略的进化优势及其计算上的益处,特别是它们之间的时间依赖关系,有必要在高时间分辨率下,对同一标本中不同神经束或神经索内的单个神经元实现同步记录。本文以蜜蜂为研究对象,展示了一种独特且持久的细胞外长期记录技术,可同时在两个连续的神经索中记录多单位神经活动。1,触角叶(AL),即初级嗅觉处理中枢,以及蘑菇体(MB),一种参与学习和记忆形成的高级整合中枢,或两条平行的神经元通路2 连接AL与MB。 后者被选为示例并予以完整描述。在配套视频中,展示了柔性多通道 通道导线电极的成对差分放大技术得到展示。微电极的成对差分放大 导线电极通道显著降低了噪声,并证实信号源与电极尖端位置密切相关。所用电极导线的机械柔韧性可实现稳定的侵入式长期记录 可连续记录数小时至数天,相较于传统的细胞外记录具有明显优势 和细胞内 体内 记录技术
引言
蜜蜂以及大多数其他昆虫在很大程度上依赖嗅觉。它们利用嗅觉线索进行定向、求偶、与同种个体交流以及觅食。蜜蜂高度发达的嗅觉系统使其能够对花香气味刺激产生丰富多样的学习行为。这些行为可在受控的实验室条件下轻松研究(综述见3-5)。蜜蜂的“微型大脑”(参见6)神经元数量相对较少,因此是研究嗅觉编码和学习过程中神经活动监测的理想模式生物。
昆虫和哺乳动物的嗅觉系统在很大程度上表现出类似的组织结构(综述见7,8。在蜜蜂中,大约有80,000个受体神经元9 位于触角上的感觉毛中10,11 将环境气味刺激转化为神经信号。嗅觉感受神经元的轴突投射至触角叶(AL),其具有类似于脊椎动物嗅球的肾小球样结构。AL 包含约 164 个肾小球,这些肾小球通过约 4,000 个局部中间神经元(LN)相互连接(综述见12尤其在蜜蜂中,最近的研究表明,局部神经元(LNs)提供了斑片状的侧向连接,且不同的亚群具有元素性和构型性嗅觉编码特性。13,14 AL 被发现可分为腹侧和背侧两个半叶,分别形成内侧和外侧触角叶束(m-ALT 和 l-ALT; formerly 称为 m-APT 和 l-APT,即内侧和外侧触角叶原脑束)15-17)。此处将采用近期为统一昆虫脑命名而提出的新纤维束术语18两种ALT(l-ALT和m-ALT)分别包含410个(l-ALT)或510个(m-ALT)单肾小球投射神经元(PN)15,16,19两条通路中的PN均被最近的研究证明可平行编码气味信息2 (综述详见17,20),并且这两条神经束通过突触与蕈形体(MB)的主要神经元——肯扬细胞(KC)形成发散性连接。每个蕈形体包含约172,000个KC21-23已知蕈形体(MBs)参与刺激整合、学习和记忆形成。Kenyon细胞(KCs)的轴树突形成蕈形体柄(即蕈形体的茎部),该结构具有两个主要输出区域:垂直支 或α叶与水平部 或β叶22,24MB的输出仅汇聚到约400个外在神经元(EN)24负责嗅觉信息处理的神经元主要支配垂直叶的腹侧区域22最近研究表明,在该区域记录到的ENs编码了气味与奖赏之间的关联25.
昆虫以及脊椎动物嗅觉系统中的时间特性已成为一种潜在编码机制的重要且显著的方面26-29。为了能够以高时间分辨率同时记录来自不同位点的多个神经元,我们建立了双通道多单元记录技术,使用定制的多通道金属丝电极,将其植入蜜蜂嗅觉系统的不同靶向区域。该方法使我们能够在单个神经元或神经元群体水平上,分析和比较蜜蜂嗅觉系统中的时间信息处理,无论是发生在平行嗅觉通路(即双嗅觉通路2)之间,还是不同连续神经复合体1之间。最近,在蝗虫嗅觉系统中采用类似实验方法30,通过不同电极配置,已成功分析了实现背景不变性气味识别的时空编码机制31。因此,这种已建立的双通道记录技术能够获取关于神经元活动时空特征的同步信息。
与钙成像技术获得的更广泛空间采样相比,该方法仅允许从两个位点进行记录。然而,相较于钙成像技术,其优势在于动作电位记录具有高时间精度,而传统的CCD成像或双光子 成像采集均无法提供这种精度。此处描述的细胞外电极为永久植入式,并相对于脑组织和头囊固定,从而避免了电极漂移。与使用锐利的细胞内电极相比,这是一个明显的优势。另一个相较于细胞内记录和钙成像的优势是可实现长达数小时至数天的长时间神经活动观测。这对于研究学习与记忆形成的神经相关性至关重要。多单位记录的其他优点将在讨论部分进一步阐述。
本文将介绍一种定制金属丝电极的制备方法,该方法改编自文献32,33,适用于蜜蜂脑部长时间多单元记录。此外,还将展示此类电极在蜜蜂嗅觉系统的两个不同记录位点进行永久性植入的示例,以实现对侧支(l-ALT)和中支(m-ALT)进行长期同步记录,从而支持多种刺激方案的应用2。为验证记录位点的准确性,本文还提供了一种用于染色及记录后可视化记录位点的示例与操作流程。
方案
1. 电极制备(图1)
- 制备一种适用于商用多通道放大器系统电极接口板的电极适配器1,2,25。
- 使用一块小型有机玻璃板,将其粘接到一个18针连接器底座上。
- 用3 段短的绝缘导线将底座与3 个焊接端子连接,这些端子通过螺丝固定在有机玻璃板上(图1 A1-A3)。
- 在有机玻璃板上开一个槽,用于插入玻璃毛细管,并通过螺丝将其固定(图 1 B1)。
- 使用微细针将玻璃毛细管延长约5 mm。
- 将微电极导线沿微细针和玻璃毛细管固定,以确保稳定性和支撑性。
- 多通道微丝电极的制备(改编自Ryuichy Okada32,33)
- 将3 根微丝(聚氨酯涂层铜线,直径15 µm)并排排列(图 1 B2)。
- 使用12 V电烙铁,在微丝的部分区域涂布一层薄的低熔点牙科蜡(50 °C),使它们粘合在一起(电极尖端)(图 1 B3)。保留几厘米不粘合(电极末端),该部分后续用于将微丝与电极适配器连接。
- 将多通道微丝电极连接至电极适配器
- 从支架上取下玻璃毛细管,并将其连同微细针一起固定在电极尖端。调整其位置,使其与微电极平行(图1 B3)。
- 使用低熔点牙科蜡将电极尖端固定在微细针上,并在尖端处剪断微电极,使其从微细针两端各突出2-3 cm(电极末端),如小箭头所示(图 1 B3)。
- 将毛细管略微向后滑入电极适配器中,并用螺丝固定(图 1 B4)。
- 使用温度约为360 °C的电烙铁,将三根导线的裸露端分别焊接到对应的焊接端子上,确保绝缘层熔化(图 1 B4)。焊接完成后,确认各通道具有良好的电接触(约300 kOhm)。
- 将其中一个电极(主电极)安装到前置放大器的电极接口板上,将另一个多通道电极(从电极)固定在独立的适配器上。将从电极的各个通道连接至主电极(图 1 C1)。此外,将参考电极和肌电极焊接到主电极底座上 (图 1 C2)。
2. 蜜蜂准备(图2)
在这些描述的实验中,使用了蜜蜂(Apis mellifera),这是一种无脊椎动物,因此不需要特定的伦理许可即可使用。
- 早晨在蜂巢入口处捕捉蜜蜂采集蜂(A. mellifera),方法如其他研究者所述34,35。
- 将蜜蜂置于碎冰上冷却至不动(5至10分钟),并将其固定在标准的有机玻璃支架或金属管中,使头部暴露(图 2 A)。为减少头部移动,使用低熔点牙科蜡(约50 °C),小心地将头部固定在支架上,围绕复眼基部和颈部进行固定。
- 使用低熔点蜡将触角的梗节固定在头壳上(图 2 B),注意不要触碰鞭节。触角鞭节需朝向前方。确保蜜蜂的喙能够自由活动。
- 剃除头壳表面,以确保对头部顶端有清晰的视野和无障碍的操作空间。
- 用30%蔗糖溶液饲喂蜜蜂直至其饱足,以保证脑组织充分湿润及蜜蜂良好的存活状态(图2 C)。
- 沿复眼边缘垂直方向,以及触角基部上方和单眼下方水平方向小心切开,移除松动的头壳部分(图 2 D)。
- 小心移开咽下腺并清除气管,以便在插入电极前获得清晰的脑部视野和操作通路(图2E,2F)。
3. 电极插入
在图 2 所示的示例中,一个电极定位在侧前杏仁核(l-ALT),另一个电极定位在内前杏仁核(m-ALT)2。利用特定的解剖标志,也可选择其他靶区,例如杏仁核(AL)和脑桥(MB)的输出区域1。
- 使用显微操作器将电极定位至目标区域(图 2G 和 3A)。若需靶向中侧群触角叶投射神经元(m-ALT),应将电极置于触角叶(AL)之间,并位于蘑菇体垂直叶内侧方向。确保插入位置在中侧向触角叶投射神经元(ALT PNs)分支点上方,电极插入脑组织深度约为 180 µm(图 2E)。若记录外侧群触角叶投射神经元(l-ALT PN),则将电极置于外侧原脑(即外侧角脑,LH)下方,位于垂直叶外侧边缘与触角叶(AL)中点之间假想连线的中点处,插入深度约为 300 µm(图 2E)
- 将参考电极(直径约 25 µm 的银丝)通过角质层上的小切口插入同侧复眼内;另将一根银丝插入侧单眼下方的肌肉投射区域。注意:如有需要,可通过记录参与蜜蜂喙伸展反应(proboscis extension response, PER)的肌肉 M17 来高时间精度地监测蜜蜂的学习行为36,方法见文献25所述。
- 为牢固固定电极于脑内及头壳中,使用双组分硅胶覆盖脑部上方全部空间(图 2H),以防止脑组织干燥。注意:记录可持续数小时至数天,例如可在经典条件反射实验过程中进行记录(图 2H),或使用大量不同气味刺激进行刺激实验。
4. 数据采集与预处理
- 使用符合以下要求的适当采集软件:采样率至少为 min 25 kHz;模拟信号1,25 或数字2 电极通道间的交叉分化;使用300 Hz至8,000 Hz的带通滤波器提取峰电位事件。
- 使用现有的 spike sorting 软件提取单细胞单位活动,例如 Spike2 软件中包含的模板匹配技术图3).
- 为进一步分析,使用提取出的单元的时间戳来计算单个单元平均的气味反应(图4)或用于计算主成分分析(PCA)的种群向量(图5)使用市售软件进行分析。如需进一步分析单个神经元和群体神经元的反应潜伏期,请参考近期相关出版物1,2,25.
5. 相对电极位置的可视化(图4)
- 在记录实验开始前,将电极尖端浸入含有5% Alexa hydrazide 568 或 5% Alexa hydrazide 488 的溶液中,该溶液溶于 0.5 M 氯化钾溶液。
- 实验结束后小心取出电极和覆盖的硅胶,用蜜蜂任氏液冲洗脑组织,去除腺体和气管,然后向触角叶(AL)中植入少量四甲基罗丹明葡聚糖晶体,或注入溶于 1.0 M 醋酸钾溶液的 5% 四甲基罗丹明葡聚糖溶液,以顺行标记ALT神经元。以下步骤均需在避光条件下进行。
- 让染料被投射神经元摄取并沿其轴突通路运输(30–45 分钟)(图4A),随后用蜜蜂任氏 液冲洗脑组织三次,每次 30–45 分钟。
- 将蜜蜂置于冰上使其冷却至不动,小心从头囊中取出脑组织。用含 4% 甲醛的 0.1 M PBS 溶液冲洗固定脑组织,并在 4 °C 下保存过夜。
- 至少等待 12 小时后,用 0.1 M PBS 溶液清洗脑组织两次,每次 10 分钟 。
- 用含 0.2% Triton X-100 的 0.1 M PBS 溶液清洗脑组织 3 次 ,每次 20 分钟,然后将其置于递增浓度的乙醇系列中脱水(30%、50%、70%、90%、95%、3 次 100% 乙醇,每步 20 分钟)。
- 将脱水后的脑组织置于载玻片上的水杨酸甲酯中封片,并加盖盖玻片。
- 使用共聚焦激光扫描显微镜,采用谐波复合平面复消色差物镜(10X 0.4 NA 浸油),以每 2–5 µm 进行光学切片扫描。使用 568 nm 波长激发四甲基罗丹明葡聚糖,使用 488 nm 波长检测电极位置。
- 利用三维重建软件(例如 AMIRA 或 Fiji)对图像序列进行三维重建,以重构染色的脑结构和电极路径(图 4)。
结果
本方案可在单只蜜蜂体内同时记录两个不同信息处理阶段的活动,并可进一步检验学习与记忆的潜在机制 例如通过,束缚蜜蜂内的PER条件反射训练。”这是分析神经元处理时间特性的先决条件。该方法易于调整,适用于多种科学研究途径,以揭示蜜蜂嗅觉系统的神经网络。例如,该方法可用于(i)分析蜜蜂双嗅觉通路中l-和m-ALT PNs的PNs时间处理特性图 5)。在 图 5A 一个同时记录到的侧侧嗅束投射神经元(l-ALT PN)与中侧嗅束投射神经元(m-ALT PN)的示例,以十次试验的平均值呈现,用颜色编码的热图形式展示了它们对五种不同气味浓度的反应强度和潜伏期。数据来自七只蜜蜂的平均值,共记录到11个l-ALT PNs和13个m-ALT PNs。图5B、图5C)表明,反应强度以及在一定程度上反应潜伏期均能反映气味物质的浓度。在此示例中,随着气味物质浓度的增加,PNs 的反应强度增强,而反应潜伏期则缩短图5B、图5C。该结果较为有限,仅适用于所分析的气味分子,但仍与近期关于触角叶(AL)的计算模型相一致37蜜蜂触角叶(AL)中气味浓度编码是否支持非线性计算或其他编码特性,仍有待未来进一步分析。此外,该方法还可用于(ii)比较群体活动在两个连续处理阶段——触角叶(AL)输出与蘑菇体(MB)输出——之间的时间动态特征。图 6)。主成分分析(PCA)表明,在PN水平,气味计算过程被延长,并持续整个气味呈现阶段,而在EN中,群体活动仅表征了气味的起始和终止时刻。图 6)。因此,当PN的活性仍在发展中时,EN群体的活性已经达到最大值(参见 视频 1).
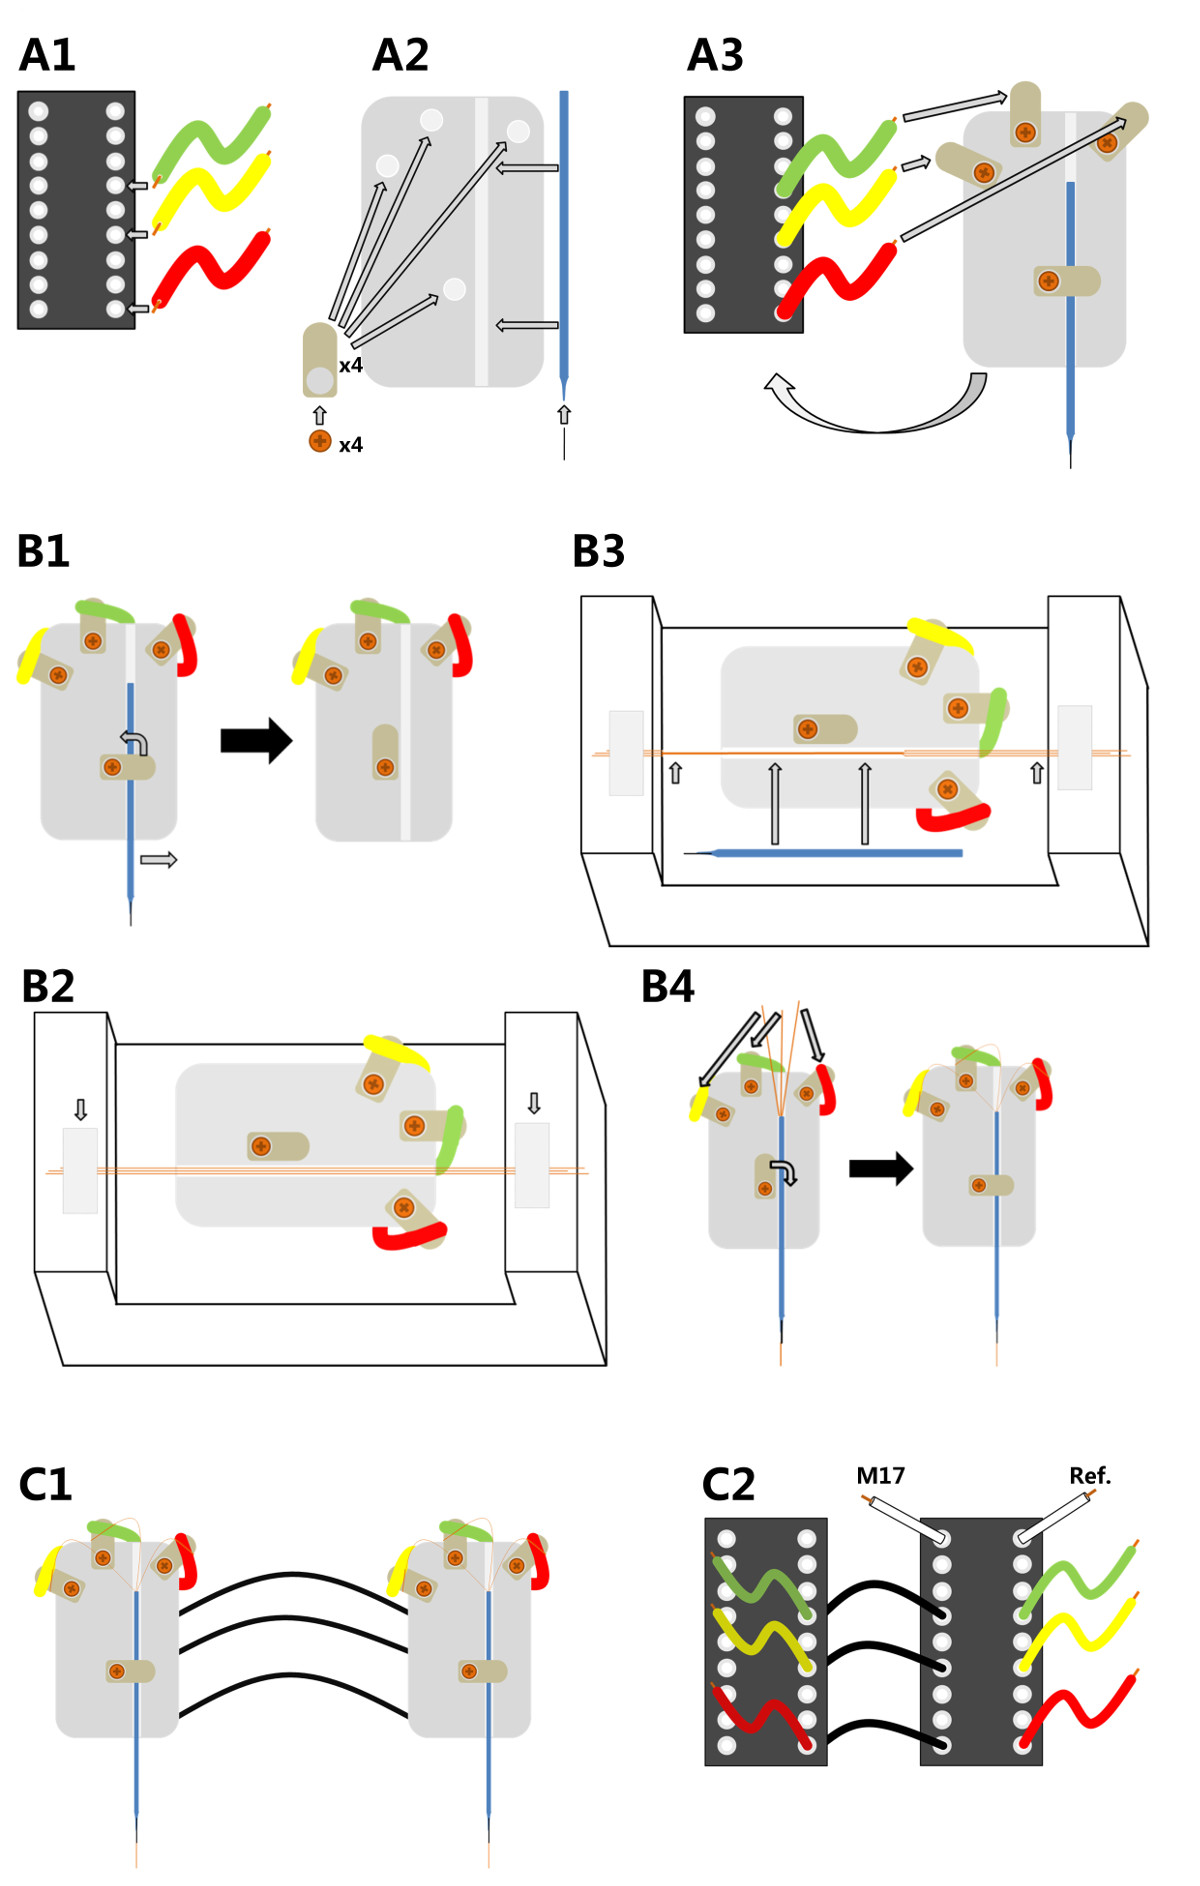
图1. 制备三通道微丝电极。 A1) 三根导线的末端分别焊接到IC针脚连接器的11、13和16号位置。 A2) 四个焊片被拧紧在一块有机玻璃基板上;一根微细针插入玻璃毛细管的尖端,然后将毛细管固定在塑料板上。 A3) 将塑料板粘接在IC针脚连接器顶部,并将每根导线的自由端焊接到上方的一个焊片上。 B1) 为将细铜丝装配到电极 holder 上,需再次取出毛细管。 B2) 然后将 holder 的基座固定在一个定制的对准装置中。三根铜质微丝沿凹槽排列,并在两端用胶带固定。 B3) 使用牙科蜡将平行排列的微丝粘合在一起,并将毛细管复位(长箭头所示);再用牙科蜡将粘合好的微丝固定在毛细管上,并剪去多余末端(短箭头所示)。 B4) 将三根铜丝的自由端分别焊接到三个顶部焊片上,从而使其与IC针脚连接器形成电连接。 C1) 两个完全组装好的电极可相互连接,以便与单个前置放大器配合使用。 C2) 为此,一个电极(左侧,从属电极)的针脚通过绝缘导线连接至另一个电极(右侧,主控电极),后者连接至前置放大器;连接前置放大器的电极还可同时接收来自肌肉(M17)和参考电极(Ref)的输入信号。
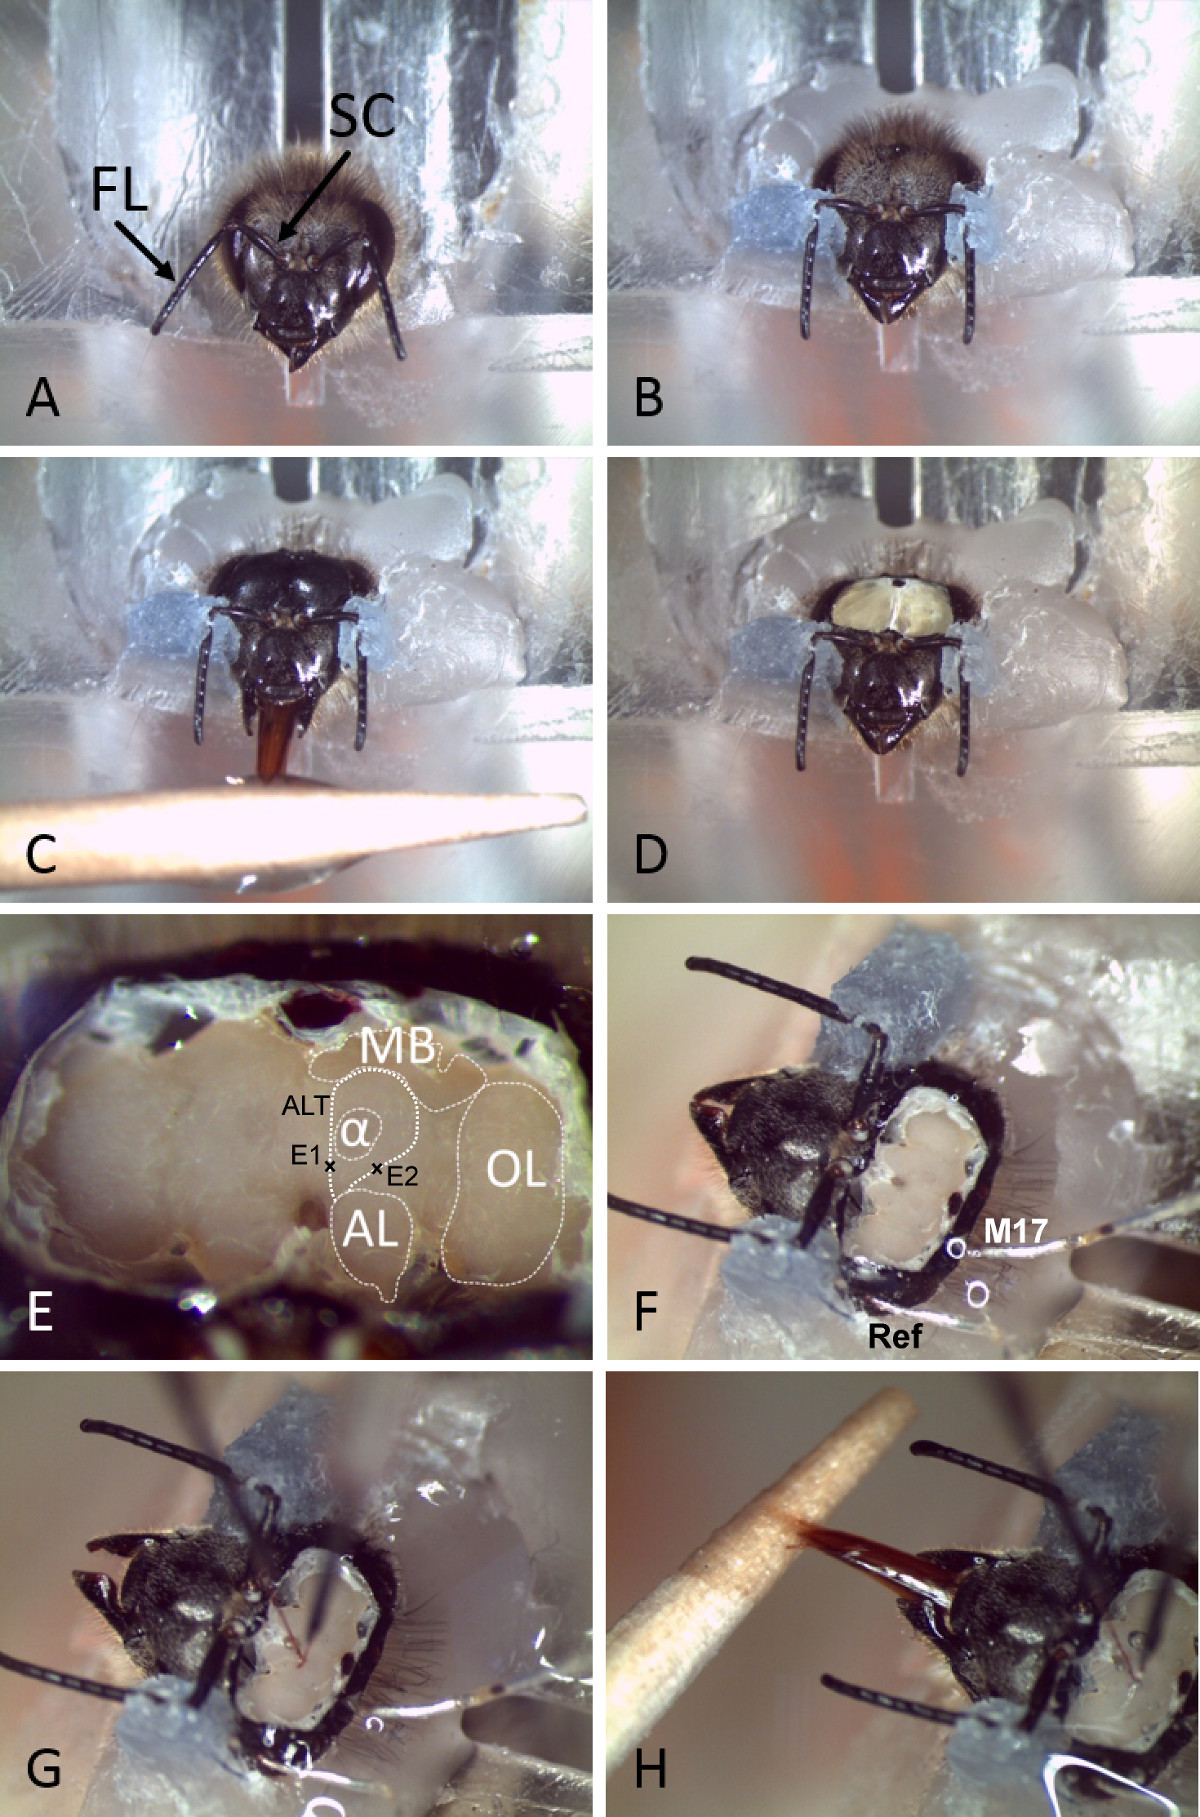
图2. 蜜蜂脑部的准备及永久性电极插入。 A) 蜜蜂在冰上固定后被插入聚甲基丙烯酸甲酯(Plexiglas)固定装置中。图中显示了具有鞭节(FL)和柄节(SC)的触角。 B) 使用牙科蜡固定头部和触角。 C) 剃除头壳表面并给蜜蜂喂食糖水。 D) 打开头壳。 E) 在移除脑顶部的腺体和气管后,不同的神经节及主要解剖标志可清晰分辨。图中显示了触角叶通路(ALT)的走向,并标示出电极插入的位置。(MB:蘑菇体,AL:触角叶,OL:光学叶,α:α叶或垂直叶,ALT:触角叶通路,E1:用于记录m-ALT信号的电极插入侧,E2:用于记录l-ALT信号的电极插入侧)。 F) 参考电极(Ref)和肌肉电极(M17)通过外骨骼上的小孔或复眼插入头壳内。 G) 将导线电极插入脑内相应位点。 H) 使用双组分硅胶固定电极后,蜜蜂仍可表现出伸吻反应(PER),并可用于条件化训练(例如,使用糖水)。
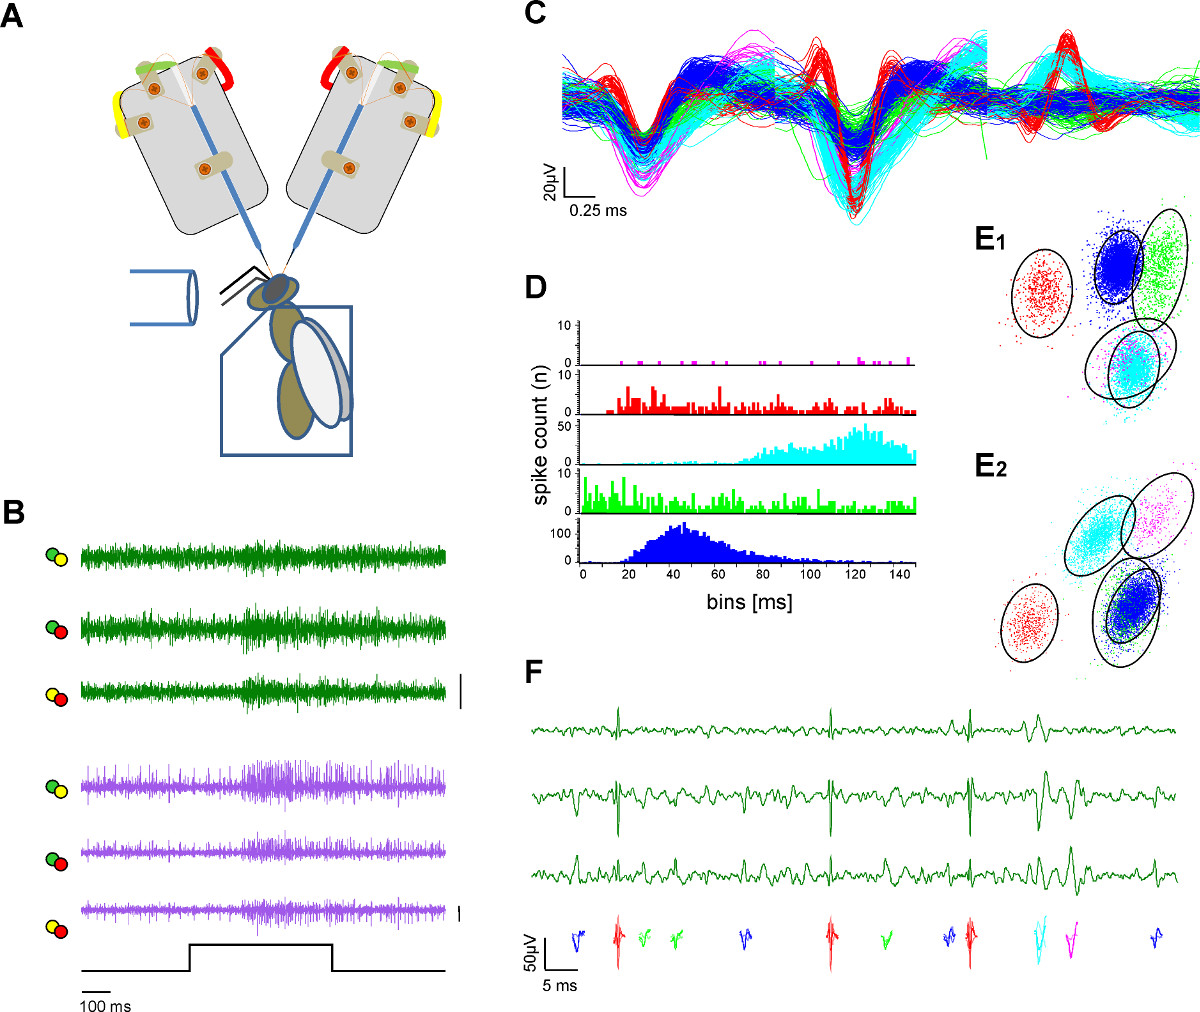
图 3. 两条神经束的细胞外记录及单神经元信号提取(脉冲分类)。 A) 实验装置示意图。蜜蜂被固定在聚甲基丙烯酸甲酯(plexiglas)固定器中。通过玻璃管提供气味刺激。两个电极探针从暴露的蜜蜂脑组织进行记录。B) 对左侧和中间的触角叶投射神经元(l-和 m-ALT PNs,绿色和紫色轨迹)进行同步记录,显示在33 °C条件下,对浓度为1:100的蜂蜜水溶液持续500毫秒的气味刺激,两条神经束均产生兴奋性反应。每条绘制的轨迹代表来自A图中电极焊点的不同记录通道,并以颜色编码标注。标尺:50 µV。C) 经脉冲分类处理后,单个动作电位被分类并以颜色编码标记。叠加的已分类单元显示了波形之间的分离情况。D) 脉冲间隔直方图表明已分类单元的分离质量,证明脉冲分类结果可靠。注意,在各单元的不应期内无脉冲出现。E) 通过主成分分析对已分类单元进行三维聚类的两个视图(E1,E2),显示已分类单元之间的相互距离。圆圈表示2.5倍马氏距离(Mahalanobis distance),相当于空间中的标准差,表明在主成分空间中聚类之间存在显著区分。F) 颜色编码的单元显示在一个神经束的三个通道记录的局部放大图中可见的动作电位。请点击此处查看该图的放大版本。

图 4. 记录后对记录位置的可视化及三维重建。A) 沿 z 轴方向的正交切片投影图,经最大强度投影对齐,显示从触角叶(AL)投射至蘑菇体(MB)和外侧角(LH)的单glomerular投射神经元的顺行与逆行双标填充结果。记录实验完成后,将细胞内示踪剂Microruby(四甲基罗丹明葡聚糖)注入AL。AL内被染色的glomeruli证实了PN的正确标记。 B) 沿 z 轴方向的正交切片投影图,经最大强度投影对齐,显示两个电极使用Alexa hydrazide 488染色的结果,指示m-ALT(E1,箭头)和l-ALT(E2,箭头)的电极放置位置。示踪剂Alexa Hydrazide 488扩散至电极周围组织,标记了电极插入部位。注意:AL中明显的染色为表面伪影。 C) 来自A和B的染色靶细胞(PNs)及电极插入部位的三维重建(右侧),以及蜜蜂嗅觉系统的示意图概览(左侧),其中标示了l-ALT和m-ALT的投射路径。注意:仅显示单glomerularPN投射通路。AN:触角神经,AL:触角叶,LH:外侧角,MB:蘑菇体,E1,E2:电极插入位点,m-ALT:内侧触角叶通路,l-ALT:外侧触角叶通路,c:尾侧,r:头侧,m:内侧,l:外侧。 请点击此处查看该图的放大版本。
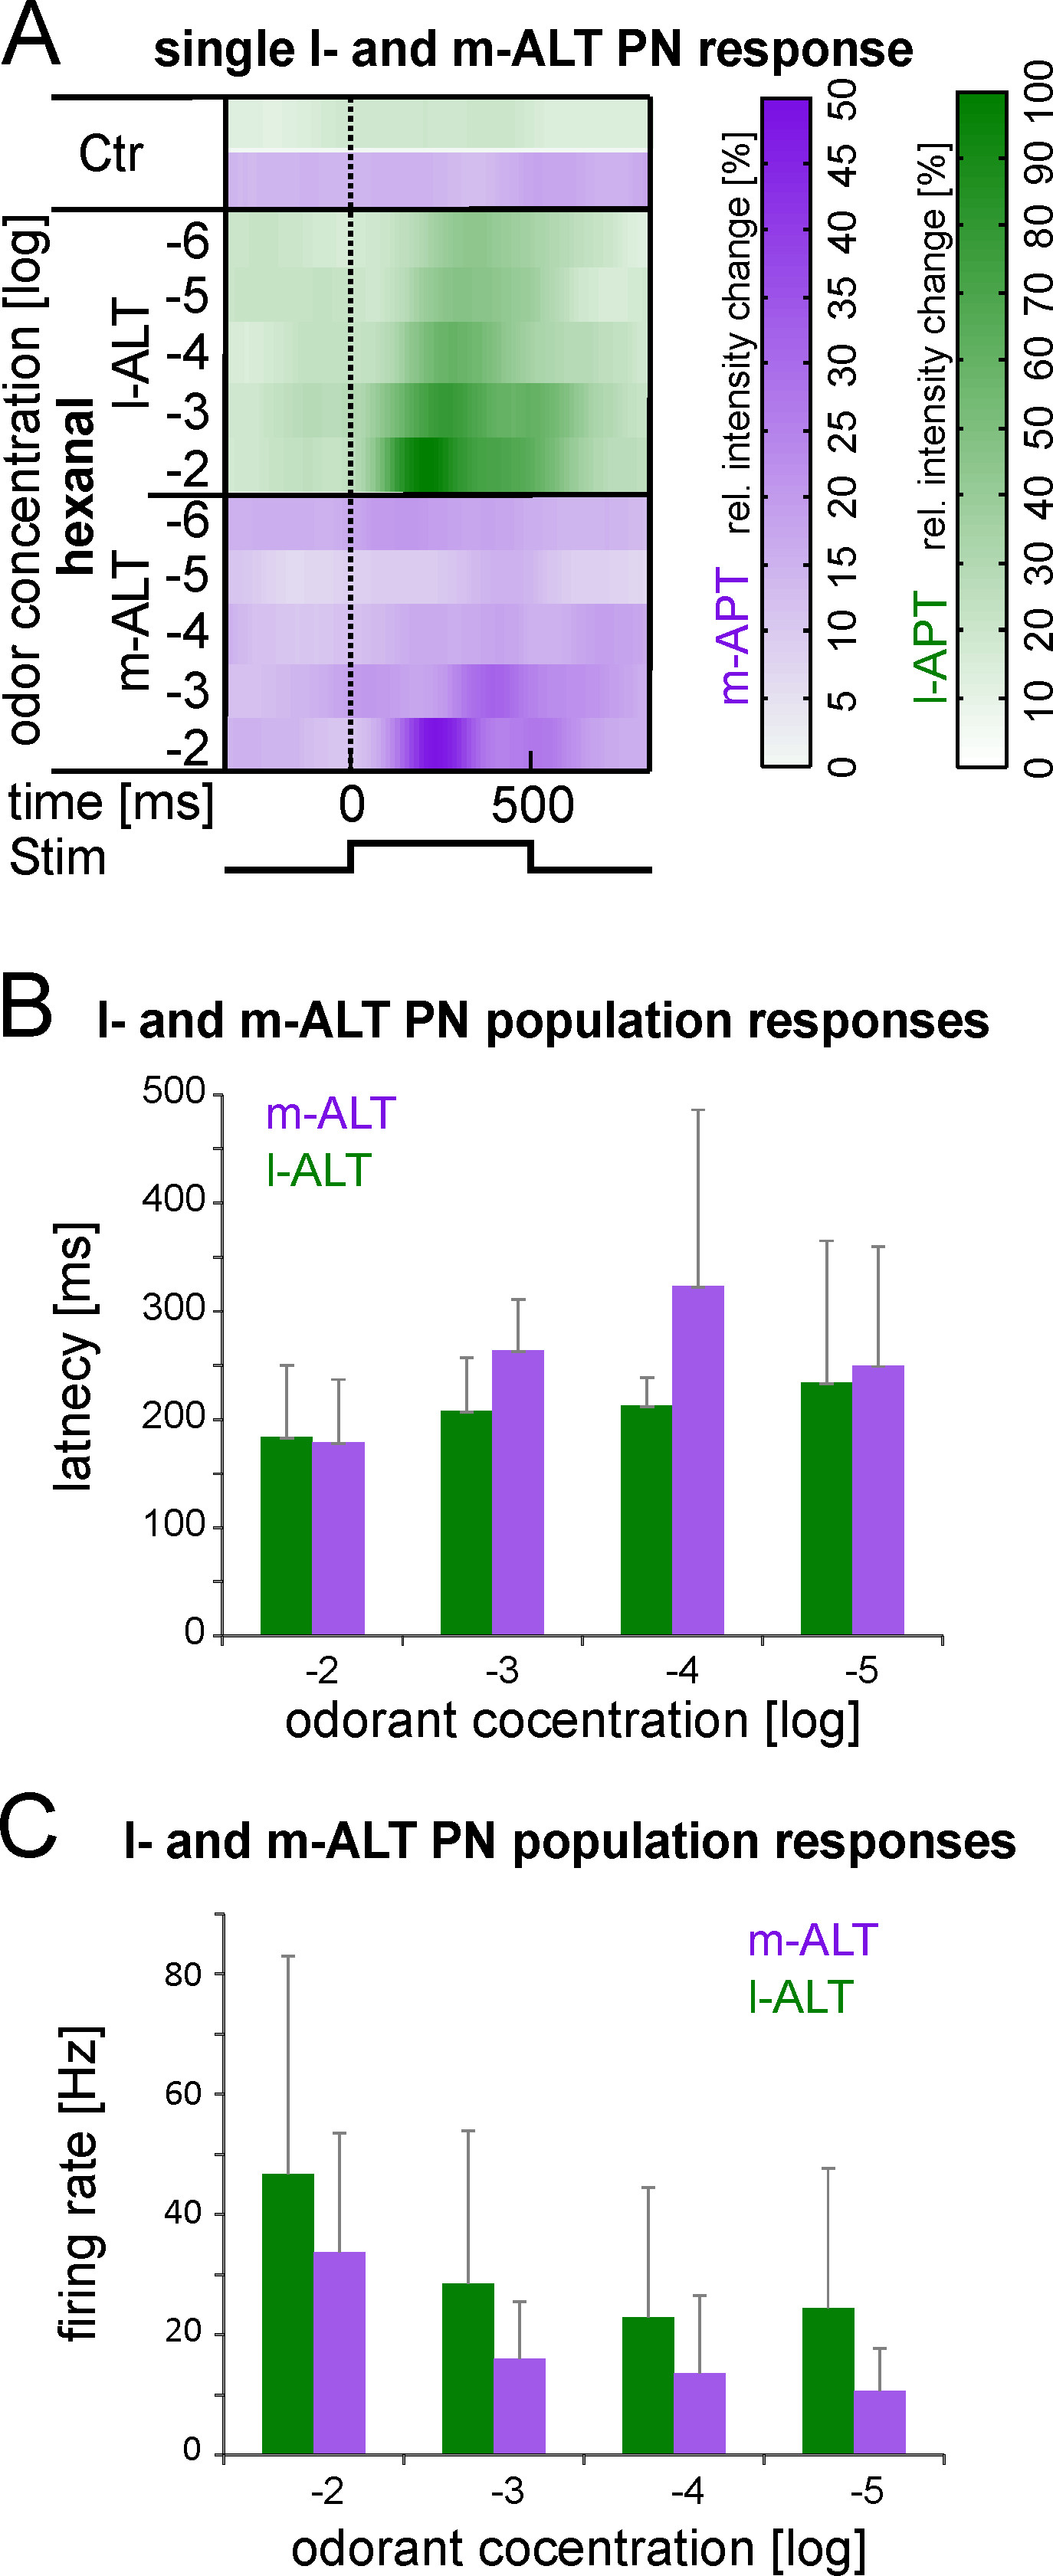
图5. 双嗅觉通路内气味浓度编码的示例。 A) 热图显示了从一只蜜蜂个体中同时记录的单个l-ALT(绿色)和单个m-ALT PNs(紫色)对己醛气味刺激的响应,气味浓度逐步增加(从1:10-6 到 1:100)。每行数据为十次重复刺激的平均值。放电率以相对强度变化表示,即相对于减去自发活动后的放电率。B) 来自7只记录蜜蜂的11个l-ALT和13个m-ALT PNs的群体响应潜伏期。在每只蜜蜂中,两个通路的PNs均被同时记录。群体响应潜伏期显示,两个通路的PNs随着气味浓度升高,响应潜伏期缩短。通过触角电图记录到气味在触角上的响应起始时间为99毫秒,并已从PNs的响应潜伏期中扣除。注意,在最低浓度下,响应过弱而无法测量潜伏期,因此被排除。C) 与B中相同的PNs的群体响应放电率。随着气味浓度升高,响应强度增强,其中l-ALT表现出更强的响应强度。在B和C中,数据均给出均值和标准差。
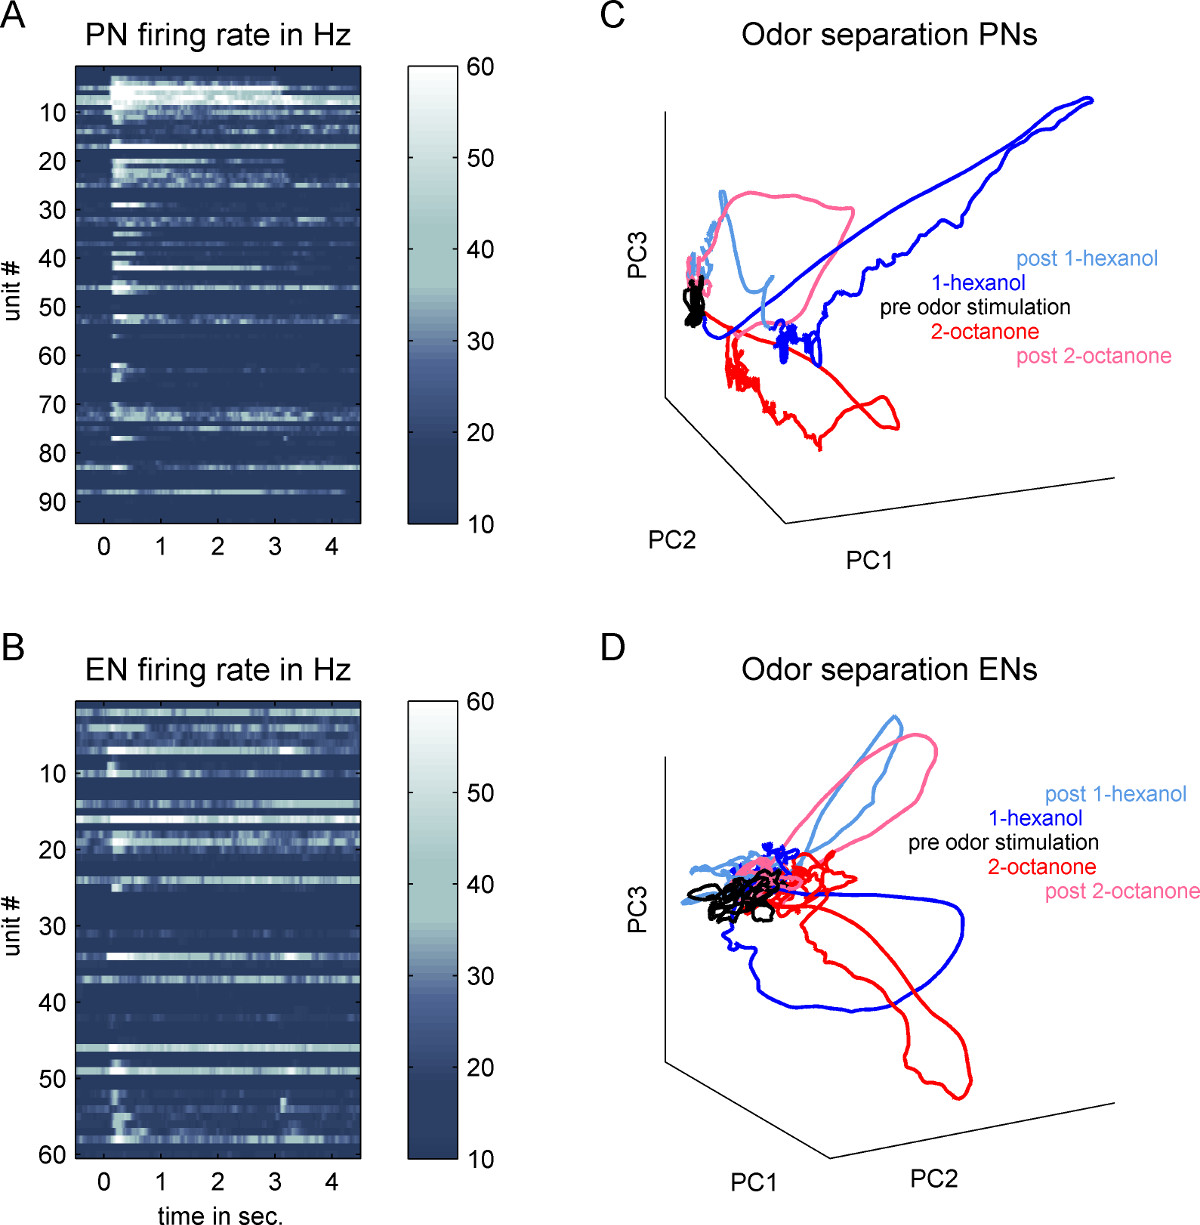
图 6. 比较蜜蜂嗅觉通路中两个连续处理阶段的群体活动。 数据来自20只动物,其被1-己醇和2-辛酮刺激。A) 每条线代表一个投射神经元(PN)在10次1-己醇气味重复刺激下的平均放电率,以伪彩色编码表示。气味呈现从时间0开始,持续三秒。B) 与A图相同,但针对蘑菇体外在神经元(EN)。A图所示矩阵可视为1-己醇气味刺激期间投射神经元群体的向量。我们计算了2-辛酮气味刺激期间的同类群体向量,并将这两个向量用于主成分分析(PCA),同时保留时间维度。C) 将前三个主成分(PC1、PC2和PC3)相互作图,以说明在触角叶输出端PN群体活动中的气味分离情况。气味呈现前的时间段以黑色标记。1-己醇刺激期间三秒的活动以蓝色显示。2-辛酮刺激期间的活动以红色显示。此外,我们还展示了1-己醇气味结束后1.5秒(post)的活动(浅蓝色)以及2-辛酮结束后的活动(粉红色)。请注意,在PN群体水平上,两种气味引发的轨迹非常不同,最终均趋于一个“稳态点”,该状态持续整个气味刺激期。仅在气味终止后,轨迹才返回无气味刺激时的基础活动水平。D) 在EN群体水平上进行了相同的分析,代表蘑菇体输出端的活动。与PN活动相比,气味引发的轨迹区分度较低。此外,未观察到明显的“稳态点”。初始由气味诱导的轨迹与基础活动相互混杂,即使气味仍然存在。仅在气味终止时引发了一条额外的轨迹。
视频 1. 在对PN群体向量(左)和EN群体向量(右;参见图6)进行主成分分析后,对气味诱导轨迹的时间分辨评估。 上方部分展示了前三个主成分(PC1、2 和 3)之间的相互关系图。下方图示展示了PC1、2 和 3 随时间的变化情况。灰色条形标记了气味刺激的时间段。所有图示均已同步。请注意,EN群体活动的起始略早于PN群体活动,这一现象看似违反直觉,但可通过相关神经层之间的连接方式与特性加以解释,前文已对此进行讨论1。
讨论
本文展示了定制设计的多通道微丝电极的制备与使用方法。所述电极适用于记录单个神经元和群体神经元活动,特别适用于在同一标本内对不同神经元和不同神经纤维网的潜伏期测量及其他时间响应特性进行研究(详见1,2,25)。此外,我们还展示了如何永久性地实施该微 使用导线电极,可在行为活跃的蜜蜂中实现稳定的长期记录,持续数小时至数天。
细胞外多通道记录已成为一种理想的工具,可同时实现高时间分辨率和空间信息的获取。在我们的研究中,这些记录对象可以是平行的神经纤维束2,也可以是两个不同的神经组织区域1。该技术能够并行地以单个神经元水平对多个神经元进行记录和分析,并具有高时间分辨率。多通道记录技术最初应用于哺乳动物38,随后也被用于昆虫研究39-41。随着细胞外多通道记录技术的发展与改进,该领域取得了显著进展42,43。例如,新型电极的开发44以及新的峰电位分类与聚类算法的应用45。目前,细胞外多通道记录技术的一般方法已有详尽描述46-48。本视频中展示的自制电极还可通过增加每个电极上的微丝数量,或将微丝绞合,以获得可测量且恒定的尖端间距。然而,这两种改进方式均会导致电极的柔韧性降低和厚度增加。
与常用于天蛾、蝗虫和蟑螂等体型较大昆虫的细胞外记录的硅探针相比40,49–51 所述的微 微丝电极体积更小、具有柔韧性,能够轻松适应潜在的脑组织运动,因此可可靠地用于蜜蜂和蚂蚁等表现出更广泛行为谱的小型社会性昆虫。大多数硅胶探针具有锋利的杆状结构,在插入过程中会切断轴突和神经组织,而所述的微丝电极呈圆形、柔韧且尺寸更小,对周围组织的损伤更小,这在需要研究完整且行为正常的动物长期可塑性时具有明显优势。微丝电极的另一优势在于其生产成本低且操作简便。与需要仔细清洁昂贵硅胶探针不同,微丝电极在插入脑组织前可直接剪切使用,因此不存在堵塞问题。此外,可在同一制备样本中使用多个微丝电极,分别插入不同的神经髓质区域1 或纤维束2 正如我们在此展示的。该方法特别适用于分析和比较不同神经处理水平上的时间特征,如反应潜伏期和相互作用。
我们意识到,细胞外记录的信号并不能反映单个细胞的活动 本身它始终是电极尖端周围电压活动的复合信号。为了精确定位信号来源,需计算两个相邻微电极之间的差值 始终会计算同一电极内的导线通道。因此,用于提取单细胞活动的尖峰信号源总是非常接近其中一个电极通道,从而产生易于区分的尖峰波形。来自较远区域的信号,如肌肉活动或邻近神经组织的活动,会同时到达两个电极,引发相似的波形形状和振幅,这类信号将在此过程中被剔除。通过使用Spike2的模板匹配技术,我们能够高度确信所获得的是单细胞活动,虽然并非完全等同于单个神经元活动,但已非常接近。然而,若采用细胞内记录技术,则可完全避免尖峰分类的问题。
使用锐电极或膜片钳电极进行单细胞记录可深入了解单个神经元的生理特性。然而,由于昆虫神经元及其神经突的尺寸较小(例如小于1 µm(蜜蜂PNs) 52仅能进行短期记录。此外,细胞内记录可能具有侵入性,并可能对细胞造成损伤,这或许是导致时间受限的另一个原因。 体内 昆虫体内的细胞内记录很少能持续超过一小时,而这一时间窗口对于马丁·哈默的开创性工作而言已足够。53 记录了单个已鉴定神经元——下颌腹侧未配对神经元#1(VUMmx1)的细胞内活动,并将其活动直接与奖赏通路联系起来。Juliane Mauelshagen54 在经典条件反射过程中,通过细胞内记录技术检测了一类已鉴定的蘑菇体外在神经元——柄外在神经元#1(PE1)的活动。同一类神经元也是Menzel与Manz研究的关注焦点。55 当他们在对肯尼恩细胞进行电刺激后发现长时程增强(LTP)时。然而,冈田及其同事56 可利用细胞内记录中特征明确的放电模式(双峰和三峰放电)来识别PE1神经元的细胞外记录信号。综上所述,结合已鉴定神经元的细胞内记录与长期细胞外记录,可能成为未来研究的有力工具。
然而,使用锐利电极在多个处理层级上同时记录多个细胞(单位),并持续数小时乃至数天以分析它们的时间响应关系和/或可塑性变化,几乎是不可能的。
利用对钙离子敏感的染料进行蜜蜂脑部钙成像的早期研究57,58,使得对气味反应空间模式的分析成为可能59-62。然而,在许多情况下,钙敏感染料需通过侵入性操作导入脑组织,这会进一步限制蜜蜂的寿命以及所分析细胞的固有特性。这一问题在其他模式生物(如果蝇)中已通过基因编码的钙传感器得到解决63,64。但总体而言,钙传感器本身也可能带来其他局限性,例如其可能作为钙缓冲剂,从而影响气味反应的时间特性。结合细胞内记录与钙成像或计算方法,可验证成像过程的时间分辨率是否准确65,66。然而,成像过程本身的时间分辨率仍较为有限。光学采集系统通常采用CCD成像,时间分辨率为5–20 Hz67,尽管双光子成像可能实现更快的采集速度68。但提高采样频率通常会伴随空间分辨率的下降。此外,蜜蜂研究中使用的钙敏感染料会发生漂白现象,这也限制了数据采集的持续时间69。
与其他昆虫生理记录技术相比,我们开发的柔性多通道微丝电极能够长期稳定地记录行为状态蜜蜂的单个神经元及群体神经元活动。
我们展示了如何在同一动物的不同处理阶段使用这两种电极,这有助于分析不同记录位点之间的时序编码特性。根据具体的研究问题和模式昆虫,本文所展示的电极制作基本方法很容易进行扩展或调整。例如,可以使用超过三根单芯导线来制作多通道电极。此外,还可以增加记录位点的数量,实现对两个以上神经束或神经节的时序特性的观测。我们希望这一方法能够启发更多科研人员,并对理解小型脑中复杂的神经信息处理机制产生积极贡献。
披露
作者声明不存在任何竞争性经济利益。
致谢
作者感谢伊莎贝尔·雷乌斯(Isabelle Reus)在确定电极插入侧追踪方法方面的工作,感谢托比亚斯·罗森鲍姆(Tobias Rosenbaum)进行 LabView 编程,感谢安妮克·迈耶(Anneke Meyer)进行数据分析并提供有益的讨论。我们感谢兰道夫·门策尔(Randolf Menzel)在电极开发早期阶段提供的讨论和实际帮助。此外,我们感谢布莱恩·史密斯(Brian Smith)对 MS-B 的博士后支持。本研究由德国研究基金会(Deutsche Forschungsgemeinschaft, DFG, SPP 1392, Ro1177/5-2)资助,项目负责人:WR。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 石蜡油 | Fluka | 76235 | |
| 气味 | Sigma Aldrich | ||
| PBS | pH 7.2 | ||
| 4% 甲醛 | 赛默飞世尔科技 | 28908 | 无甲醇 |
| Triton X | BioChemica | A1388 | |
| 水杨酸甲酯 | Roth | 4529.1 | |
| 四甲基罗丹明葡聚糖,10,000 MW(Microruby) | Invitrogen | D7162 | 避光 |
| Alexa 488 肼 | Invitrogen | A-10436 | 避光 |
| Alexa 568 肼 | Invitrogen | A-10437 | 避光 |
| 蜜蜂林格氏液 | 参见 Brill 等2 | ||
| 聚氨酯涂层铜线 | Elektrisola | 15 µm 直径 & P155 绝缘 | |
| 牙科蜡 | Densply Detrey | 64103015S1 | 中等熔点 |
| 牙科蜡 | Flexaponal | 124-202-00 | 低熔点石蜡 |
| KWIK SIl | WPI | 03L | |
| 18针插座 | 康拉德电子 | 189634-62 | |
| 热熔胶 | Conrad Electronic | 827673 | |
| 焊针 | Conrad Electronics | 830283 | 12 V |
| 焊接端子接线片 | Conrad Electronic | 531901 | |
| 玻璃电极 | WPI | 1B100F-3 | |
| 微型固定针 | 精细科学工具 | 26002-20 | V2A 0.2 x 12 mm |
| 可切换头级放大器 | Tucer Davis Technologies | SH16 | |
| 头端连接模块 | NPI | INT-03M | |
| 放大器模块 | NPI | PDA-2F | |
| 数据采集板 | 国家仪器公司 | NI-6123, Ni-6143 | |
| 采集软件 | 国家仪器 | Lab View 8.2 | 定制设计 |
| spike 分选 | CED | Spike 2 v7.11 | |
| Matlab | Mathworks | R2008B | |
| 显微操作仪 | Leitz | 手动 | |
| AG导线 | WPI | AGT05100 | |
| 共聚焦激光扫描显微镜 | Leica | TCS SP2 AOBS | |
| AMIRA | 水星计算机系统 | 2/5/2000 |
参考文献
- Strube-Bloss, M. F., Herrera-Valdez, M. a, Smith, B. H. Ensemble response in mushroom body output neurons of the honey bee outpaces spatiotemporal odor processing two synapses earlier in the antennal lobe. PLoS ONE. 7 (11), (2012).
- Brill, M. F., Rosenbaum, T., Reus, I., Kleineidam, C. J., Nawrot, M. P., Rössler, W. Parallel processing via a dual olfactory pathway in the honeybee. The Journal of neuroscience the official journal of the Society for Neuroscience. 33 (6), 2443-2456 (2013).
- Menzel, R. The honeybee as a model for understanding the basis of cognition. Nature Reviews Neuroscience. 13 (11), 758-768 (2012).
- Sandoz, J. Behavioral and neurophysiological study of olfactory perception and learning in honeybees. Frontiers in Systems Neuroscience. 5, (2011).
- Giurfa, M. Cognition with few neurons: higher-order learning in insects. Trends in Neurosciences. 36 (5), 1-10 (2013).
- Menzel, R., Giurfa, M. Cognitive architecture of a mini-brain: the honeybee. Trends in cognitive sciences. 5 (2), 62-71 (2001).
- Hildebrand, J. G., Shepherd, G. M. Mechanisms of olfactory discrimination: converging evidence for common principles across phyla. Annual Review of Neuroscience. 20, 595-631 (1997).
- Wilson, R. I., Mainen, Z. F. Early events in olfactory processing. Annu. Rev. Neurosci. 29, 163-201 (2006).
- Streinzer, M., Kelber, C., Pfabigan, S., Kleineidam, C. J., Spaethe, J. Sexual dimorphism in the olfactory system of a solitary and a eusocial bee species. The Journal of comparative neurology. 521 (12), (2013).
- Nishino, H., Nishikawa, M., Mizunami, M., Yokohari, F. Functional and topographic segregation of glomeruli revealed by local staining of antennal sensory neurons in the honeybee Apis mellifera. The Journal of comparative neurology. 515 (2), 161-180 (2009).
- Schneider, D. Elektrophysiologische Untersuchungen von Chemo- und Mechanorezeptoren der Antenne des Seidenspinners Bombyx mori L. Zeitschrift für Vergleichende Physiologie. 40 (1), 8-41 (1957).
- Menzel, R., Rybak, J. Antennal lobe of the honeybee. Handbook of brain microcircuits. , 427-432 (2011).
- Girardin, C. C., Kreissl, S., Galizia, C. G. Inhibitory connections in the honeybee antennal lobe are spatially patchy. Journal of neurophysiology. 109 (2), 332-343 (2013).
- Meyer, A., Galizia, C. G. Elemental and configural olfactory coding by antennal lobe neurons of the honeybee (Apis mellifera). Journal of comparative physiology. A, Neuroethology, sensory, neural, and behavioral. 198 (2), 159-171 (2012).
- Abel, R., Rybak, J., Menzel, R. Structure and response patterns of olfactory interneurons in the honeybee, Apis mellifera. The Journal of comparative neurology. 437 (3), 363-383 (2001).
- Kirschner, S., Kleineidam, C. J., Zube, C., Rybak, J., Grünewald, B., Rössler, W. Dual olfactory pathway in the honeybee, Apis mellifera. The Journal of comparative neurology. 499 (6), 933-952 (2006).
- Galizia, C. G., Rössler, W. Parallel olfactory systems in insects: anatomy and function. Annual review of entomology. 55 (August), 399-420 Forthcoming.
- Ito, K., Shinomiya, K., et al. A coordinated nomenclature system for the insect brain. Neuron. 81 (4), 755-765 (2014).
- Rybak, J. The digital honey bee brain atlas. Honeybee Neurobiology and Behavior. , 125-140 (2012).
- Rössler, W., Brill, M. F. Parallel processing in the honeybee olfactory pathway: structure, function, and evolution. Journal of comparative physiology. A, Neuroethology, sensory, neural, and behavioral. 199 (11), (2013).
- Mobbs, P. The brain of the honeybee Apis mellifera. I. The connections and spatial organization of the mushroom bodies. Philosophical transactions of the Royal Society of London. Series B, Biological. 298 (1091), 309-354 (1982).
- Strausfeld, N. J. Organization of the honey bee mushroom body: representation of the calyx within the vertical and gamma lobes. The Journal of comparative neurology. 450 (1), 4-33 (2002).
- Witthöft, W. Absolute Anzahl und Verteilung der Zellen im Hirn der Honigbiene. Zeitschrift für Morphologie der Tiere. 61 (1), 160-184 (1967).
- Rybak, J., Menzel, R. Anatomy of the mushroom bodies in the honey bee brain: the neuronal connections of the alpha-lobe. The Journal of Comparative Neurology. 465, 444-465 (1993).
- Strube-Bloss, M. F., Nawrot, M. P., Menzel, R. Mushroom body output neurons encode odor-reward associations. The Journal of neuroscience : the official journal of the Society for Neuroscience. (8), 3129-3140 (2011).
- Haddad, R., Lanjuin, A., Madisen, L., Zeng, H., Murthy, V. N., Uchida, N. Olfactory cortical neurons read out a relative time code in the olfactory bulb. Nature neuroscience. (May), 1-11 (2013).
- Martin, J. P., Beyerlein, A., et al. The neurobiology of insect olfaction: Sensory processing in a comparative context. Progress in neurobiology. 95 (3), 427-447 (2011).
- Nawrot, M. P. Dynamics of sensory processing in the dual olfactory pathway of the honeybee. Apidologie. 43 (3), 269-291 (2012).
- Farkhooi, F., Froese, A., Muller, E., Menzel, R., Nawrot, M. P. Cellular adaptation facilitates sparse and reliable coding in sensory pathways. PLoS computational biology. 9 (10), e1003251(2013).
- Saha, D., Leong, K., Katta, N., Raman, B. Multi-unit recording methods to characterize neural activity in the locust (Schistocerca americana) olfactory circuits. Journal of visualized experiments JoVE. (71), (2013).
- Saha, D., Leong, K., Li, C., Peterson, S., Siegel, G., Raman, B. A spatiotemporal coding mechanism for background-invariant odor recognition. Nature neuroscience. 16 (12), 1-13 (2013).
- Mizunami, M., Okada, R., Li, Y., Strausfeld, N. J. Mushroom Bodies of the Cockroach Activity and Identities of Neurons. Journal of Comparative Neurology. 519 (July), 501-519 (1998).
- Okada, R., Ikeda, J., Mizunami, M. Sensory responses and movement-related activities in extrinsic neurons of the cockroach mushroom bodies. Journal of Comparative Physiology A: Sensory, Neural, and Behavioral Physiology. 185 (2), 115-129 (1999).
- Haehnel, M., Froese, A., Menzel, R. In vivo Ca2+ imaging of mushroom body neurons during olfactory learning in the honey bee. Journal of visualized experiments JoVE. (30), (2009).
- Felsenberg, J., Gehring, K. B., Antemann, V., Eisenhardt, D. Behavioural pharmacology in classical conditioning of the proboscis extension response in honeybees (Apis mellifera). Journal of visualized experiments JoVE. (47), (2011).
- Rehder, V. Quantification of the honeybee’s proboscis reflex by electromyographic recordings. Journal of Insect Physiology. 33 (7), 501-507 (1987).
- Serrano, E., Nowotny, T., Levi, R., Smith, B. H., Huerta, R. Gain control network conditions in early sensory coding. PLoS computational biology. 9 (7), e1003133(2013).
- Hubel, D. H., Wiesel, T. N. Receptive fields and functional architecture of monkey striate cortex. The Journal of physiology. 195 (1), 215-243 (1968).
- Christensen, T. A., Pawlowski, V. M., Lei, H., Hildebrand, J. G. Multi-unit recordings reveal context-dependent modulation of synchrony in odor-specific neural ensembles. Nature neuroscience. 3 (9), 927-931 (2000).
- Byers, K. J. R. P., Sanders, E., Riffell, J. A. Identification of olfactory volatiles using gas chromatography-multi-unit recordings (GCMR) in the insect antennal lobe. Journal of visualized experiments JoVE. (72), e4381(2013).
- Perez-Orive, J., Mazor, O., Turner, G. C., Cassenaer, S., Wilson, R. I., Laurent, G. Oscillations and sparsening of odor representations in the mushroom body. Science. 297 (5580), 359-365 (2002).
- Stevenson, I. H., Kording, K. P. How advances in neural recording affect data analysis. Nature. 14 (2), 139-142 (2011).
- Buzsáki, G. Large-scale recording of neuronal ensembles. Nature neuroscience. 7 (5), 446-451 (2004).
- Viventi, J., Kim, D. -H., et al. Flexible, foldable, actively multiplexed, high-density electrode array for mapping brain activity in vivo. Nature neuroscience. 14 (12), 1599-1605 (2011).
- Pouzat, C., Mazor, O., Laurent, G. Using noise signature to optimize spike-sorting and to assess neuronal classification quality. Journal of neuroscience methods. 122 (1), 43-57 (2002).
- Lewicki, M. S. A review of methods for spike sorting: the detection and classification of neural action potentials. Network. 9 (4), R53-R78 (1998).
- Quian Quiroga, R., Panzeri, S. Extracting information from neuronal populations: information theory and decoding approaches). Nature reviews. Neuroscience. 10 (3), 173-185 (2009).
- Einevoll, G. T., Franke, F., Hagen, E., Pouzat, C., Harris, K. D. Towards reliable spike-train recordings from thousands of neurons with multielectrodes. Current opinion in neurobiology. 22 (1), 11-17 (2012).
- Riffell, J. a, Lei, H., Abrell, L., Hildebrand, J. G. Neural basis of a pollinator’s buffet: olfactory specialization and learning in Manduca sexta. Science. 164 (6), 877-892 (2013).
- Bender, J. a, Pollack, A. J., Ritzmann, R. E. Neural activity in the central complex of the insect brain is linked to locomotor changes. Current biology : CB. 20 (10), 921-926 (2010).
- Perez-Orive, J., Bazhenov, M., Laurent, G. Intrinsic and circuit properties favor coincidence detection for decoding oscillatory input. The Journal of neuroscience the official journal of the Society for Neuroscience. 24 (26), 6037-6047 (2004).
- Rybak, J. Die strukturelle Organisation der Pilzkörper und synaptische Konnektivität protocerebraler Interneuronen im Gehrin der Honigbiene, Apis mellifera.: eine licht- und elektronenmikroskopische Studie. , (1994).
- Hammer, M. An identified neuron mediates the unconditioned stimulus in associative olfactory learning in honeybees. Nature. 366, 59-63 (1993).
- Mauelshagen, J. Neural correlates of olfactory learning paradigms in an identified neuron in the honeybee brain. Journal of neurophysiology. 69, 609-625 (1993).
- Menzel, R., Manz, G. Neural plasticity of mushroom body-extrinsic neurons in the honeybee brain. The Journal of experimental biology. 208 (22), 4317-4332 (2005).
- Okada, R., Rybak, J., Manz, G., Menzel, R. Learning-related plasticity in PE1 and other mushroom body-extrinsic neurons in the honeybee brain). The Journal of neuroscience: the official journal of the Society for Neuroscience. 27 (43), 11736-11747 (2007).
- Joerges, J., Küttner, A., Galizia, C. G., Menzel, R. Representation of odours and odour mixtures visualized in the honeybee brain. Nature. 387, 285-288 (1997).
- Galizia, C. G., Joerges, J., Küttner, A., Faber, T., Menzel, R. A semi-in-vivo preparation for optical recording of the insect brain. Journal of neuroscience. 76 (1), 61-69 (1997).
- Galizia, C. G., Sachse, S., Rappert, A., Menzel, R. The glomerular code for odor representation is species specific in the honeybee Apis mellifera. Nature. 2 (5), 473-478 (1999).
- Sandoz, J. -C. Odour-evoked responses to queen pheromone components and to plant odours using optical imaging in the antennal lobe of the honey bee drone Apis mellifera L. The Journal of experimental biology. 209 (18), 3587-3598 (2006).
- Fernandez, P. C., Locatelli, F. F., Person-Rennell, N., Deleo, G., Smith, B. H. Associative conditioning tunes transient dynamics of early olfactory processing. The Journal of neuroscience the official journal of the Society for Neuroscience. 29 (33), 10191-10202 (2009).
- Locatelli, F. F., Fernandez, P. C., et al. Nonassociative plasticity alters competitive interactions among mixture components in early olfactory processing. European Journal of Neuroscience. 37 (1), (2013).
- Silbering, A. F., Bell, R., Galizia, C. G., Benton, R. Calcium imaging of odor-evoked responses in the Drosophila antennal lobe. Journal of visualized experiments JoVE. (61), 1-7 (2012).
- Strutz, A., Völler, T., Riemensperger, T., Fiala, A., Sachse, S. Calcium imaging of neural activity in the olfactory system of Drosophila. Genetically Encoded Functional Indicators. 72, 43-70 (2012).
- Galizia, C. G., Kimmerle, B. Physiological and morphological characterization of honeybee olfactory neurons combining electrophysiology, calcium imaging and confocal microscopy. Journal of Comparative Physiology A: Neuroethology, Sensory, Neural, and Behavioral Physiology. 190 (1), 21-38 (2004).
- Helmchen, F., Waters, J. Ca2+ imaging in the mammalian brain in vivo. European journal of pharmacology. 447 (2-3), 119-129 (2002).
- Stierle, J. S., Galizia, C. G., Szyszka, P. Millisecond stimulus onset-asynchrony enhances information about components in an odor mixture. Journal of Neuroscience. 33 (14), 6060-6069 (2013).
- Haase, A., Rigosi, E., et al. In-vivo two-photon imaging of the honey bee antennal lobe. Biomedical optics express. 2 (1), 131-138 (2010).
- Becker, P. L., Fay, F. S. Photobleaching of fura-2 and its effect on determination of calcium concentrations. The American journal of physiology. 253 (4 pt 1), C613-C618 (1987).
重印与许可
