嗅觉功能障碍是多种神经退行性疾病(包括帕金森病、阿尔茨海默病和亨廷顿病)的常见特征。本文介绍了一组用于评估小鼠嗅觉辨别和嗅觉检测能力的测试方法,可用于测量神经退行性疾病小鼠模型中的嗅觉功能。
本文内容
摘要
摘要
在许多神经退行性疾病中,尤其是帕金森病中,嗅觉功能障碍被报道为疾病早期即出现的症状,可能成为早期检测的有用行为学标志。在神经退行性疾病中实现更早期的检测是该领域的重要目标,因为此时神经保护性治疗最有可能发挥有效作用。因此,在利用啮齿类动物模型开展的临床前研究中,测试新型神经保护策略时,嗅觉评估在判断化合物的治疗潜力及其向临床转化的可能性方面可能具有重要价值。在本研究中,我们描述了一系列可用于测量小鼠嗅觉功能的嗅觉测试组合。本研究所采用的测试方法被选中,是因为它们能够测量小鼠对食物气味、社交气味以及非社交气味相关的嗅觉能力。这些测试方法已被证实对于表征新型帕金森病遗传小鼠模型,以及评估潜在的疾病修饰疗法具有重要价值。
引言
嗅觉功能障碍与多种神经退行性疾病相关,包括帕金森病(PD)、阿尔茨海默病和亨廷顿病1。在帕金森病中,嗅觉损害表现为气味识别、检测和辨别能力的下降,在患者中的发生率高达70–95%2-5。这些损害可能比帕金森病的主要运动症状早出现达4年,提示嗅觉功能障碍可能是帕金森病早期阶段的信号6-10。由于嗅觉损害在帕金森病中出现较早,研究者对嗅觉功能障碍及其潜在机制产生了浓厚兴趣。在啮齿类动物的临床前研究中,嗅觉功能障碍可作为敏感的结局指标,用于预测新型治疗策略的治疗潜力。
已设计并广泛使用多种测试方法来表征帕金森病(PD)啮齿类动物模型中的感觉运动功能障碍,并评估新型治疗方法的治疗潜力11-15。尽管PD患者的嗅觉缺陷已有充分记录,但在许多模型中,嗅觉功能并未被常规检测。然而,随着遗传性PD形式的发现,以及PD是一种影响范围超出感觉运动功能的全身性疾病的观念日益被接受,这一状况正在改变。目前,已有大量针对PD及其他神经退行性疾病遗传小鼠模型的研究,在表征过程中纳入了嗅觉功能分析16-24。鉴于人们对神经退行性疾病中嗅觉功能障碍的兴趣日益增长,我们旨在建立一套嗅觉测试组合,可用于表征新型神经退行性疾病模型,并在临床前研究中评估潜在的疾病修饰疗法。本研究中描述的测试方法已在表征研究和临床前研究中得到应用18,25。
本研究中重点介绍的检测方法已被证明在常用的α-突触核蛋白过表达帕金森病小鼠模型中,对嗅觉功能障碍具有较高的检测敏感性18。这些方法包括埋藏颗粒测试26,27、改良版方块测试23,24,28,29以及习惯化/去习惯化测试30。需要指出的是,本研究中描述的检测方法存在多种改良版本,均可作为小鼠嗅觉功能的敏感指标;本文所重点介绍的是我们实验室使用经验最为丰富且常规应用的检测方法。
方案
本方案的所有步骤均遵循辛辛那提大学 IACUC 制定的动物护理与使用指南和规定。
1. 一般注意事项
- 如果可能,在小鼠活跃的暗周期阶段进行测试。通常在弱光环境下进行测试,并至少在暗周期开始1小时后进行。然而,如果无法在暗周期进行测试,则可在光周期内完成全部三项测试。需注意,当小鼠在其睡眠周期内接受测试时,嗅探时间可能会减少。注意:尽管这些测试可在睡眠周期进行,但小鼠可能对埋藏的颗粒、方块或带气味的滤芯表现出较低的兴趣。
- 为减少外界嗅觉线索的任何影响,在每次测试过程中应始终佩戴基础手套,并在接触每只小鼠和每次试验前,在基础手套外再套上一副清洁手套。一般原则是,如有疑问,应更换一副清洁手套。由于手套需频繁更换,应准备一盒手套以便随时取用。注意:我们所有动物操作均使用丁腈手套。
- 在受试动物之间使用消毒/灭菌剂清洁测试材料和笼具,是本组测试中的重要步骤,旨在降低疾病传播风险,并去除不需要的嗅觉线索。
2. 埋藏颗粒实验
- 至少在测试前两天,记录每只小鼠的体重,然后将其食物限制为体重的90%。在测试前及食物限制期间,每天给予每只小鼠1至2粒将在测试中使用的小鼠饲料颗粒例如, 一块加糖的谷物)。请勿跳过此步骤,因为小鼠对食物具有新物恐惧倾向,若此前未食用过实验用颗粒饲料,可能在测试期间不会主动寻找颗粒。
- 在所有测试日,将小鼠的笼子放置于测试室内,仅保留滤膜盖,不放置水瓶和饲料盒,使其在测试前适应环境1小时。
- 在适应阶段,将干净的小鼠笼子装入约3 cm高的清洁垫料,确保垫料在笼内均匀分布。设置计时器为5 min。
- 经过1小时的适应后,将1粒甜味麦片颗粒埋入垫料下方0.5 cm处,使其不可见。
- 将测试小鼠从其饲养笼中取出,置于测试笼的中央,盖上带滤膜的笼盖,并启动计时器。
- 当小鼠挖出食物颗粒并开始进食时,停止计时。记录挖出埋藏食物颗粒所需的时间。
- 如果小鼠在5分钟内未找到颗粒,则结束试验,并记录该小鼠得分为300秒。将颗粒移至垫料顶部,使小鼠能够接触到,并允许小鼠食用颗粒。
- 试验结束后,将小鼠放回其原饲养笼中。
- 清空测试笼中的垫料,并使用动物房清洁液清洗笼子。
- 对每只小鼠重复步骤 2.4 至 2.9,并在处理每只小鼠前后更换手套。
- 所有小鼠测试结束后,给予适量食物以维持其体重在正常值的90%。
- 在第2至第5天以与第1次测试相同的方法进行测试,唯有一项例外:每次试验时将颗粒埋在笼内不同的位置。
- 在第6次测试日,进行表面颗粒试验。
- 在表面颗粒试验中,按照测试第1天的相同步骤操作,但将颗粒置于垫料表面而非埋入垫料下方。记录小鼠发现并开始进食颗粒所需的时间。
3. 区块测试
- 将小鼠单独饲养于清洁笼具中,每笼放置5个方块(标记为A-E),并在处理每个笼具前更换手套。
- 24小时后进行测试。将测试小鼠转移至测试区域,移除水瓶和饲料盒,将笼内全部5个垫块连同一把垫料放入标有动物编号的塑料袋中。将密封好的塑料袋放置在小鼠所在笼盒的顶部。
- 在测试前1小时,将动物置于其饲养笼中适应环境,期间移除水瓶、饲料盒和饲料块。
- 每次更换笼具时应更换手套,以避免动物/区组之间的气味交叉。
- 将小鼠笼具并排放置在桌面上,每笼之间至少间隔10 cm。调整摄像机位置,确保笼子的正面(而非长侧边)清晰可见。
- 将计时器设为30秒,并在卡片上标注实验关键信息(日期、小鼠编号、试验编号) 等等。)。对标签录像 2-3 秒。
- 将标有该小鼠编号的A-D区组从塑料袋中取出,放置于笼具中央,确保在视频摄像机中清晰可见。各区组之间保持约1 cm的间距。将滤帽重新盖回笼具上。启动计时器,持续录像30秒。
- 30 秒后停止记录,将方块从笼子中取出并放回塑料袋中。
- 更换手套,然后对下一只小鼠进行操作,重复第一次试验所用的相同步骤。每只小鼠共进行6次试验,确保每次试验之间的间隔约为5分钟。
- 第7天th 试验时,除将小鼠自身笼内的D区更换为另一只小鼠笼内的E区外,其余步骤同第1至第6次试验,使该小鼠接触来自其自身笼内的A、B、C区及来自另一只小鼠笼的E区。在实验记录本中注明每只小鼠所接触的E区来源,并交替放置E区在每只小鼠笼中的位置。例如, ABCE 或 AEBC)。从与原始笼中同伴相同性别的小鼠中取用 E 区块,但不得取自原始笼中同伴。录像 30 秒。
- 完成7次试验后,将动物放回新的清洁笼子中,与其原始同笼动物一起饲养。用温和的洗涤剂和水清洗试验中使用的方块,并置于空气中晾干,以备后续试验使用。
4. 习惯化/去习惯化
- 以类似于方块测试的方式进行习惯化/去习惯化测试,但不使用带有小鼠气味的方块,而是使用装有浸染不同提取物对的棉片的组织弹夹。
- 使用单个无气味的组织弹夹,按照步骤 3.1–3.4 进行操作。
- 在测试房间内对小鼠进行适应。
- 在另一个房间内准备带气味的组织弹夹。将一小团棉球放入干净的弹夹中,然后向棉球中加入 5 μl 的提取物(例如,杏仁提取物)。将弹夹盖扣紧覆盖棉球,并放入专用盒子或袋子中,标记该气味名称。
- 对第二种气味(例如,茴香提取物)执行相同操作。在处理不同气味之间需更换手套。确保棉球完全被包裹在组织弹夹内。注意:棉球暴露的纤维可能引起动物因筑巢目的而对棉球本身产生兴趣,而非关注气味本身。
- 随后,按照步骤 3.6–3.10,前六次试验使用一种带气味的组织弹夹,第七次试验使用第二种带气味的组织弹夹。
5. 视频录像分析
- 进行方块测试以及习惯化/去习惯化测试时,由对实验条件不知情的评分者记录动物嗅探每个方块的时间,嗅探定义为鼻部与方块的接触。如需要,可记录其他行为,例如在第7次试验中接近新方块(E)所需的时间,以及每次试验期间的总活动量(即在笼子长度和宽度方向上移动的次数)。使用秒表从录像中对嗅探时间和接近时间进行评分 。
- 同样,在习惯化/去习惯化测试中,由对实验条件不知情的评分者记录动物嗅探滤芯的时间、接近滤芯所需的时间以及运动活动量。
6. 统计学
- 使用非参数统计方法分析埋藏颗粒测试,因为找到颗粒的潜伏期数据通常表现出方差的异质性。将第3至5天找到颗粒的潜伏期取平均值,然后使用Mann–Whitney U检验比较不同小鼠组别之间的差异。同样,对于表面颗粒测试部分,使用Mann–Whitney U检验分析找到颗粒的潜伏期,以比较不同基因型之间的差异。
- 对于方块测试,分析第7次试验(引入新气味方块)的数据。通常采用非参数分析方法以考虑方差的异质性。为了分析不同实验组小鼠在新方块上嗅探所用时间以及接近方块所用时间的差异,使用Mann–Whitney U检验。使用Wilcoxon符号秩检验比较在新方块上嗅探的时间与在熟悉方块上嗅探的时间。
- 对于习惯化/去习惯化测试,在试验1、6和7上进行参数分析,方法与先前研究20类似。如果小鼠表现出极少或没有嗅探行为,则使用非参数分析方法。
结果
埋藏颗粒测试、方块测试以及习惯化/去习惯化测试均为评估小鼠嗅觉功能的高效方法。利用这些测试,我们已在多种帕金森病遗传小鼠模型中发现嗅觉功能的显著改变,包括α-突触核蛋白过表达(Thy1-aSyn)18和Atp13a2基因敲除小鼠。与对照组相比,Thy1-aSyn小鼠和Atp13a2基因敲除小鼠寻找埋藏颗粒所需时间均更长18。图1-3展示了来自野生型小鼠和Atp13a2基因敲除小鼠的实验数据。在埋藏颗粒测试中,Atp13a2基因敲除小鼠发现埋藏颗粒的潜伏期较野生型对照组小鼠显著延长(图1)。在方块测试中,野生型小鼠和Atp13a2基因敲除小鼠均更倾向于嗅探来自其他小鼠笼子的新异方块,而非来自自身笼子的方块(图2)。在习惯化/去习惯化测试中,野生型小鼠对同一气味表现出嗅探时间逐渐减少的习惯化现象,当引入新异气味时,其嗅探时间则显著增加(图3)。

图1. 埋藏颗粒测试。 20至27月龄的野生型(n = 10)与 Atp13a2 基因敲除型(n = 14)小鼠发现颗粒所需潜伏期。* p < 0.05,Mann-Whitney U 检验。
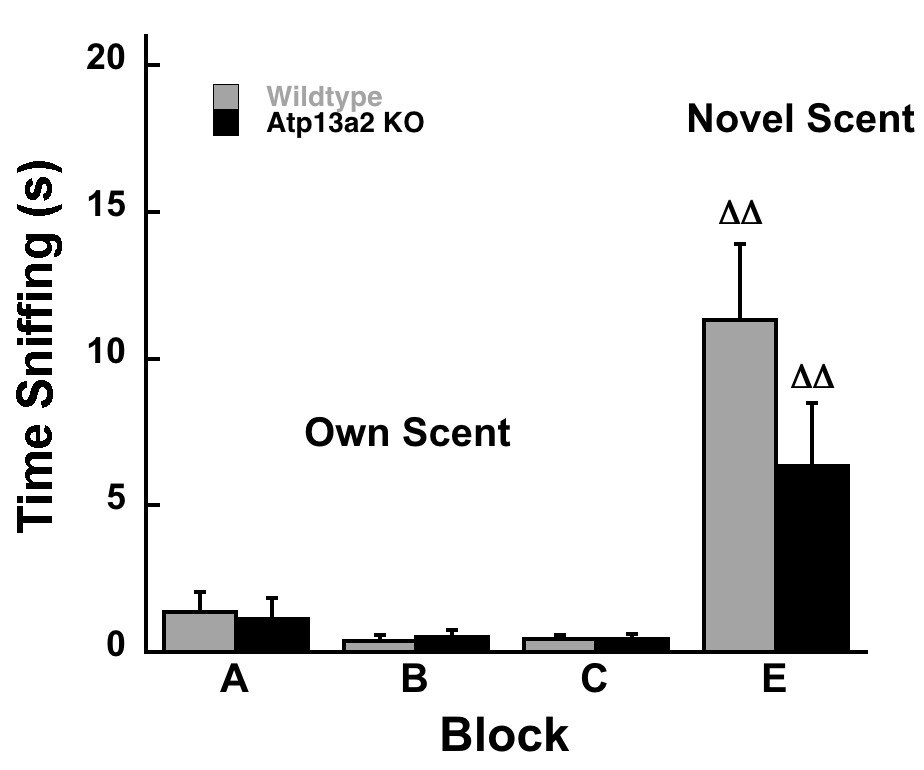
图2. 物体识别测试。 20至27月龄的野生型(n = 10)和 Atp13a2 基因敲除(n = 12)雌性小鼠在物体识别测试中对新物体(E)的嗅探时间。ΔΔ 表示与同基因型小鼠对物体 A、B 和 C 的比较,p < 0.01。采用 Mann-Whitney U 检验。
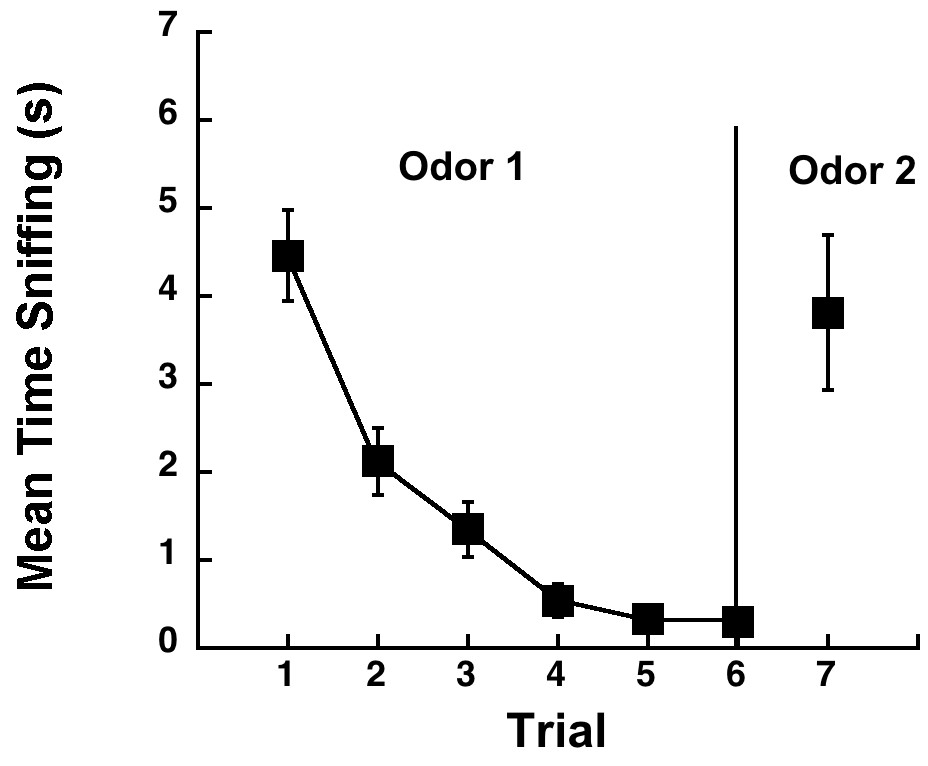
图3. 习惯化/去习惯化实验。 野生型小鼠(年龄9个月,n = 7)在6次试验中对有气味滤芯的平均嗅探时间,以及在第7次试验中引入带有新气味的滤芯后的反应。
讨论
本研究中描述的每项测试均用于测量小鼠嗅觉功能的不同方面。埋藏颗粒测试用于评估嗅觉的食物动机方面,通过测试饥饿(食物限制但非完全禁食)的小鼠探测埋藏于垫料下的可口甜味麦片颗粒的能力来实现。方块测试则更多地反映嗅觉功能的社会性方面,用于检测小鼠区分自身气味与同种个体气味的能力。习惯化/去习惯化测试用于评估小鼠区分熟悉与新异无害气味的能力。在表征新模型时采用多种测试非常重要,因为食物动机或恐惧反应的异常可能会影响突变小鼠与对照组之间的观察差异。例如,如果仅进行方块测试并观察到小鼠对带有同种个体气味的方块嗅探减少,则尚不清楚这是由于存在嗅觉缺陷,还是由于对同种个体的恐惧反应增强从而导致回避该方块。当进行多项测试且在所有测试中均观察到缺陷时,这强烈支持存在嗅觉功能障碍的结论。然而,如果仅在某一项测试中观察到差异而在其他测试中未见异常,则可能存在较轻微的嗅觉障碍,但必须排除其他可能的解释(i.e., 恐惧增强或食物动机降低)。在测试小鼠嗅觉功能时还需考虑其他重要因素,包括小鼠的遗传背景品系和性别。不同的遗传背景品系(i.e., C57BL/6、DBA、etc.)可能对小鼠行为产生显著影响,因此建议在开展完整实验前,先在相同遗传背景的野生型小鼠中优化各实验方案。此外,建议将雄性和雌性小鼠分别进行测试,因为雄性小鼠的嗅觉系统对处于动情期的雌性极为敏感,对动情期雌性气味的嗅觉感知可能干扰其在全部三项测试中的表现。
在小鼠嗅觉测试中,某些步骤必须严格遵守。实验人员需注意自身可能带给动物的气味干扰,操作过程中必须佩戴手套,并在每只动物之间频繁更换手套。实验人员在进行嗅觉测试时,应避免使用香水或古龙水,这是良好的实验习惯。尽管实验流程中的某些部分不可更改,但其他部分可根据实际情况进行适当调整,而不会影响测试的有效性或灵敏度。例如,可根据测试小鼠品系的不同及其对刺激物适应速度的快慢,增加或减少适应性训练的次数。这些测试的主要局限在于其均依赖某种形式的动机驱动,无论是食物驱动还是社交驱动,因此当观察到反应改变时,难以完全排除动机异常作为解释因素的可能性。通过分析其他参数,如测试期间的活动情况以及接近刺激物所需的时间,可在一定程度上减少此类干扰。
一旦掌握,这些检测方法即可用于研究神经退行性疾病新小鼠模型的表型。此外,具有最高检测效能的测试可纳入潜在治疗药物的临床前研究中(例如参见参考文献25)。
致谢
本方案遵循辛辛那提大学动物护理与使用委员会(IACUC)制定的所有动物护理与使用指南和规定。本工作由美国国立卫生研究院/国家神经疾病与中风研究所(NIH/NINDS NS07722)以及帕金森病与运动障碍加德纳家庭中心资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Cap'n Crunch | 桂格燕麦 | 30000065310 | |
| 木制积木 | Lara's Crafts | 10144 | |
| 杏仁香精 | 克罗格 | 011110664716 | |
| 茴香香精 | 克罗格 | 011110615619 | |
| 香蕉香精 | 克罗格 | 011110669919 | |
| 椰子香精 | 克罗格 | 011110669889 | |
| 柠檬香精 | 克罗格 | 011110669957 | |
| 橙子香精 | 克罗格 | 0011110669964 | |
| 组织包埋盒 | Sigma-Aldrich | Z672122-500EA | 由 Simport 生产,货号:M490-2 |
| 脱脂棉球 | 克罗格 | 11110793119 | |
| 小鼠笼具 | Ancare | 19 x 29 x 12.7 cm | |
| 摄像机 | 索尼 | HDR-HC9 | |
| MiniDV 磁带 | 索尼 DVC premium | 27242523432 | 60 分钟长时播放 |
参考文献
- Hawkes, C. Olfaction in neurodegenerative disorder. Adv. Otorhinolaryngol. 63, 133-151 (2006).
- Ward, C., Hess, W., Calne, D. Olfactory impairment in Parkinson's disease. Neurology. 33, 943-946 (1983).
- Doty, R., Stern, M., Pfeiffer, C., Gollomp, S., Hurtig, H. Bilateral olfactory dysfunction in early stage treated and untreated idiopathic Parkinson's disease. J. Neurol. Neurosurg. Psychiatry. 55, 138-142 (1992).
- Doty, R., Deems, D., Stellar, S. Olfactory dysfunction in parkinsonism: a general deficit unrelated to neurologic signs, disease stage, or disease duration. Neurology. 38, 1237-1244 (1988).
- Tissingh, G., et al. Loss of olfaction in de novo and treated Parkinson's disease: possible implications for early diagnosis. Movement Disorders. 16 (1), 41-46 (2001).
- Montgomery, E., Baker, K., Lyons, K., Koller, W. Abnormal performance on the PD test battery by asymptomatic first-degree relatives. Neurology. 52, 757-762 (1999).
- Berendse, H., et al. Subclinical dopaminergic dysfunction in asymptomatic Parkinson's disease patients' relatives with a decreased sense of smell. Ann. Neurol. 50 (1), 34-41 (2001).
- Ponsen, M., Stoffers, D., Booij, J., van Eck-Smit, B., Wolters, E., Berendse, H. Idiopathic hyposmia as a preclinical sign of Parkinson's disease. Ann. Neurol. 56, 173-181 (2004).
- Langston, J. The Parkinson's complex: parkinsonism is just the tip of the iceberg. Ann. Neurol. 59 (4), 591-596 (2006).
- Ross, G., et al. Association of olfactory dysfunction with risk for future Parkinson's disease. Ann. Neurol. 63, 167-173 (2008).
- Fleming, S., et al. Early and progressive sensorimotor anomalies in mice overexpressing wild-type human alpha-synuclein. J. Neurosci. 24, 9434-9440 (2004).
- Fleming, S., Ekhator, O., Ghisays, V. Assessment of sensorimotor function in mouse models of Parkinson's disease. J. Vis. Exp. , e50303(2013).
- Schallert, T., Tillerson, J. L. Intervention strategies for degeneration of DA neurons in parkinsonism: Optimizing behavioral assessment of outcome. Central Nervous System Diseases. , 131-151 (2000).
- Whishaw, I., O'Connor, W., Dunnett, S. The contributions of motor cortex, nigrostriatal dopamine and caudate-putamen to skilled forelimb use in the rat. Brain. 109 (5), 805-843 (1986).
- Schwarting, R., Huston, J. The unilateral 6-hydroxydopamine lesion model in behavioral brain research. Analysis of functional deficits, recovery and treatments. Prog Neurobiol. 49 (3), 215-266 (1996).
- Glasl, L., et al. Pink1-deficiency in mice impairs gait, olfaction and serotonergic innervation of the olfactory bulb. Experimental Neurology. 235, 214-227 (2012).
- Kim, Y., Lussier, S., Rane, A., Choi, S., Andersen, J. Inducible dopaminergic glutathione depletion in an α-synuclein transgenic mouse model results in age-related olfactory dysfunction. Neuroscience. 172, 379-386 (2011).
- Fleming, S., Tetreault, N., Mulligan, C., Huston, C., Masliah, E., Chesselet, M. Olfactory deficits in mice overexpressing human wildtype alpha-synuclein. The European Journal of Neuroscience. 28 (2), 247-256 (2008).
- Nuber, S., et al. A progressive dopaminergic phenotype associated with neurotoxic conversion of α-synuclein in BAC-transgenic rats. Brain. 136 (2), 412-432 (2013).
- Macknin, J., Higuchi, M., Lee, V., Trojanowski, J., Doty, R. Olfactory dysfunction occurs in transgenic mice overexpressing human tau protein. Brain Res. 1000, 174-178 (2004).
- Lazic, S., et al. Olfactory abnormalities in Huntington's disease: decreased plasticity in the primary olfactory cortex of R6/1 transgenic mice and reduced olfactory discrimination in patients. Brain Res. 1151, 219-226 (2007).
- Wesson, D., Wilson, D., Nixon, R. Should olfactory dysfunction be used as a biomarker of Alzheimer's disease? Expert Review of Neurotherapeutics. 10 (5), 633-635 (2010).
- Taylor, T., Caudle, W., Miller, G. VMAT2-deficient mice display nigral and extranigral pathology and motor and nonmotor symptoms of Parkinson's disease. Parkinsons Dis. 2011, 124-165 (2011).
- Tillerson, J., Caudle, W., Parent, J., Gong, C., Schallert, T., Miller, G. Olfactory discrimination deficits in mice lacking the dopamine transporter or the D2 dopamine receptor. Behav. Brain Res. 172, 97-105 (2006).
- Fleming, S., et al. A pilot trial of the microtubule-interacting peptide (NAP) in mice overexpressing alpha-synuclein shows improvement in motor function and reduction of alpha-synuclein inclusions. Mol. Cell. Neurosci. 4, 597-606 (2011).
- Crawley, J. What's Wrong with My Mouse? Behavioral Phenotyping of Transgenic and Knockout Mice. , Wiley-Liss. NY. (2000).
- Nathan, B., Yost, J., Litherland, M., Struble, R., Switzer, P. Olfactory function in apoE knockout mice. Behav. Brain Res. 150, 1-7 (2004).
- Spinetta, M. A simple and sensitive odor recognition test for rats and mice detects retrograde amnesia caused by ethanol or other drugs that interfere with memory consolidation. Society for Neuroscience. , Washington, D.C. (2005).
- Spinetta, M., et al. Alcohol-induced retrograde memory impairment in rats: prevention by caffeine. Psychopharmacology. 201 (3), 361-371 (2008).
- Bielsky, I., Hu, S., Szegda, K., Westphal, H., Young, L. Profound impairment in social recognition and reduction in anxiety-like behavior in vasopressin V1a receptor knockout mice. Neuropsychopharmacology. 29, 483-493 (2004).
重印与许可
