皮质脊髓束是主要的躯体感觉运动传导通路之一,可通过在啮齿类动物脑干中进行单侧损毁,以评估针对中枢神经系统的促进神经可塑性疗法。本方案描述了该手术操作(“锥体束切断术”)及术后评估方法。
本文内容
摘要
摘要
在啮齿类动物脑干的延髓锥体中,可以单侧完全切断皮质脊髓束(CST)。CST 是一种运动传导束,在人类中对远端肌肉控制具有重要意义,在啮齿类动物中作用相对较小。单侧锥体切断会导致脊髓主要在对侧失去 CST 的神经支配,从而引起前肢短暂的运动功能障碍以及持久的灵巧性丧失。皮质脊髓束的同侧投射较弱。我们已优化了手术方法,以提高损伤完全性的概率。本文描述了术后护理措施。在 Montoya 阶梯颗粒取物实验和水平梯子实验中,损伤后长达 8 周仍可检测到行为缺陷;而在筒状装置直立实验中的缺陷仅表现为短暂出现。因此,筒状装置实验可能仅适用于检测短期功能恢复。我们展示了如何从电生理学和解剖学角度评估损伤情况及可塑性变化,并描述了如何分析未受损侧皮质脊髓束的纤维跨越中线向去神经区域发出侧支 sprouting 的方法。由于延髓内锥体靠近基底动脉,持续获得 >90% 完全性损伤具有挑战性,且动物存活率可能较低。本方案还介绍了替代的手术入路和行为学检测方法。锥体切断模型是评估促进神经可塑性治疗手段的有效工具,这类治疗可增强损伤后完整纤维的侧支 sprouting。
引言
皮质脊髓束(CST)是人类脊髓中的主要运动传导束之一。脊髓损伤后若该传导束受损,将导致显著的运动灵巧性丧失。在人类中,皮质脊髓束对精细运动尤其重要,例如手指运动和远端肌肉的控制。该传导束也存在于啮齿类动物中,但其在脊髓内的解剖位置与人类不同,且其损伤所导致的功能障碍较轻1-4。
一种体内皮质脊髓束(CST)损伤模型涉及单侧锥体切断术,即在锥体交叉前方切断脑干腹侧的一个锥体(图1)。锥体是延髓腹侧明显的解剖结构,皮质脊髓束在交叉前由此通过。在大鼠中,大部分纤维(约95%)在延髓尾端交叉,并随后位于脊髓背内侧部。然而,约10%的交叉后纤维走行于背外侧柱中。其余约5%的纤维则未交叉,保留在同侧,并沿脊髓腹内侧部下行5,6。锥体切断术后,脊髓失去了来自对侧CST的直接输入(图1)。
锥体束切断模型特别适用于检测未受损皮质脊髓束纤维对某种治疗的反应。该模型可用于评估完整纤维在脊髓中线对侧的可塑性及出芽情况,这些纤维会支配去神经支配区域。在脊髓损伤模型中已观察到皮质脊髓束显著出芽,并且尤其介导前肢功能的恢复7-10。某种治疗可能旨在增强前肢功能的恢复。治疗效果可通过行为学评估、对未受损通路的解剖示踪技术以及终末期电生理实验进行检验3,11,12。
与大多数其他脊髓损伤的临床前模型相比,其优势在于该模型特异性地影响单一传导束,而其他脊髓损伤通常会影响多个传导束。该模型仅在解剖位置表浅且明确的单一传导束上造成损伤。另一优势在于锥体束切断术是一种可重复的损伤模型。它是一种合适的 体内 供研究人员测试旨在恢复运动系统损伤或疾病后运动功能的潜在神经可塑性诱导疗法的效果的资源 13,14.
方案
伦理声明:所有操作均符合英国政府内政部以及1986年《动物(科学程序)法案》的指导方针。
1. 手术与损伤
注意:如果术者发现动物术后体重常减少超过术前体重的10%,使用体重超过220 g的大鼠可能有助于术后恢复。
- 手术前,使用圆筒直立测试 15 或 Montoya 阶梯测试 24 检测动物的前肢偏好。建议切断对应优势前肢的锥体束/皮质脊髓束(CST)。
注意:手术前两天,将以下物品放入笼内,使大鼠熟悉术后恢复期间有益的食物:水凝胶包、湿糊状饲料和高热量营养补充剂。这些食品补充剂的无菌版本可从多个供应商处获得。 - 使用异氟烷(诱导浓度5%,维持浓度1%至2%)在氧气(流速:1.5 L/min)中对雌性 Lister 白化大鼠(体重介于200至250 g之间)进行麻醉。 注意:麻醉剂的选择至关重要。吸入式麻醉剂(如异氟烷)比常用的氯胺酮能更快调节麻醉深度,且更有利于控制呼吸频率和深度。本实验选用的麻醉剂为异氟烷。注意:若术者发现动物术后常减重超过术前体重的10%,可选用体重超过220 g的大鼠以利于术后恢复。
- 动物麻醉后,皮下注射卡洛芬作为镇痛药,以减轻炎症并提供镇痛作用。注意:根据本实验室兽医的建议,锥体束切断术期间给予卡洛芬。阿片类药物可能在手术期间进一步抑制呼吸。
- 使用恒温毯系统和直肠温度探头,在手术期间将动物体温维持在37 °C。
- 通过检查足掌夹捏回缩反射和眨眼反射确认完全麻醉。
注意:可选措施:为应对术中可能出现的呼吸问题,可行气管插管和通气。但需注意,手术过程中需要移动气管。 - 麻醉后,将大鼠置于仰卧位,剃除颈部腹侧毛发,并用1%氯己定擦拭巾和/或酒精擦拭巾消毒。在动物体表覆盖无菌手术巾,并始终保持操作区域无菌。
- 麻醉后,将大鼠置于仰卧位,剃除颈部腹侧毛发,并用1%氯己定和酒精擦拭巾消毒。在动物体表覆盖无菌手术巾,并始终保持操作区域无菌。
注意:可选操作:手术期间可将大鼠头部固定于立体定位仪中,以限制头部活动,i.e. 枕骨。 - 使用无菌手术刀(#10)从下巴至胸骨近端做一条2至3 cm长的正中切口。可选操作:使用小型止血钳牵拉皮肤。
- 使用钝头剪刀和有齿镊子反向操作,钝性分离覆盖气管的组织上层(如腺体,e.g. 下颌下腺和腮腺)及肌肉。操作时始终保持在正中线上。组织应易于分离。
- 暴露气管后,将其向一侧移开。其下方可见正中线,伴有两个白色脂肪垫,标记着前端的正中线位置。
- 在白色脂肪垫前方,继续钝性分离组织,直至暴露颅底腹侧表面(基枕骨)。在正中线处可触及一隆起结构,覆盖基底动脉。前方颅骨呈轻微凸起状。
- 插入长齿牵开器(齿长5.5 mm或16 mm),将气管向一侧移开(最大1 cm),以暴露颅底。气管移位可能阻碍呼吸。
注意:对于部分动物,手术过程中需多次短暂松开牵开器以减轻气管受压,e.g. 每10分钟松开2分钟。可使用钩状牵开器替代长齿牵开器,以减少移位造成的牵拉应力。 - 仔细电凝通向喉部前端可见的小血管,以防出血。
注意:为避免损伤喉返神经,电凝前应小心将血管从组织壁上分离。 - 调整显微镜,为后续手术操作做好准备。
- 使用精细镊子去除覆盖颅底的骨膜。调整牵开器,以获得最佳钻孔视野。
- 用精细镊子触诊基枕骨不平整的表面,注意正中线处有一隆起,覆盖基底动脉。前方颅骨呈轻微凸起。
- 根据所需损伤侧别,在正中线旁约1 mm处,沿内外侧方向钻孔。
注意:请注意大鼠处于仰卧位,其左侧可能位于操作者右手侧! - 成孔后,使用钻头进行小幅度垂直上下运动,向正中线方向扩大孔径,直至清晰暴露基底动脉,并向侧方扩大至少2 mm。
- 确保基底动脉清晰可见。锥体束可通过其略微隆起的形态(图2)及邻近血管进行识别。
- 使用精细镊子清除残留的骨碎片。
- 在舌头上滴加一滴盐酸多沙普仑(一种呼吸兴奋剂)。
- 使用26号针头和精细镊子在基底动脉外侧纵向切开硬脑膜。用棉签吸除脑脊液(CSF)及任何出血。
- 避免损伤基底动脉,使用Vannas弹簧剪刀在垂直于基底动脉的方向上,沿锥体束宽度做约1.5 mm宽、0.5 mm深的切口(图2),以切断皮质脊髓束(CST)纤维。
注意:预先在显微剪刀尖端后0.5 mm处做标记。硬脑膜打开后,可轻微移动基底动脉以更好地暴露锥体束。 - 使用26号针头尖端重复切割,以确保损伤范围包含靠近基底动脉的纤维。
- 用棉签轻压止血。可选操作:可用明胶海绵覆盖切口。
- 移除牵开器,复位组织,并仅使用3-0 Vicryl缝线缝合皮肤。
- 术后将动物置于32 °C的培养箱中直至完全清醒,并根据需要皮下注射5 ml生理盐水。切勿让动物无人看护。
- 术后第一天,皮下注射卡洛芬,用于抗炎及缓解术后疼痛。
- 术后一周内密切监测动物状况,之后至少每周监测一次。
- 根据术后需要,将补水凝胶包、果泥状婴儿食品、湿糊饲料和干颗粒饲料放置于笼底。提供带有长吸管的饮水瓶(无钢珠阀)。
结果
存活率。
在我们开展的一项代表性研究中,20只雌性Lister大鼠(200至250克)中有16只存活。最常见的并发症是呼吸困难,其原因可能是气管移位,或延髓锥体背侧的呼吸中枢受损(如孤束核、疑核和臂旁核)。文献中也报道过类似的结果16。
行为学结果。
已采用多种行为学测试来评估啮齿类动物锥体束切断术后的感觉运动功能,其中最常用的是水平梯子测试、单颗粒抓取测试、圆筒直立测试和Montoya阶梯测试。文献中还描述了其他一些测试方法,包括颗粒抓取测试、攀绳测试、步态分析和黏性胶带测试3,17-19。大多数测试显示,损伤后约1周即可出现功能性运动缺陷。目前,文献中报道的大多数研究仅进行至术后42天4,11,13,20,21,或更短时间的观察3,18,22。我们进行了较长时间的行为学测试,发现在锥体束切断术后8周,部分行为学测试已基本恢复至正常运动功能,但Montoya阶梯测试和水平梯子测试除外。这可能由多种原因导致:首先,损伤部位头端未完全中断的皮质脊髓束(CST)可能在脑干神经元上形成突触,通过间接中继通路支配脊髓运动神经元;其次,未受损的对侧CST可能发生侧支出芽,并在脑干或脊髓中的中继神经元上建立新的突触连接;第三,其他保留的运动传导通路,如网状脊髓束、前庭脊髓束或红核脊髓束,可能代偿部分运动功能。因此,在锥体束切断模型中,许多行为学测试难以检测到持久的治疗效应。然而,该模型中的某些行为学测试仍可能反映损伤早期恢复速度的加快,而这通常与特定干预措施相关。
圆筒饲养实验 3,4,23
根据圆筒直立实验,对应优势前肢的皮质脊髓束(CST)受到损伤。将大鼠置于有机玻璃圆筒中,观察其3分钟内的直立行为。损伤前,在垂直探索过程中对某一前肢(即优势前肢)有轻微的使用偏好(图3A)。损伤发生在优势侧,损伤后1周,对侧前肢的使用率下降至28%(重复测量方差分析,p <0.05;事后分析显示,动物在第1、2和3周均存在显著缺陷,p <0.05,Fisher’s LSD)。损伤后4周,动物功能恢复,45%的直立动作中使用了受损前肢,6周后该比例达到57%(n = 16,数据以均值±标准误表示)。类似地,Starkey et al.(4)采用圆筒实验评估了锥体束切断术后小鼠长达42天的行为,发现整个测试期间受损前肢的使用率均显著降低。
Montoya阶梯测试 24
大鼠在进行此项测试前需要经过预训练,以便在损伤前适应环境。为提高测试期间动物的动机,测试前一晚对动物进行食物限制,每只大鼠仅给予15 g食物。食物剥夺后的大鼠被放入蒙托亚阶梯装置中持续15分钟。装置每侧均设有7级带孔阶梯,每个孔内含有3粒食丸。记录每侧获取的食丸总数。损伤后3天,使用对侧/受损前爪获取的食丸数量较损伤前显著下降,从61%降至3%图3B)。损伤后4周,大鼠取回 pellet 的能力仍然显著受损,仅能取回20%的 pellet。大鼠在第8周时仍表现出显著缺陷,此时仅摄入了29%的 pellet(重复测量方差分析,p <0.05, 事后检验 分析显示,动物在所有测试周的对侧均存在显著缺陷,p <0.05,Fisher's LSD)。损伤同侧前爪在损伤后1周内受影响;然而,到第二周时功能恢复(重复测量ANOVA,p <0.05, 事后检验 分析显示,动物在术后第3天和第1周对同侧前爪存在显著缺陷,p <0.05,Fisher’s LSD)。同侧前爪的初始功能缺陷可能是由于损伤了经由切断的锥体束走行的同侧皮质脊髓束所致,随后通过侧支 sprouting 及恢复得以改善。
水平梯测试 25
大鼠在进行此项测试前需要经过预训练。大鼠在长1 m、横档间距不规则的梯子上行走3次。随后以慢动作回放视频,对每只爪子的脚滑和踏空总次数进行量化分析。图中所示为 图3C 表示患侧和健侧(前爪 + 后爪)的总失误和滑脱次数占总步数的百分比。大鼠在损伤后1周的错误次数显著增加,患侧和健侧分别为10%和11%。这种功能缺陷在对侧/患侧持续至第8周,错误率仍达10%,而在同侧/健侧则于2周时恢复(重复测量方差分析, 事后检验 分析显示,动物在所有周数的对侧均存在显著缺陷,在同侧于第1周和第3周也存在显著缺陷,p <0.05,Fisher's LSD)。
电生理学检测
在终末电生理实验装置中,动物通过腹腔注射乌拉坦进行麻醉。在整个实验过程中,动物体温维持在 37 °C ± 1 °C。其颈部腹侧、前肢和胸部区域均被剃毛,并用碘伏消毒。延髓锥体按先前所述方法暴露,通过腹侧入路切开皮肤和胸大肌,暴露上臂的桡神经。切断桡神经的远端,并将其置于矿物油浴中的两个银丝钩状电极上。使用同心双极电极在不同深度对任一侧锥体进行刺激,刺激参数为 5 次脉冲,频率 300 Hz,刺激强度逐步增加。记录始终来自瘫痪侧前肢的桡神经(图 4)。
在对侧锥体进行刺激时,未受伤动物的桡神经在12至20毫秒的潜伏期内表现出强烈的反应(图4B)。同侧刺激仅偶尔引起激活反应(图4C)。对于先前接受过对侧锥体切断术的动物,在损伤部位上方刺激受损传导束时,记录肢体同侧的桡神经未出现任何反应(图4B’)。然而,在损伤后12周,刺激记录电极同侧锥体内的皮质脊髓束纤维时,桡神经的激活反应强于未受伤动物(图4C’)。
解剖学结果。
根据《1986年动物(科学实验程序)法案》附表1的规定,在手术后10周对动物实施安乐死。此前两周,通过向偏瘫侧上肢同侧的运动皮层注射生物素化葡聚糖胺(BDA),逆行标记未受损的皮质脊髓束(CST)26(图1)。该方法可用于定量分析未受损的纤维,这些纤维跨越中线并支配对侧脊髓(图5C、D)。在未受伤动物中,仅有少量纤维跨越中线,而在损伤后该数量会增加。通过蛋白激酶C(PKC)γ免疫染色横断的颈段脊髓切片,评估受损CST的去神经化比例(图5E)16。或者,也可通过在锥体束切开损伤同侧的运动皮层注射BDA示踪剂,来评估损伤的完全性。若在对侧背内侧CST和同侧腹内侧CST中均未观察到标记,则表明实现了完全的单侧横断。

图1:示意图显示大鼠的皮质脊髓束以及锥体部位对皮质脊髓束进行单侧轴突切断。 上图:皮质脊髓神经元起源于大脑皮层第5层的锥体细胞。在实验结束前两周,将生物素标记的葡聚糖胺(以绿色表示)注射至对侧皮层。中图:神经纤维束在延髓腹侧表面形成锥体,在脊髓-延髓交界处,大部分轴突发生交叉。单侧锥体束切断术在延髓尾部进行(以红色显示)。下图:大部分皮质脊髓束沿脊髓背内侧和背外侧下行,少数未交叉纤维在同侧腹内侧下行。

图 2:大鼠脑腹侧视图。锥体因其隆起的平行凸面结构而具有明显特征(黄色框)。锥体的内侧边界由中线处的基底动脉(bas)界定,外侧边界位于凸面底部,介于基底动脉与副橄榄动脉(pol)之间中点处,如图(C)所示。开颅部位覆盖基底动脉,并向外侧延伸至副橄榄动脉(C图中红色框)。每次切割垂直于基底动脉进行(C图中红线所示,A和B图中为标本上的切割位置)。若损伤位置过于靠尾端,接近椎动脉(vert),则损伤将不完全,因为皮质脊髓束(CST)在此处开始交叉,且椎动脉偏离中线。(C)图像改编自 George Paxinos 所著《大鼠神经系统》27。注意:本图中图像左侧显示损伤部位,对应动物右侧锥体束(因动物仰卧位)。但请注意,视频中展示的是动物左侧锥体束的损伤。

图3:圆筒直立实验、Montoya阶梯颗粒取物实验和水平梯实验的代表性结果。 所有实验均在损伤后检测到运动功能缺陷。然而,在损伤后4周时,圆筒直立实验已无法检测到缺陷,而Montoya阶梯实验和水平梯实验则可持续检测到损伤后8周的持续性功能缺陷(每组n = 16,显示均值和标准误)。星号表示与损伤前基线相比p <0.05(Fisher’s LSD检验)。请点击此处查看该图的放大版本。
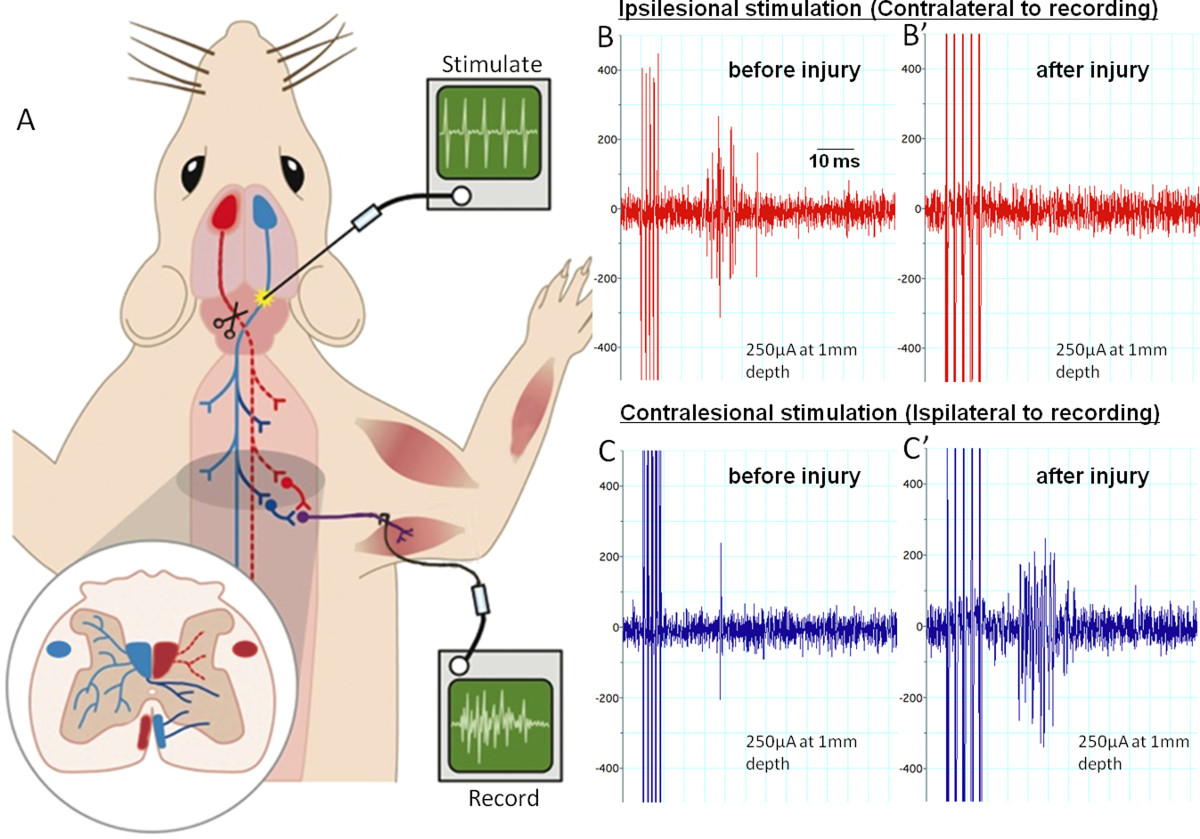
图 4:通过电生理学评估锥体束切断术前和术后的皮质脊髓束功能。 (A) 显示终末实验的装置示意图。我们在损伤和交叉部位头侧的不同深度处,以5个脉冲的串刺激锥体束。红色通路为已损伤的通路。我们在对侧记录桡神经的信号。 (B) 和(C) 显示在锥体束切断术前或术后12周,分别进行同侧刺激或对侧刺激的典型记录结果。损伤前,同侧刺激可在桡神经中诱发多个复合动作电位(迹线中的峰) (B)。损伤后这些反应消失,并且在术后12周内未恢复 (B’)。损伤前,对侧刺激仅偶尔诱发单个复合动作电位 (C)。损伤后12周,神经活动显著增强(C’),可能是由于未受损的轴突向中线对侧 sprouting(出芽)以及脊髓内部的可塑性变化所致。 请点击此处查看该图的放大版本。

图 5:锥体束切断术后的解剖学评估。 (A, B, C, D) 使用生物素标记的葡聚糖胺通过注射至对应未损伤皮质脊髓束(CST)的运动皮层来示踪皮质脊髓束(参见图 1中的绿色部分)。CST 的背内侧和腹内侧部分清晰可见(A 中背内侧部分在 B 中放大显示)。(C) 和 (D) 是 (A) 中纤维跨越中线向去神经支配侧灰质 sprouting(出芽)的放大图像,此现象是对治疗的响应。为评估损伤的完整性,对损伤后 12 周的颈段第 4 节组织进行横切并使用抗 PKC gamma 抗体染色 (E)。图像左侧的 CST 保持完整,并可见其膨出跨越中线进入去神经支配侧,这可能是由于受损的背侧 CST 结构解体所致。
讨论
我们已描述了锥体束切断损伤模型。该模型在脑干水平切断皮质脊髓束。从技术角度来看,该手术需要极高的谨慎性和精确性。脑干内包含多个核团,如位于锥体下方网状结构中的疑核和孤束核,这些核团容纳了呼吸中枢和心血管中枢。如果切口过深,可能导致突然的呼吸困难,甚至致命。我们在切断前给予多普拉姆(Dopram),以增强呼吸活动,防止呼吸突然停止。如果呼吸停止,值得用氧气对动物进行持续五分钟的通气,因其可能恢复。此外,必须绝对避免对基底动脉造成任何损伤。损伤后最初几天可能出现的并发症包括:脑干内再次出血影响生命功能、明显的体重下降、由于气管移位导致的严重呼吸困难,以及由于损伤范围广泛(包括锥体外侧的下橄榄核)引起的动物严重定向障碍和平衡问题。这些并发症可作为实验终点处理,必要时可对动物实施安乐死。术后第一周的密切监测至关重要。可给予补充食物以抵消体重下降。气道炎症(呼吸音粗糙)通常在一至两天内自行消退。总体而言,年轻动物更易于手术操作,因为其颈部较浅;此外,它们的恢复能力更强,呼吸相关并发症也更少。
通过锥体束切断术实现锥体束的完全损伤需要一定的操作经验。类似地,Steward et al. 16 的两项研究在试图重复 Benowitz et al. 28 之前的实验时,报告了初期较高的死亡率,并发现部分动物的损伤不完全。行为学缺陷的表现也会存在差异。我们建议,新开展手术的研究人员在正式进行任何候选疗法的完整实验之前,应先进行多次锥体束切断术的练习。为防止损伤不完全,可通过皮下注射针重复切割,确保切断靠近基底动脉的皮质脊髓纤维,具体操作如本方案所述。另一种方法是使用尖端玻璃吸管对损伤部位进行吸引,如 Zhou et al. 2003 29 所述。也可使用细钨丝切断该通路22。替代锥体束切断术的方法包括:单侧切断颈段C3背侧的锥体束,然后通过腹侧入路切断同侧C2腹侧的锥体束18。然而,如果研究目标是观察对侧锥体束的侧支 sprouting(出芽),则可能无需实现完全损伤;只要大部分锥体束被损毁,并且未损伤侧出现 sprouting 反应,即可满足实验需求。
锥体束切断损伤模型的一个目的是消融皮质脊髓束的一侧,并利用诱导神经可塑性的疗法来促进未受损同侧纤维的可塑性及出芽。该模型不适用于测试神经保护性疗法,对于此类研究应采用其他损伤模型,例如挫伤模型。锥体束切断术的效果通常通过行为学测试和解剖学分析进行评估。最常用的行为学评估方法包括水平梯测试、圆筒直立测试和Montoya阶梯测试。文献中描述的其他测试还包括颗粒抓取测试、攀绳测试、步态分析和粘性胶带测试3,17-19。然而,大多数行为学测试的结果通常仅在损伤后最长42天内进行监测3,4,11,17,18,20-22。根据以往经验,啮齿类动物在后期即使未经治疗干预也能恢复大部分功能。我们已证实,水平梯测试和Montoya阶梯颗粒抓取测试能够在较晚的时间点仍检测到功能障碍,因此可用于评估治疗引起的功能恢复情况。损伤的完整性可通过脊髓颈段前部水平的PKC gamma染色(该染色可标记背柱中的皮质脊髓束纤维)或损伤部位横切面的偶氮洋红染色来判断。此外,可将生物素化葡聚糖胺注入对侧皮层,以评估完整纤维跨越中线向去神经支配的脊髓区域出芽的情况。
总之,如果手术操作能够成功掌握,锥体束切断模型适用于评估治疗药物对中枢神经系统损伤诱导神经可塑性的能力。该模型可评估完整神经纤维的可塑性。下一步应采用更具临床相关性的模型,例如挫伤性损伤模型,以评估该药物克服影响多个传导束的大范围损伤的能力。
披露
作者无任何利益冲突需要披露。
致谢
本工作由国际脊髓研究信托基金和罗斯树信托基金资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 卡洛芬 | Norbrook | Vm No; 02000/4229 | 每日两次,每次 5 mg/kg |
| 恒温毯系统 | Harvard Instruments | 507222F | |
| 异氟烷 | Abbott | B506 | |
| 精细剪刀 - 耐用切割型 | Fine Science Tools | 14058-09 | |
| 镊子 | Fine Science Tools | 11019-12 | |
| 长齿Alm拉钩 | Fine Science Tools | 17009-07 | |
| 电凝系统套件 | Harvard Instruments | 726067 | |
| 精细Dumont镊子 | Fine Science Tools | 11251-10 | |
| 碳钢钻头 | Fine Science Tools | 19007-07 | |
| Dopram V滴剂 | Pfizer | 舌面滴加1滴 | |
| Vannas弹簧剪 | Fine Science Tools | 15000-03 | |
| 明胶海绵 | Equimedical | EQU705001 | |
| 3-0 Vicryl缝线 | Ethicon | ||
| 手术显微镜 | Zeiss | ||
| 紧凑型单气体异氟烷麻醉系统 K/F | VetTech Solutions | ||
| 电子天平 | Ohaus | NVT3201 | |
| 碳钢手术刀片 10号 | Swann-Morton | 201 | |
| 25g针头 | Terumo | NN-2525R | |
| 注射器(1 ml 和 5 ml) | Terumo | SS+01T1 / SS*05SE1 | |
| 生理盐水(0.9%氯化钠) | Fresenius Kabi | Pl 08828/0178 | |
| 棉签 | Johnson and Johnson | 5000207582502 | 使用前灭菌 |
参考文献
- Lemon, R. N. Descending pathways in motor control. Annual review of neuroscience. 31, 195-218 (2008).
- Lemon, R. N., Griffiths, J. Comparing the function of the corticospinal system in different species: organizational differences for motor specialization. Muscle & nerve. 32, 261-279 (2005).
- Starkey, M. L., et al. Assessing behavioural function following a pyramidotomy lesion of the corticospinal tract in adult mice. Experimental neurology. 195, 524-539 (2005).
- Starkey, M. L., Bartus, K., Barritt, A. W., Bradbury, E. J. Chondroitinase ABC promotes compensatory sprouting of the intact corticospinal tract and recovery of forelimb function following unilateral pyramidotomy in adult mice. Eur J Neurosci. 36, 3665-3678 (2012).
- Brosamle, C., Schwab, M. E. Cells of origin, course, and termination patterns of the ventral, uncrossed component of the mature rat corticospinal tract. The Journal of comparative neurology. 386, 293-303 (1997).
- Brosamle, C., Schwab, M. E. Ipsilateral, ventral corticospinal tract of the adult rat: ultrastructure, myelination and synaptic connections. Journal of neuroctology. 29, 499-507 (2000).
- Bareyre, F. M., et al. The injured spinal cord spontaneously forms a new intraspinal circuit in adult rats. Nat Neurosci. 7, 269-277 (2004).
- Chen, Q., Smith, G. M., Shine, H. D. Immune activation is required for NT-3-induced axonal plasticity in chronic spinal cord injury. Exp Neurol. 209, 497-509 (2008).
- Z'Graggen, W. J., et al. Compensatory sprouting and impulse rerouting after unilateral pyramidal tract lesion in neonatal rats. J Neurosci. 20, 6561-6569 (2000).
- Rosenzweig, E. S., et al. Extensive spontaneous plasticity of corticospinal projections after primate spinal cord injury. Nat Neurosci. 13, 1505-1510 (2010).
- Z'Graggen, W. J., Metz, G. A., Kartje, G. L., Thallmair, M., Schwab, M. E. Functional recovery and enhanced corticofugal plasticity after unilateral pyramidal tract lesion and blockade of myelin-associated neurite growth inhibitors in adult rats. J Neurosci. 18, 4744-4757 (1998).
- Kartje-Tillotson, G., O'Donoghue, D. L., Dauzvardis, M. F., Castro, A. J. Pyramidotomy abolishes the abnormal movements evoked by intracortical microstimulation in adult rats that sustained neonatal cortical lesions. Brain Res. 415, 172-177 (1987).
- Thallmair, M., et al. Neurite growth inhibitors restrict plasticity and functional recovery following corticospinal tract lesions. Nature Neuroscience. 1, 124-131 (1998).
- Akbik, F. V., Bhagat, S. M., Patel, P. R., Cafferty, W. B., Strittmatter, S. M. Anatomical plasticity of adult brain is titrated by Nogo Receptor 1. Neuron. 77, 859-866 (2013).
- Schallert, T., Fleming, S. M., Leasure, J. L., Tillerson, J. L., Bland, S. T. CNS plasticity and assessment of forelimb sensorimotor outcome in unilateral rat models of stroke, cortical ablation, parkinsonism and spinal cord injury. Neuropharmacol. 39, 777-787 (2000).
- Steward, O., Sharp, K., Yee, K. M. A re-assessment of the effects of intracortical delivery of inosine on transmidline growth of corticospinal tract axons after unilateral lesions of the medullary pyramid. Experimental neurology. 233, 662-673 (2012).
- Thallmair, M., et al. Neurite growth inhibitors restrict plasticity and functional recovery following corticospinal tract lesions. Nature neuroscience. 1, 124-131 (1998).
- Weidner, N., Ner, A., Salimi, N., Tuszynski, M. H. Spontaneous corticospinal axonal plasticity and functional recovery after adult central nervous system injury. Proc Natl Acad Sci U S A. 98, 3513-3518 (2001).
- Schnell, L., Schneider, R., Kolbeck, R., Barde, Y. A., Schwab, M. E. Neurotrophin-3 enhances sprouting of corticospinal tract during development and after adult spinal cord lesion. Nature. 367, 170-173 (1994).
- Starkey, M. L., Bleul, C., Maier, I. C., Schwab, M. E. Rehabilitative training following unilateral pyramidotomy in adult rats improves forelimb function in a non-task-specific way. Experimental neurology. 232, 81-89 (2011).
- Ueno, M., Hayano, Y., Nakagawa, H., Yamashita, T. Intraspinal rewiring of the corticospinal tract requires target-derived brain-derived neurotrophic factor and compensates lost function after brain injury. Brain : a journal of neurology. 135, 1253-1267 (2012).
- Maier, I. C., et al. Constraint-induced movement therapy in the adult rat after unilateral corticospinal tract injury. J Neurosci. 28, 9386-9403 (2008).
- Schallert, T., Fleming, S. M., Leasure, J. L., Tillerson, J. L., Bland, S. T. CNS plasticity and assessment of forelimb sensorimotor outcome in unilateral rat models of stroke, cortical ablation, parkinsonism and spinal cord injury. Neuropharmacology. 39, 777-787 (2000).
- Montoya, C. P., Campbell-Hope, L. J., Pemberton, K. D., Dunnett, S. B. The "staircase test": a measure of independent forelimb reaching and grasping abilities in rats. Journal of neuroscience methods. 36, 219-228 (1991).
- Soblosky, J. S., Song, J. H., Dinh, D. H. Graded unilateral cervical spinal cord injury in the rat: evaluation of forelimb recovery and histological effects. Behavioural brain research. 119, 1-13 (2001).
- Soleman, S., Yip, P., Leasure, J. L., Moon, L. Sustained sensorimotor impairments after endothelin-1 induced focal cerebral ischemia (stroke) in aged rats. Experimental neurology. 222, 13-24 (2010).
- Paxinos, G. The Rat Nervous System. , Academic Press, Inc. (1995).
- Benowitz, L. I., Goldberg, D. E., Madsen, J. R., Soni, D., Irwin, N. Inosine stimulates extensive axon collateral growth in the rat corticospinal tract after injury. Proc Natl Acad Sci U S A. 96, 13486-13490 (1999).
- Zhou, L., Baumgartner, B. J., Hill-Felberg, S. J., McGowen, L. R., Shine, H. D. Neurotrophin-3 expressed in situ induces axonal plasticity in the adult injured spinal cord. J Neurosci. 23, 1424-1431 (2003).
重印与许可
