泪腺是一种分支状器官,可产生泪液中的水性成分,对维持视觉和眼健康至关重要。本文描述了小鼠泪腺的解剖及 离体 利用培养技术解析参与泪腺发育的信号通路。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
泪腺(LG)分泌维持角膜结构和功能所必需的水样泪液,角膜是一种对视觉至关重要的透明组织。在人体中,每只眼睛外侧上方的眼眶内各有一个泪腺,通过3至5条导管将泪液输送至眼表。小鼠则具有三对主要的眼部腺体,其中研究最多的是位于耳部前方及腹侧的眶外泪腺(LG)。与其他腺体器官类似,泪腺通过上皮分支形态发生过程发育而成,即在致密的间充质内,单个上皮芽经历多轮出芽和导管形成,最终构建出由分泌性腺泡和导管相互连接而成的复杂网络。这一复杂过程在胰腺和唾液腺等多种其他上皮器官中已有充分记录。然而,泪腺的研究相对较少,调控其形态发生的机制仍不清楚。我们推测,该器官作为模型系统研究不足,可能是由于其定位、解剖和体外培养存在技术困难。因此,本文描述了获取胚胎期及出生后泪腺的解剖技术,以及组织离体(ex vivo)培养的方法。
引言
泪腺(LG)负责分泌维持视力清晰度以及眼表细胞健康、稳态和保护所必需的水样泪液。泪腺功能障碍会导致最常见且严重影响生活质量的眼部疾病之一——水液缺乏型干眼症,其特征为眼部刺激感、畏光以及视力下降1在人体中,泪腺(LG)位于眼眶外侧端上方,通过3至5条排泄管将泪液输送至眼表。小鼠有三对主要的眼部腺体,其中研究最为深入的是位于耳前腹侧(眶外)的泪腺(LG),其泪液通过一条排泄管输送至眼睛。与其他腺体器官类似,泪腺通过上皮分支形态发生过程发育形成,即在致密的间充质内,单个上皮芽经过多轮的芽体与导管形成,最终构建出由分泌性腺泡和导管组成的复杂互联网络。图1)2在发育过程中,上皮组织不仅由翼腭神经节的副交感神经大量支配,也在较小程度上受到来自颈上神经节的交感神经支配,同时逐渐形成血管化。3. 这些细胞类型之间的相互作用 即 神经元、上皮细胞、内皮细胞和间充质细胞对于成体组织的功能和维持至关重要。然而,调控泪腺发育与再生的分子机制,以及不同类型细胞间通讯如何引导这些过程,目前仍不清楚。
胚胎学的兴起 离体 培养技术已使得多种分支器官的发育与再生通路得以鉴定4培养 离体 使研究者能够在明确条件下对器官进行机械、遗传或化学操控,并实时表征器官发育及细胞间相互作用。小鼠的眼外泪腺对此技术具有高度适用性,近期研究已阐明调控其发育的信号系统2,5然而,尽管有必要深入了解分子信号在泪腺发育和再生中的作用,但目前相关研究仍然不足,这可能是因为分离该器官存在技术上的困难。本文介绍了如何分离并进行 离体 培养胚胎期小鼠泪腺以定义发育程序。
访问受限。请登录或开始试用以查看此内容。
方案
所有动物实验均严格遵循美国国立卫生研究院(National Institutes of Health)《实验动物护理与使用指南》中的建议进行。该实验方案已获得加利福尼亚大学旧金山分校机构动物护理与使用委员会(IACUC)的批准。
1. 小鼠胚胎泪腺(LG):获取与显微解剖
- 根据机构科学研究动物伦理委员会批准的程序,使用逐渐升高的CO₂处死定时妊娠的CD-1(或转基因)雌性小鼠2 吸入麻醉,随后通过颈椎脱位法处死以在相应的胚胎发育日获取胚胎。将发现阴道栓的当天记为胚胎发育第0天(e0)。
注意:泪腺(LGs)可以从 e14 单芽阶段开始采集。然而,e16(5 - 10 个芽)胚胎可获得最稳定的结果 离体 培养。 - 用70%乙醇对小鼠腹部进行消毒。捏起皮肤,使用无菌手术剪在中线处做切口,切开皮肤和腹膜以暴露腹腔。沿每个子宫角顶部的子宫系膜剪下两个子宫角,并将其置于含100单位/mL青霉素和100 μg/mL链霉素的冷磷酸盐缓冲液(PBS)或DMEM/F12培养基中 U/ml 青霉素和 100 μg/ml 链霉素
- 使用镊子(#5)将胚胎从羊膜囊中取出,并放入另一个含有冷PBS的无菌培养皿中。注意不要触碰眼睛或头部区域。
- 将胚胎置于带有透射照明底座的解剖显微镜上。如果胚胎 <e17,执行 步骤 1.5 - 1.7。如果胚胎是 >e17,这些步骤可能有所帮助,但并非必需,因此可继续进行 步骤1.8.
- 在下颌骨下方切断头部与躯干的连接(步骤1, 图2) 使用无菌解剖刀(#10 刀片)进行操作。旋转头部,使下颌位于解剖板上。用镊子固定头部,并用解剖刀切除约 ¼ 脑背侧(步骤2,1st 切割, 图2)——这一点在胚胎15天(e15)软骨硬化后尤为重要。
- 将头部调整至适当方向,以便手术刀能在两眼之间的鼻部位置刺入。沿头部中线做切口,使两眼分别位于切口两侧的两半头部分离处(步骤 2, 2)nd 切割, 图2).
- 使用两把#5镊子,取头部的一半并去除多余组织(见步骤3, 图2)。务必调整头部方向,确保位于眼部后下方角落的LG在此切除过程中不被丢失。去除眼球周围及下方多余的脑组织、软骨和鼻部组织。由于此时腺体几乎不可见,因此在去除多余组织后,应确保眼球方向正确,以免丢失LG的位置。
- 用镊子小心夹住眼睛后下方角落的皮肤,用镊子轻轻拉开以暴露泪腺。在组织上方和下方提供额外照明,以帮助观察泪腺。
注意:此时应可见泪腺(LG),其特征是在较深且致密的间充质中,导管上出现芽状结构。 - 使用镊子小心地将泪腺(LG)及其相关间充质从周围组织中分离(参考示意图和图像),注意避免夹住泪腺或其相关导管。当腺体完全与周围组织分离后,轻轻夹住位于泪腺导管基部的眼部周围上皮组织,将整个腺体取出。操作过程中需注意保护上皮周围存在的间充质,该间充质在形态上表现为致密结构,上皮组织向其内凹陷生长。
注意:可能需要进一步去除组织(如微小的骨碎片、肌肉和结缔组织),以避免邻近组织中的信号分子或生长因子产生干扰。 - 培养时,每孔收获4-5个腺体及相关的间充质组织(腺体解剖后立即接种);每100孔至少收集14个腺体 μ用于RT-PCR的RNA裂解缓冲液6.
2. 准备用于 离体 培养
该操作步骤基于发育中唾液腺所采用的方法7,8。
- 向玻璃底50 mm直径的微孔培养皿中加入200 μl DMEM F12培养基(添加100 U/ml青霉素和100 μg/ml链霉素),并加入50 μg/ml抗坏血酸和50 μg/ml全转铁蛋白7。
注意:选择DMEM F12是因为我们先前发现其可最大程度促进胚胎唾液腺的形态发生。 - 将带有0.1 μm孔径的13 mm聚碳酸酯膜滤器漂浮于培养基表面。
- 可选步骤:将3-D层粘连蛋白用DMEM/F12按1:1稀释,得到终浓度为3 mg/ml的溶液(使用200 μl移液器轻轻混匀;若出现气泡,则离心1分钟)。取15 μl稀释后的3-D层粘连蛋白加至滤膜上。
注意:该稀释比例被发现最有利于维持泪腺(LG)的三维结构,同时不影响上皮分支。然而,此步骤对LG培养并非必需。 - 将4–5个泪腺(LG)置于滤膜上或层粘连蛋白中。进行体外(ex vivo)培养24–48 小时(图3),或用4%多聚甲醛固定20 分钟,用于后续qPCR或免疫染色分析(图4)。关于胚胎腺体组织的qPCR分析,请参见Rebustini et al., 2011;关于胚胎腺体组织的免疫荧光分析,请参见以下文献:Hoffman et al. (2002) 和 Steinberg et al., (2005)。
3. 小鼠出生后及成年期泪腺(LG):解剖
- 根据相应的动物伦理委员会标准对新生小鼠实施安乐死。对于出生后第8天或更小的幼鼠,使用无菌剪刀剪断头部进行安乐死;对于出生后第8天或更大的小鼠,先用70%乙醇喷洒皮毛。
- 为定位颌下腺(LG),将小鼠侧卧置于解剖显微镜下,并从上方照明。注意:新生期及成年期的颌下腺由颈动脉、咬肌和真皮组织围成(见图5)。
- 使用小型解剖剪,在预计颌下腺位置的外侧表皮处做一小切口。
- 用镊子将表皮向耳部方向拉开,以暴露颌下腺。
- 用镊子轻轻松解颌下腺与其周围组织的连接。
- 当颌下腺完全脱离周围组织后,抓住导管与眼周上皮相连的部位,小心地通过导管将颌下腺完整取出(图1)。
- 将分离的颌下腺置于RNA裂解缓冲液中用于RT-PCR,或用4%多聚甲醛固定20 分钟,用于免疫染色。
访问受限。请登录或开始试用以查看此内容。
结果
LG通过上皮分支形态发生过程发育。在e14、e15、e16、e17和P2时期解剖获得的胚胎LG的明场图像展示了这一事件。
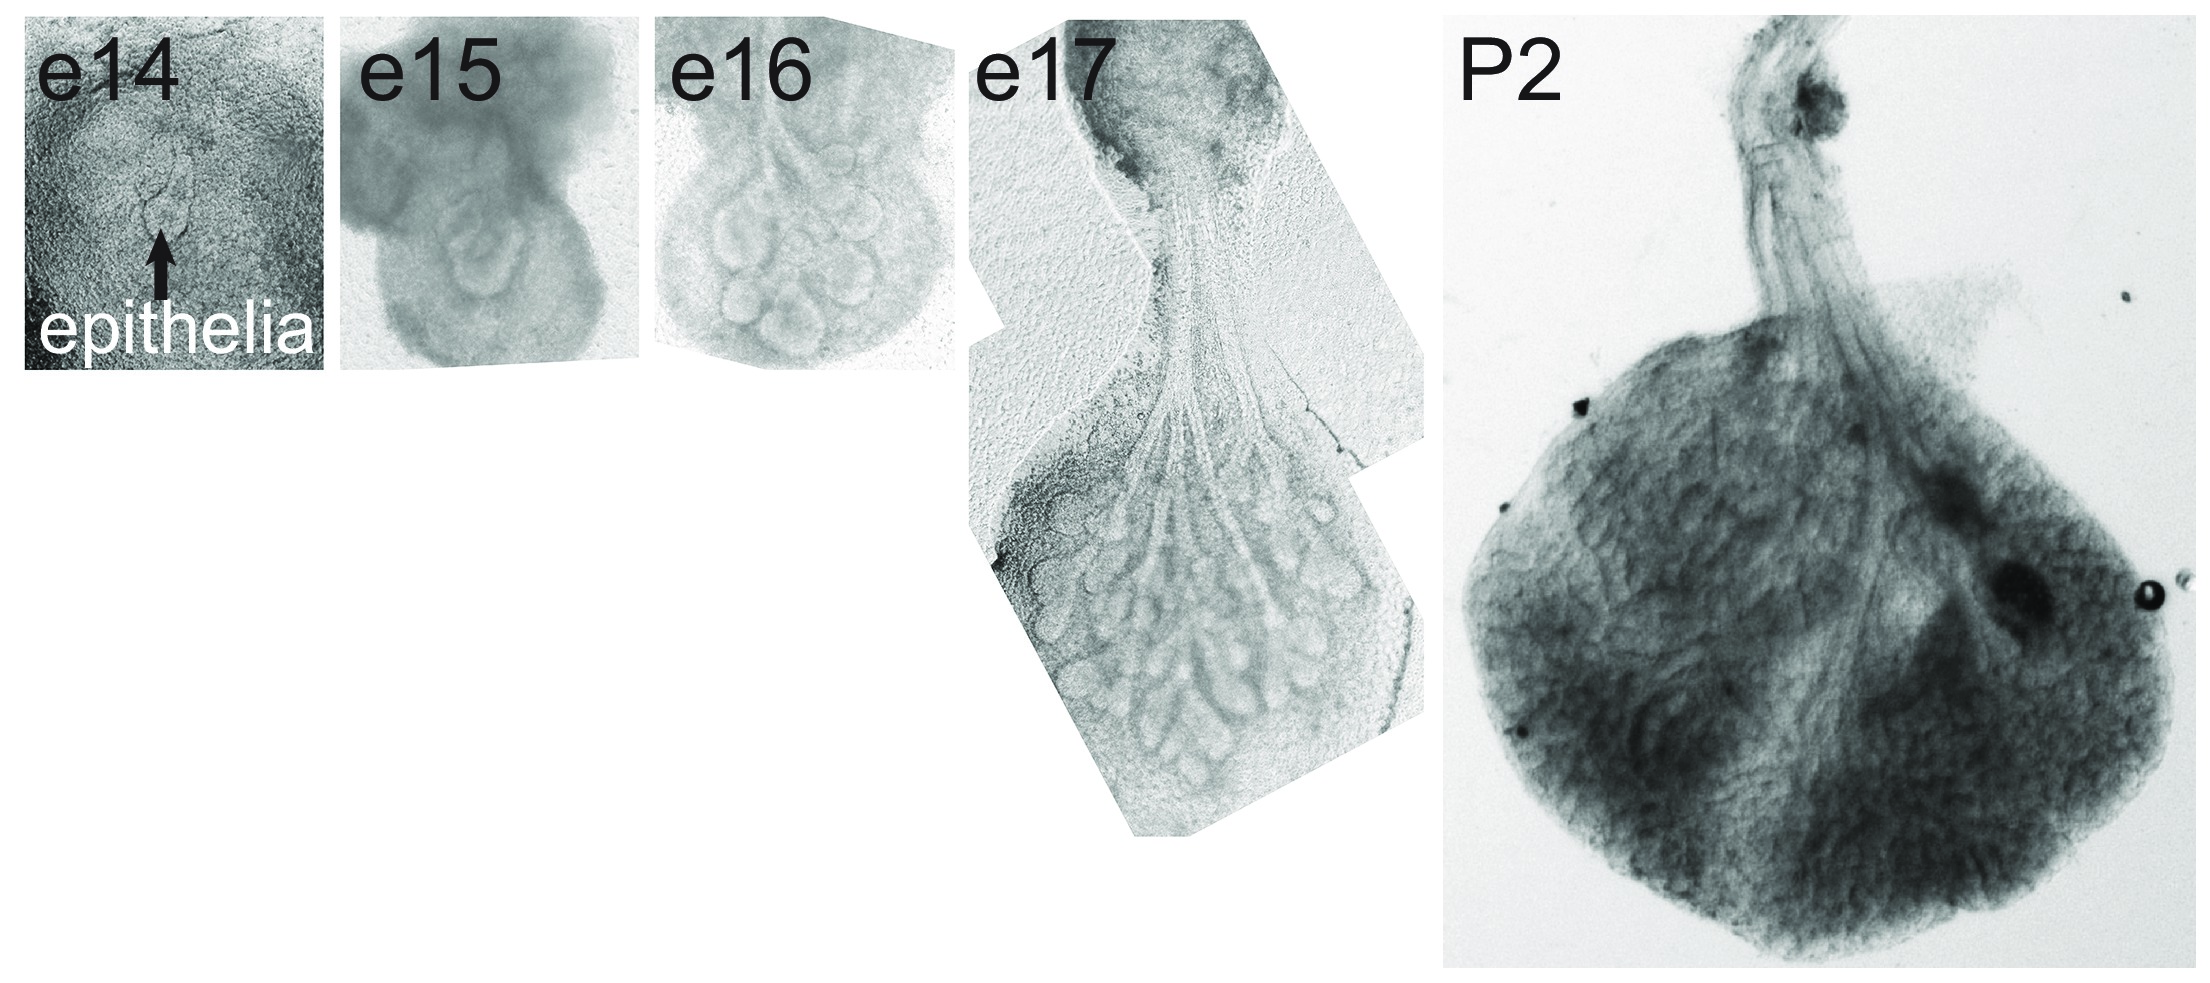
图1. 泪腺通过上皮分支形态发生过程发育形成。 在 e14、e15、e16、e17 和 P2 时期新鲜解剖获得的胚胎期泪腺明场图像。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
讨论
培养和操控LG的多功能性 离体 为研究其发育过程提供了显著优势,包括研究人员能够快速验证假设,以及可进行多种干预以评估上皮细胞、神经元细胞、内皮细胞和间充质细胞如何相互作用从而形成器官。然而,使用该模型时也存在若干局限性。首先,由于该腺体处于离体状态,不再与外周血管系统或神经系统相连,如果所研究的信号通路依赖于神经或血管传递的信号,则可能影响实验结果。9,10其次,周围非泪腺组织可能提供调控泪腺发育的因子4为避免此问题,必须在培养前去除其他非间充质组织成分。第三,目前我们尚无法提供使细胞完全分化为功能完备组织所需的条件。所有器官的体外培养均存在这一问题。 离体 并且可能由多种原因导致,包括缺乏功能性的血管和神经和/或周围组织施加的机械力。尽管存在这些局限性,已在其中发现的机制 离体 培养已证明可在后续中重现 体内 实验,使其成为检验新假设的可靠系统8,11.
研究表明,发育通路与再生通路存在显著重叠,这表明体外(ex vivo...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者希望感谢加州大学旧金山分校资源分配计划提供的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 不含 HEPES 的 DMEM/F12 | SH3027101 | Thermo Scientific | |
| 青霉素-链霉素 | P0781 | Sigma-Aldrich | |
| 牛血清白蛋白溶液 | A9576 | Sigma-Aldrich | |
| 16% 多聚甲醛溶液 | 15710 | Electron Microscopy Sciences | 用 1x PBS 稀释至 4% |
| 10x 磷酸盐缓冲液(PBS) | BP665-1 | Fisher Scientific | |
| 1x 磷酸盐缓冲液(PBS) | 由 10x 储存液配制而成 | ||
| 全转铁蛋白(牛源) | T1283 | Sigma-Aldrich | 25 mg/ml 水溶液储存液。分装成单次使用量,于 -20 °C 冻存。加入 DMEM/F12 培养基中,终浓度为 50 μg/ml。 |
| L-抗坏血酸(维生素 C) | A4544 | Sigma-Aldrich | 25 mg/ml 水溶液储存液。分装成单次使用量,于 -20 °C 冻存。加入 DMEM/F12 培养基中,终浓度为 50 μg/ml。 |
| BioLite 100 mm 组织培养处理培养皿 | 130182 | Thermo Scientific | 也可使用未经组织培养处理的培养皿。 |
| 带透射光源的体视显微镜 | Stemi 2000 | Carl Zeiss | 任何配备透射光底座的体视解剖显微镜均可使用。 |
| 体视显微镜用透射光源底座 | TLB 4000 | Diagnostics Instruments, Inc. | |
| Falcon 35 mm 组织培养处理培养皿 | 353001 | Corning | 也可使用未经组织培养处理的培养皿。 |
| 50 mm 未包被玻璃底培养皿 | P50G-1.5-14-F | MatTek Corporation | |
| 宽场荧光显微镜 | Axio Observer Z1 | Carl Zeiss | 任何荧光显微镜(正置、倒置或体视解剖显微镜)均可用于在低倍镜下通过连接的数码相机监测 GFP 表达。 |
| 共聚焦显微镜 | TCS SP5 | Leica Microsystems | 共聚焦显微镜对于观察细胞精细结构是必需的。任何共聚焦显微镜均可使用。 |
| SWISS 微细镊子,#5(11.2 cm) | 17-305X | Integra LifeSciences Corporation | 去除上皮层中的间充质组织需要使用尖端精细的镊子。也可使用钨针。 |
| Dumont 标准尖头镊子,#5(11 cm) | 91150-20 | Fine Science Tools (USA), Inc. | 适用于从胚胎中收获腺体。 |
| 可重复使用的塑料手术刀柄,型号 3 | 4-30 | Integra LifeSciences Corporation | |
| 不锈钢无菌手术刀片,型号 10 | 4-310 | Integra LifeSciences Corporation | |
| RNAqueous-Micro 总 RNA 提取试剂盒 | AM1931 | Life Technologies | |
| Cultrex 3D 培养基质 层粘连蛋白 I | 3446-005-01 | Trevigen | 6 mg/ml 储存液用 DMEM/F12 按 1:1 稀释 |
| 定时交配的 Crl:CD1(ICR) 小鼠 | Charles River Labs | 在妊娠第 14 天收获胚胎(以发现阴道栓当天为第 0 天)。 | |
| Nucleopore 轨迹蚀刻亲水膜,孔径 0.1 μm,直径 13 mm | 110405 | Whatman | |
| 定时交配的 Pax6-Cre, GFP 小鼠 | Tg(Pax-Cre, GFP)1Pgr | The Jackson Laboratory | 可选小鼠,用于学习如何定位泪腺(LG)。 |
参考文献
- Liu, K. C., Huynh, K., Grubbs, J., Davis, R. M. Autoimmunity in the pathogenesis and treatment of keratoconjunctivitis sicca. Current allergy and asthma reports. 14, 403(2014).
- Makarenkova, H. P., et al. FGF10 is an inducer and Pax6 a competence factor for lacrimal gland development. Development. 127, Cambridge, England. 2563-2572 (2000).
- Dartt, D. A. Neural regulation of lacrimal gland secretory processes: relevance in dry eye diseases. Progress in retinal and eye research. 28, 155-177 (2009).
- Nigam, S. K. Concise review: can the intrinsic power of branching morphogenesis be used for engineering epithelial tissues and organs. Stem cells translational medicine. 2, 993-1000 (2013).
- Qu, X., et al. Glycosaminoglycan-dependent restriction of FGF diffusion is necessary for lacrimal gland development. Development. 139, Cambridge, England. 2730-2739 (2012).
- Rebustini, I. T., et al. MT2-MMP-dependent release of collagen IV NC1 domains regulates submandibular gland branching morphogenesis. Developmental cell. 17, 482-493 (2009).
- Hoffman, M. P., et al. Gene Expression Profiles of Mouse Submandibular Gland Development: FGFR1 Regulates Branching Morphogenesis in Vitro Through BMP- and FGF-Dependent Mechanisms. Development. 129, 24-5778 (2002).
- Steinberg, Z., et al. FGFR2b signaling regulates ex vivo submandibular gland epithelial cell proliferation and branching morphogenesis. Development. 132, Cambridge, England. 1223-1234 (2005).
- Knox, S. M., et al. Parasympathetic innervation maintains epithelial progenitor cells during salivary organogenesis. 329, Science. New York, N.Y. 1645-1647 (2010).
- Magenheim, J., et al. Blood vessels restrain pancreas branching, differentiation and growth. Development. 138, Cambridge, England. 4743-4752 (2011).
- Jaskoll, T., et al. FGF10/FGFR2b signaling plays essential roles during in vivo embryonic submandibular salivary gland morphogenesis. BMC developmental biology. 5, 11(2005).
- Takasato, M., et al. Directing human embryonic stem cell differentiation towards a renal lineage generates a self-organizing kidney. Nature cell biology. 16, 118-126 (2014).
- Knox, S. M., et al. Parasympathetic stimulation improves epithelial organ regeneration. Nature communications. 4, 1494(2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
