利用DNA或蛋白质甲基转移酶及合成辅因子类似物,可对DNA和蛋白质进行序列特异性的亲和性或荧光报告基团标记。根据酶对辅因子的特异性,可采用氮丙啶或双活化辅因子类似物进行一步或两步标记。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
使用甲基转移酶和辅因子类似物对核酸和蛋白质进行序列特异性标记
* These authors contributed equally
本文内容
摘要
摘要
S-腺苷-l-甲硫氨酸(AdoMet 或 SAM)依赖性甲基转移酶(MTase)可催化将 AdoMet 中的活化甲基转移至 DNA、RNA、蛋白质及小分子生物分子的特定位点。利用合成辅因子类似物,这一天然甲基化反应可拓展至多种烷基化反应。将 AdoMet 中反应性锍中心替换为氮丙啶环,可获得能被多种 DNA 甲基转移酶(DNA MTase)与 DNA 共价偶联的辅因子。这些氮丙啶辅因子可在腺嘌呤部分的不同位置引入报告基团,并用于 S序列特异性 M乙基转移酶-我诱导的 Labeling DNA(SMILing DNA)。作为一个典型示例,我们提供了在5’-ATCG位点对pBR322质粒DNA进行生物素标记的实验方案A一步法利用DNA甲基转移酶M.BseCI和氮丙啶辅因子6BAz对T-3’序列进行修饰。通过不饱和烷基取代活化甲基可得到另一类AdoMet类似物,用于 m乙基转移酶导向的 T转移 A激活的 G基团(mTAG)。由于延长的侧链被锍中心和不饱和键活化,这些辅因子被称为双活化AdoMet类似物。这些类似物不仅可作为DNA甲基转移酶(MTase)的辅因子(如同氮丙啶类辅因子),还可用于RNA、蛋白质及小分子甲基转移酶。它们通常用于通过独特的功能基团对MTase底物进行酶促修饰,随后在第二步化学反应中用报告基团进行标记。本文以组蛋白H3蛋白的荧光标记方案为例进行说明:首先,组蛋白H3赖氨酸4(H3K4)甲基转移酶Set7/9将辅因子类似物SeAdoYn中的丙炔基团转移至组蛋白H3上,随后通过点击化学反应将炔基化的组蛋白H3与TAMRA叠氮化物进行标记。利用辅因子类似物实现的甲基转移酶介导标记技术为多种前沿应用提供了支持,包括MTase底物的鉴定与功能研究,以及DNA分型和甲基化检测。
引言
核酸的特异性标记1,2 和蛋白质3,4 对于功能表征、医学诊断以及(纳米)生物技术具有重要意义。本文介绍一种基于酶促反应的生物大分子标记方法 S-腺苷酰-L-甲硫氨酸(AdoMet 或 SAM)依赖性甲基转移酶(MTases)。这类酶(EC 2.1.1.)作用于核酸和蛋白质中特定残基上的个别亲核位点(氮、氧、硫和碳原子),并天然地将辅因子 AdoMet 中活化的甲基转移图1A)5此外,甲基转移酶可利用合成的辅因子类似物,通过亲和标签、荧光基团或其他标记物实现特异性标记(图1B)6两类AdoMet类似物已被开发出来:用于偶联反应的氮丙啶辅因子 S序列特异性的 M乙基转移酶-I诱导的 Labeling (SMILing)7 以及双活化的 AdoMet 类似物用于 m乙基转移酶导向的 T转移 A激活的 G群体(mTAG)8.
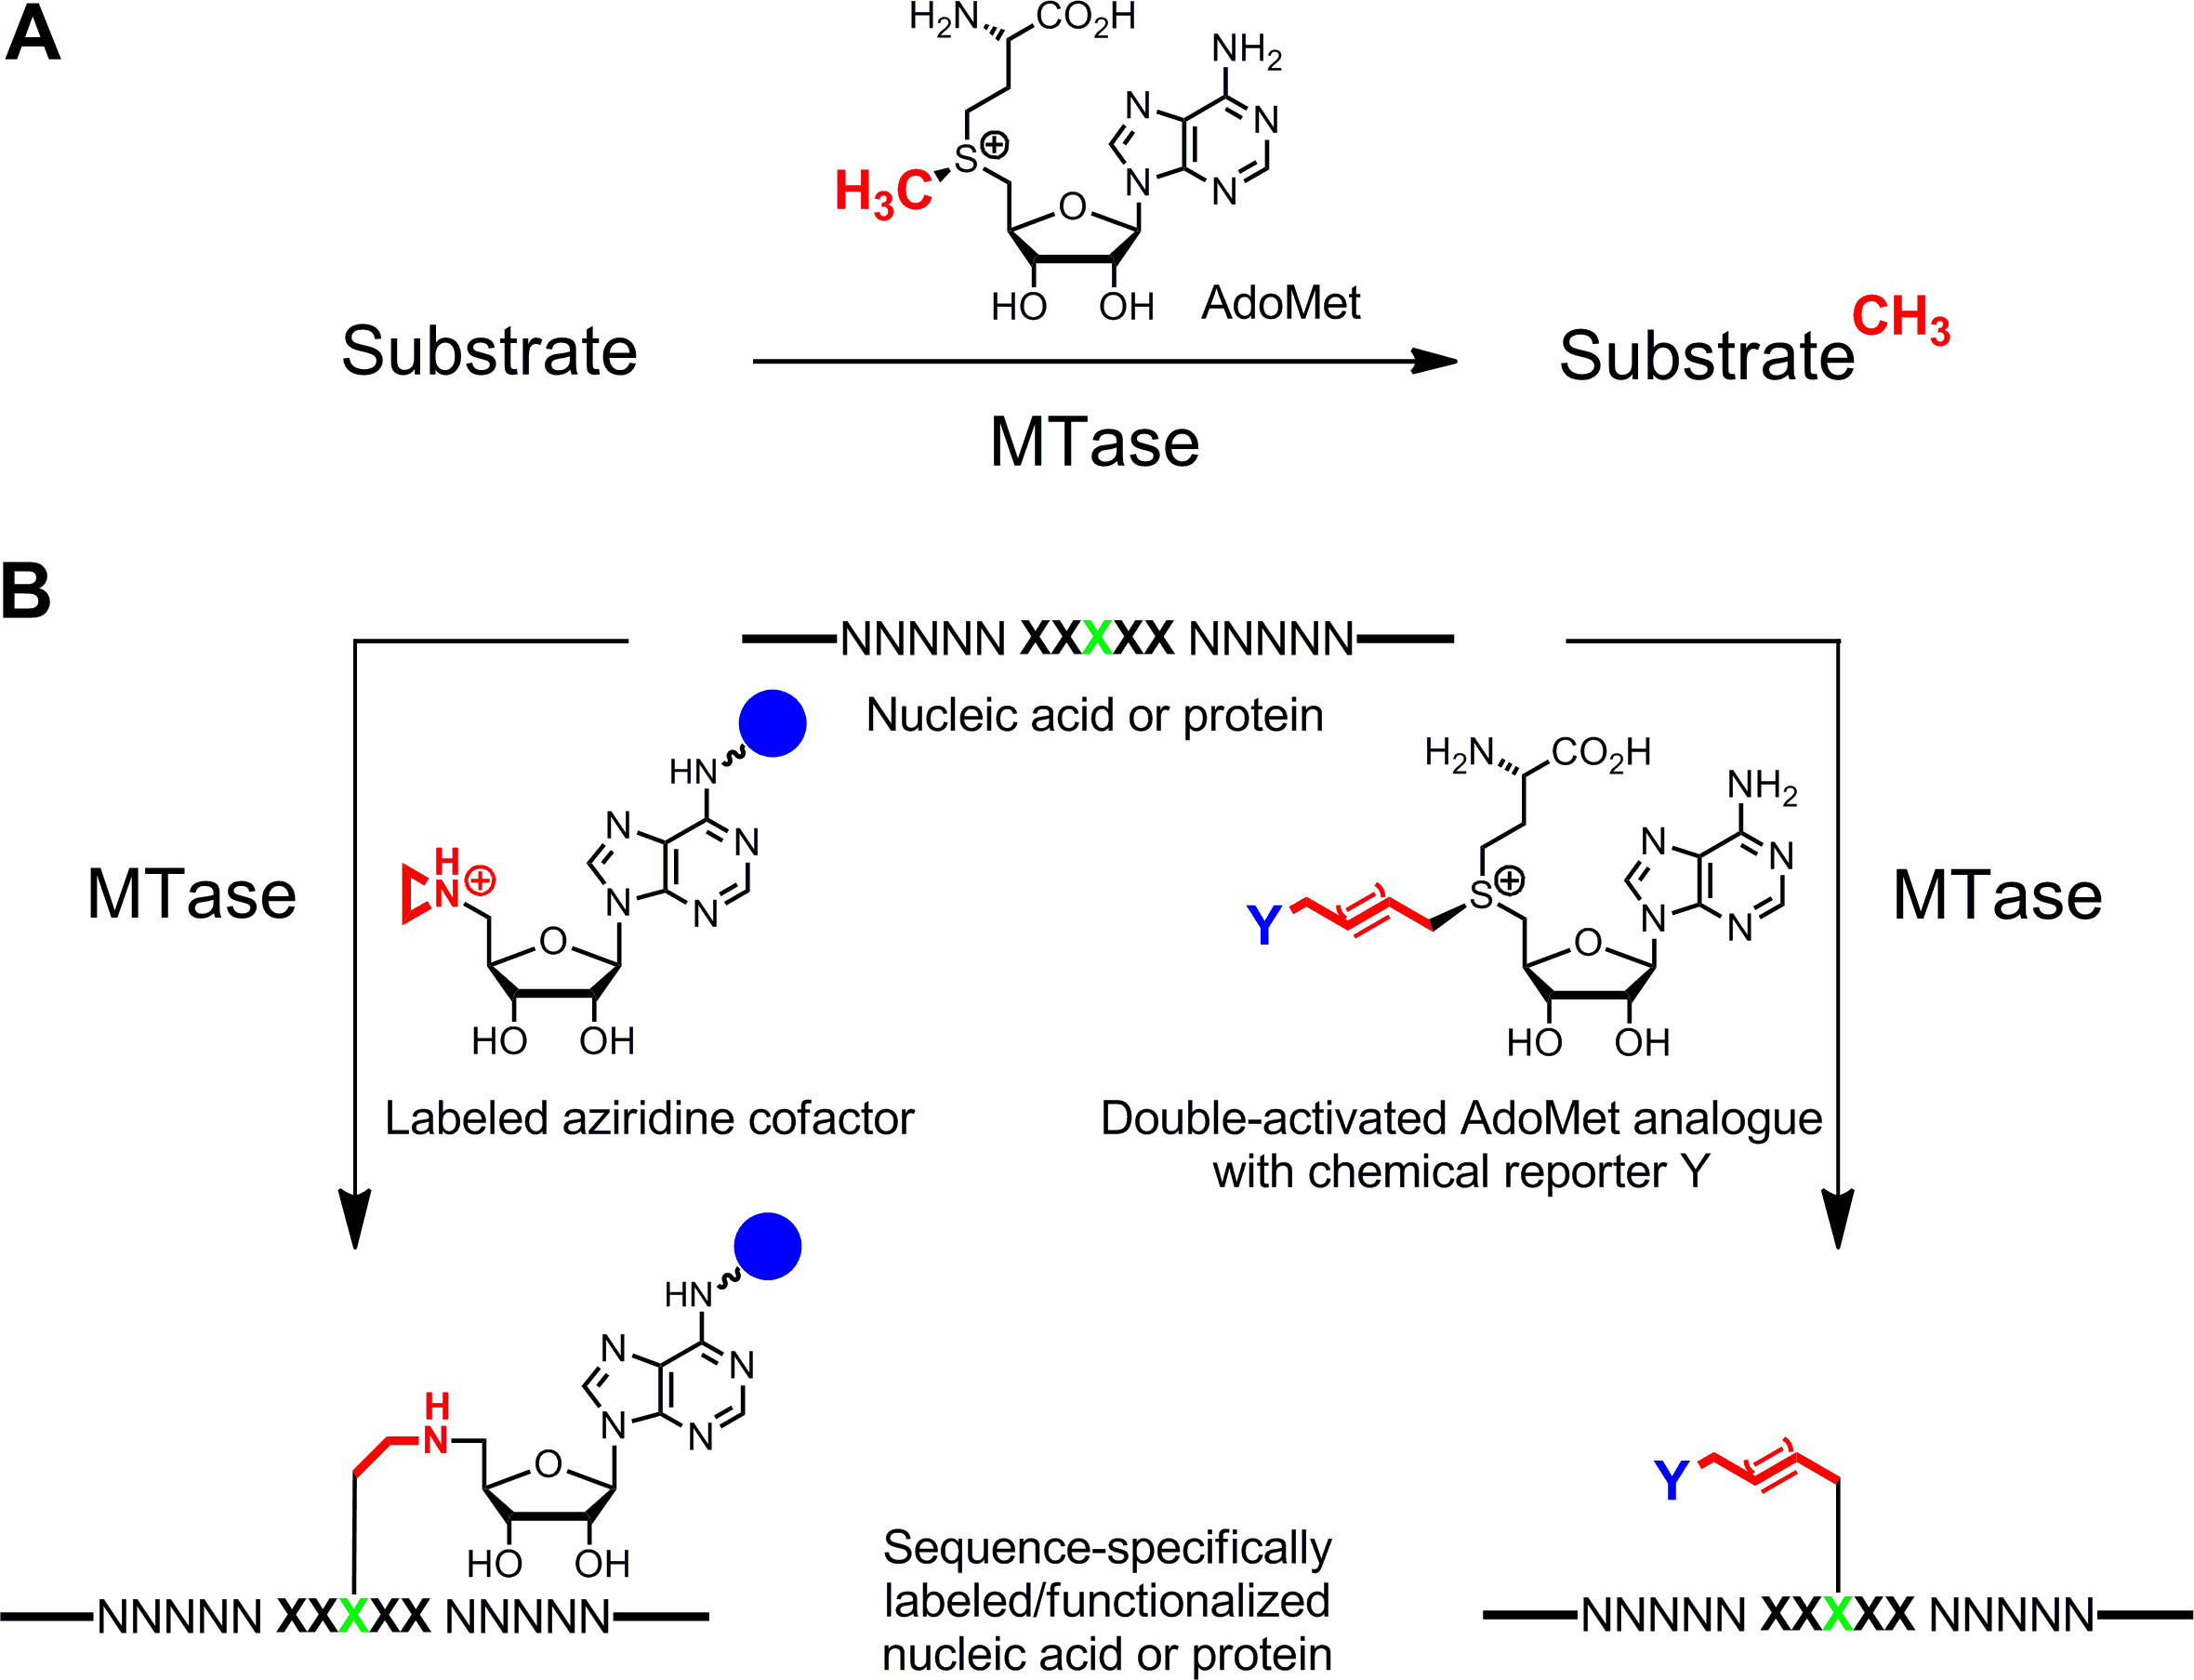
图1:甲基转移酶(MTases)催化的反应。A. 甲基从天然辅因子AdoMet(SAM)转移至多种底物,包括DNA、RNA、蛋白质和小分子生物分子。B. 使用合成辅因子类似物对核酸和蛋白质进行标记/功能化(NNNNN = DNA的碱基对、RNA的核苷酸或蛋白质的氨基酸;XXXXX = 甲基转移酶的识别序列,其中目标残基以绿色表示)。含有连接在腺嘌呤环上的报告基团(蓝色球体)的氮丙啶辅因子可序列特异性地与目标残基偶联(左图);双活化AdoMet类似物则可将携带化学报告基团Y的扩展烷基链转移至目标位点(右图),随后可通过生物正交点击反应对Y进行标记。请点击此处查看该图的放大版本。
氮丙啶辅因子与DNA甲基转移酶(MTases)配合使用效果最佳。其结构包含一个由三个原子组成的环,其中含有一个氮原子9 (或一个 N芥末10,11)而非锍中心作为反应基团。该氮原子的质子化可活化氮杂环丙烷环,使其易于受到目标核苷酸的亲核攻击,从而实现整个辅因子与DNA的共价偶联。通过将报告基团连接至腺嘌呤环,氮杂环丙烷类辅因子可与DNA甲基转移酶(DNA MTases)联用,一步完成DNA标记。图1B,左侧)7,12. 这一点在利用6BAz对DNA进行生物素标记的过程中得到了详细展示13–15 (附着于腺嘌呤环6位的生物素偶联氮丙啶辅因子)以及腺嘌呤特异性DNA甲基转移酶 Bacillus stearothermophilus (M.BseCI)16 (图2,参见方案第2部分:DNA一步标记 通过 氮丙啶辅因子)。此外,还包括M.BseCI(5’-ATCGAT-3’ 识别序列),来自的DNA甲基转移酶 Thermus aquaticus (M.TaqI, 5’-TCGA-3’),从 流感嗜血杆菌 (M.HhaI, 5’-GCGC-3’) 和来自 Spiroplasma (M.SssI,5’-CG-3’) 已成功用于通过 6BAz 对 DNA 进行生物素标记17此外,氮丙啶辅因子可用于一步法荧光DNA标记18,19.
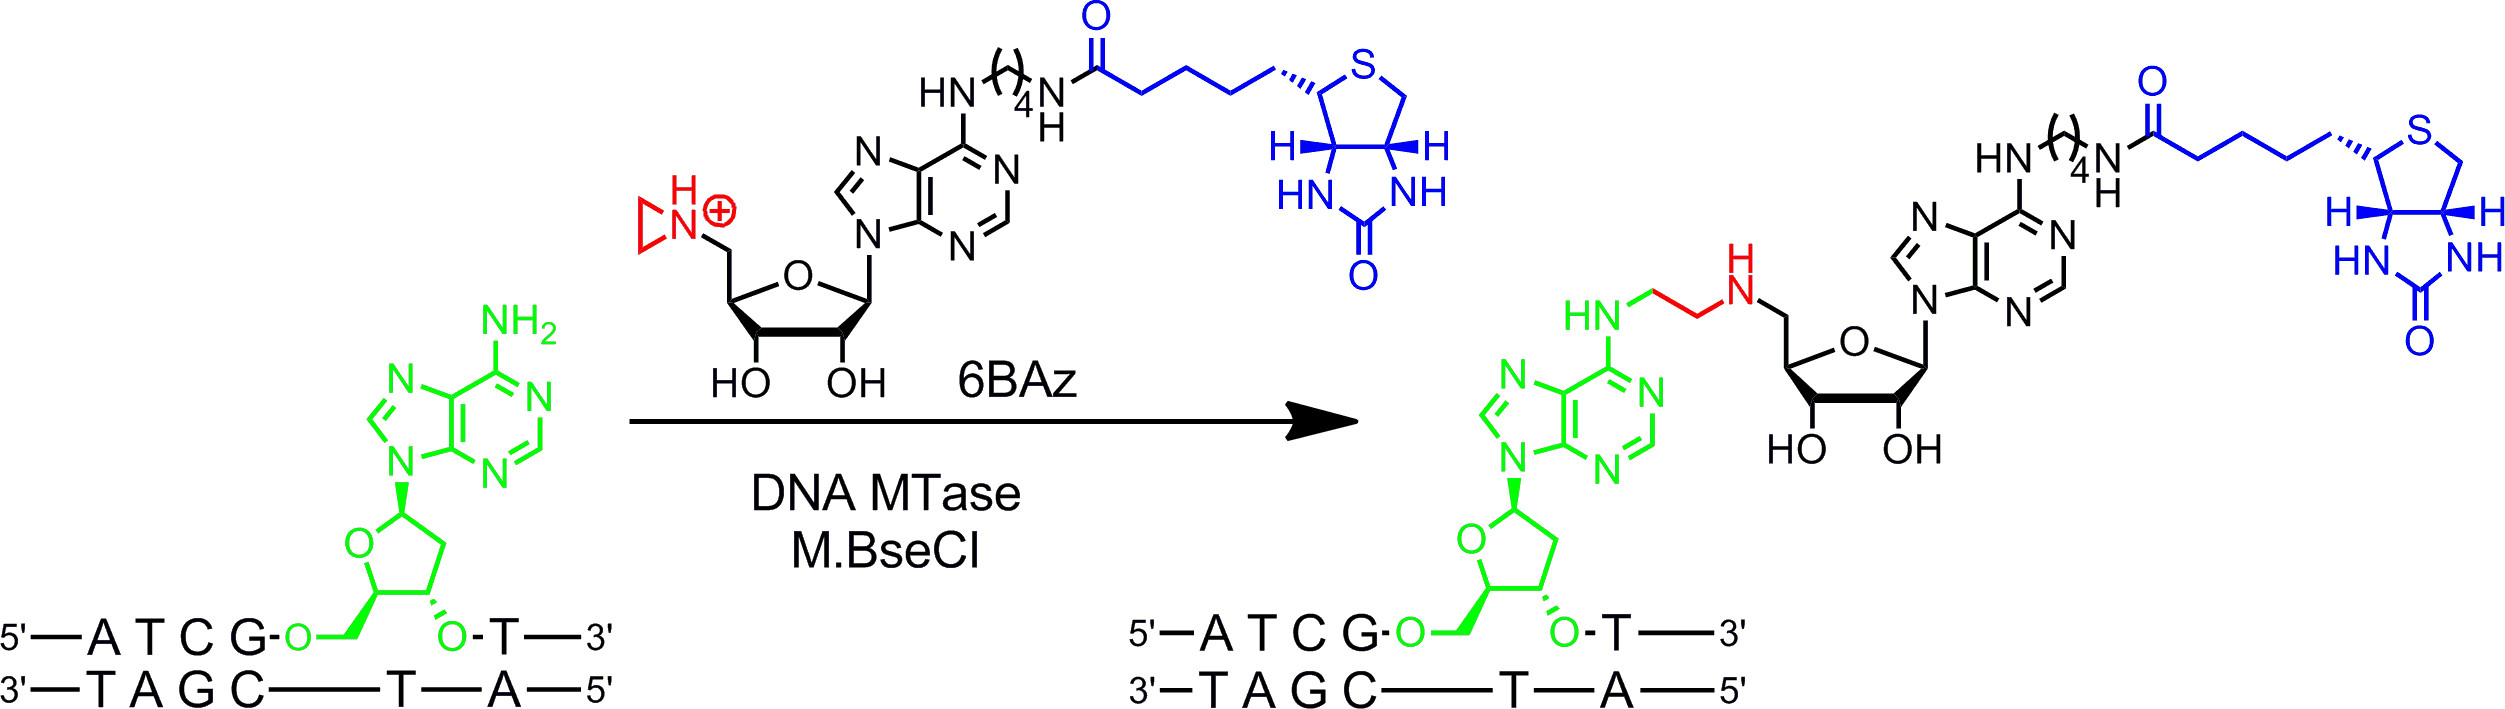
图2:利用M.BseCI和6BAz对DNA进行序列特异性的一步生物素标记。 DNA甲基转移酶M.BseCI可识别双链DNA序列5’-ATCGAT-3’,并天然地利用AdoMet对第二个腺嘌呤残基(绿色)的氨基进行甲基化。当使用氮丙啶辅因子6BAz时,反应路径发生改变,M.BseCI将包含生物素(蓝色)的完整辅因子共价连接至靶向腺嘌呤,从而实现序列特异性的DNA生物素标记。请点击此处查看该图的放大版本。
双活化 AdoMet 类似物在锍中心处含有延伸的不饱和侧链,而非甲基图1B,右侧20β位上位于锍中心的不饱和双键或三键通过共轭稳定作用,在电子上补偿了过渡态中不利的空间位阻效应。由于锍中心和不饱和键均可活化侧链以促进酶促转移,这类辅因子被称为双活化AdoMet类似物。通常,它们用于转移带有独特化学基团(化学报告基团)的侧链,如氨基、炔基和叠氮基团,以便在第二步中实现化学选择性标记。8,21一般来说,双活化的 AdoMet 类似物不仅可作为 DNA 甲基转移酶的辅因子8,20,21 而且还适用于RNA甲基转移酶22,23 和蛋白质甲基转移酶24–28 可实现对RNA和蛋白质的额外标记。然而,这些延伸的侧链在空间位阻上比甲基更大,通常需要通过蛋白质工程扩大甲基转移酶的活性位点,才能获得高效的转移速率。解决该问题的另一种方法是使用带有小型炔丙基(三个碳原子)的AdoMet类似物,其中末端炔基具有双重功能:1. 在酶促转移过程中稳定过渡态;2. 作为反应位点,通过铜催化的叠氮-炔环加成(CuAAC)点击化学反应进行后续化学修饰。研究发现,这种炔丙基化的AdoMet类似物29 在中性或弱碱性条件下极不稳定,用途有限。通过将硫原子替换为硒原子可克服这一缺点。所得辅因子 5‘-[(硒)[(3S)-3-氨基-3-羧基丙基]丙-2-炔基硒𬭩基]-5'-脱氧腺苷(SeAdoYn, 图3)可被野生型DNA、RNA和蛋白质甲基转移酶(MTases)识别并接受30–32 这在许多情况下消除了对蛋白质工程的需求。一个典型的例子是利用组蛋白H3赖氨酸4(H3K4)甲基转移酶Set7/9进行荧光蛋白标记33 (图3,参见方案第3部分:两步法蛋白质标记 通过 双活化辅因子)
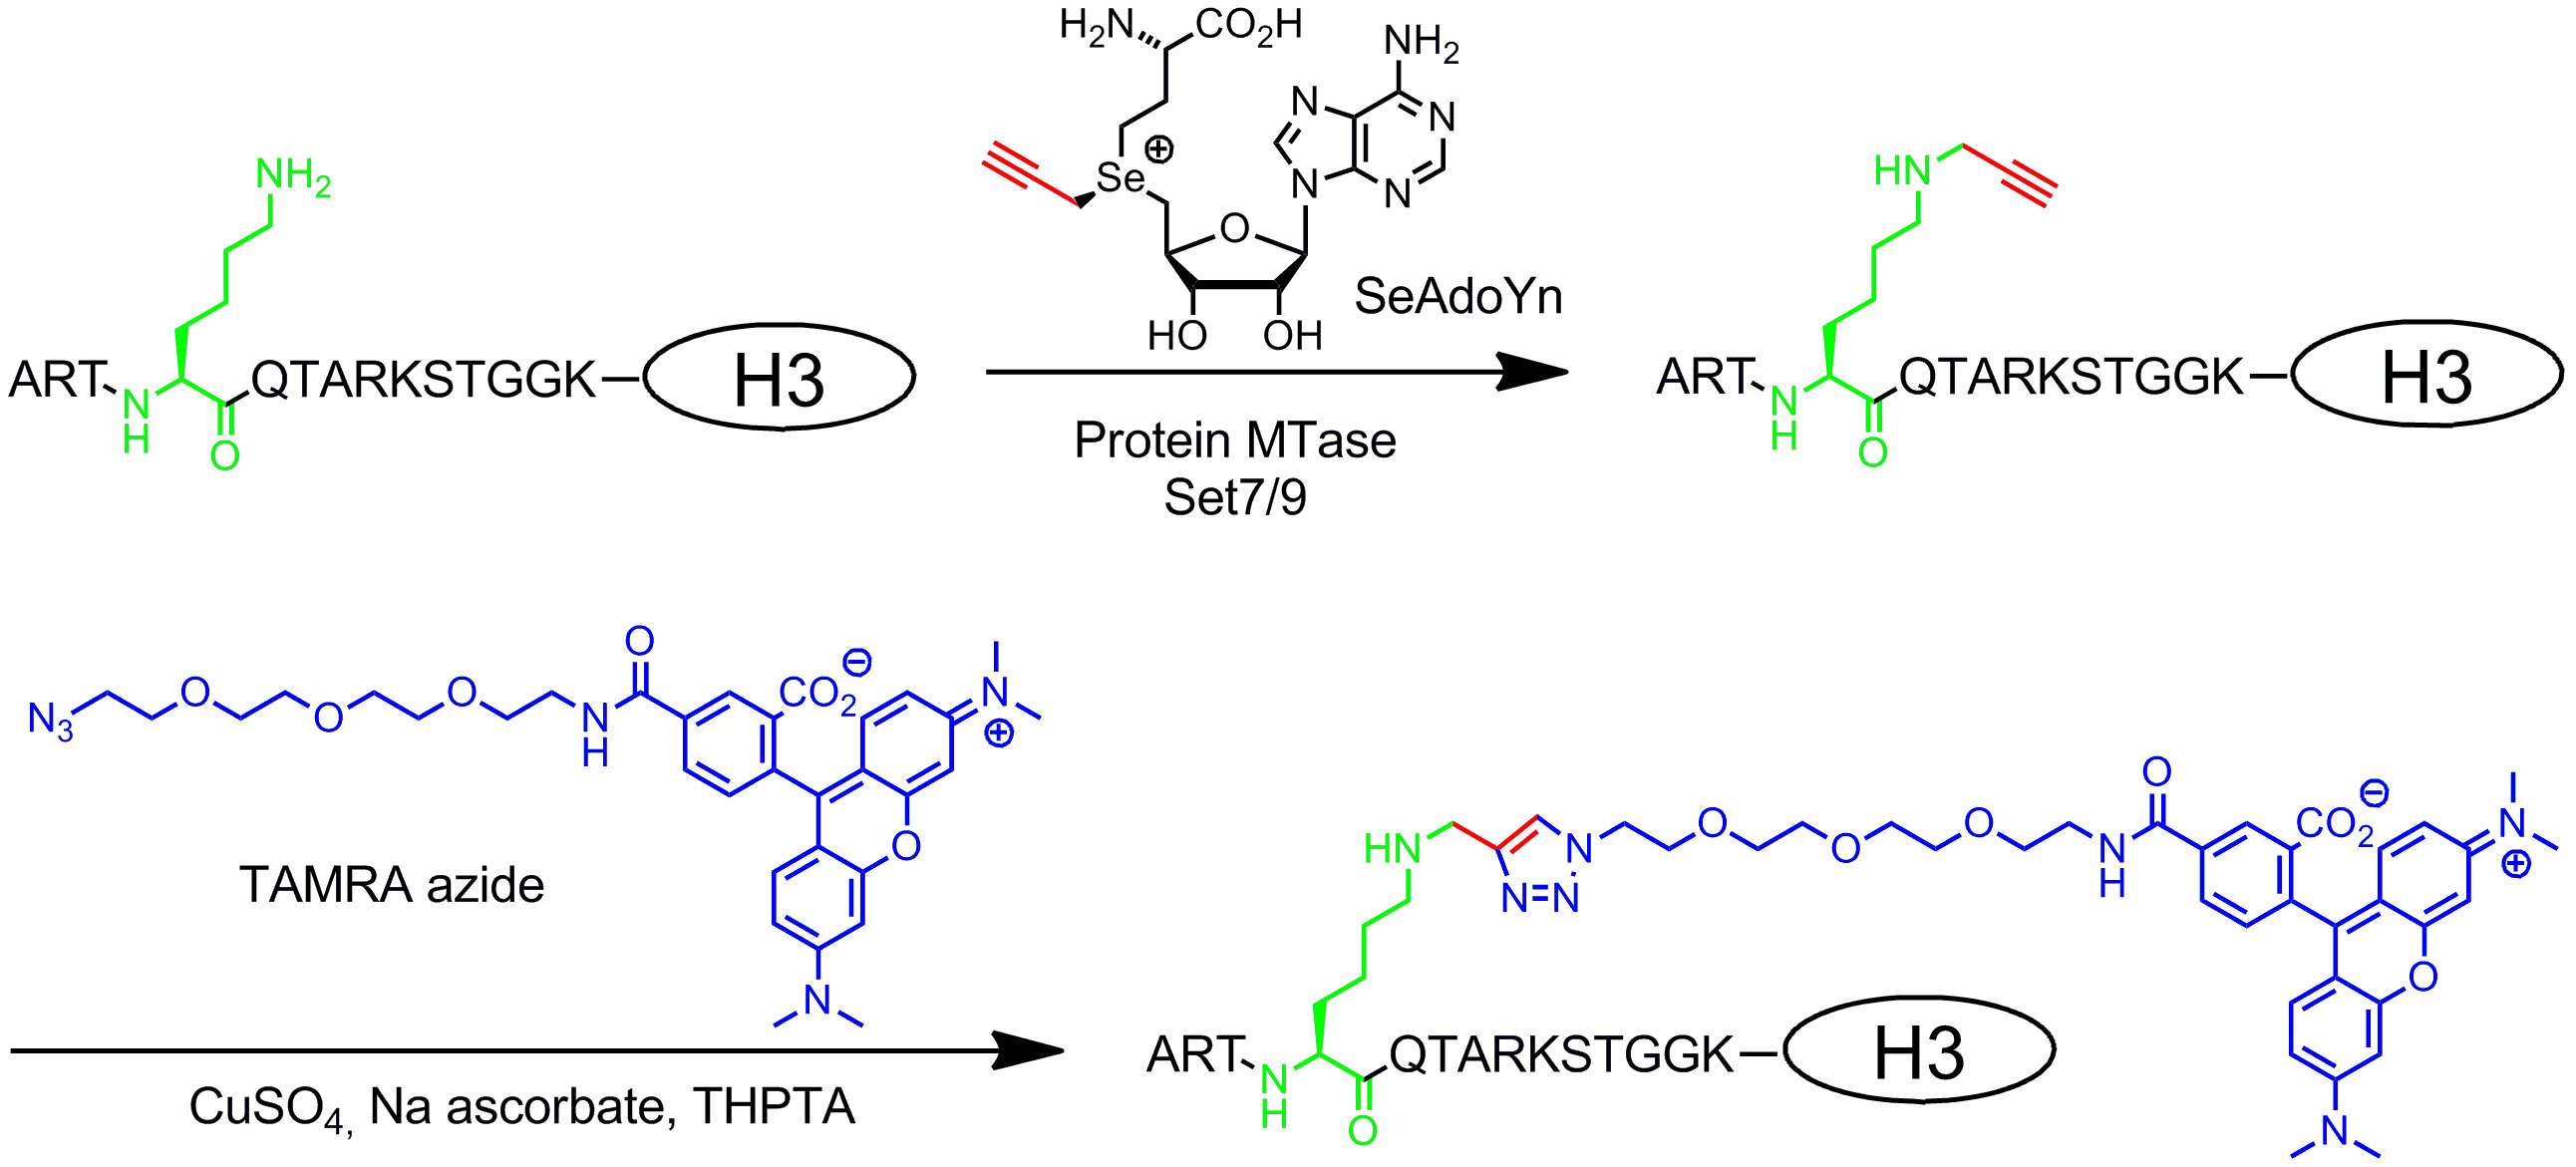
图3:利用Set7/9、SeAdoYn和TAMRA叠氮化物对组蛋白H3进行序列特异性的两步荧光标记。 蛋白质甲基转移酶Set7/9在天然条件下使用AdoMet将组蛋白H3中赖氨酸4(H3K4,绿色)的氨基进行甲基化。当使用双活化辅因子SeAdoYn时,该甲基转移酶将一个较小的炔丙基(红色)转移至赖氨酸残基上。随后,所连接的末端三键可通过生物正交点击反应(铜催化的叠氮-炔环加成反应,CuAAC)与叠氮修饰的TAMRA(四甲基罗丹明,蓝色)荧光团发生特异性修饰。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 一般说明
- 将叠氮环丙烷辅因子6BAz(溶于DMSO)和蛋白甲基转移酶Set7/9于-80 °C保存,其余试剂包括双活化辅因子SeAdoYn以及DNA甲基转移酶M.BseCI(溶于50%甘油)均于-20 °C保存。
- 测定6BAz和SeAdoYn的浓度 通过 使用消光系数 ε 的紫外/可见光光谱法269 nm (6BAz) = 16,000 cm⁻¹-1 M-1 和 ε260nm (SeAdoYn) = 15,400 cm-1 M-1 在去离子水中。通过 Bradford 法测定 MTases 的浓度,或者,如果已知消光系数,则 通过 280 nm 处的直接吸收
- 尽量避免通过剧烈移液或涡旋产生气泡,以防酶活性损失。应通过轻柔地上下移液进行混合。
- 添加溶于DMSO的氮丙啶辅因子储备液时,务必确保反应体系中DMSO的终浓度低于5%。反应缓冲液中应始终包含10 mM镁离子,以防止与DNA发生非特异性反应。
- 从酸性储备液中添加双活化辅因子时,应使用小体积(高浓度储备液),以避免pH变化,并确保测定溶液的pH无明显改变。避免使用巯基化合物, 例如,因为β-巯基乙醇或二硫苏糖醇(DTT)可能与反应所需的铜离子发生络合,从而干扰点击化学反应。
2. DNA 的一步标记 通过 氮丙啶辅因子
- 序列特异性甲基转移酶诱导标记(SMILing)质粒DNA,使用M.BseCI DNA甲基转移酶与氮丙啶辅因子6BAz。
- 在 20 °C 下解冻辅因子溶液,并在冰上制备反应混合物。
- 此外,进行“辅因子”对照实验以观察任何非特异性修饰,并进行“酶”对照实验以确保甲基转移酶样品中不含天然辅因子AdoMet。
- 在反应体系中加入 2 µl 10x 修饰缓冲液(含 100 mM Tris-HCl、100 mM MgCl₂)2,20 mM β-巯基乙醇,pH 7.4),2 µl pBR322(0.5 µg/µl),每DNA识别序列加入10当量的M.BseCI(pBR322中含有1个识别序列),以及叠氮烷辅因子6BAz至终浓度60 µM,总体积为20 µl。最后加入辅因子和DNA甲基转移酶。
注意:β-巯基乙醇具有毒性、腐蚀性,并对环境有害。 - 对于“辅因子”对照,加入去离子水以替代 M.BseCI;对于“酶”对照,加入去离子水以替代 6BAz。
- 通过轻轻吹打使溶液混合均匀。
- 将试管在 55 °C 下孵育 1 小时。
- 短暂离心,使管底聚集全部液体。
- 通过限制性-修饰系统检测验证DNA修饰
- 通过混合10 µl 10x R.TaqI缓冲液(含100 mM Tris-HCl、50 mM MgCl₂)制备溶液2,1 M NaCl,1 mg/ml 牛血清白蛋白,pH 8.0),80 µl 去离子水和 3.3 µl 限制性内切酶(REase) Thermus aquaticus (R.TaqI,10 U/µl)。确保在最后一步加入限制性内切酶。
- 向 2.1.7 中的每个试管加入 2 µl 的 10x R。 TaqI 缓冲液和上述(2.2.1)溶液的 28 µl
- 通过轻轻吹打溶液使其混合均匀。
- 将试管在 65 °C 下孵育 30 分钟。
- 短暂离心,使管内液体全部收集于管底。
- 使用链霉亲和素进行电泳迁移率变动分析(EMSA)以验证功能修饰。
- 从每个试管(2.2.5)中移除 25 µl,并加入 2.4 µl 链霉亲和素溶液(链霉亲和素单体浓度为 1 mM,溶于含 100 mM Na 的链霉亲和素缓冲液中)2HPO4,100 mM NaCl,pH 7.5;总生物素4当量)。向其余试管中加入2.4 µl链霉亲和素缓冲液。
- 将所有试管在37 °C孵育1小时。
- 分析 通过 琼脂糖凝胶电泳
- 向每支试管中加入5 µl 6x上样缓冲液(0.25%溴酚蓝,30%甘油)。
- 轻轻混合溶液。
- 将每个样品的10 µl加入琼脂糖凝胶孔中(琼脂糖浓度为1%,溶于含1x GelRed的0.5x TBE缓冲液,GelRed使用10,000x储存液稀释)。
- 在0.5×TBE缓冲液中以80 V电压电泳约1小时。
- 在紫外透射仪(312 nm)上使用配备滤光片(540 ± 50 nm)的CCD相机观察DNA条带。
注意:紫外线对眼睛和皮肤有害。
3. 通过双活化辅因子的两步蛋白质标记 via Double Activated Cofactors
- 使用Set7/9和双活化辅因子SeAdoYn进行甲基转移酶定向活化基团转移(mTAG)标记组蛋白H3赖氨酸4(修饰步骤)。
- 将组分解冻并在冰上配制反应混合物。注意:始终将SeAdoYn保持冷却,以避免降解。
- 此外,进行检测时需设置“辅因子”对照,以观察任何非特异性修饰,以及“酶”对照,以排除荧光探针的非特异性反应。
- 配制含有修饰缓冲液(50 mM Tris-HCl,5% 甘油,pH 8.5)、10 µM 组蛋白 H3、10 µM Set7/9 和 600 µM SeAdoYn(硒取代的两种差向异构体混合物)的反应溶液(20 µl)。最后依次加入辅因子,然后加入甲基转移酶(MTase)。
- 对于“辅因子”对照,按照3.1.3步骤配制测定溶液,并加入60 mM AdoMet以与合成辅因子竞争。对于“酶”对照,用去离子水替代SeAdoYn。
- 通过缓慢吹吸移液器混合溶液。取每种溶液1 µl滴加到pH试纸(pH范围5 - 10)的上部区域,检测pH值。
- 37 °C 下孵育 2 小时。
- 同时,准备一块12% SDS聚丙烯酰胺凝胶(分离胶:357 mM Bis-Tris(pH 6.5–6.8)、0.1% (w/v) APS、0.04% (v/v) TEMED 和 12% 丙烯酰胺/双丙烯酰胺(37.5:1);浓缩胶:357 mM Bis-Tris(pH 6.5–6.8)、0.1% (w/v) APS、0.04% (v/v) TEMED 和 5% 丙烯酰胺/双丙烯酰胺(37.5:1))。
注意:丙烯酰胺/双丙烯酰胺具有毒性并危害健康。操作过程中需佩戴手套。
- 组蛋白H3中烷基化赖氨酸4的化学标记 通过 铜催化叠氮-炔烃环加成反应(CuAAC)(标记步骤)
- 在修饰反应即将结束前,配制含有3 mM CuSO₄的5倍点击反应混合液43 mM 三(3-羟丙基-三唑基甲基)胺(THPTA)、250 mM 抗坏血酸钠和 6 mM TAMRA 叠氮化物,总体积为 20 µl。
- 向每管中加入 5 µl 新鲜配制的 5x 点击反应混合液,以启动 CuAAC 反应并淬灭修饰反应。
- 用移液器轻轻吹打混匀。
- 用铝箔将所有试管包裹,避免光照,以防止荧光染料发生光漂白。
- 20 °C 下孵育 1 小时。
- 通过蛋白质沉淀去除过量的游离TAMRA荧光染料。
- 为避免游离的TAMRA荧光染料在凝胶中产生强烈的荧光信号,从而掩盖荧光标记的组蛋白H3,需通过蛋白质沉淀步骤(3.3.2 – 3.3.4)去除过量的游离荧光染料34.
- 向每支试管中加入 75 µl 甲醇、18.8 µl 氯仿和 50 µl 去离子水,每次加入后短暂涡旋混匀。在 16,000 x g 离心 5 分钟。小心移除上层液相,避免扰动含有蛋白质的界面层。
- 向每根试管中的剩余相中加入 56.3 µl 甲醇,涡旋混匀后在 16,000 x g 离心 5 分钟以沉淀蛋白质。移除上清液。重复此步骤以洗涤沉淀物。
- 用无绒布覆盖敞口的试管,静置干燥15–30分钟。
- 分析 通过 SDS-PAGE
- 将3.3.4中沉淀的蛋白质溶解于20 µl SDS上样缓冲液(50 mM Tris-HCl,2.5% (w/v) SDS,10% (v/v) 甘油,320 mM β-巯基乙醇和0.05% (w/v) 溴酚蓝,pH 6.8)中。使用移液器冲洗管壁,确保沉淀完全溶解。
- 将样品在 95 °C 下孵育 10 分钟,然后冷却至 20 °C。
- 短暂离心,使管内液体全部聚集于管底。
- 将每个样品的全部上样量加入SDS聚丙烯酰胺凝胶(3.1.7)的加样孔中。电泳运行缓冲液使用50 mM MOPS、50 mM Tris-X(Tris碱)、5 mM EDTA、0.1%(w/v)SDS。
- 以 120 V 电压电泳约 90 分钟。
- 在紫外灯(312 nm)下,使用配备滤光片(540 nm ± 50 nm)的CCD相机观察凝胶中的荧光信号。
注意:紫外线对眼睛和皮肤有害。
访问受限。请登录或开始试用以查看此内容。
结果
通过氮丙啶辅因子一步标记DNA
本示例反应使用DNA甲基转移酶M.BseCI进行,该酶可修饰双链5’-ATCGAT-3’序列中的第二个腺嘌呤残基,并在pBR322质粒上具有一个识别位点(图4A)。为检测质粒标记效果,将pBR322与限制性内切酶R.TaqI(5‘-TCGA-3‘)反应。R.TaqI在pBR322上有七个识别位点,其中一个包含在M.BseCI的识别位点内。若发生标记,M.BseCI位点将受到保护而不被切割,从而产生一个683个碱基对(bp)的新片段,同时另外两个片段(315和368 bp)消失。当然,在使用其他DNA甲基转移酶进行DNA标记分析时,应选用具有相应识别序列的不同限制性内切酶。
图4B 中的琼脂糖凝胶清晰地显示出一个大小为 683 bp 的新片段(第 3 泳道)。这表明 M.BseCI 位点已被成功标记。只有实验组(第 3 泳道)出现该片段,“辅因子”对照组(第 5 泳道)以及“酶”...
访问受限。请登录或开始试用以查看此内容。
讨论
使用DNA甲基转移酶和氮丙啶辅因子对DNA进行一步标记(SMILing DNA)是一种稳健的方法,但在设计实验时应考虑某些方面。
氮丙啶辅因子:使用 M.BseCI 进行 DNA 标记时,6BAz 的浓度为 60 µM。当使用其他 DNA 甲基转移酶时,应优化辅因子浓度,例如,在使用 DNA 甲基转移酶 M.TaqI 时已采用低至 20 µM 的浓度19。较低的 6BAz 浓度具有优势,即在与限制性内切酶(REase)孵育后,可直接加入过量四倍的链霉亲和素(相对于检测体系中生物素总量的结合位点数),而不会干扰 EMSA 分析结果。否则,应纯化生物素标记的 DNA 以去除多余的辅因子,避免在琼脂糖凝胶电泳过程中出现 DNA 拖尾现象。从 DMSO 储存液中添加氮丙啶辅因子时,需确保检测体系中 DMSO 的终浓度低于 5%。过高的 DMSO 浓度可能导致酶失活。氮丙啶辅因子应始终保存在 -80 °C,以防降解。
DNA甲基转移酶(DNA MTase):氮丙...
访问受限。请登录或开始试用以查看此内容。
披露
作者披露以下竞争性财务利益:E.W. 是相关专利的发明人。
致谢
作者感谢 Kerstin Glensk 制备了甲基转移酶 M.BseCI 和 Set7/9,并感谢德国联邦和州政府卓越倡议计划以及亚琛工业大学提供的经费支持。作者乐意为合作研究提供 6BAz、SeAdoYn 或其他辅因子类似物。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 6BAz | 根据Weinhold等人,专利号US 8,129,106,2012年3月6日公布。 | ||
| β-巯基乙醇 | Serva | 28625 | |
| 乙酸 | Fisher Scientific | 10304980 | |
| 丙烯酰胺/双丙烯酰胺溶液,37.5:1 | Serva | 10688 | |
| UltraPure 琼脂糖 | Invitrogen | 16500100 | |
| 过硫酸铵(APS) | Serva | 13375 | |
| Bis-Tris | 格尔布 | 1304 | |
| 硼酸 | Gerbu | 1115 | |
| 溴酚蓝钠盐 | Serva | 15375 | |
| 硫酸铜(II) | Aldrich | C1297 | |
| 氯仿 | Fisher Scientific | 10020090 | |
| 考马斯亮蓝 | Serva | 17525 | |
| EDTA 二钠盐 | Gerbu | 1034 | |
| 乙醇 | 默克 | 100983 | |
| GelRed(水中,10,000 倍) | Biotium | 41003 | |
| 甘油(99.5%) | 格尔布 | 2006 | |
| FastRuler 低分子量 DNA Ladder | 赛默飞世尔科技 | SM1103 | |
| 组蛋白 H3 | 表达质粒由Dr. Philipp Voigt和Prof. Danny Reinberg提供;表达与纯化方法参照T. J. Richmond等,J. Mol. Biol. 1997, 272, 301-311。 | ||
| M.BseCI | 表达质粒由 Michael Kokkinidis 博士提供;表达与分离方法参照 Kapetaniou 等人,Acta Cryst. 2006, F63, 12-14。 | ||
| 甲醇 | Fisher Scientific | 10675112 | |
| 氯化镁 六水合物 | J.T. Baker | 4003 | |
| MOPS | Gerbu | 1081 | |
| 氯化钠 | 格尔布 | 1112 | |
| pH 试纸(Neutralit) | 默克 | 1,095,330,001 | |
| pBR322 | 赛默飞世尔科技 | SD0041 | |
| R.TaqI(10 u/µl) | 赛默飞世尔科技 | ER0671 | |
| SeAdoYn | 根据 Willnow 等人,ChemBioChem 2012, 13, 1167-1173 合成。 | ||
| Set7/9 | 表达质粒由Danny Reinberg教授提供,表达与纯化方法参照D. Reinberg等,Genes Dev. 2002, 16, 479-489。 | ||
| 链霉亲和素 | Gerbu | 3058 | |
| (+)-抗坏血酸钠 | Sigma生命科学 | A7631 | |
| SDS 颗粒 | Gerbu | 1833 | |
| 二水合磷酸氢二钠 | 默克 | 106,586 | |
| TAMRA 叠氮化物 | 根据参考文献30合成:Willnow et al., ChemBioChem 2012, 13, 1167-1173。 | ||
| TaqI 缓冲液(10×) | Thermo Scientific | B28 | |
| N,N,N',N'-四甲基乙二胺(TEMED) | Acros Organics | 42058 | |
| Tris-HCl | Gerbu | 1028 | |
| Tris-X(Tris碱) | Gerbu | 1018 | |
| Tris(3-羟丙基三唑基甲基)胺(THPTA) | Sigma-Aldrich | 762342 |
参考文献
- Gottfried, A., Weinhold, E. Sequence-specific covalent labelling of DNA. Biochem. Soc. Trans. 39, 623-628 (2011).
- Zohar, H., Muller, S. J. Labeling DNA for single-molecule experiments: methods of labeling internal specific sequences on double-stranded DNA. Nanoscale. 3, 3027-3039 (2011).
- Hinner, M. J., Johnsson, K. How to obtain labeled proteins and what to do with them. Curr. Opin. Biotechnol. 21, 766-776 (2010).
- Wua, Y. -W., Goody, R. S. Probing protein function by chemical modification. J. Pept. Sci. 16, 514-523 (2010).
- Struck, A. -W., Thompson, M. L., Wong, L. S., Micklefield, J. S-Adenosyl-methionine-dependent methyltransferases: Highly versatile enzymes in biocatalysis, biosynthesis and other biotechnological applications. ChemBioChem. 13, 2642-2655 (2012).
- Klimasauskas, S., Weinhold, E. A new tool for biotechnology: AdoMet-dependent methyltransferases. Trends Biotechnol. 25, 99-104 (2007).
- Pljevaljcic, G., Schmidt, F., Weinhold, E. Sequence-specific Methyltransferase-Induced Labeling of DNA (SMILing DNA). ChemBioChem. 5, 265-269 (2004).
- Lukinavicius, G., Lapiene, V., Stasevskij, Z., Dalhoff, C., Weinhold, E., Klimasauskas, S. Targeted labeling of DNA by methyltransferase-directed Transfer of Activated Groups (mTAG). J. Am. Chem. Soc. 129, 2758-2759 (1021).
- Pignot, M., Siethoff, C., Linscheid, M., Weinhold, E. Coupling of a nucleoside with DNA by a methyltransferase. Angew. Chem. Int. Ed. 37, 2888-2891 (1998).
- Weller, R. L., Rajski, S. R. Design, synthesis, and preliminary biological evaluation of a DNA methyltransferase-directed alkylating agent. ChemBioChem. 7, 243-245 (2006).
- Du, Y., Hendrick, C. E., Frye, K. S., Comstock, L. R. Fluorescent DNA Labeling by N-Mustard Analogues of S-adenosyl-l-methionine. ChemBioChem. 13, 2225-2233 (2012).
- Pljevaljcic, G., Schmidt, F., Scheidig, A. J., Lurz, R., Weinhold, E. Quantitative labeling of long plasmid DNA with nanometer precision. ChemBioChem. 8, 1516-1519 (1002).
- Wilkinson, S., et al. Molecular scale architecture: engineered three- and four-way junctions. Bioconjugate Chem. 19, 470-475 (2008).
- Braun, G., et al. Enzyme-directed positioning of nanoparticles on large DNA templates. Bioconjugate Chem. 19, 476-479 (2008).
- Kim, S., et al. Enzymatically incorporated genomic tags for optical mapping of DNA binding proteins. Chem. Int. Ed. 51, 3578-3581 (2012).
- Rina, M., Bouriotis, V. Cloning purification and characterization of the BseCI DNA methyltransferase from Bacillus stearothermophilus. Gene. 133, 91-94 (1993).
- Sequence-specific detection of methylation in biomolecules. US Patent. , 8,129,106 (2012).
- Pljevaljcic, G., Pignot, M., Weinhold, E. Design of a new fluorescent cofactor for DNA methyltransferases and sequence-specific labeling of DNA. J. Am. Chem. Soc. 125, 3492-3410 (2003).
- Schmidt, F. H. -G., Hüben, M., Gider, B., Renault, F., Teulade-Fichou, M. -P., Weinhold, E. Sequence-specific Methyltransferase-Induced Labelling (SMILing) of plasmid DNA for studying cell transfection. Bioorg. Med. Chem. 16, 40-48 (2008).
- Dalhoff, C., Lukinavicius, G., Klimasauskas, S., Weinhold, E. Direct transfer of extended groups from synthetic cofactors by DNA methyltransferases. Nat. Chem. Biol. 2, 31-32 (2006).
- Lukinavicius, G., Tomkuviene, M., Masevicius, V., Klimasauskas, S. Enhanced chemical stability of AdoMet analogues for improved methyltransferase-directed labeling of DNA. ACS Chem. Biol. 8, 1134-1139 (2013).
- Motorin, Y., et al. Expanding the chemical scope of RNA:methyltransferases to site-specific alkynylation of RNA for click labeling. Nucleic Acids Res. 39, 1943-1952 (1943).
- Schulz, D., Holstein, J. M., Rentmeister, A. A chemo-enzymatic approach for site-specific modification of the RNA cap. Angew. Chem. Int. Ed. 52, 7874-7878 (2013).
- Peters, W., et al. Enzymatic site-specific functionalization of protein methyltransferase substrates with alkynes for click labeling. Angew. Chem. Int. Ed. 49, 5170-5173 (2010).
- Islam, K., Zheng, W., Yu, H., Deng, H., Luo, M. Expanding cofactor repertoire of protein lysine methyltransferase for substrate labeling. ACS Chem. Biol. 6, 679-684 (2011).
- Wang, R., Zheng, W., Yu, H., Deng, H., Luo, M. Labeling substrates of protein arginine methyltransferase with engineered enzymes and matched S-adenosyl-l-methionine analogues. J. Am. Chem. Soc. 133, 7648-7651 (2011).
- Islam, K., et al. Bioorthogonal profiling of protein methylation using azido derivative of S-adenosyl-l-methionine. J. Am. Chem. Soc. 134, 5909-5915 (2012).
- Islam, K., et al. Defining efficient enzyme-cofactor pairs for bioorthogonal profiling of protein methylation. Proc. Natl. Acad. Sci. U.S.A. 110, 16778-16783 (2013).
- Binda, O., Boyce, M., Rush, J. S., Palaniappan, K. K., Bertozzi, C. R., Gozani, O. A chemical method for labeling lysine methyltransferase substrates. ChemBioChem. 12, 330-334 (2011).
- Willnow, S., Martin, M., Lüscher, B., Weinhold, E. A selenium-based click AdoMet analogue for versatile substrate labeling with wild-type protein methyltransferases. ChemBioChem. 13, 1167-1173 (2012).
- Bothwell, I. R., et al. Se-Adenosyl-l-selenomethionine cofactor analogue as a reporter of protein methylation. J. Am. Chem. Soc. 134, 14905-14912 (2012).
- Tomkuviene, M., Clouet-d’Orval, B., Cerniauskas, I., Weinhold, E., Klimasauskas, S. Programmable sequence-specific click-labeling of RNA using archaeal box C/D RNP methyltransferases. Nucleic Acids Res. 40, 6765-6773 (2012).
- Nishioka, K., et al. Set9, a novel histone H3 methyltransferase that facilitates transcription by precluding histone tail modifications required for heterochromatin formation. Genes Dev. 16, 479-489 (2002).
- Clark, P. M., et al. Direct in-gel fluorescence detection and cellular imaging of O-GlcNAc-modified proteins. J. Am. Chem. Soc. 130, (2008).
- Lukinavicius, G., Lapinaite, A., Urbanaviciute, G., Gerasimaite, R., Klimasauskas, S. Engineering the DNA cytosine-5 methyltransferase reaction for sequence-specific labeling of DNA. Nucleic Acids Res. 40, 11594-11602 (2012).
- Neely, R. K., Dedecker, P., Hotta, J., Urbanaviciute, G., Klimasauskas, S., Hofkens, J. DNA fluorocode: A single molecule, optical map of DNA with nanometre resolution. Chem. Sci. 1, 453-460 (2010).
- Roberts, R. J., Vincze, T., Posfai, J., Macelis, D. REBASE-a database for DNA restriction and modification: enzymes, genes and genomes. Nucleic Acids Res. 38, 234-236 (2010).
- Petrossian, T. C., Clarke, S. G. Uncovering the human methyltransferasome. Mol. Cell. Proteomics. 10, 1-12 (2011).
- Kriukiene, E., et al. DNA unmethylome profiling by covalent capture of CpG sites. Nat. Commun. 4, 2190(2013).
- Wang, R., et al. Profiling genome-wide chromatin methylation with engineered posttranslation apparatus within living cells. J. Am. Chem. Soc. 135, 1048-1056 (2013).
- Zhang, C., Weller, R. L., Thorson, J. S., Rajski, S. R. Natural product diversification using a non-natural cofactor analogue of S-adenosyl-l-methionine. J. Am. Chem. Soc. 128, 2760-2761 (2006).
- Stecher, H., et al. Biocatalytic Fiedel-Crafts alkylation using non-natural cofactors. Angew. Chem. Int. Ed. 48, 9546-9548 (2009).
- Lee, B. W. K., Sun, H. G., Zang, T., Kim, B. J., Alfaro, J. F., Zhou, Z. S. Enzyme-catalyzed transfer of a ketone group from an S-adenosylmethionine analogue: A tool for the functional analysis of methyltransferases. J. Am. Chem. Soc. 132, 3642-3643 (2010).
- Winter, J. M., et al. Expanding the structural diversity of polyketides by exploring the cofactor tolerance of an inline methyltransferase domain. Org. Lett. 15, 3774-3777 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
