骨骼肌对于运动至关重要,也是机体主要的蛋白质储存组织。本文描述了秀丽隐杆线虫(C. elegans)中肌肉健康的测量方法。利用局部表达的绿色荧光蛋白(GFP)和阳离子染料,评估肌肉结构与功能的潜在变化。
本文内容
摘要
摘要
肌肉是一种动态组织,会响应营养、运动和疾病状态的变化。随着疾病和衰老导致的肌肉质量和功能丧失,已成为重大的公共卫生负担。目前,我们对疾病或衰老状态下肌肉健康的遗传调控机制了解甚少。线虫 C. elegans 是研究目标生物学过程基因组调控机制的成熟模型。该线虫的体壁肌肉与高等后生动物物种的肌肉具有高度同源性。由于 C. elegans 由于该生物体是透明的,GFP 在线粒体和肌节中的定位使得这些结构得以可视化 体内类似地,通过给动物喂食阳离子染料(此类染料的积累依赖于线粒体膜电位的存在),可评估线粒体功能。 体内这些方法结合对整体动物肌肉功能的评估(以运动实验的形式),并联合检测肌肉蛋白质稳态,从而实现亚细胞缺陷与肌肉功能表现之间相关性的分析。因此, C. elegans 为评估突变、基因敲低和/或化学化合物对肌肉结构与功能的影响提供了一个强大的平台。最后,由于GFP、阳离子染料及运动功能检测均可进行非侵入性评估,因此可对整个生命周期中的肌肉结构与功能开展前瞻性研究,而这一点目前尚难以实现 体内 在任何其他生物中。
引言
肌肉是一种多功能组织,以其在运动、姿势维持和代谢中的作用而广受重视。健康肌肉的发育和维持需要多种细胞过程和组分的协调。无论是由于损伤还是疾病,都可能发生调节失常,导致肌肉结构和/或功能的改变。与年龄相关的肌肉功能下降给西方国家的医疗预算带来了重大负担,因为肌肉质量1,2尤其是肌肉力量和耐力3-5与死亡率呈负相关。对肌肉功能衰退相关指标(如线粒体功能异常或肌节结构破坏)的测量,有助于更深入理解整体肌肉发育和健康的潜在机制。
C秀丽隐杆线虫 elegans (C. elegans是一种微小的线虫,最著名之处在于它是首个完成全基因组测序的多细胞生物。6,首个利用RNAi实现基因沉默的7,且是唯一一个完整细胞谱系已被完全解析的多细胞生物8 以及神经解剖学9 确定。 C. elegans 1974年,悉尼·布伦纳(Sydney Brenner)首次提出将其作为研究行为遗传调控的模型10 以及这一研究及后续工作的重要性获得了三次诺贝尔奖中的首次奖项,授予了 C. elegans 研究人员。约35%的 C. elegans 基因已在人类中鉴定出直系同源物,且 C. elegans 是研究肌肉发育遗传调控机制的关键模式生物11几乎每一个基因在 C. elegans 通过RNAi可实现基因组的敲低7,12因此,通过在完全发育的肌肉中敲低基因,可以相对简便地研究参与调控肌肉健康的遗传组分。13.
RNAi 技术的联合应用能力, 突变体和化合物使得 C. elegans 探索基因调控的领先系统7,14,15 肌肉结构与功能随年龄的变化16 以及在疾病模型中17基因敲低、突变和/或化学化合物处理对肌肉结构和/或功能影响的评估可通过多个方面进行。本文简要介绍几种用于评估的简单技术 C. elegans 肌肉结构与功能,其中许多可用于肌肉健康的前瞻性研究。
绿色荧光蛋白(GFP)18 的发展使得能够在 C. elegans 中可视化特定蛋白质的定位以及细胞器的一般结构。本文阐述了如何利用在体壁肌线粒体、细胞核或肌节中特异性表达的 GFP,来判断这些亚细胞结构是否存在营养不良。由于结构并不总是功能的可靠替代指标,我们还介绍了如何在活体(in vivo)中使用阳离子染料来评估肌肉中线粒体膜电位是否受损。当染料与 GFP 联合使用时,可实现对结构与功能在个体生命周期内进行时间序列上的研究。最后,我们还说明了如何评估肌肉内的蛋白质稳态,以及如何结合运动功能检测,利用上述所有指标来关联整体动物肌肉健康的改变。这些技术与基因敲低、突变和/或化学化合物相结合,为研究特定基因或化合物如何在活体(in vivo)中影响肌肉健康提供了强大的工具。由于 C. elegans 与哺乳动物在肌肉结构、代谢和总体功能方面具有高度相似性,因此 C. elegans 是研究包括人类在内的高等生物肌肉调控机制的杰出模式生物。
方案
1. 菌株、培养与显微镜观察
- 操作和保藏菌株 C. elegans 如前所述19菌株可从线虫遗传学中心(Caenorhabditis Genetics Center,CGC)获取。
注意:本实验中使用的菌株为 CB5600(ccIs4251 (Pmyo-3::Ngfp-lacZ; Pmyo-3::Mtgfp) I;him-8 (e1489) IV)与定位于线粒体和细胞核的GFP融合蛋白;PJ727(jls01 (myo-3::GFP, rol-6 (su1006)); unc-54::lacZ V)与定位于收缩装置的GFP融合蛋白及PD55(ccIs55 (sup-7(st5); unc-54::lacZ) V) 与定位于细胞质的β-半乳糖苷酶融合蛋白。 - 按照之前所述的多代RNAi实验方法完成RNAi实验13 并从 Marc Vidal 构建的经序列验证的 ORF-RNAi 文库中获取 RNAi 细菌 等.12.
- 构建含有 ccIs4251, jls01 或 ccIs55 采用标准技术20使用这些转基因分别构建品系,以评估线粒体网络结构、肌球蛋白排列或蛋白质稳态状态。将这些品系与某一突变品系杂交,以便在每个个体动物中观察上述某一亚细胞结构区室。
- 使用 PI3 激酶抑制剂 LY-294002(LY),方法同前文所述21. 简言之,加入LY-294002至终浓度为 160 µM 置于涂有干燥OP50的NGM平板上。
- 使用GFP滤光片采集基于GFP实验的所有图像,对于同时检测红色、绿色和蓝色通道的成像,应使用配备三通道滤光片的显微镜进行 体内 膜电位与C32H32Cl2N2O,通常以 MitoTracker Red CMXRos 的名称销售。在图像处理软件中进行图像分析和图示制备。
2. 利用重力漂浮法同步L1幼虫期动物
- 至少在使用前1天配制M9缓冲液——22.04 mM KH2PO4、42.27 mM Na2HPO4、85.56 mM NaCl(终浓度),并通过高压灭菌进行灭菌。冷却至45 °C后,在灭菌后加入无菌MgSO4至终浓度1 mM,以防止沉淀22。将M9缓冲液在4 °C下冷却,并分装至50 ml离心管中。
- 实验当天,向一个含有大量L1幼虫的9 cm培养皿中加入3 ml M9缓冲液。通过反复吸出M9液体并在倾斜培养皿的情况下将液体吹打至琼脂表面,清洗培养皿。
- 将L1幼虫从培养皿中冲洗下来,然后用移液器将M9液体转移至一个10 ml试管中。
- 静置2.5分钟,使较大的成虫及较晚期的幼虫沉降至试管底部,而较小的L1幼虫则保留在M9缓冲液上层。
- 用移液器吸取并弃去试管中上层500 µl的M9缓冲液。然后将含有L1幼虫的M9液体转移至一个新的接种了500 µl OP50的NGM培养皿中,在体视显微镜下操作。
- 通常每皿转移约200–300条L1幼虫。从成虫期开始每日观察培养皿,必要时将线虫挑至新的含OP50的NGM培养皿,以避免食物OP50被耗尽。
注意:通常使用P1000移液器转移1–3滴M9缓冲液即可,但具体用量取决于原始培养皿中L1幼虫的数量。 - 若需对个体动物进行前瞻性研究,待动物发育至成虫后,将个体动物分别挑至不同的接种NGM培养皿中。每隔24–48小时转移一次动物,以避免与后代幼虫混杂。
3. 运动行为检测19
- 开始实验前至少 2 小时,取出 50 ml 的 M9 并使其平衡至室温。
- 用移液器将一只成年线虫挑入载玻片上的 50 µl M9 缓冲液中。
- 在 10 秒内计数向左和向右的身体弯曲次数,其中一次向左和一次向右弯曲计为一次摆动。
- 重复计数摆动次数,至少获得 5 次测量值以计算平均值。将这些数值乘以 6,得到每分钟的运动速率。
- 使用移液器将线虫转移回培养皿中。该方法可实现对 C. elegans 整个生命周期中运动能力的时间动态测量。
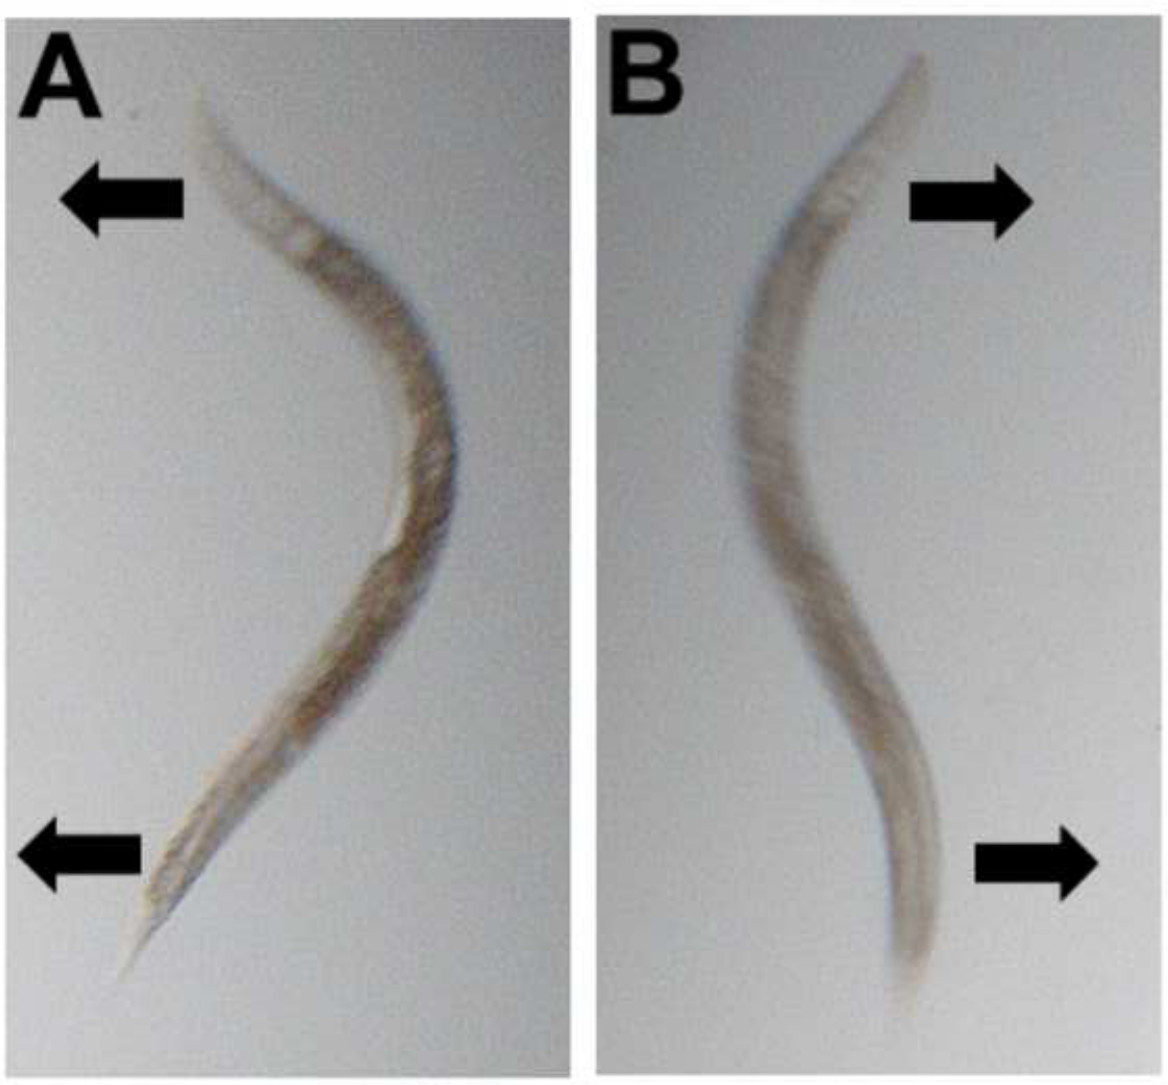
图 1:运动分析实验。将线虫转移至缓冲液后,一次向左弯曲(A)和一次向右弯曲(B)合并计为一次完整的运动(划动)。
4. 体壁肌肉中线粒体网络与肌节的成像
- 注意:相同的实验方案适用于线粒体和肌节的成像。
- 按照先前所述方法同步线虫(第1节),并在20 °C下培养48–60小时,直至其发育至年轻成虫期。
- 从培养板中挑选20条具有代表性的线虫,转移至载玻片上的20 µl M9溶液中。
- 盖上盖玻片,使用荧光显微镜在GFP滤光片(460–500 nm,蓝光激发)下以40倍放大倍数进行成像。
5. 使用一种方法评估膜电位 体内 使用 MitoTracker Red CMXRos (C32H32Cl2N2O
- 同步化CB5600(第1节),所有线虫的肌肉线粒体均标记有GFP,在含有OP50的NGM培养基上于20 °C培养48-60小时至早期成虫期。
- 向50 µg的C32H32Cl2N2O分装样品中加入100 µl DMSO,配制成940.692 µM的储备液。
- 取1 µl的940.692 µM储备液,重悬于199 µl M9缓冲液中,制备成4.70 µM(4.70346 µM)的工作液。请使用棕色1.5 ml离心管配制,因为C32H32Cl2N2O具有光敏性。
- 将4.70 µM工作液分装为每份20 µl(每20 µl含20只成虫)。
- 挑取20只成虫放入含有20 µl、4.70 µM C32H32Cl2N2O的棕色1.5 ml离心管中,在20 °C孵育1小时。
- 孵育1小时后,向含有线虫的棕色1.5 ml离心管中加入1 ml M9缓冲液,以2,000 × g离心10秒,弃去上清液。重复此洗涤步骤一次,然后将线虫沉淀重悬,并将剩余的20 µl(含线虫)转移至载玻片进行成像。
- 使用40倍物镜和三通道滤光片同时观察红、蓝、绿三个荧光通道,对线粒体进行成像。通过三通道滤光片成像可显示C32H32Cl2N2O与定位于线粒体的GFP共定位,呈现橙色信号。
- 在获得橙色线粒体图像后,移除所有滤光片,使用波长为540/25 nm的光源在最大强度下照射线虫10秒进行光漂白。该步骤将漂白线粒体内的红色荧光,仅保留线粒体GFP绿色荧光,从而确认其在肌肉线粒体中的共定位。
6. C. elegans 中肌肉蛋白质降解的评估
- 将 PD55 菌株(或任何含有 lacZ 转基因的菌株)同步接种到接种了 OP50 的 NGM 平板上(第 1 节)。在 20 °C 下培养 48–60 小时至年轻成虫期。
- 用挑虫针将 20 条成虫转移至载玻片上的 20 µl ddH2O 中。注意仅挑取线虫,避免带入细菌。用铅笔标记载玻片。
- 将载玻片放入干燥器中干燥 30 分钟,以使线虫体壁脱水并裂解角质层。在干燥器密封圈周围涂抹真空脂,确保密封严密。
- 在解剖显微镜下检查干燥效果(图 2)。
- 将载玻片浸入冰冻丙酮中 3.5 分钟,然后取出置于室温下的纸巾上 15 分钟,使丙酮完全挥发。此时将 X-gal 和氧化缓冲液从冷冻状态解冻,并平衡至室温。
- 将 2 µl X-gal 加入 100 µl 氧化缓冲液中,轻轻涡旋混匀,确保溶液均匀。此即为 X-gal/氧化缓冲液母液混合液。
- 向每组 20 条线虫所在区域加入 20 µl 的 X-gal/氧化缓冲液母液混合液。在解剖显微镜下观察,确保混合液完全覆盖所有线虫。如有未覆盖区域,可轻轻倾斜载玻片使混合液流动覆盖。
- 将载玻片放入湿盒中,在 20 °C 下孵育 1–2.5 小时。当对照组动物体壁肌肉出现深蓝色时,进行成像。每隔 15 分钟在解剖显微镜下检查对照组动物,以确定最佳成像时间。
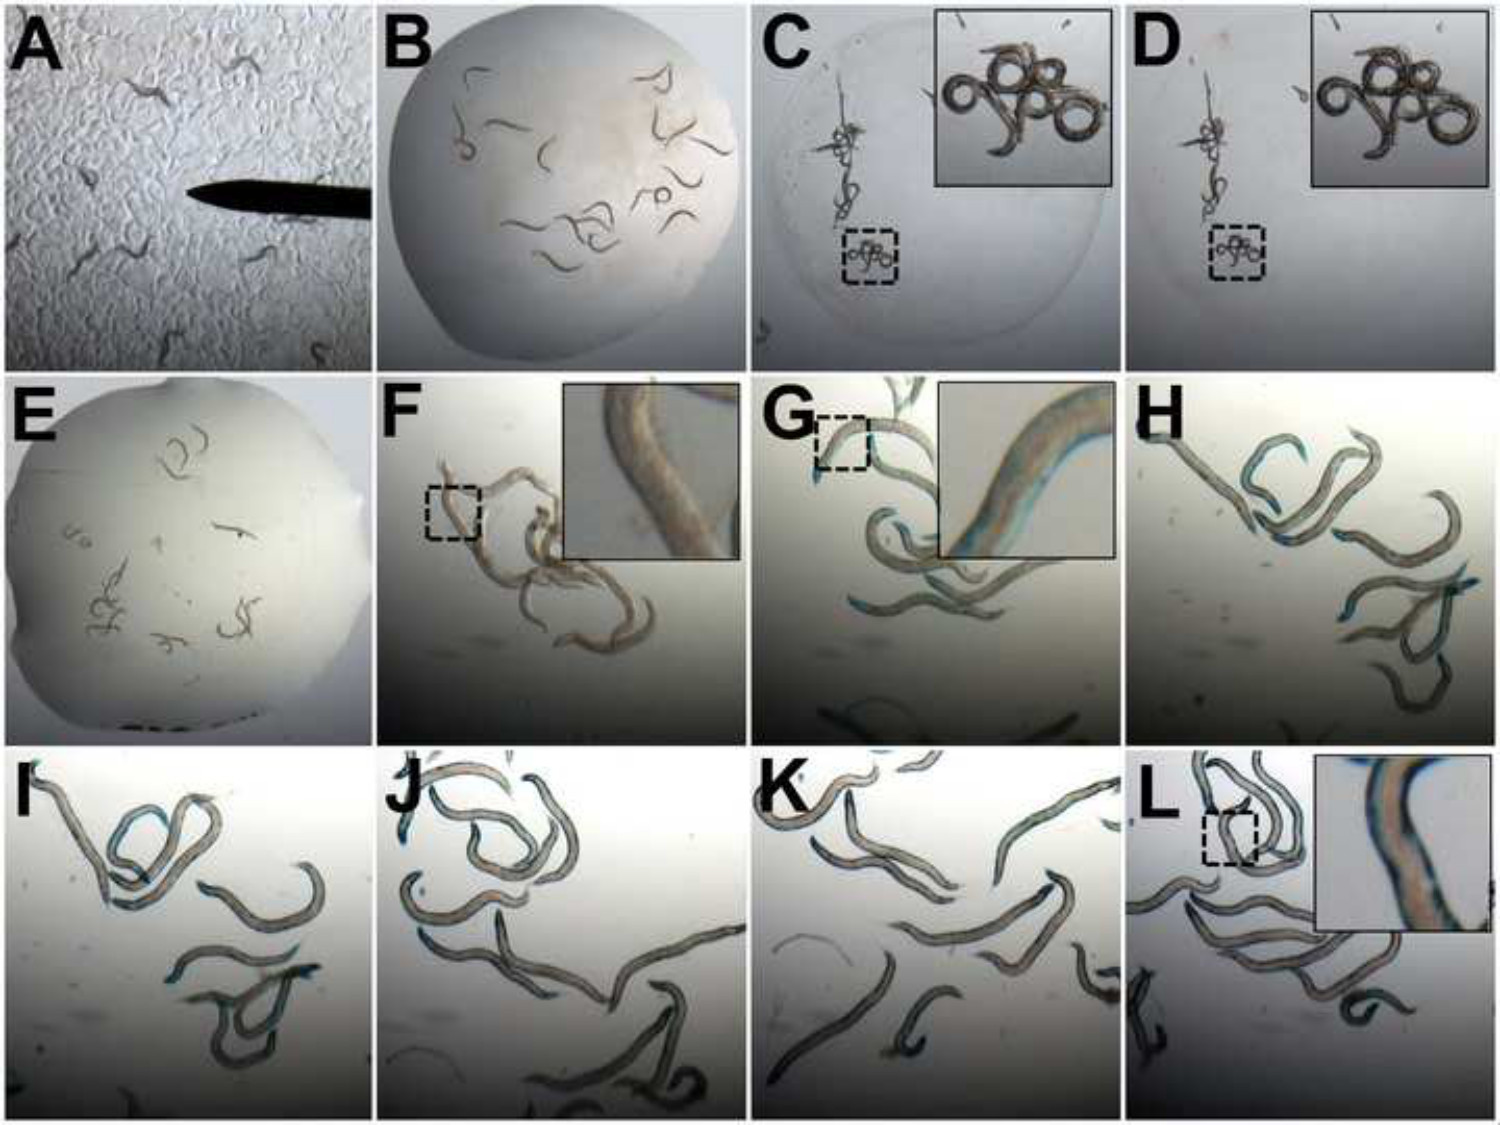
图2:利用β-半乳糖苷酶检测评估肌肉蛋白质降解。(A) 含有以下动物的 lacZ 从培养皿中挑选出含有转基因的个体 20 µl ddH₂O2O on a microscopy slide (B)动物被干燥后发生断裂 (C)随后用丙酮清洗动物样本 (D). 丙酮挥发后,加入X-gal/氧化缓冲液主混合液(E对照动物中蓝色的显色情况每15分钟评估一次 (F-L) 从 t = 0 分钟开始 (F) 直到动物体全长呈现深蓝色 (L). 以 2.5 倍放大倍率拍摄线虫图像 A-E 和 8X 在 F-L. 放大 C, D, F, G,以及 L 是原始放大倍数的4倍。
结果
用于量化运动缺陷的运动测定法
运动能力下降是预测 C. elegans 死亡率的良好指标16,运动速率降低提示神经系统或肌肉系统存在异常。通过运动检测评估的运动变化,可能由针对特定基因的 RNAi 或药物处理引起(图3-5),也可能出现在突变体动物中13,23。运动能力下降可源于发育过程的改变,例如在编码电子传递链复合物 I、III、IV 或 V 的基因于发育期被敲低时24。此外,也可仅在成年 C. elegans 中测试特定干预措施,以研究其对发育后生理状态的影响。例如,用针对 unc-112 的 RNAi 处理动物,该基因编码整合素相关肌肉附着复合物中的 C. elegans Kindlin-1 同源蛋白(图3和4);或针对 gas-1 的 RNAi 处理,该基因编码电子传递链复合物 I 的组分(图4),均表现出自成年后的 48–72 小时起运动能力进行性下降,与对照组相比。这可能提示肌肉生理功能异常。类似地,在正常发育的成年动物中使用 PI3K 抑制剂 LY-294002 处理后,可在 24–72 小时内观察到运动能力丧失(图5)。此外,还可测试第二种 RNAi 处理、突变或药物是否能够恢复因初始干预而出现运动能力下降的动物的运动功能。例如,与野生型动物相比,unc-112 突变体表现出可量化的运动能力下降,而当同时存在 dim-1 基因的第二突变时,该表型得以缓解13。因此,运动检测不仅可用于识别影响神经肌肉发育和/或功能的干预措施,也可用于发现改善和/或恢复神经肌肉功能的干预手段。
肌节结构紊乱的评估
在发现运动缺陷后,通常需要确定该运动缺陷的原因是否可归因于神经、肌肉或两者同时存在的问题。肌节是肌肉内负责收缩、从而产生力量和运动的多蛋白复合体。通过利用表达肌球蛋白GFP融合蛋白并定位于收缩装置的动物模型,可以在个体动物的发育期和/或成年期,相对无创且前瞻性地观察肌球蛋白丝和肌节结构破坏的程度。野生型动物的肌节排列有序,在每条体壁肌中呈现为多条绿色平行直线(图3)。这些正常排列的肌节可能出现较轻微的紊乱,表现为肌节结构相互融合而非保持平行。这种表型在 t = 24 小时或 48 小时时进行 unc-112 RNAi 处理后可见(图3),类似于哺乳动物肌肉中肌动蛋白附着点的Z线溶解现象。类似地,部分肌节区域可能发生塌陷,或完全消失,例如在 t = 48 小时或 t = 72 小时时进行 unc-112 RNAi 处理后的情况(图3)。在表现出运动缺陷的动物肌肉中观察到肌节结构异常(图3),足以解释其运动缺陷,但这并不排除干预后肌肉、神经和/或其他组织同时存在其他问题的可能性。
线粒体网络结构的评估
当存在运动缺陷时,有时需要检查肌肉是否存在其他可能导致或促成该运动缺陷的异常。线粒体提供了细胞所需的大部分能量,运动能力的下降可能是由于ATP供应减少,从而降低了肌肉收缩可用的能量。因此,可检查线粒体结构是否存在异常。需要注意的是,不应使用叠氮化钠麻醉动物,因为它会诱导线粒体迅速发生断裂;本实验中动物通过盖玻片施加的压力实现固定。在野生型 C. elegans 体壁肌肉中,线粒体存在于有序的网络结构中(图4),且线粒体以网状结构的形式存在并发挥功能25。线粒体网络的破坏表现为网络的断裂(gas-1 RNAi,图4B)26。断裂可能严重到完全失去有序网络的形态,例如经 unc-112 RNAi 处理后的情况(图4B 和 C)13。与肌节结构的破坏类似,表现出运动缺陷的动物中,肌肉线粒体结构的缺陷可能足以解释其运动障碍,但这并不排除肌肉、神经和/或其他组织同时存在其他问题的可能性。例如,unc-112 突变体13 及 unc-112 RNAi 处理(图3 和 图4)均表现出肌节结构和线粒体结构的同时破坏。
线粒体功能评估 在体实验
线粒体膜电位决定了线粒体产生质子驱动力和生成ATP的能力27因此,评估线粒体膜电位的能力 体内 表明该动物产生 ATP 的能力。由于线粒体结构的破坏可能改变也可能不改变线粒体的功能能力,因此有必要对线粒体结构发生改变的动物评估其线粒体功能。C32H32Cl2N2O 在所有存在膜电位的细胞类型的线粒体中积累,并对线粒体进行染色28 (图 4C). 为特异性评估肌肉中的线粒体功能,可使用 C32H32Cl2N2O 和 GFP 标记的肌肉线粒体以特异性地展示干预措施对肌肉线粒体的影响(图4C)。例如,经处理后线粒体膜电位的丧失 unc-112 RNAi 抑制 C32H32Cl2N2O 进入基质。因此,线粒体显示出很少甚至没有线粒体的红色染色,除了线粒体的 GFP 标记外(图4C)。光漂白也可用于确认所观察到的线粒体确实位于肌肉组织中(图 4C)。识别出ATP生成能力下降足以解释所观察到的运动缺陷,但并不能排除肌肉、神经和/或其他组织中可能存在的其他问题。尽管如此,由于ATP生成能力下降与人类疾病状态相关29 和衰老30,针对干预措施后发现此类缺陷,可为筛选能够提高ATP生成能力的化合物和/或RNAi治疗方法提供平台,进而可进一步探索其治疗潜力。
蛋白质降解的评估
当存在运动缺陷且肌节和线粒体结构正常时,有时需要检测肌肉是否存在其他可能导致或促成运动缺陷的异常。维持蛋白质稳态是正常健康状态的重要特征,而蛋白质合成减少和/或蛋白质降解增加则是衰老31以及多种疾病状态32,33的结果。因此,对具有运动缺陷的动物肌肉检测其蛋白质稳态是否发生改变可能是必要的。这可以通过评估胞质肌肉蛋白的水平来实现。利用转基因编码的报告蛋白可实现对肌肉特异性蛋白稳态的评估。例如,使用携带β-半乳糖苷酶(β-galactosidase)的动物模型,该酶与肌球蛋白的N端部分融合,并在肌球蛋白启动子和增强子的调控下表达,可用于评估胞质肌肉蛋白含量19。野生型成虫中出现蓝色染色表明β-半乳糖苷酶具有活性,且不存在病理性胞质蛋白降解。若经处理后染色减弱,则提示发生了病理性蛋白降解(图5),因为在野生型成虫中,β-半乳糖苷酶在成年后的72至96小时内保持稳定13,14,19。例如,未经处理的野生型动物在成年后72小时呈现强烈的蓝色染色,而经LY-249002处理的动物则几乎无染色(图5)。与肌节结构异常和线粒体功能障碍类似,存在病理性肌肉蛋白降解足以解释所观察到的运动缺陷,但并不能排除肌肉、神经和/或其他组织同时存在其他问题的可能性。
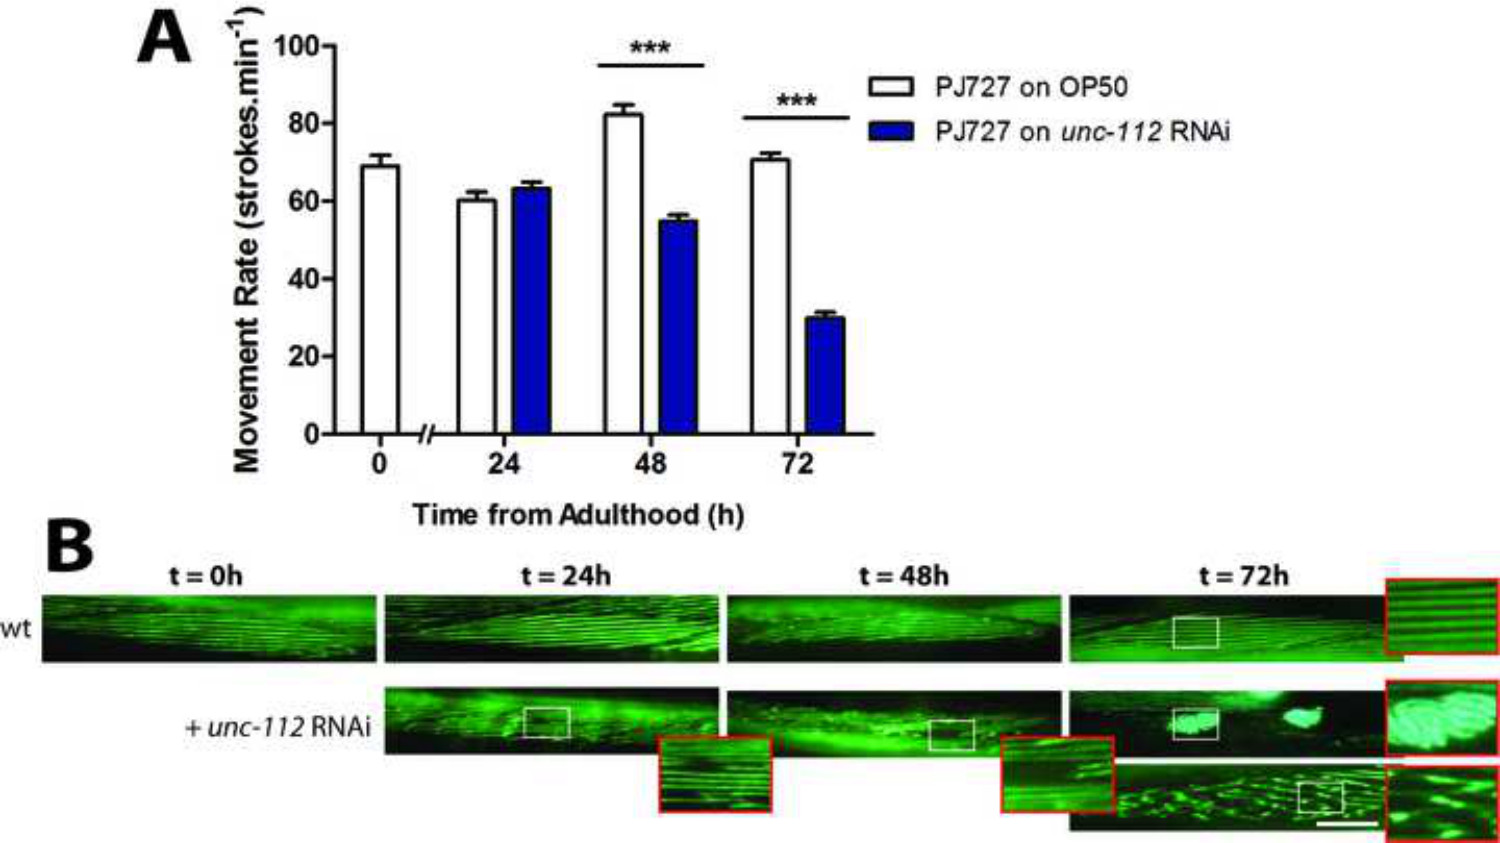
图 3:(A) unc-112 RNAi 在 t = 72 小时时引起显著的运动缺陷。(B) 体壁肌内有序排列的A带结构评估。在野生型(wt)中,肌肉中的A带在年轻成虫期(t = 0 小时)呈直线状,并在成虫期72小时后仍基本保持均匀(见 wt 放大图)。unc-112 RNAi 导致肌节在肌肉局部区域失去正常结构(t = 24 小时),出现肌节塌陷和缺失(t = 48 小时),聚集现象(t = 72 小时,上图及放大图)以及肌节线性结构丧失(t = 72 小时,下图及放大图)。比例尺为 25 µM,放大图为 2.5 倍放大。
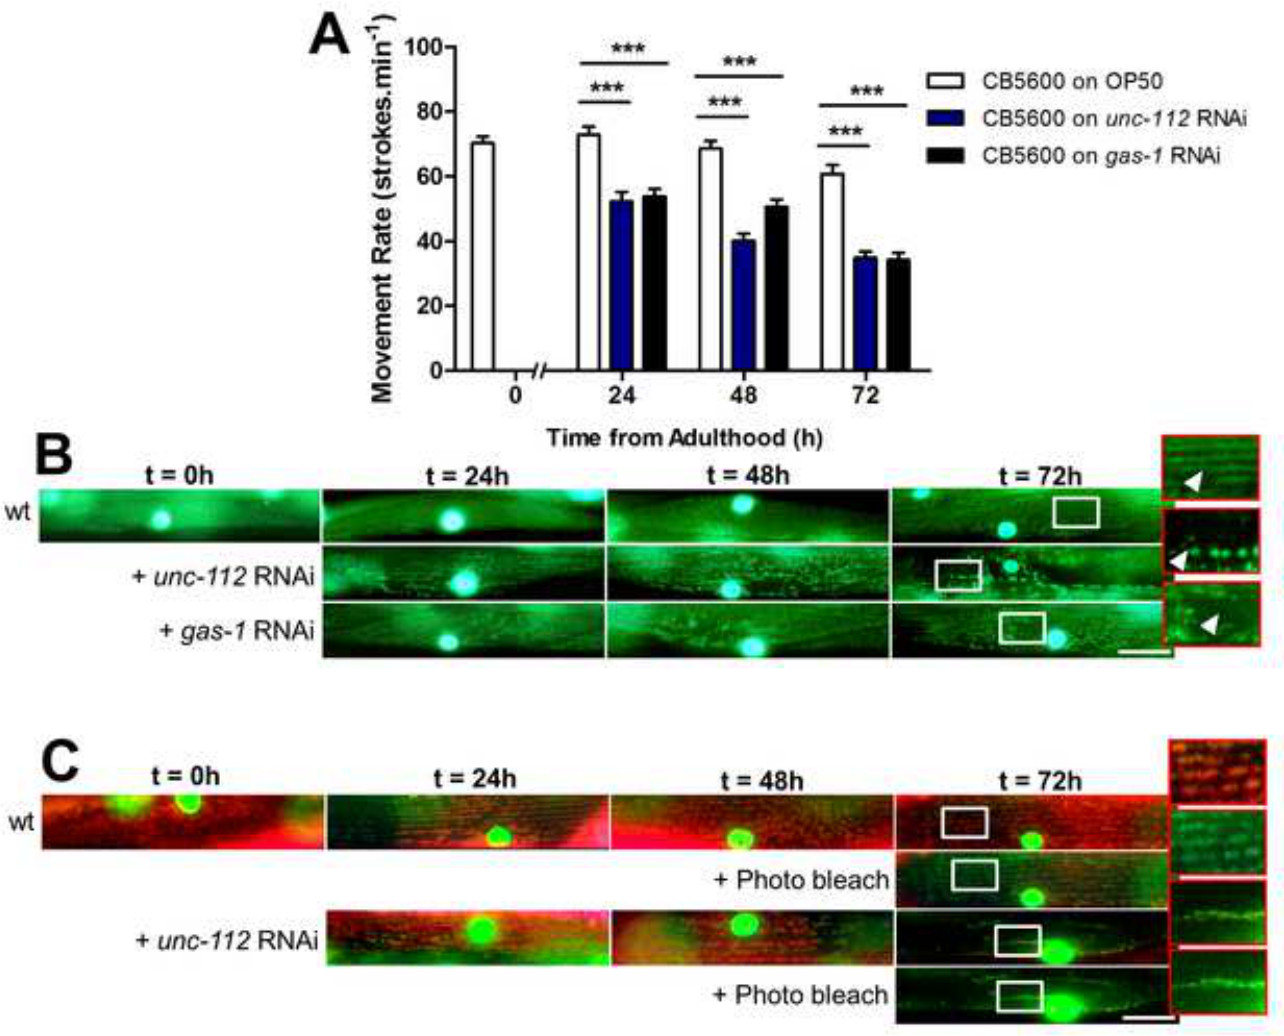
图4: (A) unc-112 或 gas-1 RNAi 导致运动缺陷。 (B) 评估体壁肌肉中线粒体的结构。在年轻成虫期,肌肉中的线粒体呈相互连接的直线状网络结构(wt)。对动物进行处理以 unc-112 RNAi 导致线粒体断裂,这一现象此前已在成虫期24小时至72小时之间观察到(局部放大图及箭头所示)13同样地,针对的RNAi 气体-1 导致线粒体网络断裂,与先前观察结果一致26这些表现为线粒体网络在24小时时出现的小间隙,并在72小时时进展为广泛的结构紊乱(见放大图和箭头所示)。 (C) 线粒体膜电位评估 体内. 在线粒体中同时含有定位的GFP的动物中,C32H32Cl2N2O 在成年初期(t = 0 小时)至成年后 72 小时期间,积聚于体壁肌的线粒体中,在三通道滤光镜下呈橙色。经处理后 unc-112 RNAi 导致膜电位逐渐丧失,如在 72 小时时所示,残留的线粒体对 C 的积累减少32H32Cl2N2O 对比 wt。使用 540/25 nm 光照进行 10 秒光漂白,可漂去 MitoTracker 的红色荧光,从而揭示定位于肌肉线粒体的 GFP(+ 光漂白)。比例尺表示 25 µm 放大倍数为2.5倍。
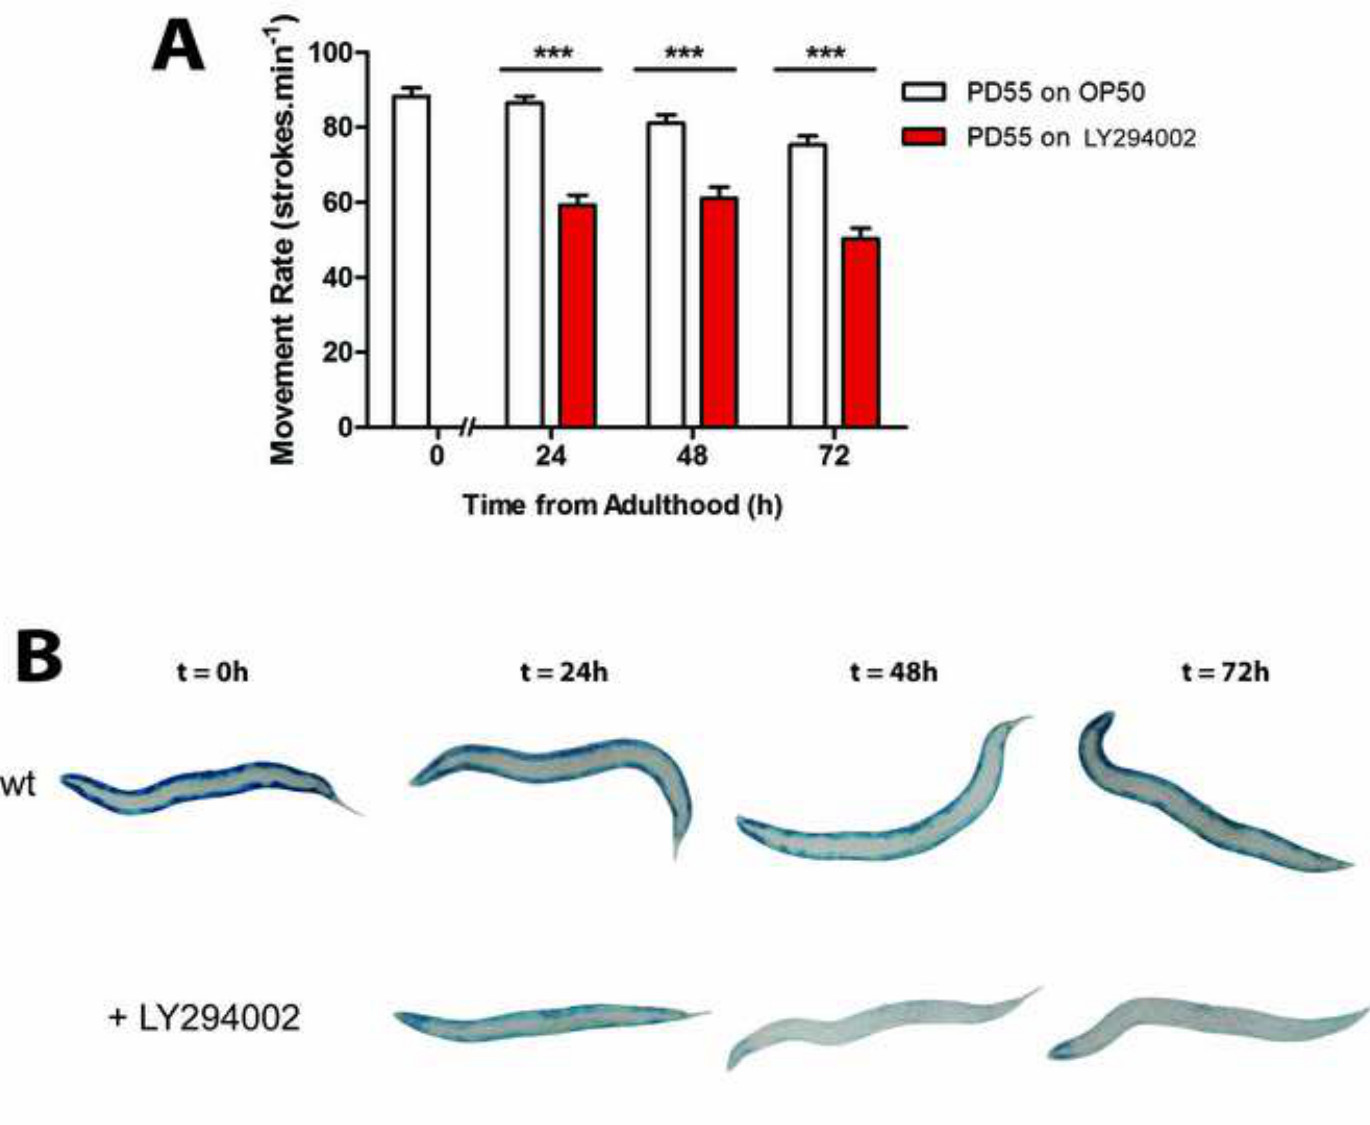
图5: (A) LY-294002处理动物会诱导产生运动缺陷。 (B) 使用β-半乳糖苷酶检测法评估蛋白质降解 年龄同步的野生型L1幼虫在适宜条件下培养至年轻成虫期 20 °C (t = 0 小时)转移至涂布有 OP50 的 NGM 平板(野生型对照)或涂布有 LY-294002(PI3K 抑制剂处理)的 NGM 平板,24 小时后 20 °C在 A 中,分别于 t = 0 小时、24 小时、48 小时和 72 小时对约 20–30 只动物进行 β-半乳糖苷酶活性(蓝色)染色。
讨论
这些方法可用于从运动的宏观生理学层面到足以导致运动缺陷的亚细胞结构缺陷的鉴定,对肌肉进行探索。结合使用这些方法可实现对肌肉的详细分析。由此获得的认识为进一步检验与一般生理学、病理生理学及衰老相关的肌肉定向假说提供了依据。
运动检测
运动缺陷表明正常的神经肌肉功能受到破坏。这种缺陷可能特异性地影响神经或肌肉,也可能在多种组织中普遍存在。完成运动检测时最困难的阶段是选择能够代表群体和/或处理条件的线虫,并确保实验人员在将线虫转移至M9缓冲液时不会对其造成损伤。为了获得具有代表性且准确的运动评估结果,必须具备较大的样本量。当检测高外显率效应时(例如在突变体中常见的情况),每组十只线虫、每只重复检测十次运动能力,通常足以发现与野生型之间具有统计学显著性的差异。然而,由于运动检测方法简单且秀丽隐杆线虫(C. elegans)易于培养,因此可以快速评估数百条线虫,以确保获得定量上稳健的结果。当检测仅在部分群体中出现的效应时,重要的是确定受影响个体在群体中所占的比例,以及受影响最严重个体的缺陷程度。在这种情况下,应评估更大量的线虫,以提供关于受影响群体比例的最低限度数据。通常情况下,药物处理和RNA干扰(RNAi)处理会在小部分群体中引发严重的运动缺陷。在某些情况下,提高处理剂量或改进递送方式可增加受影响个体的比例,因此进行剂量-反应曲线分析可能有助于确定药物或RNAi的最佳浓度。该运动检测的第二个局限性在于,线虫在检测过程中需要人为操作。因此,当线虫被挑入液体中时,既受到刺激,也经历一定程度的渗透压应激。通过使用M9缓冲液或BU缓冲液19而非水,可以限制渗透压应激的程度。部分局限性可通过使用商业化的追踪系统34或ImageJ的免费插件35在培养板上测量习惯性运动来缓解。测量动物的运动速率可提供有关整体肌肉健康状况的重要信息,包括在整个生命周期中可检测到的功能变化,而该方法的非侵入性特点对于长期前瞻性肌肉功能研究尤为关键。
收缩装置的成像
本实验中用于观察收缩装置结构的线虫品系为PJ72736,该品系表达一种肌球蛋白GFP融合蛋白,定位于体壁肌细胞的肌节内。使用该品系可在活体动物中可视化肌节结构。与上述运动功能检测类似,利用GFP标记的肌节评估肌节结构的一个主要优势在于该方法相对非侵入性,因此可用于在个体动物整个生命周期中前瞻性地追踪其肌节结构的变化。该方法最大的难点在于成像时线虫仍存活并持续运动,这使得难以获得清晰对焦的图像。可采用多种方法减少线虫运动以简化成像过程,包括使用麻醉剂或麻痹剂、通过压力或负压固定,或使用高黏度溶液。然而,这些固定方法的缺点在于其本身可能改变神经肌肉功能。因此,在分析中必须设置未经处理的对照组。此外,根据所选固定方法在特定研究问题中的应用广泛程度,谨慎起见应至少采用两种独立的固定方法,以确认实验结果并非由固定方法本身的问题所致。本实验中,我们采用盖玻片对线虫施加简单压力以减少其运动。放置盖玻片后,盖玻片下方的液体将逐渐蒸发,导致盖玻片对线虫施加的压力逐渐增大,通常在2–5分钟内即可显著抑制运动,从而便于成像。
在加盖盖玻片后,必须密切观察线虫,因为压力会逐渐增加,最终导致线虫因压力过大而破裂,通常发生在加盖玻片后10–15分钟。可通过移液器枪头在盖玻片边缘加入额外缓冲液,以避免对线虫造成挤压损伤。可使用指甲油密封盖玻片边缘,防止液体蒸发,但这样会阻止后续从盖玻片下回收线虫。类似地,在溶液中使用硅胶微珠可帮助减少盖玻片对线虫施加的压力。
与评估运动缺陷类似,考虑效应的外显率非常重要。如果80%-100%的动物在NGM平板上表现出表型,则认为外显率高;若为21%-79%则为部分外显;若≤20%的群体表现出效应,则为低外显。对于外显率高的效应,可使用较小的样本量来获得关于肌节缺陷的显著定量数据。当效应外显率较低时,选择在药物或RNAi处理后表现出明显运动缺陷的动物,可能有助于检测受处理影响最显著个体中的肌节缺陷。然而,处理对运动功能和亚细胞结构的影响程度并不一定相同。因此,可能需要检测较大群体(例如100只动物)中缺陷的分布情况,以了解缺陷在整个群体中的分布特征。此外,还可能需要检测受影响最严重个体中缺陷的程度,和/或分析肌节缺陷程度与运动缺陷程度之间的相关性。尽管存在潜在困难,该方法仍比其他评估肌节结构的方法更快、更简便。然而,这种快速和便捷性存在一个关键限制:含有GFP融合蛋白的肌节并非完全正常37,因此对肌节结构紊乱的评估应通过其他更为费时但严谨的方法加以验证。这些方法包括偏振光显微技术38、鬼笔环肽染色39以及间接免疫荧光技术40。在这些方法中,仅偏振光显微技术相对非侵入性;其余方法均需固定样本,因此无法用于对单个动物的前瞻性研究,而仅可用于横向验证此类研究的结果。
线粒体网络成像
用于线粒体成像实验的线虫品系为CB56007,该品系在体壁肌细胞中表达定位于线粒体的GFP融合蛋白以及定位于细胞核的GFP-β-半乳糖苷酶融合蛋白。与使用PJ727品系进行肌节成像类似,该品系可用于在活体动物中观察线粒体网络结构,因此可用于评估动态变化,例如线粒体融合减少和/或线粒体分裂增加41。与肌节成像一样,该方法最大的困难在于被成像的线虫仍处于存活和运动状态,导致难以获得清晰对焦的图像。尽管如上文更详细讨论的那样,可采用多种方法来减少运动,但线粒体对抑制运动的干预措施尤为敏感。例如,最常用的麻醉剂作用于线粒体呼吸链的组分,因此在研究正常线粒体结构和功能时必须谨慎使用。同样,在研究正常线粒体结构和功能时,大多数麻痹剂也必须谨慎使用,因为大多数麻痹剂会减少神经肌肉接头处的信号传递,而肌肉功能性去神经支配足以诱导线粒体断裂。本研究中的实验采用物理加压法固定动物,但也有研究成功使用左旋咪唑42,尽管必须立即对动物进行成像。
最后,培养物中的各种细菌污染物,例如 B. subtilis, 可诱导线粒体断裂,因此在分析中必须包含适当的未经处理的对照组。对于外显率较高的效应,可使用较小的样本量来获得关于线粒体网络缺陷的显著定量数据。然而,由于线粒体网络中轻微缺陷较为常见,因此所需动物数量可能是评估肌节结构所需数量的两倍。当效应外显率较低时,选择在药物或RNAi处理后表现出明显运动缺陷的个体,可能有助于检测受处理影响最显著动物中的线粒体缺陷。但如前所述,处理对运动能力与亚细胞结构的影响程度并不一定一致。因此,可能需要在一个较大的群体中(例如150–200只动物)评估缺陷的广泛程度,同时分析受影响最严重个体中结构破坏的程度,并考察结构破坏程度与运动缺陷程度之间是否存在相关性。其他携带荧光标记线粒体的品系可用于验证在CB5600中获得的结果,但不同荧光蛋白的使用可能影响线粒体网络的基础状态。例如,使用TOMM-20与RFP的融合蛋白标记线粒体,相较于使用线粒体定位的GFP,似乎会导致基础状态下线粒体断裂程度增加。17虽然其他方法(如免疫荧光和电子显微镜)可用于评估线粒体结构,但它们无法实现 体内 由于需要固定步骤,因此无法用于线粒体动力学的评估。其他方法,例如使用线粒体定位染料,则无需固定,因此也可替代线粒体定位GFP的使用。如下一节所述,使用此类染料还可进行粗略的评估 体内 线粒体功能
评估线粒体功能 膜电位 体内 在 C. elegans
多种染料可用于线粒体标记28这些染料为在活细胞中观察线粒体网络结构提供了另一种方法 C. elegans许多这类染料还可用于粗略评估线粒体功能。 体内 因为它们会根据线粒体膜电位在线粒体内积累。在此,我们使用了 C32H32Cl2N2O 通过消化道被摄入,部分还因溶解于0.5% DMSO中而使角质层通透性增加,从而经角质层进入线虫体内。进入细胞后 C32H32Cl2N2O被线粒体氧化并螯合,在此过程中与含硫氨基酸结合(例如 甲硫氨酸和半胱氨酸)。这些染料-肽复合物的形成意味着 C32H32Cl2N2O保留在标记后的线粒体中28使用线粒体染料的一个关键难点在于,这些染料会标记动物体内所有的线粒体。因此,我们选择在CB5600品系中进行标记,该品系与前述用于评估肌肉线粒体网络结构的品系相同。通过使用红色线粒体染料、表达肌肉线粒体GFP的线虫品系以及三通道滤光片,可以相对简便地仅对肌肉中的线粒体进行成像——通过红色染料与GFP标记的线粒体重叠定位后呈现橙色的信号来识别肌肉线粒体。实施这种共定位方法中最困难的步骤是成像,因为染料在高强度荧光光源下数秒内即发生光漂白。这一问题可通过在准备成像前保持低强度荧光照明,并在成像时再相应调整荧光强度来减轻。当操作者熟练掌握染料使用后,另一种方法是采用共聚焦显微镜结合Z轴层扫技术,仅对目标组织中的线粒体进行成像;肌肉中的线粒体网络与其他组织相比具有明显区别。遗憾的是,C32H32Cl2N2O以离开线粒体28 意味着,与上述讨论的肌节和线粒体成像技术不同,除非C32H32Cl2N2在不同时间点向独立的动物群体中添加O。这一局限性可通过使用JC-10等染料来克服,因为当膜电位崩溃时,此类染料会从线粒体中释放出来43线粒体也可以从 秀丽隐杆线虫30 用于后续生化分析。该提取方法可通过流式细胞术或荧光酶标仪检测亲脂性阳离子染料的摄取速率,从而定量线粒体膜电位。44在确认线粒体膜电位受损后,还可利用灵敏的基于荧光素酶的生物发光法检测质子梯度的丧失是否导致ATP生成减少。45.
评估秀丽隐杆线虫(C. elegans)中的蛋白质降解
本研究中用于评估肌肉蛋白质降解的线虫品系为 PD55,该品系含有一种肌肉特异性的 β-半乳糖苷酶,这种酶在整个发育过程中持续合成,直至成虫期,随后在细胞质中保持稳定达 72–96 小时19。因此,在发育阶段测量 β-半乳糖苷酶水平主要反映干预措施对肌球蛋白启动子驱动的合成过程的影响,而在成虫期 β-半乳糖苷酶的减少则表明干预措施引发了细胞质蛋白质降解的增加19。评估 β-半乳糖苷酶活性的关键步骤是确保有效的干燥处理。若未能充分干燥样本,会导致 X-gal 底物供应不足,从而使得动物体壁肌肉中的蓝色着色较弱。为确保良好的干燥效果,应检查干燥器的密封性,并在干燥过程中每隔 5–10 分钟检查一次样本的干燥进度(即,20 µl 样本应在 10 分钟内完全干燥,剩余 20 分钟用于确保彻底干燥)。β-半乳糖苷酶检测属于酶活性检测,因此设置适当的对照至关重要。此外,处理组成虫的染色强度低于对照组,并不能直接证明降解正在发生;它仅表明处理导致了酶活性的降低。要确认蛋白质降解的发生,必须进行更为耗时的针对 β-半乳糖苷酶的蛋白质印迹(western blot)分析13,该方法可在已计数的小群体线虫中实现蛋白质降解的定量分析。Western blot 条带密度可使用 ImageJ46 进行量化。该方法的另一局限性在于,使用转基因蛋白无法揭示降解的生理学靶标;对于此类问题,需采用蛋白质组学分析和/或基于特定假设的靶向 western blot 分析13。最后,由于本研究所用转基因蛋白的合成在早期成虫阶段即已停止19,因此若需研究完全发育成熟的 C. elegans 肌肉中肌肉蛋白合成的变化,则必须采用其他方法,例如稳定同位素或放射性同位素标记技术。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了美国国立卫生研究院国家关节炎与肌肉骨骼和皮肤病研究所(AR-054342)向 NJS 提供的资助。CJG 获得了诺丁汉大学博士培训奖学金的资助。JJB 获得了英国医学研究理事会博士培训奖(J500495)的资助。资助方在研究设计、数据收集与分析、发表决定或稿件撰写过程中均未发挥任何作用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 线粒体红色荧光探针 CMXRos(C32H32Cl2N2O) | Invitrogen | M-7512 | 一种基于负膜电位积累的红色线粒体染料 |
| DMSO | Thermo Scientific | 67-63-5 | |
| KH2PO4 | Sigma | 7778-77-0 | |
| Na2HPO4 | BDH | 301584L | |
| NaCl | Sigma-Aldrich | 7647-14-5 | |
| MgSO4 | Sigma | M-7506 | |
| 显微镜载玻片 | Starfrost | K220 | |
| 显微镜盖玻片 | VW2 International | 631-0124 | |
| 1.5 ml Eppendorf 管 | Fisher Scientific | FB74031 | |
| 干燥器 | Nalgene | D2672 | |
| Nikon 显微镜 | Nikon | H600L | 配备专用软件的 Nikon H600L 显微镜 |
| Nikon 相机 | Nikon | DS-Fi1 | Nikon Digital Sight DS-Fi1 数码相机 |
| Zeiss 显微镜 | Zeiss | Ax10 | 配备 Axiocam MRC 数码相机、Axiovision LE 软件和三通道滤光片的 Zeiss AX10 显微镜 |
| 9 cm 培养皿 | Starstedt | 82-1473 | |
| 6 cm 培养皿 | Gosselin | BP53-01 | |
| 亚铁氰化钾 | Sigma-Aldrich | 14459-95-1 | |
| MgCl2 | Sigma-Aldrich | 7786-30-3 | |
| Na3PO4 | Sigma-Aldrich | 7601-54-9 | |
| 5-溴-4-氯-3-吲哚基-β-D-半乳糖吡喃苷 | Sigma-Aldrich | 7240-90-6 | |
| N,N-二甲基甲酰胺 | Sigma-Aldrich | 68-12-2 |
参考文献
- Wannamethee, S. G., Shaper, A. G., Lennon, L., Whincup, P. H. Decreased muscle mass and increased central adiposity are independently related to mortality in older men. The American Journal of Clinical Nutrition. 86, 1339-1346 (2007).
- Marquis, K., et al. Midthigh Muscle Cross-Sectional Area Is a Better Predictor of Mortality than Body Mass Index in Patients with Chronic Obstructive Pulmonary Disease. American Journal of Respiratory and Critical Care Medicine. 166, 809-813 (2002).
- Metter, E. J., Talbot, L. auraA., Schrager, M., Conwit, R. Skeletal Muscle Strength as a Predictor of All-Cause Mortality in Healthy Men. Journal of Gerontology: Biological Sciences. 57, 359-365 (2002).
- Hairi, N. N., et al. Loss of Muscle Strength, Mass (Sarcopenia), and Quality (Specific Force) and Its Relationship with Functional Limitation and Physical Disability: The Concord Health and Ageing in Men Project. JAGS. 58, 2055-2062 (2010).
- FitzGerald, S. J., et al. Muscular Fitness and All-Cause Mortality: Prospective Observations. Journal of Physical Activity and Health. 1, 7-18 (2004).
- Consortium, C. eS. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 282, 2012-2018 (1998).
- Timmons, L., Fire, A. Specific interference by ingested dsRNA. Nature. 395, 854-854 (1998).
- Sulston, J. E., Horvitz, H. R. Post-embryonic cell lineages of the nematode. Caenorhabditis elegans Dev Biol. 56, 110-156 (1977).
- White, J. The Anatomy. In The nematode C. elegans. Wood, W. B. , Cold Spring Harbor Laboratory. New York. (1988).
- Brenner, S. The genetics of Caenorhabditis elegans. Genetics. 77, 71-94 (1974).
- Moerman, D. G., Williams, B. D. Sarcomere assembly in C. elegans muscle. The C. elegans Research Community, WormBook. , (2006).
- Rual, J. F., et al. Toward improving Caenorhabditis elegans phenome mapping with an ORFeome-based RNAi library. Genome Res. 14, 2162-2168 (2004).
- Etheridge, T., et al. Calpains Mediate Integrin Attachment Complex Maintenance of Adult Muscle in Caenorhabditis elegans. PLoS Genet. 8, 1002471(2012).
- Shephard, F., Adenle, A. A., Jacobson, L. A., Szewczyk, N. J. Identification and Functional Clustering of Genes Regulating Muscle Protein Degradation from amongst the Known C. elegans Muscle Mutants. PLoS ONE. 6, e24686(2011).
- Lehmann, S., Bass, J. J., Szewczyk, N. J. Knockdown of the C. elegans Kinome identifies Kinases required for normal protein Homeostasis, Mitochondrial network structure, and Sarcomere structure in muscle. Cell Communication & Signaling. 11, (2013).
- Herndon, L. A., et al. Stochastic and genetic factors influence tissue-specific decline in ageing. C. elegans. Nature. 419, 808-814 (2002).
- Munoz-Lobato, F., et al. Protective role of DNJ-27/ERdj5 in Caenorhabditis elegans models of human neurodegenerative diseases. Antioxid Redox Signal. 5, 5(2013).
- Chalfie, M., Tu, Y., Euskirchen, G., Ward, W., Prasher, D. Green fluorescent protein as a marker for gene expression. Science. 263, 802-805 (1994).
- Zdinak, L. A., et al. Transgene-coded chimeric proteins as reporters of intracellular proteolysis: starvation-induced catabolism of a lacZ fusion protein in muscle cells of Caenorhabditis elegans. J Cell Biochem. 67, 143-153 (1997).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of Stable Transgenic C. elegans Using Microinjection. J Vis Exp. 18, e833(2008).
- Szewczyk, N. J., Peterson, B. K., Barmada, S. J., Parkinson, L. P., Jacobson, L. A. Opposed growth factor signals control protein degradation in muscles of Caenorhabditis elegans. The EMBO Journal. 26, 935-943 (2007).
- Stiernagle, T. The C. elegans Research Community, WormBook. , 1551-8507 (2006).
- Gaud, A., et al. Prednisone reduces muscle degeneration in dystrophin-deficient Caenorhabditis elegans. Neuromuscular Disorders. 14, 365-370 (2004).
- Dillin, A., et al. Rates of Behavior and Aging Specified by Mitochondrial Function During Development. Science. 298, 2398-2401 (2002).
- Bakeeva, L., Chentsov, Y., Skulachev, V. Mitochondrial framework (reticulum mitochondriale) in rat diaphragm muscle. Biochimica et Biophysica Acta. 501, 349-369 (1978).
- Ichishita, R., et al. An RNAi screen for mitochondrial proteins required to maintain the morphology of the organelle in Caenorhabditis elegans. J Biochem. 143, 449-454 (2008).
- Mitchell, P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature. 191, 144-148 (1961).
- Chazotte, B. Labeling mitochondria with MitoTracker dyes. Cold Spring Harb Protoc. 1, 990-992 (2011).
- Seo, A. Y., et al. New insights into the role of mitochondria in aging: mitochondrial dynamics and more. J Cell Sci. 123, 2533-2542 (2010).
- Brys, K., Castelein, N., Matthijssens, F., Vanfleteren, J. R., Braeckman, B. P. Disruption of insulin signalling preserves bioenergetic competence of mitochondria in ageing Caenorhabditis elegans. BMC Biol. 8, 1741-7007 (2010).
- Dorrens, J., Rennie, M. J. Effects of ageing and human whole body and muscle protein turnover. Scandinavian Journal of Medicine & Science in Sports. 13, 26-33 (2003).
- Rennie, M. J., et al. Depressed protein synthesis is the dominant characteristic of muscle wasting and cachexia. Clinical Physiology. 3, 387-398 (1983).
- Mitch, W. E., Goldberg, A. L. Mechanisms of muscle wasting. The role of the ubiquitin-proteasome pathway. N Engl J Med. 335, 1897-1905 (1996).
- Husson, S. J., Costa, W. S., Schmitt, C. The C. elegans Research Community, WormBook. , 1551-8507 (2012).
- Kawano, T., et al. An imbalancing act: gap junctions reduce the backward motor circuit activity to bias C. elegans for forward locomotion. Neuron. 72, 572-586 (2011).
- Fostel, J. L., Benner Coste, L., Jacobson, L. A. Degradation of transgene-coded and endogenous proteins in the muscles of Caenorhabditis elegans. Biochemical and Biophysical Research Communications. 312, 173-177 (2003).
- Meissner, B., et al. An integrated strategy to study muscle development and myofilament structure in Caenorhabditis elegans. PLoS Genet. 5, (2009).
- Rogalski, T. M., Gilbert, M. M., Devenport, D., Norman, K. R., Moerman, D. G. DIM-1, a novel immunoglobulin superfamily protein in Caenorhabditis elegans, is necessary for maintaining bodywall muscle integrity. Genetics. 163, 905-915 (2003).
- Gieseler, K., Grisoni, K., Segalat, L. Genetic suppression of phenotypes arising from mutations in dystrophin-related genes in Caenorhabditis elegans. Curr Biol. 10, 1092-1097 (2000).
- Wilson, K. J., Qadota, H., Benian, G. M. Immunofluorescent localization of proteins in Caenorhabditis elegans muscle. Methods Mol Biol. 798, 171-181 (2012).
- Chan, D. C. Mitochondrial Fusion and Fission in Mammals. Annual Review of Cell and Developmental Biology. 22, 79-99 (2006).
- Ray, A., Martinez, B. A., Berkowitz, L. A., Caldwell, G. A., Caldwell, K. A. Mitochondrial dysfunction, oxidative stress, and neurodegeneration elicited by a bacterial metabolite in a C. elegans Parkinson's model. Cell Death Dis. 9, 513(2014).
- Perry, S. W., Norman, J. P., Barbieri, J., Brown, E. B., Gelbard, H. A. Mitochondrial membrane potential probes and the proton gradient: a practical usage guide. Biotechniques. 50, 98-115 (2011).
- Scaduto, R. C., Grotyohann, L. W. Measurement of mitochondrial membrane potential using fluorescent rhodamine derivatives. Biophys J. 76, 469-477 (1999).
- Wibom, R., Hagenfeldt, L., von Döbeln, U. Measurement of ATP production and respiratory chain enzyme activities in mitochondria isolated from small muscle biopsy samples. Analytical Biochemistry. 311, 139-151 (2002).
- Gassmann, M., Grenacher, B., Rohde, B., Vogel, J. Quantifying Western blots: Pitfalls of densitometry. Electrophoresis. 30, 1845-1855 (2009).
重印与许可
