基于RNA干扰(RNAi)的基因敲低技术是赤拟谷盗(Tribolium)研究的核心。本文概述了我们在赤拟谷盗(Tribolium castaneum)中使用的幼虫期RNAi技术。幼虫期RNAi是一种简单而强大的技术,可快速获得基因功能缺失的表型,使研究人员能够在多种背景下研究基因功能。
方法文章
红面粉甲虫 Tribolium castaneum 中的幼虫RNA干扰
* These authors contributed equally
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
赤拟谷盗 赤拟谷盗 castaneum,为遗传学和发育研究提供了一系列实验工具,包括完全注释的基因组序列、基于转座子的转基因技术以及高效的RNA干扰(RNAi)技术。在这些优势中,基于RNAi的基因敲低技术处于核心地位 赤拟谷盗 研究 T. castaneum 表现出强烈的系统性RNAi反应,因此只需将双链RNA(dsRNA)注射到甲虫的体腔中,即可在任何生活阶段进行RNAi实验。
在本报告中,我们概述了我们的幼虫RNAi技术 T. castaneum包括(i)分离适当阶段的 T. castaneum 用于注射的幼虫,(ii)注射前的准备工作,以及(iii)dsRNA注射。幼虫RNAi是一种简单而强大的技术,可快速获得基因功能缺失表型,包括多个基因共沉默表型以及一系列低效等位基因(hypomorphic)表型。由于几乎所有 T. castaneum 组织对细胞外的dsRNA具有敏感性,幼虫RNAi技术使研究人员能够在多种背景下研究各种组织,包括生物体对外界环境反应的遗传基础。此外,该技术的简便性有助于吸引更多学生参与科研,从而促进 T. castaneum 适用于课堂教学的理想遗传学系统。
引言
赤拟谷盗(Tribolium castaneum)因其易于进行RNA干扰(RNAi)而在生物学多个领域日益受到关注1-3。基于RNAi的基因敲低技术使科学家能够在不使用复杂遗传方法的情况下开展功能缺失分析。T. castaneum表现出强烈的系统性RNAi反应,因此只需将双链RNA(dsRNA)注射到甲虫的体腔中,即可在任何发育阶段实施RNAi4-6。通过同时注射两种或多种不同的dsRNA分子,还可实现在T. castaneum中对多个基因的同步敲低7,8。此外,通过降低注射dsRNA的浓度,还可产生一系列低效表型(hypomorphic phenotypes)8。这些特性使得基于RNAi的反向遗传学技术成为在T. castaneum中替代传统正向遗传学的有力工具。由于几乎所有的T. castaneum组织均对细胞外dsRNA分子敏感9,该技术使研究人员能够在多种背景下研究广泛的组织类型。此外,尽管本报告重点介绍在T. castaneum中进行RNAi的操作,但文中描述的许多步骤同样适用于其他昆虫。因此,本实验方案不仅适用于希望在T. castaneum中特定研究背景下开展功能缺失分析的研究人员,也适用于拟将RNAi技术应用于其他昆虫的研究者。
向幼虫注射dsRNA可在多种甲虫生活阶段(包括幼虫期、蛹期和成虫期)进行功能分析4,5,10。我们此前已报道了完整的幼虫RNAi实验流程,包括分子生物学操作步骤11。在本报告中,我们重点描述dsRNA注射操作,该过程通过可视化辅助手段更易于理解。我们提供了详细的分步注射流程,并展示了成功与失败的注射示例。本可视化方案补充了我们之前的实验流程,两者结合可更全面地展现赤拟谷盗(T. castaneum)幼虫RNAi的完整操作。此外,我们还讨论了影响RNAi效果的dsRNA分子参数、基于RNAi的检测方法在生理学研究中的应用,以及幼虫RNAi方案在教学实验室中的适用性。
方案
1. T. castaneum 品系与培养
- 确定实验所用的 T. castaneum 品系。
注意:目前已有多种实验室建立的 T. castaneum 品系可供选择。Ga-1(Georgia-1)是用于基因组测序的 Ga-2 品系的亲本品系3。由于 Ga-1 与 Ga-2 共享大多数DNA多态性(例如单核苷酸多态性,SNPs),且因近交程度较低而比 Ga-2 更健康,因此非常适合用于RNAi实验。pu-11 是另一个方便使用的品系,因其在未来翅原基中具有独特的增强型黄色荧光蛋白(EYFP)表达,使我们能够区分末龄幼虫与其他龄期的幼虫(见 Clark-Hachtel 等. 201312 的 图S4)。记录实验中所用甲虫品系非常重要,因为遗传背景似乎会显著影响RNAi表型13。 - 通过向有机全麦面粉中添加5%(按重量计)预先过筛的酿酒酵母来制备 T. castaneum 培养用面粉(混合后将培养面粉储存在−20 °C)。将培养面粉(恢复至室温)分装至6盎司的塑料 Drosophila 培养瓶中(每瓶约40 g)。
- 在30 °C、70%湿度条件下培养 T. castaneum。如有可能,使用可控制湿度的培养箱。每瓶培养瓶中加入30–40只成虫(雌雄比例1:1)以启动培养。
注意:尽管在30 °C时霉菌问题很少出现,但在70%湿度下较低温度(例如25 °C)可能导致培养面粉中出现霉菌生长。若发生此情况,应降低湿度。 - 每隔两周将成虫转移至新的培养瓶中进行继代培养(参见步骤5.2–5.5了解如何从培养面粉中分离成虫)。
注意:获得末龄幼虫大约需要三周时间。或者,也可在较低温度(20–25 °C)下维持 T. castaneum 培养,但培养周期更长(在25 °C下的发育时间约为30 °C时的两倍)。
2. 幼虫dsRNA注射用溶液与仪器的准备
- 通过合成与目标基因同源的dsRNA分子 体外 转录。于 -80 °C 保存。参见 Philip 和 Tomoyasu 201111 有关详细的分子生物学实验步骤,另请参见设计双链RNA分子时需考虑的若干参数的讨论部分。
- 配制 10 ml 0.1 M 磷酸钠缓冲液(25 °C 时 pH 7.6),通过混合 8.5 ml 1 M Na2HPO4 1.5 ml 1 M NaH2PO4使用pH计检测pH值,并相应调整。
- 配制1 ml 10倍浓缩液 注射缓冲液的配制:将10 μl 0.1 M磷酸钠缓冲液(25 °C时pH 7.6)、100 μl 0.5 M KCl、100 μl绿色食用染料和790 μl双蒸水(ddH₂O)混合2O)。将10倍浓缩液稀释 注射缓冲液以配制成2倍浓度 注射缓冲液(200 μl 10x) 注射缓冲液 + 800 μl ddH₂O2O)。将两者均储存于10倍体积中 和 2x 4 °C下保存注射缓冲液,直至需要时使用。
- 制备黏性载玻片。
- 在载玻片上涂覆一层可重复定位的胶水,用于幼虫注射。对于成虫或蛹的注射,则沿载玻片的两条长边各涂抹一条细胶带。
- 让胶水干燥数天,以确保其仍具有足够的黏性将甲虫粘附在载玻片上,同时保持足够的柔韧性,便于注射后将其移除。
注意:如果胶水仍然过于黏手,可用手指轻拍胶面以降低其黏性。每张载玻片最多可固定40至50只甲虫,且可重复使用,直至无法牢固固定昆虫为止。 alternatively,也可使用双面胶,但有时其黏性不足以固定幼虫。
- 制作乙醚麻醉笼
- 从一支10 ml一次性注射器中取出活塞,并在6 ml刻度线附近将注射器切成两半。
- 丢弃注射器的下半部分。用燃气 burner 短暂加热注射器上半部分的切割面,迅速将熔化的塑料压在一片尼龙网上,使尼龙网粘附在注射器上。待塑料硬化后,剪去多余的尼龙网。
- 准备乙醚瓶。将30 ml乙醚加入一个窄口的100或250 ml玻璃瓶中。加入数片滤纸以促进乙醚蒸发。
注意:乙醚具有火灾危险性,且对人体有害。务必在通风橱中操作乙醚。不使用时应 tightly 盖紧瓶盖。
注意:冰可以作为更安全的替代方法(例如在课堂环境中使用),但其麻醉效果较差。
3. 幼虫注射装置的制备
- 将一个 X-Y 机械载物台放置在解剖显微镜上。
注意:X-Y 机械载物台可从主要显微镜公司购买。此外,也可使用价格较低的显微镜载物台,通过一些改装适用于大多数解剖显微镜(参见材料表中的示例)。 - 将一个机械针具操作器放置在 X-Y 机械载物台附近。
- 组装注射用注射器。使用一个带鲁尔接头的四通旋塞阀将一个 30 ml 一次性注射器连接至玻璃针夹持器,从而可在不改变注射针内压力的情况下操作注射器(有关注射器组装的详细信息,请参见 Philip 和 Tomoyasu 201111)。
4. 拉制注射针头
- 使用拉针仪拉制硼硅酸盐玻璃毛细管(B100-50-15,外径:1 mm,内径:0.5 mm,长度:15 cm)。
注意:对于 Sutter P-87 或 P-97,使用参数设置“Heat = 770,Pull = 45,Vel = 75,Time = 90”,或参照《移液管烹饪书:贴壁细胞》第2章。 秀丽隐杆线虫, 果蝇, & 斑马鱼– 推荐程序。最佳设置因针头拉制仪的型号而异。通用型号的设置参数 黑腹果蝇 注射针是一个良好的起点。 - 将拉制好的针头存放在塑料盒中(例如, 一个塑料CD盒)并用可移除的固定橡皮泥固定。
5. 幼虫的分离与筛选
- 将25号筛置于筛接收器上。
- 将培养瓶中的内容物(甲虫和培养面粉)倒入筛子中,并立即进行筛分。切勿将内容物长时间留在筛子上而不筛分,因为幼虫会迅速试图钻过筛孔并被卡住。用力筛分,使面粉通过筛孔落下,留下较老的幼虫(通常为6龄以上)。th 和 7th 龄幼虫)、蛹和成虫(及其蜕下的外骨骼,即蜕皮)留在筛子表面。
- 将筛子上残留的材料(象甲和蜕皮)转移至种子盘中。轻轻敲击培养皿,防止象甲逃逸。
- 轻轻吹动种子盘,去除甲虫表面残留的蜕皮和面粉颗粒。
- 轻敲接种盘,使内容物移至盘底。随后,静置接种盘数秒,不进行敲击。等待成虫从堆集中爬出,因成虫比其他发育阶段更活跃。使用美术画笔去除成虫。例如, 1 cm 宽度。
- 轻轻敲击接虫盘,同时使盘口略微朝下,将蛹分离出来,因为蛹容易向盘口方向快速滚动。用毛笔将蛹移除,仅留下幼虫在接虫盘中。
- 将分离的幼虫置于干净的培养皿中。选择适合注射的幼虫阶段,并将其放入另一培养皿中。
注意:在分析RNAi对成体形态及变态过程的影响时,通常可选用末龄幼虫早期(末次蜕皮后1-2天)的个体。然而,若需评估基因的早期功能,则有时需在倒数第二龄(或更早阶段)进行RNAi处理。例如, 图3E-3H。另请参见 Clark-Hachtel 等 201312)。使用蛹作为大小参考来确定幼虫的龄期。末龄幼虫略长于蛹。或者, pu-11 可用于鉴定末龄幼虫,并确定末龄幼虫发育的时间进程(图 S4 克拉克-哈克特尔的 等 201312). - 将选中的幼虫保留在培养皿中直至进行乙醚麻醉处理。将剩余的幼虫及其他发育阶段的甲虫(如蛹和成虫)放回含有面粉的培养瓶中,并放回培养箱。
6. 注射针头的制备
- 使用粘性橡皮泥或双面胶将先前拉制好的玻璃针固定在玻璃载玻片上。用镊子夹住拉制端,在解剖显微镜下观察针尖弯曲的位置。用镊子夹住针弯曲处靠近针尖一侧的部位,扭转以折断针尖。
- 保留合格的针,丢弃不合格的针。合格的针应具有既不太大也不太小的开口(直径约0.05 mm,图1A 和1B),且针尖有一定角度,便于穿透幼虫表皮(图1B和 2A-2B)。不合格的针包括:(i) 开口过小,导致难以吸入dsRNA溶液(步骤7)(图1D和 2D);(ii) 开口过大,注射时易造成幼虫损伤甚至致死(图1C和 2F);(iii) 针尖钝,难以穿透表皮且易造成损伤。
- 将针插入针夹持器中。
- 首先,拧下针夹持器的尖端,将玻璃针的尾端插入夹持器尖端内。然后将橡胶垫圈置于夹持器尖端下方(距离玻璃针尾端至少1 cm)。
- 将针的尾部连同已放置的橡胶垫圈一起插入夹持器中,确保垫圈完全进入夹持器开口内。再将尖端重新拧紧到夹持器上。
- 将组装好的针夹持器安装到针操纵器上。保持夹持器接近水平位置。调节操纵器的位置,使在显微镜下观察时,针尖位于视野中央。
7. 将dsRNA溶液预装入针头
- 在注射前,用ddH2O调节dsRNA浓度,并将dsRNA溶液与等体积的2倍注射缓冲液(步骤2.3)混合,配制dsRNA注射液。混合后将溶液置于冰上。有关dsRNA浓度的讨论,请参见正文。
- 剪去一个20 μl一次性移液枪头的尖端。吸取10 μl上述溶液至剪短的枪头中。从移液器上取下枪头时,通过施加反向压力使液体保留在枪头末端。或者,小心取下枪头后,用手指轻压枪头后部,使溶液移至枪头尖端。
- 使用黏性胶固定装有dsRNA溶液的枪头,将其放置在显微镜载物台上,枪头开口朝向注射针尖端。
- 在显微镜下观察,缓慢移动装有溶液的枪头靠近注射针,直至针尖刚好进入枪头内部并接触溶液。
- 在显微镜下观察,轻轻回拉注射器活塞,缓慢将dsRNA溶液吸入针内。
注意:切勿过度填充针管。当dsRNA溶液前端接近针尖时,应减慢回拉速度,并在溶液前端到达空气之前停止上样。若空气进入针尖,溶液将迅速被吸入针座,导致严重污染问题。针座的详细清洗步骤见Philip和Tomoyasu 201111。 - 打开旋塞,释放注射器和针座内的压力。随后将移液枪头移离针尖。将针头抬离载物台,以避免在放置幼虫时意外损坏针头。从载物台上取下已排空的移液枪头。
8. 双链RNA注射
- 将幼虫放入乙醚麻醉篮中。初学该技术时,使用少于10只幼虫;熟练掌握后,每次可处理30–40只幼虫。
- 将装有幼虫的篮子放入乙醚瓶中,并盖紧瓶盖。
注意:乙醚具有易燃性,且对人体有害。此步骤应在通风橱中进行。 - 乙醚麻醉约3分钟。3分钟后检查幼虫是否仍有活动。若仍有活动,将其放回乙醚瓶中继续麻醉30秒。总麻醉时间不得超过5分钟,以免增加死亡率。
注意:最佳麻醉时间可能因温度和湿度而异。 - 将麻醉后的幼虫从篮子转移至玻璃粘性载片的非粘附边缘。在显微镜下用镊子逐个夹取幼虫并放置于载片上。将幼虫侧向摆放,并用镊子从头部至尾部轻轻敲击其身体,同时略微拉伸,以确保其牢固固定在载片上。
- 将带有幼虫的粘性载片置于显微镜载物台上。
- 将装载dsRNA的针头轻柔地插入幼虫背侧,以避免损伤中枢神经系统。同时应避开背中线,因为幼虫心脏位于此处。在此及后续步骤中,始终通过移动载物台来使幼虫接近针头(而非使用针头操纵器移动针头)。
注意:T. castaneum 中的RNA干扰具有系统性,因此具体注射位点并不关键。但通常最方便的注射部位是胸部或腹部体节的背侧。 - 将针头插入幼虫体内后,轻微回撤针头,为dsRNA进入幼虫体腔留出空间。
- 轻推注射器,直至幼虫身体变为绿色(或呈现注射缓冲液的颜色),并显得膨胀饱满。
注意:初学该技术时,可尝试尽可能多地注射,以确定在不引起显著死亡率的前提下可注入幼虫体内的液体量。通常约为0.5–0.7 μl。 - 将针头从幼虫体内退出。在退出针头的同时,轻微回拉注射器活塞,以防止dsRNA外漏(同时注意避免吸入空气)。
- 完成载片上所有幼虫的注射。确保移除未成功注射的个体。在幼虫苏醒前(约10分钟内)完成全部注射操作。
- 将注射完毕的载片从显微镜上取下,静置5分钟,直至所有幼虫完全恢复乙醚麻醉状态。
- 在解剖显微镜下使用镊子,从头部至尾部轻轻提起幼虫,使其脱离粘性载片。将释放后的幼虫转移至洁净的培养皿中。在培养皿中静置10–15分钟,使注射伤口凝结。
- 将幼虫转移至装有洁净面粉的新培养瓶中,并做好标记,包括品系名称、注射的dsRNA类型、dsRNA浓度、注射幼虫数量以及日期。
- 将注射后的幼虫置于30 °C、70%湿度条件下培养。定期观察幼虫的RNAi表型。
注意:末龄幼虫通常在7天内化蛹。若无RNAi导致的发育异常,蛹将在约7天后羽化为成虫。
9. 沉默效果的验证与表型分析
- 可采用多种分子生物学技术评估RNAi敲降效率,例如定量反转录PCR(qRT-PCR)和蛋白质印迹(Western Blotting)。有关详细的qPCR和Western Blot实验方案,请参见Miller et al. 20127 和 Philip与Tomoyasu 201111 的研究。
- 分析与RNAi相关的表型。
注意:与RNAi相关的表型可能在不同发育阶段和不同培养条件下出现,具体取决于靶向的基因。RNAi可能影响甲虫的形态、变态过程、生理功能及行为。观察表型出现的频率以及甲虫的饲养条件应根据通过RNAi所研究的具体科学问题进行优化设计。
结果
成功注射的关键步骤之一是制备一支良好的针头。如步骤6所述,在对赤拟谷盗(T. castaneum)进行注射前,需要将针头尖端折断。良好的与不良的针头示例如图1所示。一支良好的针头应具有锋利且坚硬的尖端,开口直径约为0.05 mm(图1B)。
图2展示了一次成功的注射(图2A 和 图2B),以及若干次失败注射的示例(图2C–2F)。使用尺寸合适的注射针时,针尖可轻松穿透幼虫表皮,阻力极小(图2A),且dsRNA溶液(绿色)可无泄漏地注入幼虫体内(图2B)。切勿过度注射,否则即使使用尺寸合适的注射针,也会导致dsRNA溶液溢出(图2C)。若针尖过细,常无法穿透幼虫表皮并发生弯曲,从而难以完成注射(图2D)。若发生此情况,修剪针尖有时可改善。较粗的针头通常仍可使用,但在穿透幼虫表皮时可能存在一定困难(图2E)。然而,即使对注射器施加轻微压力,大量dsRNA溶液也容易从针头中被推出,常导致溶液溢出(图2F)。
进行RNAi实验时,应设置阳性对照以评估RNAi是否正常发挥作用,同时设置阴性对照以确认所观察到的效应并非由dsRNA的非特异性效应或注射操作本身(如注射造成的机械损伤或乙醚麻醉引起的异常)所导致。注射靶向特定基因的dsRNA EYFP 可作为使用该方法时的良好阳性对照 pu-11 菌株5,7。当 EYFP 在末期幼虫阶段注射dsRNA后,可在注射后一天内观察到未来翅原基中EYFP信号显著减少图3A)。EYFP dsRNA 注射两天后,EYFP 的表达完全被敲低图3B)且这种基因沉默持续至蛹期(图3C 和 3D)以及在整个甲虫生命周期中,只要dsRNA浓度足够高(例如 1 μg/μl)7. EYFP dsRNA 也可用作阴性对照,因其为非内源性基因序列,不应引起形态学或生理学上的干扰(图3A-3D).
我们提供了vestigial(vg)基因在幼虫期进行RNA干扰(RNAi)的图像,作为该基于注射的RNAi技术在赤拟谷盗(T. castaneum)中高效性的另一个例证12。当将针对vg的双链RNA(dsRNA)注射到倒数第二龄幼虫(末龄幼虫前一个阶段)时,在蛹期即可观察到翅结构完全缺失(图3E 和 图3F)。所发育成的成虫也完全缺乏翅结构(图3G 和 图3H)。vg基因的RNAi结果体现了RNAi在T. castaneum中具有高度稳定性和系统性效应的特点。
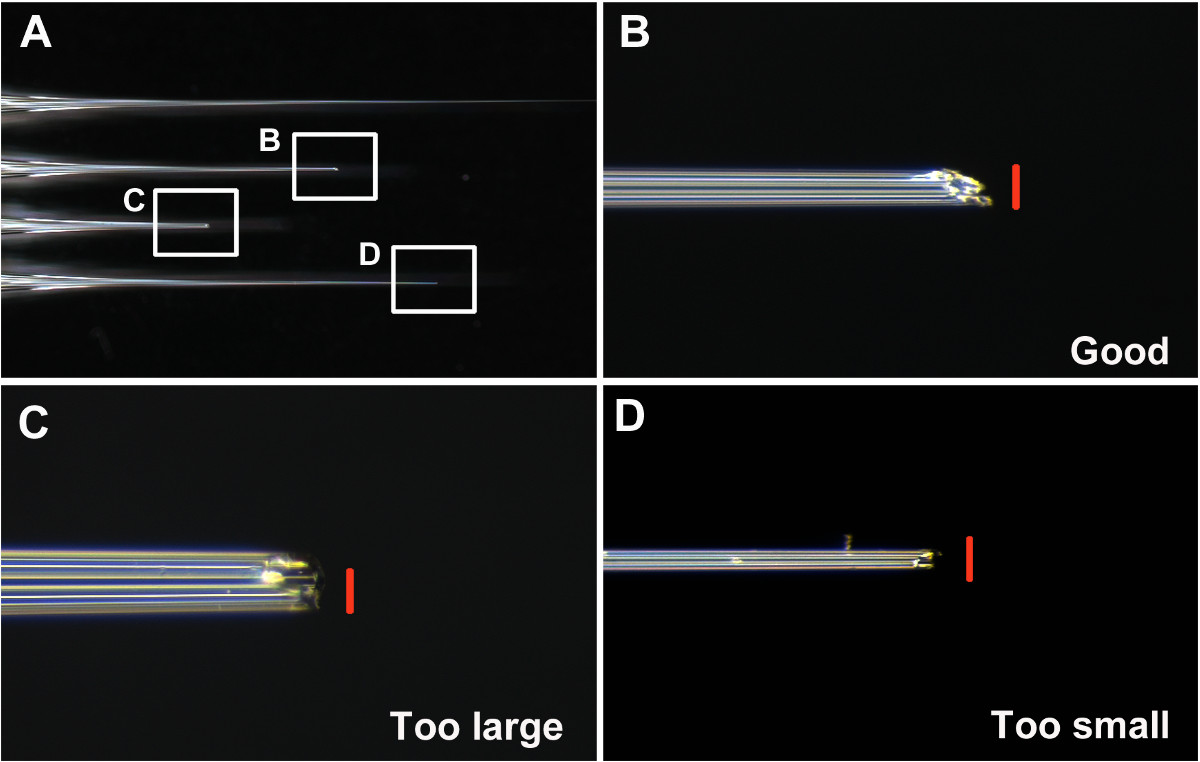
图1: (A) 未断裂、良好及不良针尖的示例。(B) 断裂良好针尖的尖端。(C) 断裂后过大且钝化的针尖。(D) 断裂后过细的针尖。标尺(红色)为 0.05 mm。请点击此处查看该图的放大版本。
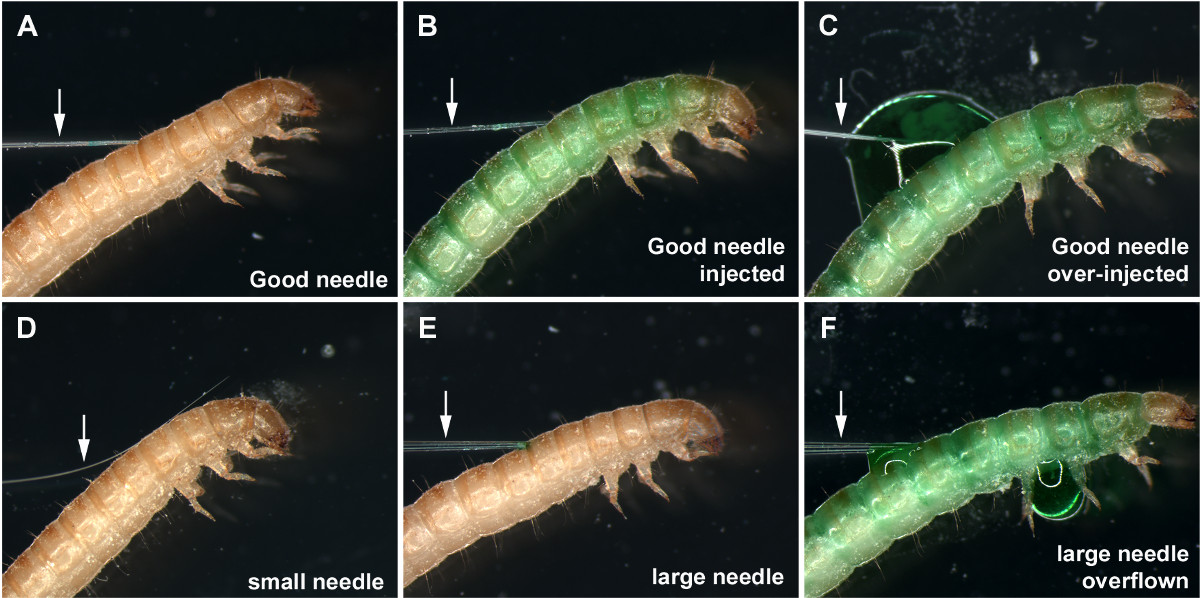
图 2: (A) 一根尺寸合适的注射针插入末龄幼虫体内。(B) 幼虫被正确注射了绿色的 dsRNA 溶液。(C) 因注射过量导致 dsRNA 溶液在注射部位溢出。(D) 过细的针头无法穿透幼虫的表皮。(E) 一根较粗的注射针插入末龄幼虫体内。(F) 使用粗针头注射后,幼虫出现 dsRNA 溶液溢出和泄漏现象。箭头指示针头位置。请点击此处查看该图的放大版本。
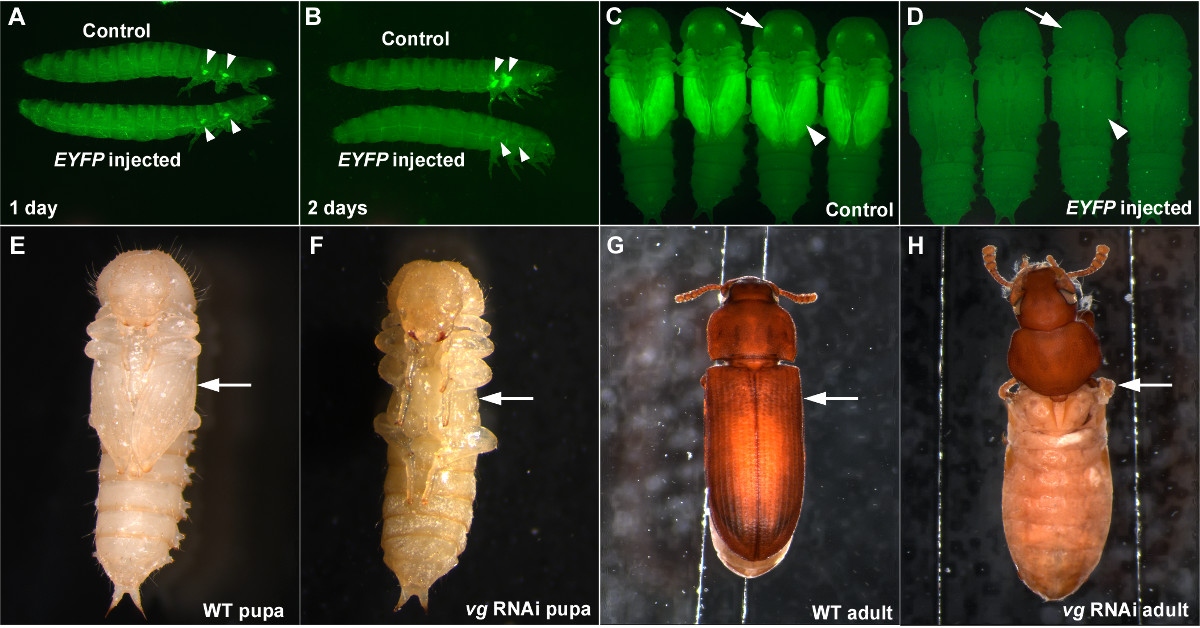
图3: 赤拟谷盗(T. castaneum)中成功实现RNA干扰的示例。 (A-D) 最后一龄幼虫期注射EYFP dsRNA导致EYFP表达水平下降。(A) 注射后一天的幼虫。(B) 注射后两天的幼虫。(C) 对照组蛹。(D) 由幼虫期注射EYFP dsRNA所得的蛹。阴性对照为缓冲液注射(A, B)和dsRed dsRNA注射(C, D)。箭头和箭指示分别在翅原基和眼中的EYFP表达或表达缺失。(E-H) 倒数第二龄幼虫期针对vg基因的RNA干扰实验。(E) 野生型蛹。(F) vg RNAi处理的蛹。翅结构的缺失在蛹期已可观察到(箭头)。(G) 野生型成虫。(H) vg RNAi处理的成虫。与翅相关的结构完全缺失(箭头)。请点击此处查看该图的放大版本。
讨论
要确保RNAi实验成功,需考虑若干重要问题,包括dsRNA分子的长度和浓度、不同dsRNA分子之间的竞争(在尝试多重基因沉默时),以及脱靶效应(OTE)的可能性。
dsRNA 长度
双链RNA(dsRNA)分子的长度会影响系统性RNA干扰(RNAi)反应的效率,较长的dsRNA在触发RNAi方面效率更高7,14,15(但目前尚不清楚dsRNA长度的上限)。在赤拟谷盗(T. castaneum)中,诱导有效RNAi的dsRNA长度需超过50 bp7。长度在150 bp至500 bp之间的dsRNA似乎最适合用于RNAi实验。尽管更长的dsRNA分子也可使用,但其脱靶效应(OTE)的发生概率会增加,且基因克隆步骤将变得更加困难。
dsRNA 浓度
根据dsRNA的浓度不同,可实现不同程度的基因敲低。1 μg/μl 是一个合理的起始浓度,通常可产生接近无效表型的效果(具体效果可能因目标基因而异)。RNAi实验可使用更高浓度的dsRNA进行例如, 7-8 μg/μl)以获得更强的RNAi表型。对dsRNA进行系列稀释进行RNAi有时有助于产生一系列低效表型(参见Tomoyasu的补充数据) 等 20098,以及 Borràs-Castells 未发表的数据)。
RNAi 竞争实验
通过同时注射多种不同的dsRNA分子,可在T. castaneum中实现多个基因的敲低。然而,已知当生物体内存在多种不同的dsRNA分子时,这些dsRNA常会因竞争结合RNAi组分而相互干扰7,14。在进行多基因敲低时,使用相同长度和相同浓度的dsRNA至关重要,以避免某一种dsRNA对其他dsRNA产生竞争优势(尽管当靶基因的表达水平差异较大时,可能需要对dsRNA的长度和浓度进行进一步调整)。我们及其他研究团队已成功实现双基因和三基因敲低(例如, Tomoyasu et al. 200516, Tomoyasu et al. 200917, 以及 Yang et al. 200918)。尽管四重RNAi(或更高重)在技术上可行,但可能具有挑战性,因其很可能导致所有四个靶基因的RNAi效率显著下降。
脱靶效应
脱靶效应(OTE)是基于RNAi方法的固有问题。为尽量减少脱靶效应,可识别靶基因中与其他基因序列相似的区域,并在设计dsRNA时避开这些区域。一种简单的方法是对 T. castaneum 预测的基因集可识别此类区域。此外,多个在线工具也支持对潜在的OTE进行评估。例如, E-RNAi19对目的基因的两个非重叠区域进行RNAi是消除观察到的表型由脱靶效应(OTE)引起的可能性的一种简单且高效的方法。如果针对两个非重叠区域的RNAi产生相同的表型,则OTE的可能性被降至最低(除非这两个非重叠区域具有相似的序列)。
除了表型分析之外,采用其他方法评估基因敲低效果对于有效呈现RNAi相关数据通常至关重要。评估基因敲低的两种主要方法是qRT-PCR和蛋白质印迹(western blot)分析。qRT-PCR是一种便捷的检测目标mRNA水平的方法,已被广泛应用于许多RNAi相关研究中,包括在T. castaneum中的研究(例如参见Miller et al. 20127)。然而需谨慎对待,因为我们最近观察到一些案例中,RNAi反而导致目标mRNA水平上调(尽管其蛋白质产物被下调)(Borràs-Castells未发表数据)。目前尚不清楚这种由RNAi诱导的mRNA上调现象是普遍存在的,还是仅限于某些特定基因。蛋白质印迹分析是另一种确认基因敲低效果的方法。该方法可靠性较高,因为它直接检测最终蛋白质产物的含量。但该方法的局限性在于需要针对目标基因蛋白质产物的特异性抗体。在表型分析的基础上,结合多种独立的检测手段,将显著提高基于RNAi分析所得表型数据的可信度。
自从在赤拟谷盗(T. castaneum)中建立以来,RNAi 主要被用于研究基因在发育和模式形成中的功能。这些针对赤拟谷盗(T. castaneum)的发育生物学研究在揭示基因的进化保守性与分化功能方面取得了巨大成功(参见 Denell 20081 和 Klingler 20042 的综述)。然而,基于 RNAi 的研究在赤拟谷盗(T. castaneum)中并不仅限于发育生物学领域。例如,RNAi 可用于研究基因在多种生理和行为反应中的功能,包括应激耐受、捕食行为、攻击性、配偶选择、活动节律以及防御机制等。
在这些情境中应用RNAi的一个难点是可能出现多效性效应。通常,目的基因在整个生物过程中具有多种功能 T. castaneum 生活周期,从而使得在不产生意外表型效应的情况下移除基因变得困难。然而,能够在多种发育阶段便捷地实施RNAi,通常是一种有效策略,可用于避免这些多效性效应。例如,在成虫而非幼虫或蛹阶段进行RNAi,可能使我们绕开因早期发育过程中基因敲低所导致的意外致死效应。RNAi反应的灵活性在于 T. castaneum 因此,该模型成为将RNAi技术应用于生理和行为反应中基因功能研究实验的理想选择。
T. castaneum 系统也非常适合用于教学实验室。T. castaneum 可在室温(25 °C)下利用面粉/酵母混合物进行简单培养,无需频繁传代,且在 T. castaneum 中实施 RNAi 技术操作简便,可适用于配备年轻学习型科研人员的实验室。由于 RNAi 已成为多种生物学领域中必不可少的技术,让学生尽早接触该技术至关重要。T. castaneum 中幼虫 RNAi 技术的简便性也鼓励更多学生参与科研工作,使 T. castaneum 成为适用于课堂教学的遗传学系统的理想候选。
披露
作者无任何利益冲突需要披露。
致谢
感谢迈阿密大学生物信息学与功能基因组学中心(CBFG)提供的技术支持。本研究得到了迈阿密大学启动基金(YT)以及美国国家科学基金会(YT:IOS 0950964)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 有机全麦面粉 | Heartland Mill Inc. 堪萨斯州 | G1 | |
| 布鲁尔’酵母 | MP Biomedicals | 2903312 | 使用前用35号不锈钢筛网过筛酵母。由于过筛后的酵母为细颗粒物,具有吸入性危害,操作时应佩戴防护口罩,并用塑料膜覆盖筛网。 |
| 6 oz 塑料 果蝇 储备瓶 | Fisher Scientific | 11-888 | |
| 筛子 | Fisher Scientific | 04-881N | 直径 8 英寸 × 深 2 英寸。使用 #25 筛(标称孔径 710) µ幼虫、蛹和成虫的体长(m)。 |
| 筛子 | Fisher Scientific | 04 881 10P | 8 英寸直径 #35(标称筛孔:600 µm) 不锈钢筛网,8 英寸直径 × 2 英寸深。该筛网适用于去除酵母粉中的结块。 |
| 筛分接收器 | Fisher Scientific | 04-866B | 8 英寸直径 |
| 1.5 夸脱带嘴样品盘 | Seedburo Equipment Co. | 模型 33 | 收集盘 |
| 培养箱 | BioCold 环境公司 | BC26-IN | 保持30 °C,相对湿度70%。 |
| Na2HPO4 | Fisher Scientific | S374500 | |
| NaH2PO4 | Fisher Scientific | S397-500 | |
| KCl | Fisher Scientific | P217-500 | |
| 食用色素 | 克罗格 | 绿色、蓝色或红色为佳 | |
| 显微镜载玻片 | Fisher Scientific | 22-038-103 | |
| Tack-It Over&和超过 | Aleene's | 可重复定位的粘性胶用于粘附载玻片。双面胶带可作为替代品,但我们发现其粘性存在差异。 | |
| 塑料CD盒 | 亚马逊 | ||
| 硼硅酸盐玻璃毛细管 | Sutter Instrument | BF100-50-15 | 外径1 mm,内径0.5 mm,长15 cm,无纤维丝 |
| 针头拉拔器 | Sutter Instrument | P-87 或 P-97 | |
| 可移除的固定胶泥 | Loctite Fun-Tak | ||
| 压缩气体除尘器 | OfficeMax | OM96091 | |
| 镊子 | 精细科学工具 | 11231-30 | Dumoxel #3(用于操控甲虫) |
| 镊子 | 精细科学工具 | 11252-20 | INOX #5(用于折断针尖) |
| 乙醚,无水 | Fisher Scientific | E138-500 | |
| 尼龙网 | Flystuff/Genessee Scientific | 57-102 | 120 µm 孔径/49% 开放面积 |
| 100 ml 培养瓶 | VWR | 89000-926 | |
| 体视显微镜 | Zeiss | SteREO Discovery V12。注射显微镜。 | |
| 体视显微镜 | Fisher/Zeiss | 12-070-513 | Stemi2000。用于折断针头并将幼虫置于粘性载玻片上。 |
| X-Y机械载物台 | Zeiss | 4354600000000000 | |
| X-Y机械载物台 | 显微镜网.com | A512 | 低成本替代方案 |
| 操作臂 | Narishige | M-152 | |
| 磁力架 | Narishige | GJ-1 | |
| 玻璃毛细管夹持器 | Narishige | IM-H1 | |
| 30 ml 一次性注射器 | BD 注射器 | 309650 | BD鲁尔锁头尖端 |
| 四通旋塞阀 | Cole-Parmer 仪器公司 | EW-30600-03 | 带鲁尔接头的三通阀;4通;公端滑动式 |
| 艺术画笔 | 亚马逊 | Art Advantage 油画和丙烯画笔套装,24 件装 | 任何普通的油漆刷均可使用。 |
参考文献
- Denell, R. Establishment of Tribolium as a genetic model system and its early contributions to evo-devo. Genetics. 180, 1779-1786 (2008).
- Klingler, M. Tribolium. Curr Biol. 14, R639-R640 (2004).
- Richards, S., et al. The genome of the model beetle and pest Tribolium castaneum. Nature. 452, 949-955 (2008).
- Bucher, G., Scholten, J., Klingler, M. Parental RNAi in Tribolium (Coleoptera). Curr Biol. 12, 85-86 (2002).
- Tomoyasu, Y., Denell, R. E. Larval RNAi in Tribolium (Coleoptera) for analyzing adult development. Dev Genes Evol. 214, 575-578 (2004).
- Tomoyasu, Y., et al. Exploring systemic RNA interference in insects a genome-wide survey for RNAi genes in Tribolium. Genome biology. 9, R10(2008).
- Miller, S. C., Miyata, K., Brown, S. J., Tomoyasu, Y. Dissecting systemic RNA interference in the red flour beetle Tribolium castaneum parameters affecting the efficiency of RNAi. PLoS ONE. 7, e47431(2012).
- Tomoyasu, Y., Arakane, Y., Kramer, K. J., Denell, R. E. Repeated co-options of exoskeleton formation during wing-to-elytron evolution in beetles. Curr Biol. 19, 2057-2065 (2009).
- Miller, S. C., Brown, S. J., Tomoyasu, Y. Larval RNAi in Drosophila. Dev Genes Evol. 218, 505-510 (2008).
- Brown, S. J., Mahaffey, J. P., Lorenzen, M. D., Denell, R. E., Mahaffey, J. W. Using RNAi to investigate orthologous homeotic gene function during development of distantly related insects. Evolutio., & development. 1, 11-15 (1999).
- Philip, B. N., Tomoyasu, Y. Gene knockdown analysis by double-stranded RNA injection. Methods Mol Biol. 772, 471-497 (2011).
- Clark-Hachtel, C. M., Linz, D. M., Tomoyasu, Y. Insights into insect wing origin provided by functional analysis of vestigial in the red flour beetle. Tribolium castaneum, Proceedings of the National Academy of Sciences of the United States of America. 110, 16951-16956 (2013).
- Kitzmann, P., Schwirz, J., Schmitt-Engel, C., Bucher, G. RNAi phenotypes are influenced by the genetic background of the injected strain. BMC genomics. 14, 5(2013).
- Parrish, S., Fleenor, J., Xu, S., Mello, C., Fire, A. Functional anatomy of a dsRNA trigger differential requirement for the two trigger strands in RNA interference. Molecular cell. 6, 1077-1087 (2000).
- Winston, W. M., Molodowitch, C., Hunter, C. P. Systemic RNAi in C elegans requires the putative transmembrane protein SID-1. 295, Science. New York, NY. 2456-2459 (2002).
- Tomoyasu, Y., Wheeler, S. R., Denell, R. E. Ultrabithorax is required for membranous wing identity in the beetle Tribolium castaneum. Nature. 433, 643-647 (2005).
- Trauner, J., et al. Large-scale insertional mutagenesis of a coleopteran stored grain pest, the red flour beetle Tribolium castaneum, identifies embryonic lethal mutations and enhancer traps. BMC Biol. 7, 73 (2009).
- Yang, X., et al. Probing the Drosophila retinal determination gene network in Tribolium (II) The Pax6 genes eyeless and twin of eyeless. Developmental biology. 333, 215-227 (2009).
- Horn, T., Boutros, M. E-RNAi a web application for the multi-species design of RNAi reagents--2010 update. Nucleic acids research. 38, 332-339 (2010).
重印与许可
勘误
Formal Correction: Erratum: Larval RNA Interference in the Red Flour Beetle, Tribolium castaneum
Posted by JoVE Editors on 10/01/2015. Citeable Link.
An erratum was issued for Larval RNA Interference in the Red Flour Beetle, Tribolium castaneum. There was a typo in the settings for Sutter P-87 in step 4.1.
