斑马鱼是研究脊椎动物发育过程和人类疾病模型的优良实验生物。本文描述了一种在斑马鱼胚胎中进行全胚胎手动高通量化学筛选的实验方案 原位 杂交(WISH)检测结果。
本文内容
摘要
摘要
斑马鱼已成为研究发育生物学机制和人类疾病病理学的常用模式生物,因其与人类在基因上具有高度保守性。化学遗传学通过检测小分子对生物过程的影响,正成为一种流行的转化研究方法,用于鉴定治疗性化合物。斑马鱼特别适用于化学遗传学研究,因其可产下大量透明的体外受精胚胎。此外,只需将化合物加入胚胎培养液中,即可简便地对斑马鱼胚胎进行药物处理。利用整体装片 原位 杂交(WISH),可在斑马鱼胚胎中清晰地可视化mRNA的表达。结合化学遗传学与WISH技术,斑马鱼成为研究小分子细胞与生理效应的强有力的整体生物模型。尽管在基于机器的高通量筛选技术方面已取得创新性进展,但对许多实验室而言,此类技术仍难以获取或成本过高。本文所述方案详细说明了一种手动高通量化学遗传筛选方法,该方法仅需基本实验资源,可由单人或小型团队在较短时间内高效完成。因此,本方案为研究团队提供了一种可行的策略,可在斑马鱼中开展化学遗传学研究,有助于深入理解发育过程、疾病机制,并发现具有医学应用价值的新型化合物和信号通路。
引言
发现有效治疗人类疾病的药物是许多生物医学研究人员的最终目标。尽管识别和表征潜在药理学试剂以用于临床应用对医疗保健具有显而易见的价值,但这一直是一项重大挑战。从根本上说,许多治疗性化合物的开发源于对特定细胞类型发育或功能机制的深入了解。斑马鱼(Danio rerio)是一种属于鲤科(Cyprinidae)的淡水辐鳍鱼,现已成为发育生物学研究中的主流模式生物1。斑马鱼是遗传操作便利的脊椎动物,易于在科学研究中进行维护和操作2,3。斑马鱼胚胎透明、体外受精,单对成年鱼交配后仅一周内即可产生数百枚胚胎2,3。此外,斑马鱼具有与哺乳动物(包括人类)相似的主要器官系统,并在基因水平上表现出高度的同源性4。值得注意的是,约70%的人类基因在斑马鱼中存在直系同源基因4。由于这种高度相似性,斑马鱼已成为研究脊椎动物发育与生理机制的高度相关实验体系,并已被广泛用于模拟多种人类疾病5-7。基于上述原因及其他因素,斑马鱼成为持续开展遗传学研究的理想候选模型,其在生物医学研究中的实用价值也日益受到重视6,7。
在过去的几十年中,斑马鱼中已开发出大量遗传工具。斑马鱼基因组易于进行诱变和转基因操作3。迄今为止,已开展了大量正向和反向遗传学研究,产生了超过9,000种突变体3。此外,研究人员构建了众多转基因品系,实现了特定细胞类型的标记与分离3。目前已有大量持续性的努力,致力于将这些资源集中化并向科研社区分发,研究实验室可通过斑马鱼国际资源中心(Zebrafish International Resource Center, ZIRC)以相对低廉的成本获取这些资源8。此外,斑马鱼信息网络(Zebrafish Information Network, ZFIN)已逐步注释了大量生物学信息和分子工具,涵盖基因表达模式、吗啉代寡核苷酸序列及实验方案等9-11。这些斑马鱼研究基础设施的建立,得益于美国国立卫生研究院(NIH)对该动物模型的大力支持与推动8。这一庞大的斑马鱼突变体、转基因品系及相关信息资源,至今仍对整个生物医学研究领域具有极高的价值。然而,尽管斑马鱼现已成为公认的重要模式生物,但其在利用化学遗传筛选手段研究发育生物学和疾病方面,仍是一个尚未被充分开发的巨大资源库。
化学遗传学是指利用小分子(如药物或其他化合物)来影响活体系统中的生物学过程12。化学遗传学可用于解析基因功能的分子机制,例如鉴定能够挽救或加剧特定遗传缺陷的化合物12。此外,化学遗传学是开展转化研究的主要途径之一12。尽管在动物模型中进行的传统正向遗传筛选在将特定基因与疾病关联方面具有强大效力,但其缺乏时间维度的控制,使得在早期胚胎发育之后出现的表型难以甚至无法被观察到。此外,基因冗余也可能导致正向遗传学实验结果难以解释。相比之下,化学遗传筛选能够实现精细的时间调控,同时为药物发现提供有价值的起点12,13。
化学遗传学可以使用以下方法进行 体外 系统(例如, 细胞系、蛋白质)或使用 体内 系统,例如整个生物体。利用一个 体外 化学遗传学系统可能更具优势,因为它比完整生物体系统更简单,易于大规模操作,成本更低,且耗时更少。因此, 体外 系统支持高通量筛选(HTS)和高内涵筛选(HCS)。使用该系统具有多项优势 体外 在进行化学生物学研究时应考虑该系统,但也存在显著局限性。使用细胞系的一个主要局限性在于,小分子在特定细胞系中可能有效且无毒,但在引入完整生物体时却可能产生毒性。因此,问题的关键在于 体外 系统无法捕捉生物体的广泛背景,因此并不总能准确模拟整个生物体内的实际情况。尽管在完整生物体内进行化合物测试可以规避这些问题,但使用哺乳动物整体模型会带来一系列物理和伦理上的限制。例如,小鼠体内的药物筛选由于需要足够的样本量,其实施受到所需空间和成本的限制。此外,由于哺乳动物的发育过程复杂,发育相关问题的研究也较为困难。 在子宫内最后,尽管生物医学研究具有巨大的社会价值,但仍需充分重视动物福利,通过限制高强度研究以及减轻实验动物的疼痛与痛苦来加以保护。斑马鱼可作为哺乳动物等高等脊椎动物研究的可行替代模型,此外,在神经系统尚未发育或仅处于低水平活动的胚胎和幼体阶段,许多研究课题还可通过化学遗传学方法进行探讨。12,13.
迄今为止,已有大量化学遗传学筛选利用斑马鱼胚胎开展,特别是通过将胚胎浸入含有目标药物的培养基中即可实现化合物的递送12-15。此外,众多科学与技术的进步使得化学遗传学筛选变得可行且易于管理16-20。Peterson 及其同事于2000年首次将斑马鱼应用于化学遗传学筛选,并于2004年进一步鉴定出一种可抑制斑马鱼主动脉缩窄突变的化合物21,22。自此,化学筛选已被用于研究多种发育中的组织(例如,心脏、血液、血管)23-25、生理功能(例如,行为的神经基础)26、成体再生27,28以及疾病模型(例如,肌营养不良症和癌症)29,30。在这些斑马鱼化学筛选研究中,前列腺素可调控造血干细胞这一发现已进入人类临床试验,展示了从“鱼缸到病床”的转化潜力23,31-33(美国国立卫生研究院,ClinicalTrials.gov,NCT00890500;NCT01627314)。最近,针对复杂器官如肾脏的候选治疗药物也相继被发现,这些化合物可改善多囊肾病(PKD)34和急性肾损伤27,35中的细胞病理状态,尽管目前尚未进入临床试验阶段。这些化学遗传学筛选广泛证明了在发育期斑马鱼中测试小分子化合物的实用性,以及应用化学遗传学手段探究成体组织功能的能力。此外,目前已有越来越多的商品化药理学化合物库可供学术研究使用19。
近年来,化学遗传筛选技术取得了显著进展,包括采用机器人自动化系统进行药物分配与处理,以及自动化成像系统36-38。此类系统使得能够测试成千上万种化合物,从而实现高通量筛选(HTS)和高内涵筛选(HCS)36-38。然而,利用这些先进的机器人平台开展化学遗传筛选通常需要大量资源。对于许多缺乏资金购置、运行和维护此类仪器的机构而言,这些资源构成了重大障碍。尽管建立化学文库的机器人操作基础设施(包括将胚胎转移至阵列化培养板)对许多实验室而言仍过于昂贵,但自动化成像与分析通常更具可及性12。自动化图像筛选可实现对荧光转基因报告基因的定量分析,并有助于特定表型的解析12,15。
尽管自动化系统代表了有用的技术进步,但许多问题仍可通过更为集中的手动筛选来解决,例如对数千种具有生物活性的化合物在整体胚胎发育过程中进行筛选 原位 杂交(WISH)检测结果39此外,尽管越来越多的实验室已采用斑马鱼化学筛选来研究特定科学问题,但达到饱和程度的研究仍寥寥无几,许多研究领域尚未通过化学生物学手段加以探索。化学筛选可在仅拥有少量野生型或转基因品系斑马鱼的较小规模鱼房中实施。因此,大多数有意拓展或涉足该领域的斑马鱼研究团队均具备开展此类遗传学研究的条件。不同规模的化合物文库可从商业供应商和/或合作方处获得。基于上述原因,即使在经费紧张的科研环境下,化学生物学研究仍具有良好的经济可行性。然而,开展化学遗传筛选仍存在一些障碍,例如如何规划筛选过程中的各项后勤与操作细节: 例如, 成功实施筛选所需的人员数量、专用时间的分配,以及整合出一套用于手动处理从数百到数千个样本的物理实验方案。本文中,我们详细描述了一种以原位杂交(WISH)为检测手段,在斑马鱼胚胎中进行化学遗传学研究的手动高通量实验方案。该方法包括对斑马鱼胚胎进行药物处理,随后利用核糖探针检测mRNA转录本。采用本方案,一个小团队甚至单个研究人员均可在约9周时间内,合理地筛选并分析一个包含约600种化合物的小型化学文库。
方案
本文所述的斑马鱼操作程序已获得圣母大学机构动物护理和使用委员会的批准。本手册提供了斑马鱼小分子筛选实验设计的指南(图1)。本实验方案中所述方法的概览以流程图形式展示(图2)。请参考示例标记系统(图3)来规划第4至第10部分中描述的胚胎处理步骤。关于胚胎发育阶段的判定,请参考斑马鱼发育分期系列40;关于第9至第10部分中使用的WISH反义RNA探针的制备,请参考近期发表的方法41。
1. 斑马鱼交配室的制备
- 将一条成年雄性斑马鱼和一条成年雌性斑马鱼放入交配室中,用隔板隔开,过夜(O/N)。
注意:群体交配(例如使用2-3条雌鱼和2-3条雄鱼)相比单对交配可产生更多胚胎,可根据交配室的尺寸进行相应操作。 - 重复步骤1.1,使每块待测试小分子的96孔板对应设置总共25对斑马鱼。
2. 斑马鱼胚胎的收集
- 第二天,移除分隔每对鱼类的隔板,1小时后使用细网筛收集斑马鱼胚胎,并将其置于含有E3胚胎培养基的培养皿中(培养基配方见材料列表)。
注意:受精后1小时收集胚胎可确保胚胎处于相似的发育阶段。 - 使用塑料移液管去除碎片(例如, 食物和固体废弃物)。然后,使用体视显微镜观察每批胚胎,去除未受精的卵。
- 倾析出 E3 胚胎培养基,并更换为新鲜的 E3 培养基,然后将每皿胚胎置于 28.5 °C 培养箱中。2 小时后,使用体视显微镜观察每批胚胎,并移除未受精的卵。
注意:未受精的卵子可能对其他胚胎产生毒害作用,其外观表现为单细胞阶段或不透明状。 - 继续使用体视显微镜监测胚胎的发育进程,直至其达到50%包被期。在50%包被期阶段,观察胚胎的球形结构,此时胚胎外观呈现为两个独立层次组成。40.
3. 化学稀释液的配制
- 从 -80 °C 保存处取出化合物文库板,用铝箔覆盖,并在室温下解冻。
注意:不同文库的解冻速度会因所用溶剂的不同而有所差异。通常情况下,-80 °C 冻存的化合物文库在室温下约需 3 小时可完全解冻。将正在解冻的文库板存放于安全位置,并贴上适当的危险化学品标签。操作化学品时应佩戴合适的护目镜、实验服及两副手套。 - 使用八通道多通道移液器向 96 孔板的第 2 至第 12 列中每孔加入 99 µl E3 培养基。
注意:根据我们的经验,合适的起始药物浓度范围为 10 µM - 50 µM,这也与现有方案中所述一致39。本文以使用 1 mM 化合物文库母液板时进行 10 µM 处理为例进行说明。 - 使用八通道多通道移液器向各对应含 E3 的孔中加入 1 µl 的每种化合物。
- 使用 P10 移液器向对照列(此处为第 12 列)中每孔加入 1 µl DMSO(或相应溶剂)。
- 用铝箔覆盖化合物稀释板,以保护文库中对光敏感的化合物,并将原代化合物文库板放回 -80 °C 保存。
4. 斑马鱼胚胎的排列
- 选取一个含有处于40%原肠胚形成期(epiboly)斑马鱼胚胎的培养皿。使用移液管小心地将大约10个胚胎分别放入一个(1.1 ml)深孔96孔板的每个孔中。将胚胎分配至深孔96孔板的第2至第12列。
注意:研究人员应根据所要研究的发育过程,选择最合适的加药时间点。使用塑料移液管可尽量减少对胚胎的损伤。在40%原肠胚形成期之前进行药物处理可能导致胚胎死亡率升高,因此在进行药物暴露前应让胚胎继续发育更长时间,尤其是在研究较晚期发育过程时。每个孔中放置超过15–20个胚胎可能因密度过高而导致发育延迟,应避免这种情况。需特别注意,盛有胚胎的深孔96孔板与用于化学物稀释的96孔板是不同的。 - 使用玻璃移液管从每个孔中移除多余的E3培养基,并将废液排入液体废弃物容器中。
注意:此过程通常需要30分钟至1小时,具体时间取决于操作人员的速度,因此在操作结束时胚胎应处于50%至60%原肠胚形成期,这正是本实验中添加化学物稀释液的目标发育阶段。可将96孔板倾斜约45°角,使胚胎滑落至孔底,以便将移液管尖端紧贴孔底,从而吸出多余的E3培养基。
5. 添加化学处理
- 使用8通道多通道移液器将100 µl化学稀释液转移至深孔96孔板中相应孔位,该孔板中已排列有斑马鱼胚胎。
注意:确保化合物在原96孔板中的孔位与对应深孔96孔板中的孔位一致(例如将化学稀释板中B1孔位的溶液用移液器转移至深孔96孔板中的B1孔位。 - 润湿一张纸巾,放入一个可容纳96孔板的避光容器中。
注意:湿润的纸巾有助于防止化学稀释液蒸发。 - 接下来,使用密封垫密封深孔96孔板,将其放入避光容器中,并在28.5 °C下孵育。
注意:让斑马鱼胚胎发育至第二天早晨。或者,让胚胎发育至与所分析过程相对应的适当发育阶段。
6. 化学品的去除
- 使用八通道多通道移液器向药物处理孔的每一行中加入 300 µl E3。吸出并弃去每行孔中的 E3/化学物稀释液。用 300 µl E3 对胚胎清洗 3 次。
注意:将药物废液弃置于仅用于此目的的标记容器中。为便于清洗操作,可使用一个装有 E3 的玻璃容器,其宽度足以容纳多通道移液器操作。
7. 斑马鱼胚胎的蛋白酶处理与固定
- 使用塑料转移移液管将斑马鱼胚胎转移至四个24孔板中,然后去除所有死亡的胚胎。根据原始药物孔的位置标记24孔板。每次转移后,将移液管置于深色背景前,以便观察移液管中的胚胎,防止胚胎交叉污染到错误的孔中。
- 使用塑料转移移液管吸除E3培养基,使胚胎刚好被液体覆盖即可。
- 使用玻璃移液管向每孔中加入2滴蛋白酶原溶液(50 mg/ml)。让胚胎在蛋白酶中原位孵育5分钟,随后轻轻震荡各孔,使卵膜破裂。或者,可在胚胎达到目标发育阶段前预先进行蛋白酶处理。
- 使用塑料转移移液管用E3培养基将胚胎清洗两次。
- 当胚胎达到目标分析阶段后,彻底吸除并弃去剩余的E3培养基。
- 使用塑料转移移液管向每孔中加入新鲜的4% PFA/PBS溶液。于4 °C过夜孵育以固定胚胎 。初始固定应使用 freshly thawed 的PFA溶液。
注意:接下来可进行感兴趣的筛选实验。第8–10节中详细描述了使用WISH处理筛选板的流程。可根据需要替换为其他方法,随后进入第11节进行结果评估。
8. 胚胎通透化
- 使用塑料移液管吸除胚胎中的 4% PFA/PBS,并用 1× PBST(含吐温的磷酸盐缓冲液)清洗胚胎两次。将胚胎转移至 48 孔板中,然后吸除胚胎中的 1× PBST。标记 48 孔板,使其孔位与深孔 96 孔板中的原始位置相对应。
- 使用塑料移液管向孔中加入 100% 甲醇,随后吸除,再向胚胎中加入一次 100% 甲醇。
- 将胚胎置于 -20 °C 环境中,孵育至少 20 分钟。或者,可将胚胎长期保存在 -20 °C 的 100% 甲醇中。
- 吸除 100% 甲醇,用 50% MeOH/1× PBST 清洗胚胎,接着用 30% MeOH/1× PBST 清洗,最后用 1× PBST 清洗两次。
注意:受精后超过 24 小时(hpf)的胚胎在此步骤可进行漂白处理以去除色素39。 - 将 15 µl 解冻的蛋白酶 K 原液(10 mg/ml)加入 50 ml 的 1× PBST 中,配制得到蛋白酶 K 工作液(5 µg/ml)。
- 吸除胚胎中的 1× PBST,加入蛋白酶 K 工作液。4 分钟后吸除蛋白酶 K。
注意:实验人员在此步骤应迅速操作,以防止胚胎降解。蛋白酶 K 的浓度和孵育时间需根据所处理胚胎的发育阶段进行调整41。此处描述的参数适用于 24 hpf 的胚胎。 - 用 1× PBST 清洗胚胎,然后加入冰冻的 4% PFA/PBS。让胚胎在室温下于 4% PFA/PBS 中孵育 20 分钟。
9. 杂交与探针去除
- 使用玻璃移液管移除4% PFA/PBS,用1×PBST将胚胎清洗两次。将1×PBST替换为500 µl HYB+ 并在70 °C孵育胚胎4小时。
注意:预杂交时间可短至2小时,但4小时为最佳。此外,不同探针可能需要不同的杂交和洗涤温度(例如65 °C),但应根据具体情况单独测试。 - 生成与目的基因相对应的地高辛标记的核糖探针41.
- 将16 µg核糖探针加入16 ml HYB中+预热核糖探针/HYB+ 在使用前,将溶液于 70 °C 孵育至少 20 分钟。若使用多个探针,将每种探针各 16 µg 加入同一杂交液中+ 体积(16 ml)。
- 使用玻璃移液管移除 HYB+ 使用 P1000 加入 200 µl 核糖探针/HYB+ 混合物。将核糖探针/HYB 反转+ 使用前将混合液充分混匀,轻轻吹打一次后加入各孔中。使用带滤芯的移液枪头将核糖探针/HYB混合物加入+ 溶液,这可以防止混合物的蒸气进入移液器。
- 将胚胎在核糖探针/HYB 中孵育+ 在70 °C下用混合液过夜(O/N)孵育。使用粘性膜覆盖板孔,用于O/N探针孵育及后续所有高温洗涤步骤。
- 配制50%甲酰胺/2x SSCT、2x SSCT和0.2x SSCT,并在70 °C预热 过夜
- 使用 P1000 移除核糖探针/HYB+ 并在 -20 °C 下保存混合物。可选地,重复使用核糖探针/HYB+ 混合液最多可重复使用三次。每次重新使用前,向原始的核糖探针/HYB 混合液中添加 3 µg 核糖探针。+ 混合物
- 使用玻璃移液管,将胚胎在 50% 甲酰胺/2x SSCT 中于 70 °C 洗涤两次,每次 30 分钟。随后在 2x SSCT 中于 70 °C 洗涤一次,每次 15 分钟。再将胚胎在 0.2x SSCT 中于 70 °C 洗涤两次,每次 30 分钟。弃去 0.2x SSCT,于室温下用 MABT 洗涤胚胎两次。
10. 抗地高辛抗体孵育与检测
- 使用玻璃移液管从每个孔中移除 MABT。用塑料移液管向每个孔中加入新鲜的封闭液,让胚胎在室温下封闭孵育 4 小时。将 8 µl 抗地高辛抗体加入 40 ml 封闭液中(5,000 倍稀释)。
- 使用塑料移液管将封闭液替换为抗体/封闭液混合溶液。加入足量的抗体/封闭液,以完全覆盖胚胎。
- 用铝箔包裹 48 孔板,确保无光线透入胚胎。在 4 °C 下过夜孵育胚胎。使用玻璃移液管移除抗体/封闭液,并用 MABT 洗涤胚胎 10 次,每次 5–10 分钟。
注意:MABT 洗涤可连续进行,因为研究人员从每块板中移除 MABT 并向孔中加入新鲜 MABT 通常需要 5–10 分钟。 - 配制两管各 40 ml(共 80 ml)的预染色缓冲液。向其中一管预染色缓冲液中加入 180 µl NBT(50 mg/ml)和 140 µl BCIP(50 mg/ml),以制备染色液。
注意:该染色液将产生紫色沉淀产物。 - 用预染色缓冲液替换 MABT,让胚胎在室温下孵育 5 分钟。
- 用染色液替换预染色缓冲液,并在室温下放置。每隔 15 分钟使用体视显微镜观察显色反应。
注意:染色反应时间因探针不同而异,可能持续数分钟至数小时。 - 染色反应完成后,用 1x PBST 替换染色液,随后用 1x PBST 洗涤胚胎两次,每次 5 分钟。
- 移除 1x PBST,加入 4% PFA/PBS 固定胚胎。
注意:也可进行双重原位杂交(double WISH),以检测用地高辛抗体标记的核糖探针。若进行双重 in situ 杂交,在完成 1x PBST 洗涤(步骤 10.8)后,跳过加入 4% PFA/PBS(步骤 10.9),改为将胚胎用 0.1 M 甘油洗涤两次,每次 15 分钟;再用 MABT 洗涤两次,每次 15 分钟;随后在封闭液中孵育 30 分钟。然后加入相应的抗体,过夜孵育,并使用相应的染色液执行步骤 10.3–10.9。为检测荧光素标记的核糖探针,需配制含 BCIP 和 INT 的染色液以观察红色沉淀产物(参见步骤 10.1)。
11. 化学筛选胚胎板的评分
- 使用体视显微镜对表型检测中的胚胎样本进行结果的视觉评分。
- 使用塑料移液管将胚胎从48孔板转移至12孔板,以实现最佳观察效果。标记12孔板,使其对应于原始深孔96孔板中的孔位。转移完成后,在体视显微镜下观察。
注意:可从12孔板中选取代表性胚胎,置于载玻片上加盖盖玻片进行成像41。
结果
本文所述的手工方法使单名研究人员能够利用斑马鱼胚胎模型高效且成功地开展高通量小分子化学遗传学筛选(图1)。采用该方法,单人即可实际完成一项化学遗传学筛选,例如在9周时间内,一名研究人员(每周工作40小时)可完成约600种化合物的筛选(图1)。因此,单名研究人员的实验操作时间可避免对高资源投入设备(如自动化系统)的依赖。其权衡之处在于,手工筛选需要持续数周的专注投入。相比之下,使用自动化系统可将所需时间压缩至1至2周的机器人操作时间,且总体上对研究人员的投入要求相对较低。提高手工筛选效率或扩大筛选范围的一种方法是总共配备2至3名研究人员,这将有助于筛选更多化合物、调整化合物浓度,和/或在更短时间内完成筛选。
斑马鱼胚胎中以WISH为读出方式的化学遗传学筛选实验方案的主要步骤以流程图形式展示(图2)。实验任务可分为两种工作周:(1)化学暴露与胚胎标记,以及(2)分析与成像。在化学暴露工作周中,这些步骤包括设置斑马鱼成鱼(第1天)、胚胎收集、胚胎排列与药物处理(第2天)、以及胚胎制备以用于后续操作 原位 杂交(第3天),以及 原位 杂交(第4-6天)。在分析/成像周,研究人员分析mRNA表达以对胚胎进行评分并获取阳性信号图像(第7-11天)。
进行化学遗传学筛选的关键步骤之一是持续且准确地标记孔位。由于本文所述的化学遗传学筛选过程涉及多次将一组胚胎从一块板的孔转移至另一块板的不同孔中,因此必须进行精确而清晰的标记,以便在发现有活性的化合物(即“命中”)时,能够线性且便捷地追溯其在化合物库中的身份(图3)。实现这一目标的一个简便方法是标记筛选板,使得在任何时间点,经某一化合物处理的胚胎组所在的孔位都与其所用化合物在化合物库药物板中的孔位完全对应(图3)。本研究采用颜色编码与数字标签相结合的双重系统对样品进行组织,并使用永久性记号笔将标记添加至筛选板上(图3)。
在分析高通量筛选结果时,迫切需要建立一种方法,以正确地组织、注释和分析潜在的小分子候选化合物。因此,化学生物学筛选必须具备一个经过周密设计并严格执行的完整且清晰的分级系统。该系统应能够全面而清晰地传达化合物的重要生物学动态,并为最终筛选结果的呈现提供简洁的方式。构建此类系统的一种方法是采用分类法对胚胎进行分级,以描述整体形态学异常的严重程度以及对阳性结果的可信度。此外,分类级别可进一步结合(+)或(-)符号,用于描述对特定关注区域产生扩大或缩小效应。在此示例中,斑马鱼胚胎在50%上胚层形成至24小时(hpf)期间分别暴露于生物活性化合物库(Enzo Chemicals)中的单个化合物,随后使用三种核糖探针混合物通过WISH检测肾单位节段(图4A)。作为分级系统的示例,若某孔中的一组胚胎表现出前肾(斑马鱼胚胎肾脏)近曲小管(PCT)显著扩大的表型,则该孔所用化合物将被归类为(I类),在此代表具有最严重缺陷及对观察表型最高置信度的类别(图4B)。随后,该化合物将被注释为(PCT)并附加(+),完整标记为(I类 - PCT+)(图4B)。这种分类概念提供了一种简单而快速的方法,用以描述与感兴趣小分子相关的大量信息,包括化合物对生物体影响的严重程度、药物作用的靶向区域以及该区域受影响的方式(图4B)。
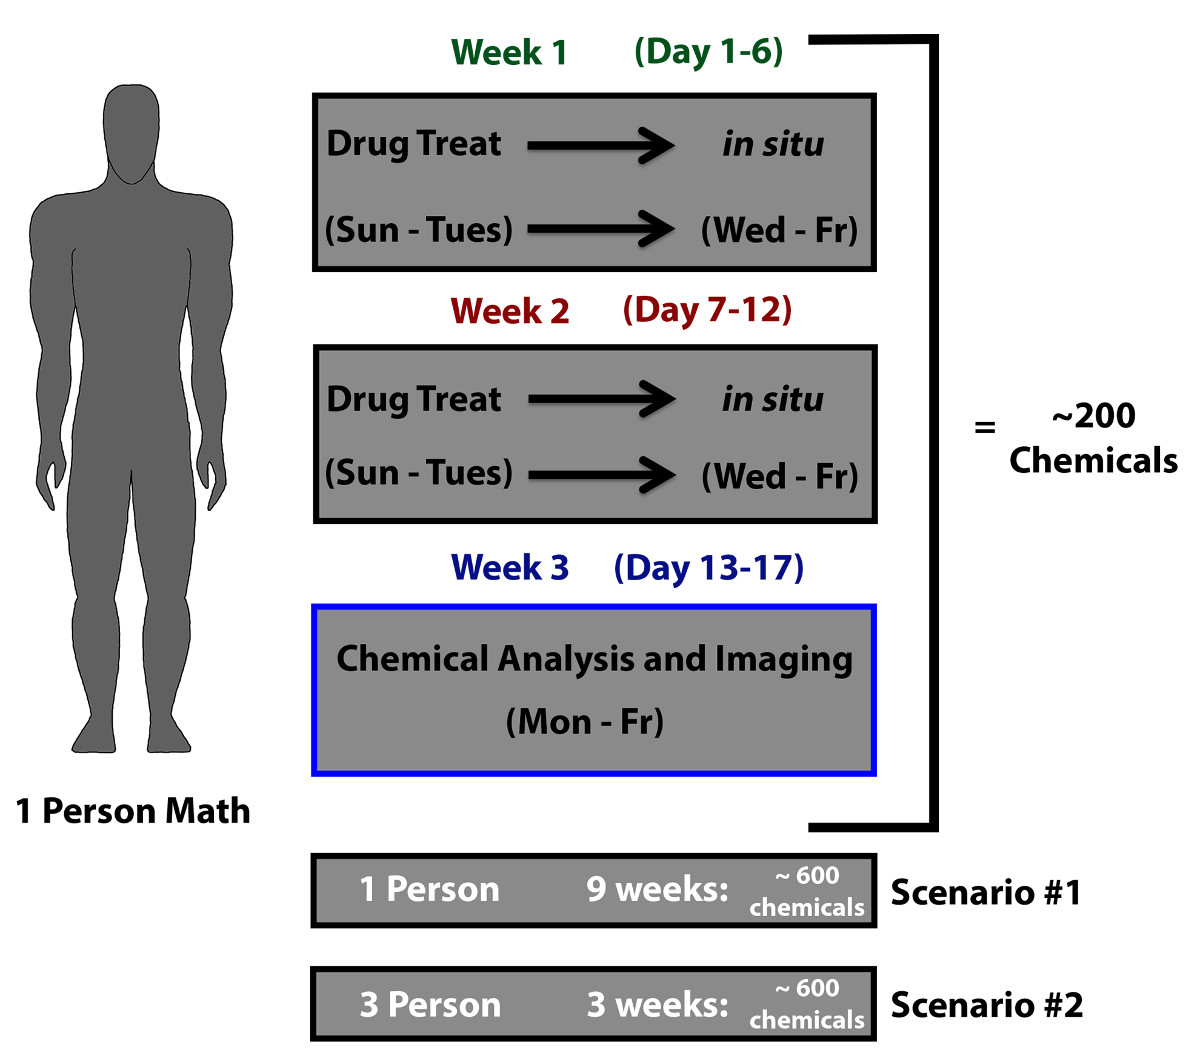
图 1. 斑马鱼胚胎化学筛选手动策略。 研究人员可在一周内对96孔板中的化合物进行斑马鱼胚胎测试,并完成后续的WISH(原位杂交)处理。进行两周的化合物测试(第1周(第1-6天)和第2周(第7-12天)),可与专门用于样本分析的第三周相配合。在第3周(第13-17天)可完成约两个96孔板数量的筛选样本评分与成像。该方案相当于在3周时间内筛选约200种化合物,由此推算,一个约含600种化合物的小型化合物库可在9周内完成全部筛选。该手动策略可根据可用资源进行调整。例如,三名研究人员合作可将约600种化合物的筛选时间从单人所需的9周缩短至3周。筛选策略也可通过分工进行优化,例如指派研究人员分别负责药物处理与in situ杂交,或让每位研究人员独立完成化学文库不同部分的完整筛选流程。

图2. 流程图:6天筛选工作流程分解。化学筛选过程可明确分为6天。第1天包括设置斑马鱼交配对(=/> 25对),以提供用于每个96孔板筛选的胚胎。第2天包括从交配盒中收集胚胎,并将其排列至深孔96孔板中,随后进行药物处理。第3天对胚胎进行WISH前处理,包括去壳、组织固定和胚胎脱水。最后,在第4至第6天对胚胎进行WISH检测。请注意,针对固定样本的其他染色方法可轻易替代WISH。
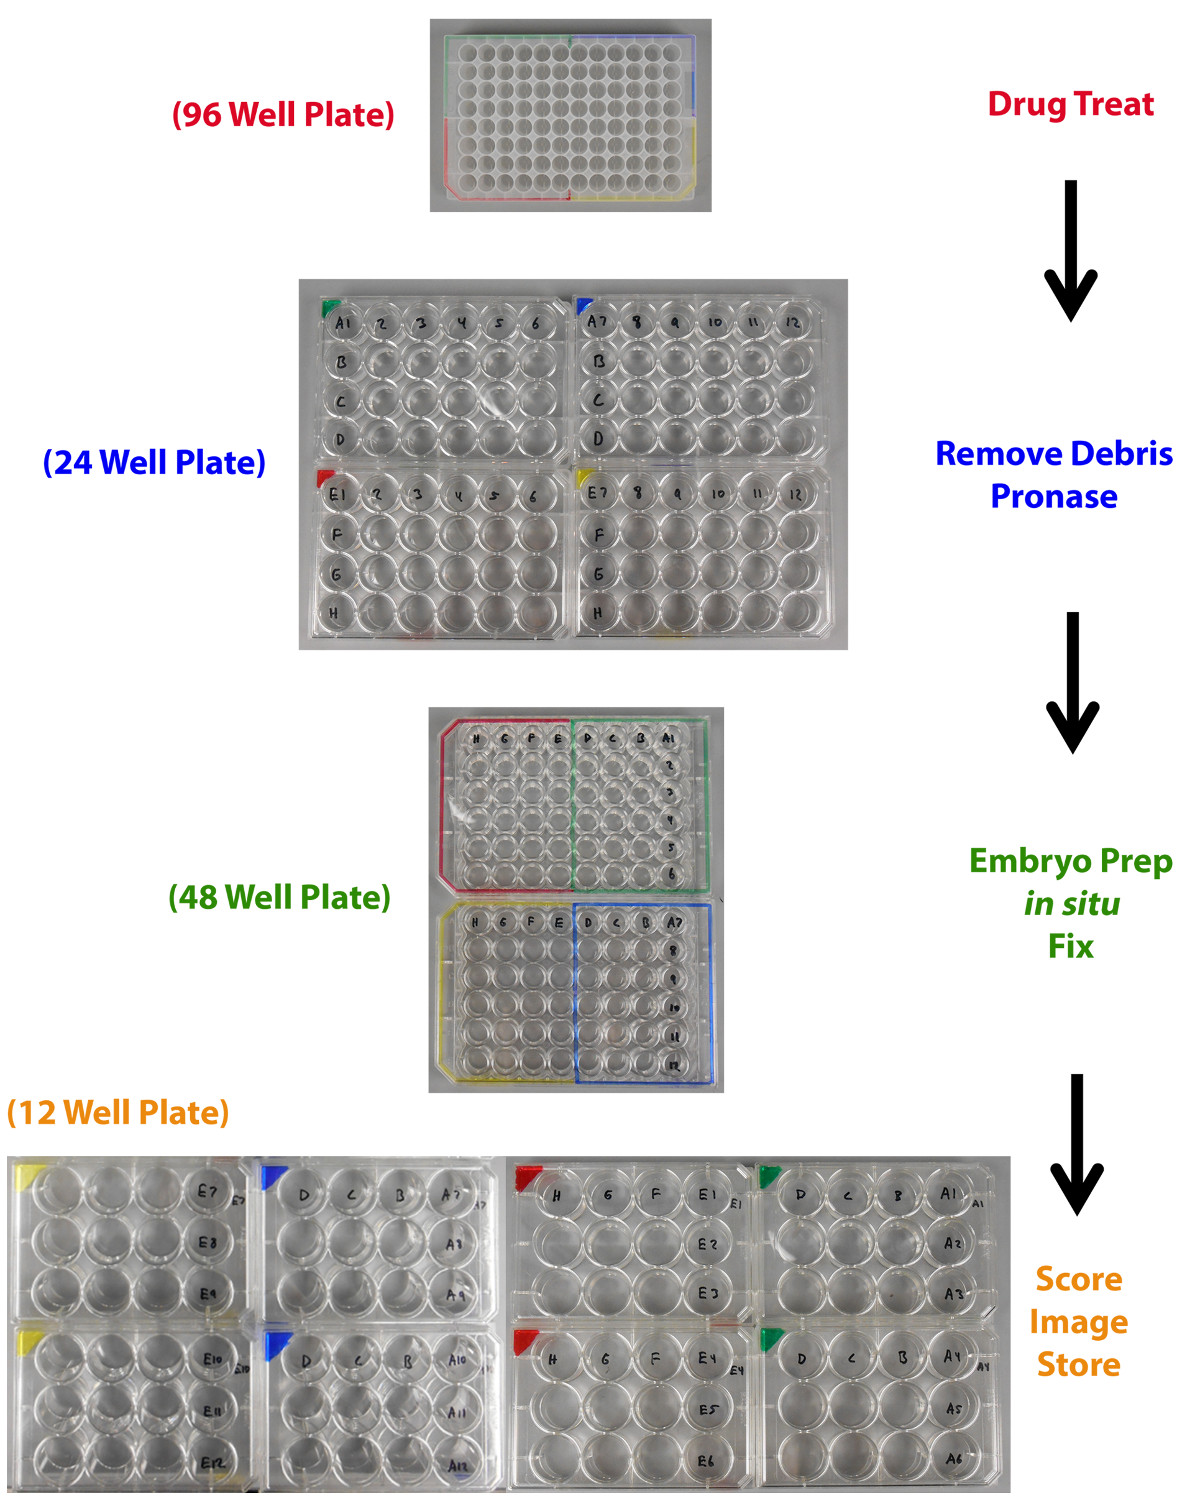
图3. 多孔板转移标记示意图。 斑马鱼胚胎在96孔板中排列并进行药物处理,随后转移至24孔板以去除碎片并进行蛋白酶K处理。接着将胚胎转移至48孔板进行胚胎制备、原位杂交(WISH)及组织固定。随后,胚胎被转移至12孔板进行评分、成像和储存。通过采用颜色编码系统实现胚胎的精确定位排列,使研究人员能够追踪每个测试样本所对应的化学处理来源。 请点击此处查看该图的放大版本。
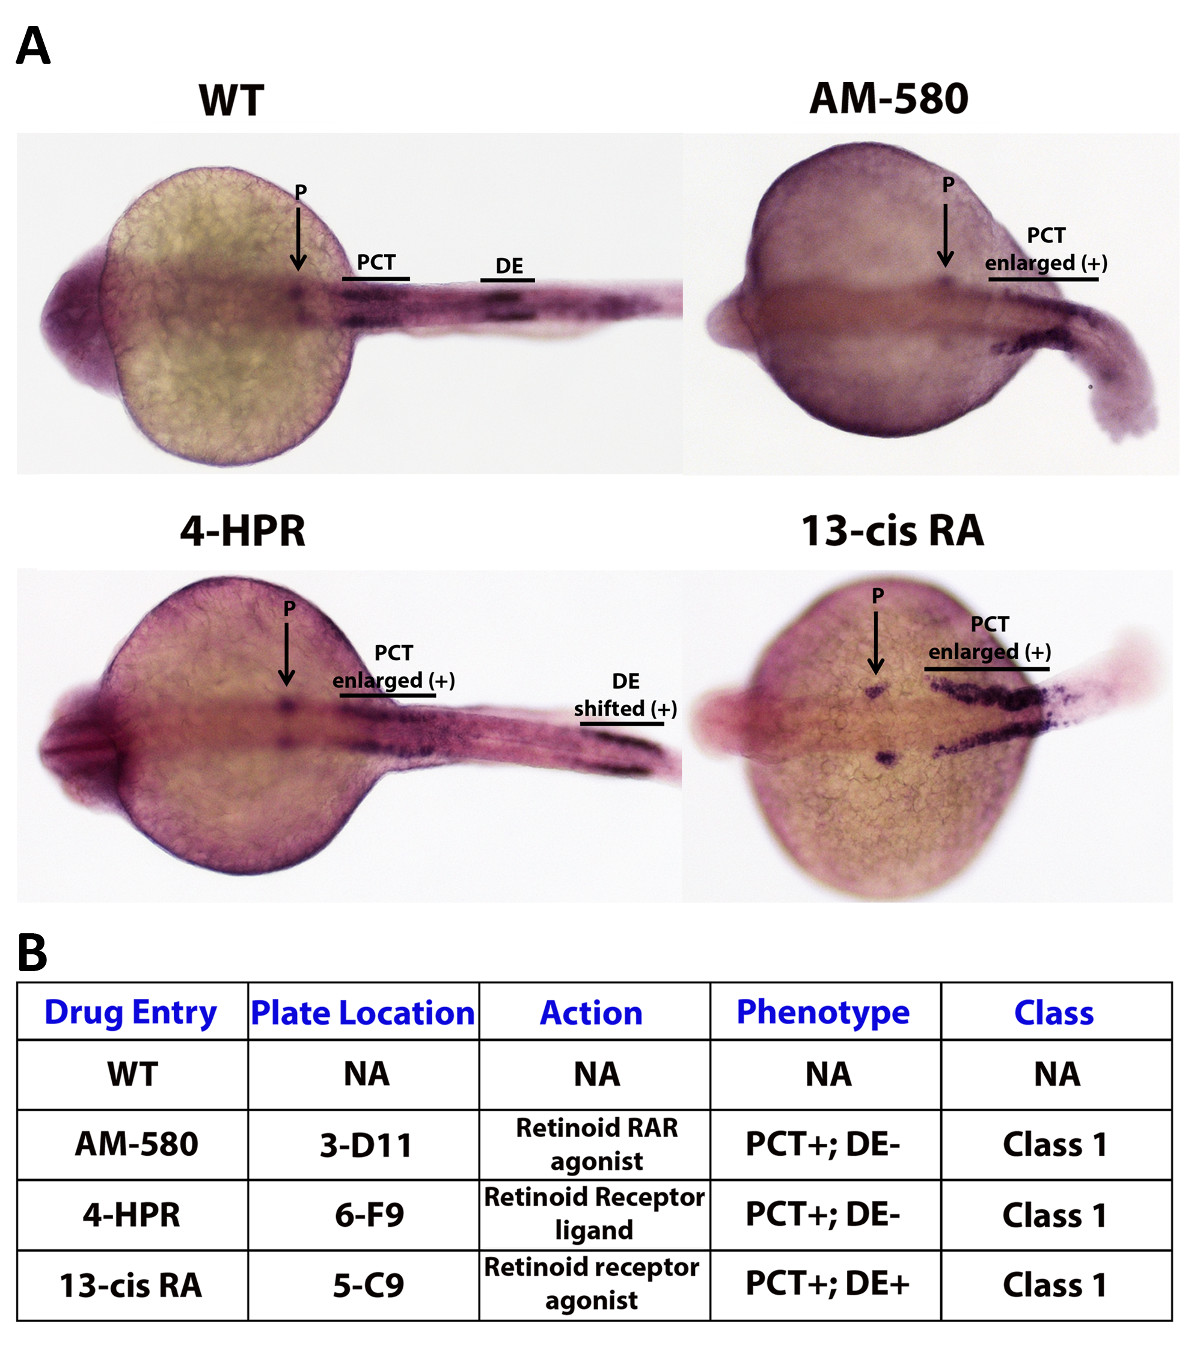
图 4. 示例评分系统:肾脏节段化检测。 WISH 实验使研究人员能够根据所选探针的特异性对特定细胞类型进行染色,从而依据 mRNA 转录位置和/或水平的变化评估胚胎表型的改变。例如,使用筛选混合物1对斑马鱼胚胎肾脏的三个节段——前肾进行标记。筛选混合物1是一种探针混合物,包含特异性定位于足细胞(P)的wt1b、标记近曲小管(PCT)的slc20a1a,以及标记远端早期(DE)节段的slc12a147。区域标签旁的(+)符号用于标注该区域的扩大或正向变化,而(-)符号则表示该区域的缩小或缺失。在此,经13-顺式维甲酸药物处理的胚胎表现出近曲小管增大,远端早期节段完全缺失,而足细胞未见明显影响。请点击此处查看该图的放大版本。
讨论
斑马鱼中的化学生物学研究可对药物发现的进程产生重要影响。本方案提供了一种手动高通量的方法,用于在斑马鱼胚胎中开展以WISH为检测读出的化学生物学实验,从而有效支持个人或小型团队进行小分子筛选。这种低资源需求的方法使更多研究团队能够开展化学生物学研究。具体而言,该筛选策略为依赖机器人设备的系统提供了重要的替代方案,因为此类系统在各研究部门中尚未广泛普及。通过这种手动筛选方法,单个研究人员可在6个工作日的时间内完成一个96孔板化合物的WISH检测读出。由于斑马鱼为卵生动物,其胚胎在母体外发育,且胚胎体积足够大(1–3 mm),肉眼即可观察,因此可使用简单工具进行人工操作,研究人员可在无需显微镜的情况下将样品排列至多孔板中。此外,由于斑马鱼发育迅速,小分子处理通常仅需一次给药即可产生有效作用,无需重复给药,从而进一步减少了人工操作步骤。斑马鱼胚胎易于培养,因其卵黄可在受精后5–6天内提供充足的营养,避免了幼鱼喂养的复杂性。在此期间,大多数幼体器官已发育并具备功能,为研究多种科学问题提供了可能。将小分子直接加入胚胎培养介质中是一种非侵入性操作,研究人员可自由选择药物剂量、添加时间及暴露持续时间,从而精确控制多个变量,并针对特定的发育过程进行探究。如本文所述,采用这种手动筛选方法可在较短时间内实现显著的研究产出。根据我们的经验,该方法投入的努力可获得较高的回报,若结合已知生物活性小分子化合物库来分析特定研究过程(例如肾脏发育过程中的肾单位分段,图4;Poureetezadi 和 Wingert,未发表数据),效果将更为突出。
本文所述的手动化学筛选方法具有极高的通用性,因其涉及对固定后的斑马鱼标本进行检测。例如,该策略可在一周内完成多个化合物板的处理,随后在下一周对胚胎进行表型评分。针对固定后的斑马鱼样本,也可采用其他检测方法替代WISH读数,例如免疫组织化学或其他组织染色技术。由于斑马鱼早期发育阶段具有良好的光学通透性,因此可在其体内开展细胞水平的实验检测。此外,研究人员可通过化学方法抑制后期色素的形成,或直接使用无色素遗传品系(如casper或sheer斑马鱼)以完全避免色素干扰13。通过简单的体视显微镜,即可手动施加小分子化合物、完成目标染色步骤并对手动观察胚胎进行评分。然而,必须注意的是,自动化图像分析是可行的,且在进行高分辨率表型分析时可能是必需的。例如,将自动化图像分析系统与直接检测方法(如转基因报告系统)结合使用可能更为理想,因为这能简化样本的手动处理流程,量化肉眼难以察觉的差异,并消除研究人员的主观偏差15。幸运的是,部分自动化成像系统操作简便,且在软件成本方面较为经济15。其他自动化系统的应用与功能也迅速发展,可用于定位生物体、施加药物处理,甚至实现生物体的重新定位12,15。这些自动化系统标志着科研进入了一个崭新的技术时代,为大规模操控实验对象提供了创新解决方案,从而可在完整生物体内实施高通量筛选(HTS)和高内涵筛选(HCS)策略12,15。尽管此类设备无疑是极具价值的工具,但其高昂的成本使许多基础研究实验室难以负担。在缺乏这些自动化设备的情况下,人们可能认为化学筛选无法开展。然而,本方案提供了一套详细指南,介绍如何以切实可行的方式在合理时间内完成手动化学遗传学筛选。
手动筛选和化学遗传学方法总体上均存在一些局限性,在考虑开展化学筛选时应予以充分注意。特别是本文所展示的方法需要一定程度的手工操作技巧。通过反复练习可降低甚至完全消除这一顾虑,因为操作熟练度会随着练习而提高。此外,由于每孔仅含10个胚胎用于分析,因此容许出现明显误差的空间极小。小分子化合物在诱导表型时可能存在表型外显率的差异,因此必须遵循合理的评分方案以识别感兴趣的化合物。研究人员在使用本方案时,必须制定出足够严格的标准来定义“阳性结果”。同时需注意,此类筛选方法很可能产生一定比例的假阳性结果,这些可通过后续的化学验证加以区分。此外,胚胎的精确分期以及在受精后尽快收集受精卵用于筛选至关重要,因为发育不同步可能会影响药物处理效应的准确评估。再者,就化学筛选作为一种实验策略而言,其本身存在诸多限制。例如化合物的溶解性以及载体分子的毒性(例如, 二甲基亚砜(DMSO)也可能带来问题,在测试许多分子时可能具有限制性。卵膜同样可能成为药物暴露的屏障。最后,尽管斑马鱼是化学遗传学研究中强大且具有转化价值的模型,但在确定是否采用其他化学筛选策略时,应始终谨慎考虑。 例如, 使用一个 体外 因此,尽管可以使用细胞系等系统替代整体动物实验,但在整体斑马鱼系统中进行化学处理仍被认为优于在哺乳动物中开展类似研究,因为这种方法能够获取化合物的系统性效应,并帮助研究人员筛选出适合在哺乳动物模型中进一步测试的化合物。
迄今为止,斑马鱼化学筛选已提供了一种强大的实验工具,用于阐明发育机制,并确定可用于医学的候选药理学化合物,例如识别能够预防疾病病理的分子。例如,Burns 及其同事的一项研究开发了一种利用转基因斑马鱼胚胎的心率自动化微孔板检测方法,这些胚胎的心肌中表达绿色荧光蛋白(GFP)42。他们利用该转基因品系分析了发育过程中的心率变化以及药物处理对其的影响42。另一项研究通过检测斑马鱼胚胎中造血干细胞的群体密度,发现前列腺素E2(prostaglandin E2)调控HSC生态位23。该发现随后在小鼠中得到验证,并进一步应用于人类脐带血移植的临床试验23,31-33(美国国立卫生研究院,ClinicalTrials.gov,NCT00890500;NCT01627314)。通过多项近期研究,化学遗传学已被证明在利用斑马鱼研究肾脏疾病方面具有重要价值43。斑马鱼的肾脏为研究肾单位(nephron)的发生(nephrogenesis)或再生提供了极佳的模型,肾单位是肾脏在发育过程中以及急性肾损伤时的基本功能单位43。斑马鱼胚胎肾脏与成年哺乳动物肾脏的肾单位结构高度保守44-50。多项针对斑马鱼胚胎肾脏的研究明确展示了其与化学遗传学结合时所具备的内在转化潜力。一项化学遗传学筛选在两个斑马鱼突变体上进行,这两个突变体分别对应于基因 pkd2 和 ift172,这两个基因已知在多囊肾病(polycystic kidney disease, PKD)中起关键作用34。筛选结果发现广谱组蛋白去乙酰化酶(pan-histone deacetylase, HDAC)抑制剂曲古抑菌素A(trichostatin A, TSA)是一种能够消除突变胚胎中常见形态缺陷的小分子化合物。de Groh 及其同事采用了一种不同的策略,筛选能在野生型斑马鱼胚胎中诱导水肿的化合物,从而提示肾脏功能受到干扰35。在确定PTBA为阳性结果后,他们观察到除了引起水肿外,PTBA还能上调肾前体细胞标志物 pax2a 的表达。更重要的是,PTBA的一种优化衍生物被证实可降低经庆大霉素诱导肾损伤的成年斑马鱼的死亡率,并且进一步加速了肾损伤小鼠的恢复过程27。综上所述,这些来自斑马鱼化学遗传学的研究成果展示了利用本实验方案所述方法所能实现的发现类型。
尽管化学生物学研究具有重要价值,但也面临某些挑战。仅依赖化学生物学方法可能会使确定受化合物影响的特定基因或基因群变得复杂。即使找到了靶点,从化合物鉴定到理解其作用机制之间仍可能存在显著差距。例如,由于单个化合物可在生物体内产生多种不同效应,因此确定小分子的作用机制可能较为困难。然而,随着新技术的出现以及在斑马鱼中完成的化学生物学筛选日益增多,确定作用机制的问题正在逐步减少。一种有助于确定已鉴定化合物分子效应的方法是选择已知生物活性化合物的药物库进行筛选,从而可能从先前注释的数据中推断出机制。此外,还可使用诸如Discovery Gate等化学信息学算法,将化合物的结构与已知机制的化合物数据库进行比对以寻找结构相似性14。另一种阐明化合物作用机制的方法是在处理后生成微阵列表达谱,然后在微阵列药物谱数据库(如Connectivity Map)中查询该谱型,寻找能引起类似效应且机制明确的化合物14。该方法也可用于鉴定与目标化合物产生相似效应的遗传突变体。发现化合物与突变体之间的关联可能提示该化合物在分子通路中作用于相关基因的上游或下游,这一关系可通过用该化合物和吗啉寡核苷酸处理突变体来进一步阐明。另一种选择是质谱分析,该技术正持续优化并适用于斑马鱼研究。该方法可用于解析药物处理后特定蛋白质的变化或翻译后修饰。最后,小分子甚至整个化合物库有时可被标记以用于捕获其结合伙伴。还需指出的是,尽管小分子的作用机制极为重要,但目前仍存在一些经美国食品药品监督管理局(FDA)批准的药物,其作用机制尚未明确。
尽管斑马鱼在遗传学和生理学上与哺乳动物有许多相似之处,但药物的跨物种适用性仍存在问题14。一项研究探讨了在斑马鱼胚胎中筛选出的细胞周期抑制剂候选化合物的跨物种适用能力50。该筛选鉴定出14种此前未知具有细胞周期活性的化合物。在这14种化合物中,有6种在人类和斑马鱼的细胞培养实验中均显示出细胞周期活性,3种在细胞培养实验中被发现受血清失活,1种仅在斑马鱼细胞中具有活性,另有4种在斑马鱼或人类细胞培养实验中均无活性,仅在完整的斑马鱼个体中表现出活性。值得注意的是,这4种仅在斑马鱼中具有活性的化合物表明,斑马鱼与哺乳动物之间存在差异,可能限制某些化合物的转化应用潜力。这一点需要特别关注。然而,也存在一些小分子的例子,如PGE2可增强造血干细胞在人类受体中的植入能力,以及PTBA衍生物可提高哺乳动物肾脏恢复速率,这些实例证明了跨物种适用的可能性23,31-33。
尽管存在这些局限性,化学生物学及这种低资源消耗的研究方法仍能为科研界提供诸多助益。化学生物学在斑马鱼研究中尤为有用,并将在分子通路解析和药物发现中持续发挥关键作用。历史上,基于特定分子靶点的化合物筛选常因吸收、分布、代谢、排泄及毒理学(ADMET)性质的复杂组合而具有较高的失败率51。而利用斑马鱼针对生物学过程(而非特定靶点)开展的化合物筛选,可规避多种ADMET相关问题,并识别出在完整生物体背景下具有生物活性的化合物。随着斑马鱼研究可用资源的不断丰富,包括现有的突变品系,以及利用基因组编辑技术构建靶向遗传突变体和转基因个体的能力,基于斑马鱼的潜在化学生物学筛选几乎具有无限的可能性。目前已有多个经过精心整理的化合物库,涵盖已知生物活性分子、新颖化合物、结构多样性和结构相似性化合物等类别。这些试剂为当前可实现的筛选组合提供了大量令人振奋的研究机遇,并有望在未来几年进一步扩展。鉴于这些可能性,本手册及高通量实验方案为研究团队提供了一种实用且操作友好的方法,以提升其开展斑马鱼化学生物学筛选的能力。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作获得了以下机构的资助:美国国立卫生研究院(National Institutes of Health)基金项目 K01 DK083512、DP2 OD008470 和 R01 DK100237;March of Dimes Basil O’Connor 新兴学者奖 #5-FY12-75;圣母大学理学院(University of Notre Dame College of Science)与生物科学系(Department of Biological Sciences)的启动资金;以及伊丽莎白和迈克尔·加拉格尔(Elizabeth and Michael Gallagher)代表加拉格尔家族向圣母大学捐赠的慷慨资助,用于推动干细胞研究。资助方在本研究的设计、数据收集与分析、发表决定以及稿件撰写过程中均未发挥任何作用。我们感谢 Paul T. Kroeger, Jr. 对本文稿提供的宝贵反馈意见。我们感谢生物科学系全体工作人员给予的支持,以及圣母大学斑马鱼研究中心(Center for Zebrafish Research at Notre Dame)在斑马鱼种群饲养与福利方面所展现出的卓越奉献。最后,我们感谢本研究实验室全体成员对本项工作所提出的评论、讨论与真知灼见。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1 - 10 μl 天然移液器吸头 | USA Scientific | 1111-3800 | |
| 1x E3 | 使用 50x E3 和去离子水配制。 | ||
| 1x PBST | 在 1x PBS 中配制含 0.1% Tween-20 的溶液。 | ||
| 10x PBS | American Bioanalytical | AB11072 | |
| 12 孔染色皿 | BD-Falcon | 35-3225 | |
| 20x SSC | American Bioanalytical | AB13156 | |
| 24 孔板 | BD-Falcon | 35-3226 | |
| 4% PFA/1x PBS | 在 1x PBS 中配制 4% PFA(w/v),煮沸后冷冻并保存于 -20 °C。 | ||
| 48 孔板 | CytoOne | CC7672-7548 | |
| 50x E3 | 在去离子水中加入 16.5 mM CaCl2、16.5 mM MgSO4、250 mM NaCl 和 8.5 mM KCl 配制。 | ||
| 96 深孔板 | VWR | 100-11-940 | |
| 96 孔板封口膜 | VWR | 10011-946 | |
| 抗地高辛抗体 | Roche | 11-093-274-910 | 保存于 -20 °C。 |
| BCIP 储存液 | Sigma | B8503 | 使用 100% DMF 配制 50 mg/ml 溶液,冷冻后保存于 -20 °C。 |
| 封闭液 | 使用 10 ml BSA(10%)、5 ml FCS 和 35 ml MABT 配制 50 ml 溶液。(在 37 °C 下解冻 BSA 和 FCS。) | ||
| BSA(牛血清白蛋白)储存液 | American Bioanalytical | AB00448 | 在室温下将 BSA 粉末搅拌溶解于 MAB 中配制 10% BSA,然后冷冻并保存于 -20 °C。(未使用的 BSA 粉末保存于 4 °C。) |
| DIG/FLU 标记的体外转录核糖探针反应试剂 | Roche | 11175025910; 11685619910 | 参照生产商操作说明。 |
| DMF(二甲基甲酰胺) | American Bioanalytical | AB00450 | |
| DNase 1 抑制剂,10x DNase 1 缓冲液 | Roche | 4716728001 | |
| 胚胎培养皿 | Falcon | 35-1005 | |
| epT.I.P.S 20-300 μl | Eppendorf | 22492284 | |
| 乙醇(EtOH) | Sigma | E7023 | 使用分子级 H2O 和 100% EtOH 配制 50 ml 70% EtOH,然后保存于 -20 °C。 |
| FCS(胎牛血清)储存液 | Invitrogen | 16140089 | 保存于 -20 °C。 |
| 滤膜过滤除菌装置 | Corning | 430516 | 0.45 μm CA / 1 L 容量 |
| 精细镊子 | Roboz | RS-1050 | |
| 平底微量离心管 | VWR | 87003-300; 87003-298 | |
| 甲酰胺 | American Bioanalytical | AB00600 | 保存于 -20 °C。 |
| 玻璃培养皿 90 x 50 | Kimax Kimble | 23000 | |
| 玻璃移液管 | VWR | 14673-010 | |
| 玻璃小瓶 | Wheaton | 225012 | |
| 甘油 | Sigma | G7893 | |
| 甘氨酸 | Sigma | G8898 | |
| 糖原 | Roche | 10901393001 | |
| HYB+ | 配制含 50% 甲酰胺、0.1% Tween-20、5x SSC、5 mg/ml 酵母 RNA 和 50 μl/μl 肝素的溶液 | ||
| INT 储存液 | Sigma | I8377 | 使用 70% DMF 和 30% H2O 配制 55 mg/ml 溶液,冷冻后保存于 -20 °C。 |
| MAB | 将 55.0 g Trisma 碱、8 ml 1 M Tric-HCl(pH 9.5)、23.2 g 马来酸和 17.5 g NaCl 加入 1.5 L 去离子 H2O 中,再加去离子 H2O 至 2 L,高压灭菌。 | ||
| MABT | 在 MAB 中配制含 0.1% Tween-20 的溶液 | ||
| 甲醇(MeOH) | Sigma | 34860-4L | |
| 网状茶叶滤网 | English Tea Store | SKU #ASTR_KEN, MPN#1705 | |
| 分子级蒸馏水 | Mediatech | 25-055-CM | |
| 多通道 8 通道移液器 0.5 - 10 μl | Eppendorf | 3122000.019 | |
| 多通道 8 通道移液器 30 - 300 μl | Eppendorf | 3122000.051 | |
| 纳米分光光度计 | Thermo | ND-2000c | |
| NBT 储存液 | Sigma | N6876 | 使用 70% DMF 和 20% H2O 配制 50 mg/ml 溶液,冷冻后保存于 -20 °C。 |
| 多聚甲醛 | Electron Microscopy Services | 19210 | |
| PCR 薄膜封口胶 | Eppendorf | 30127.48 | |
| 板盒(铅笔盒) | Sterilite | 1722 | |
| 预染色缓冲液 | 配制含 0.1% Tween-20、50 mM MgCl2、100 mM NaCl 和 100 mM Tris(pH 9.5)的溶液。(每次使用前新鲜配制。) | ||
| 蛋白酶 K | Roche | 11459643001 | 使用 E3 配制 50 mg/ml 溶液,冷冻后保存于 -20 °C。 |
| 蛋白酶 K | Roche | 03-115-879-001 | 在去离子水中配制 10 mg/ml 溶液,然后冷冻并保存于 -20 °C。 |
| RNase 1 抑制剂 | Roche | 3335399001 | |
| 橡胶吸球 | Fisherbrand Fisher Scientific | 03-448-22 | |
| 显色液-紫色 | N/A | N/A | 每 10 ml 预染色缓冲液中加入 45 μl NBT 和 35 μl BCIP 配制。 |
| 显色液-红色 | 每 10 ml 预染色缓冲液中加入 31.5 μl INT 和 35 μl BCIP 配制。 | ||
| 体视显微镜 | Nikon | SMZ645, SMZ1000 | |
| T3 RNA 聚合酶 | Roche | 11031171001 | |
| T7 RNA 聚合酶 | Roche | 10881775001 | |
| 移液管 | Samco | 202, 204 | |
| Tween-20 储存液 | American Bioanalytical | AB02038 | |
| 水浴锅 | Thermo | 51221073 | (型号 # 2831) |
参考文献
- Grunwald, D. J., Eisen, J. S. Headwaters of the zebrafish—emergence of a new model vertebrate. Nat. Rev. Genet. 3 (9), 717-724 (2002).
- Dahm, R., Geisler, R. Learning from small fry: the zebrafish as a genetic model organism for aquaculture fish species. Mar. Biotechnol. (NY). 8 (4), 329-345 (2006).
- Lieschke, G. J., Currie, P. D. Animal models of human disease: zebrafish swim into view). Nat. Rev. Genet. 8 (5), 353-367 (2007).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496 (7446), 498-503 (2013).
- Hsu, C. H., Wen, Z. H., Lin, C. S., Chakraborty, C. The zebrafish model: use in studying cellular mechanisms for a spectrum of clinical disease entities. Curr. Neurovasc. Res. 4 (2), 111-120 (2007).
- Goldsmith, J. R., Jobin, C. Think small: zebrafish as a model system of human pathology. J. Biomed. Biotechnol. , (2012).
- Santoriello, C., Zon, L. I. Hooked! Modeling human disease in zebrafish. J. Clin. Invest. 122 (7), 2337-2343 (2012).
- Henken, D. B., Rasooly, R. S., Javois, L., Hewitt, A. T. The National Institutes of Health and the growth of the zebrafish as an experimental model organism. Zebrafish. 1 (2), 105-110 (2004).
- Sprague, J., et al. The Zebrafish Information Network: the zebrafish model organism database provides expanded support for genotypes and phenotypes. Nucleic Acids Res. 36, (2008).
- Bradford, Y., et al. ZFIN: enhancements and updates to the Zebrafish Model Organism Database. Nucleic Acids Res. 39, (2011).
- Howe, D. G., et al. ZFIN, the Zebrafish Model Organism Database: increased support for mutants and transgenics. Nucleic Acids Res. 41, (2013).
- Lessman, C. A. The developing zebrafish (Danio rerio): A vertebrate model for high-throughput screening of chemical libraries. Birth Defects Res. C Embryo Today. 93 (3), 268-280 (2011).
- Pickart, M. A., Klee, E. W. Zebrafish approaches enhance the translational research tackle box. Transl. Res. 163 (2), 65-78 (2014).
- Peal, D. S., Peterson, R. T., Milan, D. Small molecule screening in zebrafish. J. Cardiovasc. Transl. Res. 3 (5), 454-460 (2010).
- Tsang, M. Zebrafish: a tool for chemical screens. Birth Defects Res C Embryo Today. 90 (3), 185-192 (2010).
- Mandrekar, N., Thakur, N. L. Significance of the zebrafish model in the discovery of bioactive molecules from nature. Biotechnol. Lett. 31 (2), 171-179 (2009).
- Peterson, R. T., Fishman, M. C. Designing zebrafish chemical screens. Methods Cell Biol. 105, 525-541 (2011).
- Tan, J. L., Zon, L. I. Chemical screening in zebrafish for novel biological and therapeutic discovery. Methods Cell Biol. 105, 493-516 (2011).
- Mathias, J. R., Saxena, M. T., Mumm, J. S. Advances in zebrafish chemical screening technologies. Future Med. Chem. 4 (14), 1811-1822 (2012).
- Tamplin, O. J., et al. Small molecule screening in zebrafish: swimming in potential drug therapies. Wiley Interdiscip. Rev. Dev. Biol. 1 (3), 459-468 (2012).
- Peterson, R. T., et al. Small molecule developmental screens reveal the logic and timing of vertebrate development. Proc. Natl. Acad. Sci. USA. 97 (24), 12965-12969 (2000).
- Peterson, R. T., et al. Chemical suppression of a genetic mutation in a zebrafish model of aortic coarctation. Nat. Biotechnol. 22 (5), 595-599 (2004).
- North, T. E., et al. Prostaglandin E2 regulates vertebrate haematopoietic stem cell homeostasis. Nature. 447 (7147), 1007-1011 (2007).
- Kalev-Zylinska, M. L., et al. Runx1 is required for zebrafish blood and vessel development and expression of a human RUNX1-CBF2T1 transgene advances a model for studies of leukemogenesis. Development. 129 (8), 2015-2030 (2002).
- Molina, G., et al. Zebrafish chemical screening reveals an inhibitor of Dusp6 that expands cardiac cell lineages. Nat. Chem. Biol. 5 (9), 680-687 (2009).
- Kokel, D., et al. Rapid behavior-based identification of neuroactive small molecules in the zebrafish. Nat. Chem. Biol. 6 (3), 231-237 (2010).
- Cosentino, C. C., et al. Histone deacetylase inhibitor enhances recovery after AKI. J. Am. Soc. Nephrol. 24 (6), 943-953 (2013).
- Oppendal, D., Goldsmith, M. I. A chemical screen to identify novel inhibitors of fin regeneration in zebrafish. Zebrafish. 7 (1), 53-60 (2010).
- Kawahara, G., et al. Drug screening in a zebrafish model of Duchenne muscular dystrophy. Proc. Natl. Acad. Sci. USA. 108 (13), 5331-5336 (2011).
- White, R. M., et al. DHODH modulates transcriptional elongation in the neural crest and melanoma. Nature. 471 (7339), 518-522 (2011).
- Lord, A. M., North, T. E., Zon, L. I. Prostaglandin E2: Making more of your marrow. Cell Cycle. 6 (24), 3054-3057 (2007).
- Goessling, W., North, T. E. Hematopoietic stem cell development: Using the zebrafish to identify the signaling networks and physical forces regulating hematopoiesis. Methods Cell Biol. 105, 117-136 (2011).
- Cutler, C., et al. Prostaglandin-modulated umbilical cord blood hematopoietic stem cell transplantation. Blood. 122 (17), 3074-3081 (2013).
- Cao, Y., et al. Chemical modifier screen identifies HDAC inhibitors as suppressors of PKD models. Proc. Natl. Acad. Sci. USA. 106 (51), 21819-21824 (2009).
- Groh, E. D., et al. Inhibition of histone deacetylase expands the renal progenitor population. J. Am. Soc. Nephrol. 21 (5), 794-802 (2010).
- Vogt, A., et al. Automated image-based phenotypic analysis in zebrafish embryos. Dev. Dyn. 238 (3), 656-663 (2009).
- Vogt, A., Codore, H., Day, B. W., Hukriede, N. A., Tsang, M. Development of automated imaging and analysis for zebrafish chemical screens. J. Vis. Exp. (40), (2010).
- Tran, T. C., et al. Automated, quantitative screening assay for antiangiogenic compounds using transgenic zebrafish. Cancer Res. 67 (23), 11386-11392 (2007).
- Jing, L., Durand, E. M., Ezzio, C., Pagliuca, S. M., Zon, L. I. In situ hybridization assay-based small molecule screening in zebrafish. Curr. Protoc. Chem. Biol. 4, 2 (2012).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. B. Stages of embryonic development of the zebrafish. Dev. Dyn. 203, 253-310 (1995).
- Cheng, C. N., Li, Y., Marra, A., Verdun, V., Wingert, R. A. Flat mount preparation for observation and analysis of fixed zebrafish embryo specimens. J. Vis. Exp. , (2014).
- Burns, C. G., et al. High-throughput assay for small molecules that modulate zebrafish embryonic heart rate. Nat. Chem. Biol. 1 (5), 263-264 (2005).
- Poureetezadi, S. J., Wingert, R. A. Congenital and Acute Kidney Disease: Translational Research Insights from Zebrafish Chemical Genetics. General Med. 1, 112 (2013).
- Gerlach, G. F., Wingert, R. A. Kidney organogenesis in the zebrafish: Insights into vertebrate nephrogenesis and regeneration. Wiley Interdiscip. Rev. Dev. Biol. 2 (5), 559-585 (2013).
- Li, Y., Wingert, R. A. Regenerative medicine for the kidney: stem cell prospect., & challenges. Clin. Transl. Med. 2 (1), 11 (2013).
- McCampbell, K. K., Wingert, R. A. Renal stem cells: fact or science fiction. Biochem. J. 444 (2), 153-168 (2012).
- Wingert, R. A., et al. The cdx genes and retinoic acid control the positioning and segmentation of the zebrafish pronephros. PLoS Genet. 3, (2007).
- Wingert, R. A., Davidson, A. J. The zebrafish pronephros: a model to study nephron segmentation. Kidney Int. 73 (10), 1120-1127 (2008).
- Wingert, R. A., Davidson, A. J. Zebrafish nephrogenesis involves dynamic spatiotemporal expression changes in renal progenitors and essential signals from retinoic acid and irx3b. Dev. Dyn. 240 (8), 2011-2027 (2011).
- Li, Y., Cheng, C. N., Verdun, V. A., Wingert, R. A. Zebrafish nephrogenesis is regulated by interactions between retinoic acid, mecom, and notch signaling. Dev. Biol. 386 (1), 111-122 (2014).
- Murphey, R. D., Stern, H. M., Straub, C. T., Zon, L. I. A chemical genetic screen for cell cycle inhibitors in zebrafish embryos. Chem. Biol. Drug Des. 68 (4), 213-219 (2006).
- Williams, C. H., Hong, C. C. Multi-step usage of in vivo models during rational drug design and discovery. Int. J. Mol. Sci. 12 (4), 2262-2274 (2011).
重印与许可
标签
