比较样品间线粒体膜电位可提供有关细胞状态的重要信息。本文详细描述了分离线粒体以及利用荧光法检测其对抑制剂和解偶联剂反应的实验步骤。通过细胞培养和细胞应激动物模型的应用,展示了该实验方案的方法学特点及其应用价值。
本文内容
摘要
摘要
为了确定细胞状态,有必要对两个或多个不同组别(如健康与疾病)进行比较。线粒体因其在细胞代谢、能量生成以及凋亡调控中的关键作用,处于细胞健康的核心地位。因此,直接评估分离得到的线粒体及其功能扰动情况,有助于判断是否存在细胞器特异性的功能异常。本实验方案中所述方法包括从HEK培养细胞以及小鼠肝脏和脊髓中分离完整且具有功能的线粒体,这些方法也可轻松适用于其他培养细胞或动物组织。通过TMRE检测线粒体功能,并结合使用常见的线粒体解偶联剂和抑制剂,配合荧光酶标仪进行分析,不仅使本方案具有良好的通用性并易于大多数研究实验室开展,还可实现高通量检测。
引言
活细胞以脂肪和碳水化合物的形式储存代谢能量,并利用这些能量进行生物合成、膜转运和运动。部分能量通过糖酵解过程中将饮食中的糖类直接转化为ATP而在细胞质中获得。然而,细胞中ATP生成的主要来源是在线粒体内通过线粒体呼吸链实现的1。线粒体的结构为其高效、有效地生成ATP提供了必要的空间取向。线粒体具有双层膜结构,两层膜之间为膜间隙,与最内层的线粒体基质共同容纳了参与ATP生成的各种组分,并协调相关化学反应。内膜上含有多个膜结合蛋白复合物,构成呼吸链,同时还包含ATP合酶——这一蛋白复合物可将ADP和Pi结合生成ATP。内膜向内折叠形成嵴,电子通过细胞色素c(一种可溶性电子载体)在膜间隙中于各复合物之间传递,沿呼吸链逐级转移。随着电子的传递,还原当量被氧化,同时氢离子从基质被泵入膜间隙。由于膜间隙中离子浓度升高,形成跨线粒体内膜的电化学梯度,从而产生膜电位(∆ψ)2。氧气是电子传递链的最终电子受体,氢离子通过ATP合酶从膜间隙回流至基质,此过程直接驱动ATP的生成。上述整个过程被称为氧化磷酸化。嵴的折叠结构增加了内膜的表面积,使每个线粒体内部的电子传递和ATP生成达到最大化。参与氧化磷酸化的蛋白质、酶及其他分子由核基因和线粒体基因共同编码。线粒体含有自身的环状DNA,编码13种蛋白质以及ATP生成所必需的tRNA和mRNA3。然而,还需要更多的蛋白质,因此这些蛋白质由细胞核基因编码。大多数核编码的蛋白质通过前体蛋白N端的前序列被靶向输送至线粒体基质,其导入过程部分依赖于∆ψ4,5。
线粒体不仅参与细胞的生物能量代谢,还影响三羧酸循环(TCA)和β-氧化等重要代谢过程,通过调节钙离子参与细胞信号传导,并在细胞凋亡中发挥关键作用6。具体而言,在细胞应激状态下,定位于线粒体外膜或与之相互作用的BCL-2家族蛋白可导致线粒体外膜通透性增加(MOMP)7,8。在MOMP过程中,细胞色素c及其他蛋白被释放到细胞质中,并与多种胞质蛋白共同形成一种称为凋亡体(apoptosome)的复合物9,10。凋亡体可激活caspase,进而在细胞凋亡的执行阶段切割细胞内的蛋白质和DNA。一旦发生MOMP,线粒体膜电位(∆Ψ)即崩溃,ATP合成停止。因此,随着凋亡的启动,线粒体功能受损,∆Ψ的变化可作为评估线粒体及细胞健康状况的指标12。尽管凋亡是许多疾病模型的终末事件,但线粒体功能及其∆Ψ的变化同样可为疾病的发生和/或进展提供重要信息。例如,在神经退行性疾病发展过程中,已观察到线粒体结构和功能的改变13,14。
在本实验方案的第一部分,描述了保持其膜电位(ΔΨ)完整的线粒体的分离方法。将HEK-293T细胞暴露于不同浓度和组合的重组TNF-α、IL1-β和IFN-γ中,以诱导细胞凋亡。选择这些细胞因子是因为它们在原代人脓毒症样本中常被报道水平升高15,且TNF-α与其受体结合可触发细胞凋亡的外源性通路6。由于从原代组织中分离功能性线粒体的操作与培养细胞存在细微差异,且许多研究使用动物模型,因此本方案还描述了如何从前侧索硬化症(ALS)小鼠模型的肝脏和脊髓组织中分离线粒体。
本方案的第二部分旨在利用对电位敏感的荧光染料,通过荧光酶标仪监测线粒体膜电位的变化。通过定量检测分离线粒体在解偶联剂、呼吸链抑制剂、复合物抑制剂和离子载体作用下的ΔΨ强度,可区分细胞状态(即,健康与非健康状态)。线粒体越健康,使用线粒体抑制剂处理后其∆Ψ的变化幅度越大,因此线粒体的反应可作为线粒体(功能障碍)的指标。
使用分离的线粒体而非对功能进行原位评估,能够提供明确证据,表明某种病理状态或治疗手段可直接调控细胞器的变化16-18。尽管文献中已有从培养细胞中分离线粒体的方法,但这些方法往往描述模糊17,和/或依赖专用设备16。本方案详细描述了线粒体分离方法,并可轻松适用于其他细胞系,包括原代组织及培养细胞13,14,19,20。许多使用分离线粒体的研究采用了与本方案相同的线粒体解偶联剂和抑制剂,但使用的是克拉克电极(21为文献中众多论文的代表性示例),而该设备同样属于高度专业化的仪器。此外,这种传统方法存在通量低、操作复杂等局限性22,23,且需要大量线粒体(约500 µg/反应)。在本方案中,采用荧光膜电位探针TMRE结合荧光酶标仪进行检测,后者是许多实验室中的常规设备。TMRE被广泛认可,因其可快速进入细胞和分离的线粒体,并可在低浓度下使用24。利用本方案可快速并行设置多个反应,并进行批量分析。此外,该方法所需分离线粒体的用量显著减少(约10 µg/反应)。由于所需材料更少,可使用更小的组织或细胞培养样本作为线粒体分离的起始材料,可设置更多重复或反应,且可能留有足够材料用于其他分离线粒体实验,如ATP生成、耗氧量或蛋白导入检测等。
方案
所有动物实验均符合美国国立卫生研究院(National Institutes of Health)指南,并经维克森林大学动物护理与使用委员会批准。SOD1G93A [B6SJL-TgN (SOD1-G93A) 1Gur] 小鼠模型的繁殖对购自杰克逊实验室(The Jackson Laboratory,缅因州巴港)。将非转基因野生型(WT)雌鼠与 SOD1G93A 雄鼠 [B6SJL-TgN (SOD1-G93A) 1Gur] 杂交,以产生 SOD1G93A 小鼠及其非转基因野生型同窝对照,用于后续实验。
1. 研究模型
- 细胞培养
- 在37 °C、5% CO2条件下,使用含10%热灭活胎牛血清、1%青霉素-链霉素和1% L-谷氨酰胺的DMEM培养基培养人胚胎肾细胞(HEK-T293)。
- 在T75培养瓶中培养细胞,使其达到90%融合度。
- 通过胰蛋白酶消化法进行细胞传代:加入0.25%胰蛋白酶-EDTA,在37 °C、5% CO2条件下消化3–5分钟,随后加入等体积的完全培养基终止消化反应,并在4 °C下以700 × g离心5分钟。
- 吸除培养基,将细胞沉淀用新鲜培养基重悬。
- 在细胞因子处理前48小时,以每T75培养瓶7 × 10⁴个细胞的密度接种细胞。处理时细胞密度应约为70%。
- 24小时后进行血清饥饿处理:吸除培养基,更换为等体积无血清的DMEM培养基(无菌)。
- 用超纯水将TNF-α、IL1-β和IFN-γ从冻干粉配制成工作浓度分别为5 pg/µl、10 ng/µl和10 ng/µl的溶液,并加入至相应的孔或培养瓶中。
- 将溶解后的细胞因子直接加入相应培养瓶的细胞培养基中,对血清饥饿处理的细胞进行刺激。处理方式包括单独使用每种细胞因子、三种细胞因子混合物(记为“*3”)或无菌水作为对照(记为“0”)。
- 处理后的细胞在24、48或72小时后进行评估和收集。
- 细胞活力评估
- 用1× PBS配制5 mg/ml的3-(4,5-二甲基噻唑-2-基)-2,5-二苯基四氮唑溴盐(MTT)溶液。
- 对于12孔板,每孔加入100 µl MTT溶液,并轻轻混匀以确保均匀分布。
- 在37 °C、5% CO2条件下孵育15分钟至1小时,在显微镜下观察紫色沉淀的形成。若未见紫色,再次轻摇后每隔5分钟继续孵育直至出现紫色。具体孵育时间由各研究者自行确定。
- 使用多通道移液器向每孔加入700 µl MTT溶剂(含4 mM HCl和0.1% NP40的异丙醇溶液),室温下轻摇板子5–10分钟,直至细胞中所有紫色完全溶解。若紫色未完全溶出,可额外加入200 µl溶剂并继续轻摇。
- 用于分析时,从每孔取100 µl溶液转移至96孔板,在酶标仪上以570 nm为检测波长、630 nm为参比波长读取吸光度;也可使用595 nm作为检测波长,但须保证所有读数在相同设置下进行。
- 肌萎缩侧索硬化(ALS)动物模型
- 所有动物实验均遵循美国国立卫生研究院(NIH)的指导原则,并经维克森林大学动物护理与使用委员会批准。SOD1G93A [B6SJL-TgN (SOD1-G93A) 1Gur] 小鼠模型的繁殖对购自杰克逊实验室(Bar Harbor, ME)。将非转基因野生型(WT)雌鼠与SOD1G93A雄鼠 [B6SJL-TgN (SOD1-G93A) 1Gur] 杂交,以获得用于实验的SOD1G93A转基因小鼠及其非转基因野生型同窝小鼠。
- 使用针对突变型SOD125的标准引物进行基因分型。
2. 线粒体的分离
注意:操作过程中需迅速进行,并始终将所有物品置于冰上。
- 线粒体分离缓冲液(MIB)、脊髓分离缓冲液(SC MIB)和实验缓冲液(EB)的制备
- 提前配制好用于MIB和EB的以下储备溶液。
- 通过将12.1 g Tris碱溶解于70 ml H₂O中制备1 M Tris/MOPS2O. 加入干燥的MOPS,调节pH至7.4。定容至100 ml。过滤除菌,4 °C保存。
- 通过将 80.2 ml 的 K 与相应溶剂混合制备 1 M Kphos2HPO4 和 19.8 ml 的 KH2PO4室温保存。
- 将3.8 g EGTA加入10 ml H₂O中,配制0.2 M EGTA/Tris2O. 加入 1 M Tris/MOPS 至溶解,约 30–40 ml。定容至 50 ml,经无菌滤膜过滤后室温保存。注意 pH 值约为 6.7。
- 配制1 M谷氨酸溶液:取10 ml谷氨酸溶液配制成1 M溶液,过滤除菌后于4 °C保存。
- 配制1 M苹果酸溶液:将10 ml的1 M苹果酸溶液加入Tris/MOPS至终浓度50 mM。过滤除菌后,于4 °C保存。
- 配制MIB溶液,其成分为200 mM蔗糖、10 mM Tris/MOPS(pH 7.4)和1 mM EGTA/Tris。过滤除菌后,4 °C保存。
- 配制SC MIB溶液,浓度为250 mM蔗糖、20 mM HEPES-KOH(pH 7.5)、10 mM KCl、1.5 mM MgCl₂21 mM EDTA、1 mM EGTA、1 mM DTT 和蛋白酶抑制剂混合物。
- 配制EB缓冲液,组成为125 mM KCl、10 mM Tris/MOPS(pH 7.4)、5 mM谷氨酸、2.5 mM苹果酸、1 mM K磷酸盐缓冲液,pH 7.4,含10 mM EGTA/Tris。过滤除菌后于4 °C保存。
- 收获细胞前的设备准备
- 用无菌水将小型玻璃容器和匀浆杵各冲洗三次,然后置于冰上。
- 准备必要的物品,例如标准钻孔机、细胞刮刀、1.5 ml、15 ml 和 50 ml 离心管以及溶液。
- 线粒体分离
- 培养细胞
- 每种样本类型使用两瓶 T175 培养瓶的细胞。
- 确保细胞融合度约为90%,用于对照实验,或按照上述步骤1.2所述进行铺板和处理。
- 在实验台面上,吸除培养基,再用 15 ml 1x PBS 对贴壁细胞洗涤两次,每次 15 ml。
- 吸出缓冲液,刮取培养瓶以使贴壁细胞从瓶底脱落。
- 向每个烧瓶中加入 15 ml 的 1x PBS,轻轻摇晃混匀,转移至各 15 ml 圆锥形离心管中,置于冰上。
- 刮取完成后,使用带有摆动桶转子的台式离心机,在 4 °C 条件下以 700 x g 离心 5 分钟。
- 吸弃上清液,将每份沉淀物重悬于1 ml MIB中。
- 将两种悬液合并后转移至小型玻璃容器中进行匀浆。
- 将MIB加入容器中,直至缓冲液达到第一条刻度线。使用连接在钻机上的研杵,以中等速度匀浆三次。此步骤中需确保容器置于冰上,研杵不得移出液面之上,并保持稳定速度进行连续操作。
- 将匀浆后的溶液转移至50 ml锥形离心管中。
- 使用18号1½英寸针头将溶液吸入3 ml注射器中,再用27号½英寸针头将溶液回注至冰上的锥形管中。 注意将溶液推出至管内壁,利用该作用力破坏细胞膜。
- 重复注射器操作步骤,共进行五次。
- 将溶液转移至15 ml锥形管中,在台式离心机中使用水平转子,于4 °C、600 x g条件下离心5 min。
- 小心吸除上清液,并分装至三个1.5 ml离心管中。
注意:经过首次低速离心后,线粒体位于上清液中,而细胞膜和未破碎的细胞则沉淀于沉淀物中。 - 在4 °C条件下,以10,000 × g离心5分钟,使用固定角转子。
- 吸弃上清液,将沉淀物收集于100 µl MIB中,立即置于冰上。
注意:经过高速离心后,线粒体位于沉淀中。线粒体在分离后通常可维持其膜电位约2-3小时,以MIB中的浓缩储存液形式最为稳定。
- 从小鼠组织中分离线粒体
- 根据IACUC方案对小鼠进行麻醉。设置挥发器浓度为5.0%以诱导麻醉。通过轻捏足部无反应或当棉签接近或轻触眼睛时无眨眼反射,确认动物已处于麻醉状态。在整个手术过程中,将挥发器浓度维持在1.5%至2.0%之间,以保持小鼠处于麻醉状态。
- 从每只动物中切除肝脏和脊髓,分别置于预冷的1x PBS -/- 中,以冲洗去除血液。
- 将肝脏组织转移至冰上的称重皿中,使用新的剃刀片冰上切碎1分钟。
- 将组织和适当的缓冲液(肝脏用 MIB,脊髓用 SC MIB)加入容器中,直至缓冲液达到第一条刻度线。用手动研杵进行五次研磨均质化。此步骤中需确保容器置于冰上,研杵不得移出液面,并以稳定速度连续操作。
- 将匀浆液转移至洁净的15 ml离心管中。
- 在4 °C、750 × g条件下,使用固定角转子离心管离心10分钟。
- 将上清液转移至干净的离心管中,并置于冰上。
注意:经过首次低速离心后,线粒体位于上清液中,而细胞膜和未破碎的细胞则沉淀于沉淀物中。 - 将脊髓沉淀物重悬于 500 µl SC MIB 中。
- 每次用SC MIB填充容器至一半,将每份样品重新匀浆三次。
- 将新的匀浆转移至新的离心管中。
- 在4 °C条件下,使用固定角转子以750 × g离心10分钟。
- 将这些含有更多线粒体的新上清液与各样本的第一次上清液合并。
- 在4 °C、10,000 × g条件下,使用固定角转子离心管离心5分钟。
- 吸弃上清液,将肝组织沉淀重悬于500 µl MIB中,脊髓组织沉淀重悬于50 µl SC MIB中,并立即置于冰上。
注意:经过高速离心后,线粒体位于沉淀中。线粒体通常在分离后可维持其膜电位约 2–3 小时,且在 MIB 中作为浓缩储存液时最为稳定。 - 使用商用蛋白质检测试剂盒或类似方法检测蛋白质浓度,以估算溶液中线粒体的浓度26线粒体的典型浓度为:2个T175培养瓶可获得约2 mg/ml,1只小鼠肝脏可获得约3-5 mg/ml,1只小鼠脊髓可获得约1-3 mg/ml。
- 培养细胞
- 细胞色素 c 使用 R 的检测&D 大鼠/小鼠细胞色素c Quantikine ELISA试剂盒(根据制造商提供的方案改编)
- 反应体系设置前立即用EB缓冲液将线粒体稀释至0.5 mg/ml的工作浓度,并将稀释后的线粒体分装至1.5 ml离心管中用于反应(通常每管30–50 μl)。
- 向稀释后的线粒体中加入终体积1%的EB或DMSO,在室温下孵育反应7-10分钟。若需要更长时间,反应在室温下可稳定维持长达30分钟。
- 在固定角转子中,于4 °C、10,000 x g离心5 min,沉淀线粒体,小心分离上清液,并分别置于不同的1.5 ml离心管中。
注意:试管可于 -20 °C 冻存以备后续分析,或立即使用。 - 测定细胞色素的释放 c 通过比较细胞色素的浓度 c 在沉淀和上清液中27.
- 通过在原始反应体积的1×PBS中加入0.5% Tx-100溶解沉淀物来制备样品。
- 为每个样本在ELISA板上准备2个孔,分别用于加入100 μl细胞色素后溶解的沉淀物以及反应后的上清液 c 结合物(直接使用原瓶装)加100 μl含0.5% Tx-100的1x PBS,然后加入全部沉淀或上清液样品。
- 轻轻涡旋混匀,设置为低速(2-4档),持续20秒,盖好后于37 °C孵育1小时。
- 接下来,用按照制造商说明稀释的洗涤缓冲液洗涤平板4次。将孔板在纸巾上轻拍,去除多余的液体。
- 接着,向每孔加入150 μl 1:1的A+B显色液,在室温避光条件下孵育20-30分钟。
- 最后,向每孔加入50 μl终止液,并使用酶标仪在540 nm处测定吸光度。计算细胞色素的含量 c 通过比较细胞色素的释放量 c 在每个反应中,沉淀与上清液中的情况。
3. 线粒体(功能障碍)功能的评估
- 反应体系设置前,立即将线粒体用EB缓冲液稀释至0.5 mg/ml的工作浓度,并分装至1.5 ml离心管中用于反应(每管通常使用30–50 μl线粒体)。
- 线粒体治疗
- 加入相应的处理物(EB对照、1 μM FCCP与50 nM缬氨霉素混合液、10 μM鱼藤酮、5 μM寡霉素、2 mM KCN或200 μM ADP,终浓度),分别加入至不同的反应体系中,体积比为1/10th 稀释后线粒体的总体积。将反应液在室温下孵育7分钟。
注意:操作这些物质时应谨慎,因为意外摄入或经皮肤吸收可能有害。 - 将TMRE用无菌水稀释至工作浓度100 μM,于-20 °C保存,使用时稀释至2 μM,并加入与线粒体反应体系等体积的该溶液。
- 将反应在室温下孵育 7 分钟。
- 在4 °C条件下,使用固定角转子以10,000 × g离心5 min,沉淀线粒体。
- 将每个样本上清液的一半体积加入396孔板中,并检测荧光。
注意:TMRE 的激发和发射波长应根据所用检测板的类型和体积,参照制造商说明书进行优化。使用标准的 384 孔黑色板,加入 25 µl 1 µM TMRE(终反应浓度)时,通过激发/发射波长组合获得最强信号 波长 485 nm/535 nm - 通过将实验样本在酶标仪上测得的相对荧光值(RFU)除以对照样本的RFU,计算对照(EB)与各处理组之间的荧光倍数差异。
- 加入相应的处理物(EB对照、1 μM FCCP与50 nM缬氨霉素混合液、10 μM鱼藤酮、5 μM寡霉素、2 mM KCN或200 μM ADP,终浓度),分别加入至不同的反应体系中,体积比为1/10th 稀释后线粒体的总体积。将反应液在室温下孵育7分钟。
结果
用 200 pg/ml TNF-α、40 ng/ml IL1-β 和 75 ng/ml IFN-γ(*3)处理 HEK-293T 细胞 24–48 小时,可导致细胞死亡程度逐渐增加(图 1A)。通过 MTT 法检测细胞活力,结果一致显示,处理 24 小时后细胞活力下降约 10%,处理 48 小时后下降约 20%。使用相似浓度(100 pg/ml TNF-α、40 ng/ml IL1-β 和 75 ng/ml IFN-γ)处理细胞 48 小时也得到类似的细胞死亡结果,而单独使用各细胞因子处理则表明细胞活力的下降是由多种细胞因子联合作用所致(图 1B)。图 1B 中的活力数据代表了三次独立实验(每组实验均设三个重复)的平均值 ± 标准差,误差线的紧密程度表明数据具有良好的可重复性。在该处理方案中,可调整细胞因子的用量以进一步阐明每种细胞因子对细胞死亡的贡献,也可加入其他细胞因子或因素,前提是需设置适当的对照组。
自20世纪40年代以来,文献中已有从细胞和组织中分离线粒体的描述28,29该实验步骤的前提是先对细胞进行破碎,然后进行差速离心,其中粗制线粒体在约10,000 × g条件下沉淀。许多利用分离线粒体的实验方案要求线粒体具备完整的双层膜结构,以维持其膜电位,因此在线粒体分离完成后有必要对其完整性进行评估。在建立培养的HEK细胞线粒体分离方案过程中,检测了细胞色素 c 通过检测完整线粒体的获取情况来指示实验结果。使用市售的细胞色素 c ELISA试剂盒,分离后定量线粒体并用EB稀释,随后加入EB或DMSO,在室温下孵育反应。接着,通过将线粒体与周围上清液分离,分析细胞色素 c 两部分组分的内容被用作线粒体膜完整性的指标;如果细胞色素的大部分 c 保留在线粒体沉淀中,则认为线粒体完整;而若细胞色素c的释放量超过15%,则表明线粒体完整性受损。 c 存在于上清液中,则认为线粒体不适合用于功能研究。如图所示 表1,所述方案可获得约12%的细胞色素 c 释放率约为15%,当分离的线粒体预先用DMSO处理时。此前已有报道,从其他细胞系或动物组织中分离的线粒体也得到类似结果。19,20,27. 或者,也可使用TMRE评估线粒体完整性,该试剂在小鼠肝脏和脊髓线粒体的分离过程中被采用。在初始分离方案开发阶段,实验评估了从健康正常小鼠的肝脏和脊髓中分离的线粒体。对于每个样品,通过比较经EB处理的分离线粒体与经FCCP + 缬氨霉素孵育的分离线粒体的荧光信号来评估ΔΨ表2处理组与未处理组线粒体之间的荧光强度比值 >1 被用作健康且完整的线粒体的指标。
在成功建立线粒体分离方案后,对来自对照组未处理细胞和*3细胞因子处理细胞,或正常小鼠与SOD1小鼠的分离线粒体进行了分析。对两组HEK线粒体分别施加不同的解偶联剂和抑制剂,并通过TMRE摄取变化测定ΔΨ。对照组EB处理线粒体与解偶联剂/抑制剂处理线粒体之间的倍数差异表明两组间ΔΨ强度存在差异(代表性数据及计算见Table 3)。此外,未处理细胞与*3处理细胞之间ΔΨ的百分比下降表明细胞因子处理影响了线粒体健康,这与细胞活力数据相互印证(Figure 2)。通过分离自四只正常对照小鼠和四只ALS小鼠的肝脏及脊髓组织线粒体,利用TMRE摄取评估ΔΨ强度的结果显示,该方案也可用于评估组织健康状况。如ΔΨ的倍数差异和百分比下降所示,对照动物与疾病进展动物来源线粒体在EB处理与FCCP + 缬氨霉素处理之间的比较具有显著差异(Table 4;另见参考文献13和14)。
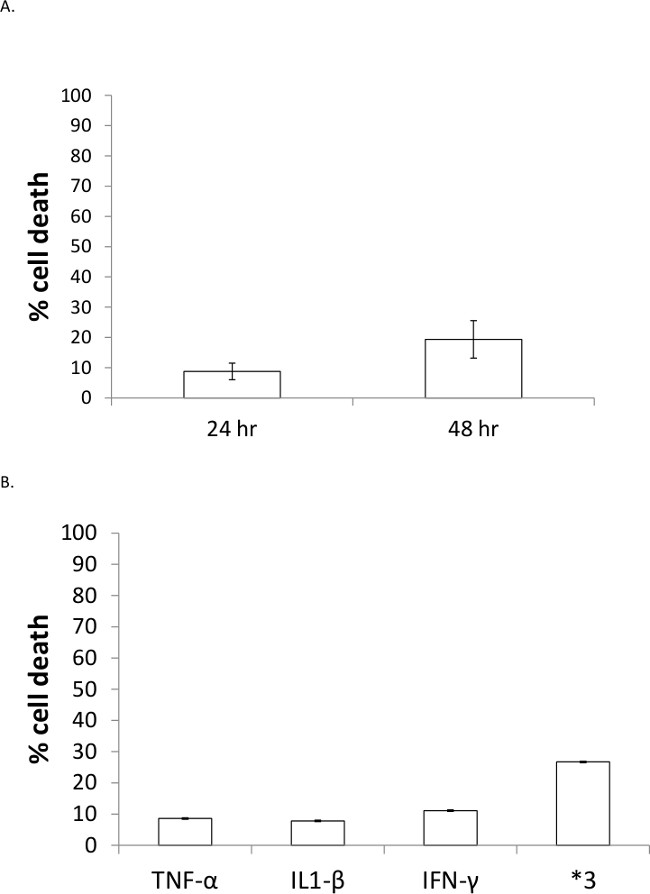
图 1:*3 处理诱导的细胞死亡随时间呈进行性增加,且高于单个细胞因子处理。 (A) HEK-293T 细胞分别处理 24 或 48 小时,使用 MTT 法检测细胞死亡率。数据经未处理对照组归一化,结果表示为 n = 3 次独立实验的三重复测量,误差棒表示标准差。 (B) HEK-293T 细胞分别用单个细胞因子或混合细胞因子(*3)处理 48 小时,通过 MTT 法评估细胞死亡。单个细胞因子组数据来自 n = 5 次独立实验,*3 组来自 n = 6 次独立实验,误差棒表示标准差。
| 沉淀 (AU) | 上清液 (AU) | % 细胞色素 c 释放 | |
| 0 | 0.818 | 0.115 | 12.6 ± 2.27 |
| DMSO | 0.793 | 0.142 | 15.3 ± 2.23 |
表1:培养细胞分离线粒体中细胞色素c的保留情况。 数据为 n = 4 的平均值,± 标准差。
| 肝脏 1 | 肝脏 2 | 脊髓 1 | 脊髓 2 | ||
| RFU | EB | 97,830 | 94,132 | 339,716 | 290,154 |
| F/V | 435,188 | 461,299 | 385,366 | 482,480 | |
| ratio | 4.45 | 4.9 | 1.13 | 1.66 | |
| EB = 实验缓冲液,F/V = FCCP + 缬氨霉素。 | |||||
表2:测量指标 正常小鼠组织中分离的线粒体的ΔΨ。 同时使用两只独立的动物分别分离肝脏和脊髓线粒体(例如 肝脏1和脊髓1来自同一只动物。
| EB | 寡霉素 | 鱼藤酮 | KCN | ADP | F/V | ||
| 相对荧光单位(RFU) | 0 | 4,844 | 12,507 | 12,734 | 9,925 | 10,892 | 4,844 |
| *3 | 6,517 | 13,639 | 12,435 | 10,235 | 13,154 | 6,517 | |
| 倍数差异 | 0 | NA | 2.58 | 2.63 | 2.05 | 2.25 | 2.65 |
| *3 | NA | 2.09 | 1.91 | 1.57 | 2.02 | 2.18 | |
| 下降百分比 | 0 与 *3 比较 | 18.94 | 27.41 | 23.35 | 10.24 | 17.67 | |
| EB = 实验缓冲液;寡霉素 = oligomycin;鱼藤酮 = rotenone;KCN = 氰化钾;F/V = FCCP + 缬氨霉素。 | |||||||
表3:细胞培养分离线粒体实验的原始数据与计算结果。
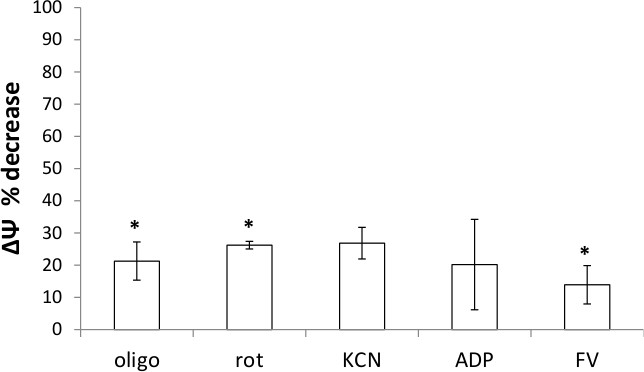
图2:来自细胞因子处理细胞的线粒体膜电位降低。每种处理组相对于对照组的∆Ψ下降百分比(0 vs. *3),根据表2中的计算得出。数据表示n = 3(寡霉素、鱼藤酮和FCCP/缬氨霉素)或n = 2(氰化钾和ADP)的重复反应平均值±标准差。* = 基于倍数差异计算得出的统计学显著性p值;寡霉素、鱼藤酮和FCCP/缬氨霉素的p值分别为0.03、0.01和0.05。
| 脊髓 | 肝脏 | ||
| 差异倍数 | 对照组 | 1.54 ± 0.48 | 3.20 ± 1.56 |
| SOD1 | 1.10 ± 0.30 | 3.12 ± 1.75 | |
| % 下降 | 28.1 | 2.48 | |
| p值 | 0.03 | 0.41 |
表4:通过FCCP + 缬氨霉素评估,源自SOD1小鼠脊髓的线粒体膜电位降低。 数据代表每组4只动物的平均值。
讨论
使用重组细胞因子处理HEK-293T细胞,在48小时后可引起中等程度的细胞死亡(图1)。经TNF-α处理所诱导的细胞死亡程度与先前报道的研究结果相似30,而联合给予多种细胞因子后细胞活力的下降程度大于单用任一细胞因子时的叠加效应,这也与文献报道一致31,32。该细胞培养模型允许灵活调整细胞因子的种类和剂量,并可将细胞因子组合与单个因子进行比较,因而适用于研究细胞因子暴露对肾细胞产生的特异性影响。此外,实验结果具有高度可重复性且易于实现(图2)。需注意的因素包括细胞的融合度。例如,在100%融合度下处理的细胞,相较于在70–80%融合度下处理的细胞,对相同浓度细胞因子的反应较弱。此外,应记录细胞传代次数,因为细胞在培养中存留时间过长(自复苏后超过8–12周)可能会影响其反应性。尽管用细胞因子处理培养细胞会导致细胞活力下降及线粒体功能受损,但该模型本身并非脓毒症的完整模拟。然而,采用更具临床相关性的模型,例如使用从小鼠分离的原代肾细胞,或采用经刺激的THP1细胞自然分泌的细胞因子进行处理33,是本研究工作的自然延伸。鉴于目前对脓毒症期间肾功能衰竭机制的理解仍存在空白,此类细胞培养模型及对线粒体的评估可为揭示其潜在机制提供初步线索,同时也可作为评估药物化合物在预防或干预治疗中有效性的初步平台。
从培养细胞或动物组织中分离线粒体,能够快速评估细胞处理或疾病进展对线粒体健康的影响。该分离与评估方案在技术上并不复杂,且可轻松修改后适用于其他细胞系或原代组织。针对每种样本类型所使用的MIB和EB是良好的起始配方,若特定细胞或组织类型具有不同需求,可依需要进行调整。例如,通常在神经元样本中需添加无脂肪酸的BSA,脊髓组织分离方案中即包含此成分15,34。细胞破碎方法也可根据需要进行调整,例如增加注射器推注次数,或改用手动匀浆替代钻机匀浆,反之亦然。此外,如脊髓线粒体分离流程中所述,对第一次离心所得沉淀物进行再次匀浆,可能有助于获得足够数量的线粒体。评估分离方案是否获得有活性线粒体的一个良好指标是使用细胞色素c ELISA检测。该检测方法是分析细胞色素c释放的快速且简便的替代方案,也可用于评估线粒体经肽段或其他化合物处理后细胞色素c的释放情况19,27。在方案开发过程中,也可使用TMRE进行检测,但重要的是应使用已知健康的样本所分离的线粒体作为对照。此外,在从文献中较少报道的小鼠组织中分离线粒体时,肝脏线粒体可作为阳性对照,并用于建立基线标准。例如,在本方案中,每次实验(包括方案优化和正式实验阶段)均同时切除每只动物的肝脏,并用于线粒体分离。另一个需考虑的因素是分离结束后所获得的线粒体数量。若线粒体浓度为1 mg/ml或更低,则检测结果可能不可靠(VDGM未发表观察结果)。在此情况下,应在进行功能检测前优化起始材料量、MIB配方或破碎方法。一旦成功建立分离方案,所获得的线粒体还可用于其他检测,如总ATP含量和ATP生成能力检测13,14。
本文所述的线粒体功能实验方案,允许使用标准荧光酶标仪间接测量线粒体对膜电位敏感性染料TMRE的摄取。在线粒体分离并加入适当化学试剂后,将其与TMRE共同孵育,随后离心形成沉淀。通过在测定ΔΨ之前对完整细胞或动物进行处理并分离线粒体,可避免多重耐药转运蛋白或ATP通量等混杂变量的影响。上清液中的荧光强度随后被分析,其原理为:线粒体越健康,其∆Ψ越强,因而对TMRE的摄取越多。因此,健康线粒体的上清液中荧光强度应较低,而不健康线粒体的上清液中荧光强度则较高。通过设置仅含EB的处理组,可计算该对照组与解偶联线粒体之间的荧光倍数差异。每次实验运行中另一项重要对照是仅含TMRE的反应组。该对照的结果提供了可能的最大荧光读数。由于加入反应体系的TMRE是新鲜稀释的,因此存在固有的变异性。例如,在方案开发过程中不同时间点获得的仅含TMRE的读数分别为~20,000、25,000和30,000。如果仅含TMRE的信号远高于任何经处理的线粒体样品,和/或经处理的线粒体与未处理组无显著差异,则表明偶联线粒体的分离很可能未成功。按照本方案测得的ΔΨ下降程度,以比值表示时,与先前报道的对照组健康细胞的结果相似2,35。比较从对照组未处理的HEK-293T细胞和*3细胞因子处理细胞中分离的线粒体∆Ψ变化表明,MTT实验中观察到的细胞活力下降对应于线粒体功能的降低。本酶标仪检测方法可轻松应用于从任何来源分离的线粒体,并可用于研究诸如ALS等疾病模型,如本文所示13,14。
已有若干研究采用线粒体特异性荧光染料来检测线粒体外膜通透化(MOMP),这些研究为本微孔板读数法的建立奠定了重要基础。然而,这些研究要么利用完整细胞筛选能够阻断或诱导MOMP的化合物35,36,要么探索新型的膜电位(∆Ψ)感应染料2,或开发其他检测形式,例如基于微流控芯片的流式细胞术37。本实验方案的独特之处在于,详细描述了一种分离并利用线粒体的方法,可快速评估全细胞处理后线粒体对已知改变膜电位(∆Ψ)化合物的响应情况。该方案使用了多种解偶联剂和抑制剂,并表明其中任何一种均可用于评估线粒体功能状态。因此,尽管本研究主要聚焦于细胞应激或进行性细胞功能障碍所引起的线粒体变化,但该方案也可用于通过特定化合物处理,或添加琥珀酸盐和NADH等电子供体,来探究线粒体代谢的变化。
进行分离线粒体评估时的重要注意事项包括:保持处理体积的一致性,将线粒体保存在MIB中,并在即将开始处理前立即用EB稀释,以及在分离后3小时内使用线粒体,以确保其膜电位(∆Ψ)仍处于维持状态。选择TMRE而非其他线粒体特异性荧光染料(如JC-1)的原因在于其可使用低浓度且仅需单一波长即可简便地分析荧光信号。该方法同样可通过荧光显微镜2,38或流式细胞术37进行,但使用酶标仪所需时间更短且优化步骤更少35。此外,与使用克拉克电极22相比(Del Gaizo Moore,未发表观察),本方案技术要求更低、操作更快捷,并且更易于重复。对每种线粒体处理剂进行剂量梯度滴定可能有助于进一步了解线粒体功能,应进行浓度优化实验。线粒体反应的总体积可根据分离过程中获得的样品量以及所需处理反应的数量进行调整。若条件允许,通常采用50 μl的标准体积;然而,即使仅使用20 μl线粒体也能获得可靠结果。
尽管∆Ψ与耗氧量相关,但本实验方法并不直接测量耗氧量。虽然已开发出MitoExpress等荧光氧传感探针,可能旨在避免上述使用克拉克电极的一些缺陷,但每反应成本较高,且每次检测需要较多的线粒体,仍存在局限性。因此,使用TMRE以及经典的ΔΨ解偶联剂或抑制剂具有多项优势。此外,该方法适用于多个样本或多处理条件的批量分析,具有良好的重复性,且对起始材料的需求量较低,或每次反应所需分离的线粒体量较少,使本实验方案更具吸引力。
披露
作者无任何利益冲突需要披露。
致谢
本研究部分得到了美国国家科学基金会(NSF)CHE-1229562 项目资助(VDGM)、伊隆大学本科研究办公室、伊隆大学化学系以及伊隆大学Lumen奖(TL 和 TAD)、伊隆大学学院研究员项目(JAC)和伊隆大学学院荣誉项目(TAD)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| L-谷氨酸 | Sigma | G1251 | 可使用钾盐替代。 |
| 苹果酸 | Sigma | M8304 | 可使用钾盐替代。 |
| KH2PO4 | Sigma | P0662 | |
| K2HPO4 | Sigma | P3786 | |
| EGTA | Sigma | E3889 | |
| Trisma 碱基 | Sigma | T6066 | |
| MOPS | Sigma | M3183 | |
| CCCP | Sigma | C2920 | 用乙醇稀释至 100 μM 作为工作液,-20 °C 保存。 |
| 缬氨霉素 | Sigma | V0627 | 用 DMSO 配制,使用浓度为 5 μM 的工作液,-20 °C 保存。 |
| 蔗糖 | Fisher | S5-500 | |
| KCN | Mallinckrodt | 6379 | 用乙醇配制高浓度储备液,然后用水稀释 |
| 鱼藤酮 | Sigma | R8875 | 剧毒,用乙醇配制。 |
| 寡霉素 | Sigma | O4876 | 剧毒,用乙醇配制。 |
| ADP | Sigma | A2754 | |
| TMRE | Sigma | 8717-25mg | 使用前立即用 EB 稀释 100 μM 储备液。 |
| DMEM | Gibco | 11965-084 | 1× 常规(高葡萄糖)。 |
| 青霉素-链霉素 | Invitrogen | 15140-155 | |
| L-谷氨酰胺 | Fisher | SH3002101 | 分装后于 -20 °C 保存 |
| FBS | Lonza | 14-501F | 美国来源,优质。热灭活后分装,-20 °C 保存。 |
| 胰蛋白酶-EDTA | Sigma | T4049 | |
| DMSO | SIgma | D2650 | |
| 蛋白检测试剂(5×) | Bio-Rad | 500-0006 | 可使用任何蛋白检测试剂替代。 |
| BSA | Fisher | BP1600-100 | 用纯水配制 2 mg/ml 储备液用于蛋白检测。 |
| MTT 粉末 | Sigma | M2128 | 用 PBS 配制 5 mg/ml 储备液,过滤除菌。分装后 -20 °C 保存;4 °C 可保存一周。 |
| Tergitol 溶液(NP-40) | Sigma | NP40S | |
| 重组人 IL-1β | Gibco | PCH08014 | 开启后分装,-20 °C 保存 |
| 重组人 TNF-α | Gibco | PHC3015L | |
| 重组人 IFN-γ | Gibco | PHC4031 | |
| Dulbecco 磷酸盐缓冲液(-/-) | Sigma | D8537 | 确保不含 Mg2+ 和 Ca2+ 离子。 |
| 细胞色素 c ELISA 试剂盒 | R&D systems | DTC0 | 适用于 HEK-293T 细胞的人源试剂。 |
参考文献
- Madeira, V. M. Overview of mitochondrial bioenergetics. Methods In Molecular Biology. 810, 1-6 (2012).
- Sakamuru, S., et al. Application of a homogenous membrane potential assay to assess mitochondrial function. Physiological Genomics. 44, 495-503 (2012).
- Clayton, D. A. Structure and function of the mitochondrial genome. Journal Of Inherited Metabolic Disease. 15, 439-447 (1992).
- Schatz, G. The protein import system of mitochondria. The Journal of Biological Chemistry. 271, 31763-31766 (1996).
- Mayer, A., Neupert, W., Lill, R. Mitochondrial protein import: reversible binding of the presequence at the trans side of the outer membrane drives partial translocation and unfolding. Cell. 80, 127-137 (1995).
- Green, D. R., Kroemer, G. The pathophysiology of mitochondrial cell death. Science. 305, 626-629 (2004).
- Shamas-Din, A., Kale, J., Leber, B., Andrews, D. W. Mechanisms of action of Bcl-2 family proteins. Cold Spring Harbor Perspectives In Biology. 5, a008714(2013).
- Hardwick, J. M., Youle, R. J. SnapShot: BCL-2 proteins. Cell. 138, 404(2009).
- Zoratti, M., Szabo, I. The mitochondrial permeability transition. Biochimica et Biophysica Acta. 1241, 139-176 (1995).
- Wu, C. C., Bratton, S. B. Regulation of the intrinsic apoptosis pathway by reactive oxygen species. Antioxidants & Redox Signaling. 19, 546-558 (2013).
- Kuwana, T., et al. BH3 domains of BH3-only proteins differentially regulate Bax-mediated mitochondrial membrane permeabilization both directly and indirectly. Molecular Cell. 17, 525-535 (2005).
- Joshi, D. C., Bakowska, J. C. Determination of mitochondrial membrane potential and reactive oxygen species in live rat cortical neurons. Journal Of Visualized Experiments. , (2011).
- Vinsant, S., et al. Characterization of early pathogenesis in the SOD1(G93A) mouse model of ALS: part I, background and methods. Brain and Behavior. 3, 335-350 (2013).
- Vinsant, S., et al. Characterization of early pathogenesis in the SOD1(G93A) mouse model of ALS: part II, results and discussion. Brain and Behavior. 3, 431-457 (2013).
- Rajapakse, N., Shimizu, K., Payne, M., Busija, D. Isolation and characterization of intact mitochondria from neonatal rat brain. Brain research. Brain Research Protocols. 8, 176-183 (2001).
- Schmitt, S., et al. A semi-automated method for isolating functionally intact mitochondria from cultured cells and tissue biopsies. Analytical Biochemistry. 443, 66-74 (2013).
- Frezza, C., Cipolat, S., Scorrano, L. Organelle isolation: functional mitochondria from mouse liver, muscle and cultured fibroblasts. Nature Protocols. 2, 287-295 (2007).
- Debatin, K. M., Poncet, D., Kroemer, G. Chemotherapy: targeting the mitochondrial cell death pathway. Oncogene. 21, 8786-8803 (2002).
- Del Gaizo Moore, V., et al. Chronic lymphocytic leukemia requires BCL2 to sequester prodeath BIM, explaining sensitivity to BCL2 antagonist ABT-737. The Journal of Clinical Investigation. 117, 112-121 (2007).
- Del Gaizo Moore, V., Schlis, K. D., Sallan, S. E., Armstrong, S. A., Letai, A. BCL-2 dependence and ABT-737 sensitivity in acute lymphoblastic leukemia. Blood. 111, 2300-2309 (2008).
- Li, N., et al. Mitochondrial complex I inhibitor rotenone induces apoptosis through enhancing mitochondrial reactive oxygen species production. The Journal of Biological Chemistry. 278, 8516-8525 (2003).
- Hynes, J., et al. Investigation of drug-induced mitochondrial toxicity using fluorescence-based oxygen-sensitive probes. Toxicological Sciences : An Official Journal Of The Society of Toxicology. 92, 186-200 (2006).
- Papkovsky, D. B. Methods in optical oxygen sensing: protocols and critical analyses. Methods in enzymology. 381, 715-735 (2004).
- Galluzzi, L., et al. Methods for the assessment of mitochondrial membrane permeabilization in apoptosis. Apoptosis : An International Journal On Programmed Cell Death. 12, 803-813 (2007).
- Gurney, M. E., et al. Motor neuron degeneration in mice that express a human Cu,Zn superoxide dismutase mutation. Science. 264, 1772-1775 (1994).
- Smith, P. K., et al. Measurement of protein using bicinchoninic acid. Analytical Biochemistry. 150, 76-85 (1985).
- Certo, M., et al. Mitochondria primed by death signals determine cellular addiction to antiapoptotic BCL-2 family members. Cancer Cell. 9, 351-365 (2006).
- Hogeboom, G. H., Schneider, W. C., Pallade, G. E. Cytochemical studies of mammalian tissues; isolation of intact mitochondria from rat liver; some biochemical properties of mitochondria and submicroscopic particulate material. The Journal Of Biological Chemistry. 172, 619-635 (1948).
- Hogeboom, G. H., Claude, A., Hotch-Kiss, R. D. The distribution of cytochrome oxidase and succinoxidase in the cytoplasm of the mammalian liver cell. The Journal of Biological Chemistry. 165, 615-629 (1946).
- Marques-Fernandez, F., et al. TNFalpha induces survival through the FLIP-L-dependent activation of the MAPK/ERK pathway. Cell Death & Disease. 4, e493(2013).
- Chao, C. C., Hu, S., Ehrlich, L., Peterson, P. K. Interleukin-1 and tumor necrosis factor-alpha synergistically mediate neurotoxicity: involvement of nitric oxide and of N-methyl-D-aspartate receptors. Brain, Behavior, And Immunity. 9, 355-365 (1995).
- Downen, M., Amaral, T. D., Hua, L. L., Zhao, M. L., Lee, S. C. Neuronal death in cytokine-activated primary human brain cell culture: role of tumor necrosis factor-alpha. Glia. 28, 114-127 (1999).
- Schildberger, A., Rossmanith, E., Weber, V., Falkenhagen, D. Monitoring of endothelial cell activation in experimental sepsis with a two-step cell culture model. Innate Immunity. 16, 278-287 (2010).
- Brown, M. R., et al. Nitrogen disruption of synaptoneurosomes: an alternative method to isolate brain mitochondria. Journal Of Neuroscience Methods. 137, 299-303 (2004).
- Wong, A., Cortopassi, G. A. High-throughput measurement of mitochondrial membrane potential in a neural cell line using a fluorescence plate reader. Biochemical and Biophysical Research Communications. 298, 750-754 (2002).
- Blattner, J. R., He, L., Lemasters, J. J. Screening assays for the mitochondrial permeability transition using a fluorescence multiwell plate reader. Analytical Biochemistry. 295, 220-226 (2001).
- Kataoka, M., Fukura, Y., Shinohara, Y., Baba, Y. Analysis of mitochondrial membrane potential in the cells by microchip flow cytometry. Electrophoresis. 26, 3025-3031 (2005).
- Del Gaizo Moore, V., Payne, R. M. Transactivator of transcription fusion protein transduction causes membrane inversion. The Journal of Biological Chemistry. 279, 32541-32544 (2004).
重印与许可
