在个体发育过程中协调抑制性GABA能突触形成的分子机制在很大程度上尚不清楚。为了研究这些过程,我们建立了一种共培养模型系统,该系统包含胚胎期中等棘状GABA能神经元与稳定转染表达功能性GABAA受体的人胚胎肾293(HEK293)细胞共同培养。
本文内容
摘要
摘要
抑制性神经元在中枢神经系统中发挥调节神经元网络动态性及时空协调的作用。γ-氨基丁酸(GABA)是大脑中主要的抑制性神经递质。它由抑制性神经元的突触前末梢释放,进入一种高度特化的细胞间连接结构——突触,在突触中与位于突触后神经元细胞膜上的GABAA受体(GABAARs)结合。这些GABA门控离子通道的激活会引起氯离子内流,导致突触后电位发生变化,从而降低这些神经元产生动作电位的可能性。
在发育过程中,具有不同形态学、电生理学和神经化学特性的多种抑制性神经元能够识别其靶神经元,并形成包含特定GABAA受体亚型的突触。这种对靶神经元的选择性支配原则引发了一个问题:合适的突触伙伴是如何相互识别的?
为了阐明潜在的分子机制,一种新型 体外 共培养模型系统建立完成,其中中等棘状GABA能神经元(源自胚胎纹状体的高度均一神经元群体)与稳定转染的表达不同GABA受体的HEK293细胞系共同培养AR亚型。该系统中突触可快速、高效且选择性地形成,并易于进行定量分析。我们的结果表明,多种GABAAR亚型在促进突触形成的能力上存在差异,表明这种降低的 体外 模型系统至少可以在部分程度上重现 体内 识别适当突触伙伴及形成特异性突触所需的条件。本文介绍了培养中等棘状神经元以及构建表达GABA的HEK293细胞系的实验方案。A首先描述Rs,然后详细介绍如何将这两种细胞类型进行共培养,并分析突触连接的形成。
引言
GABA 是胚胎大脑中最早发现的神经递质之一,早于最丰富的兴奋性神经递质谷氨酸1。在发育过程中,GABA 使未成熟神经元去极化并产生兴奋,从而在调节细胞增殖、迁移以及神经网络形成中发挥关键作用,且不会引发兴奋性毒性。在成年大脑中,由于细胞内氯离子浓度降低,GABAA 受体通道的反转电位向更负的方向移动。这种变化是由于钾-氯共转运体(KCC2)上调,将氯离子转运出细胞,同时钠-钾-氯转运体(NKCC1)下调,后者具有相反作用所致2。
在大脑中,GABA 主要与 GABAA 或 GABAB 受体结合,分别介导快速或慢速的突触抑制。GABAARs 是一类受体,也被称为异源五聚体离子型或配体门控 Cys-环离子通道。受体激活需要两个 GABA 分子,该受体对氯离子具有通透性,对碳酸氢根离子的通透性较弱。氯离子电导的增加降低了去极化兴奋性事件激活突触后神经元的效果3。
GABAA受体结构多样性长期以来被认为是决定其广泛功能和药理学特性的重要因素。天然GABAA受体是由多种亚基异构体组成的异源五聚体,这些亚基分为:α(1-6)、β(1-3)、γ(1-3)、δ、ε、π和θ3,具有共同的跨膜拓扑结构,包括一个大的N端胞外结构域、四个跨膜结构域(TMs)以及位于第3和第4个跨膜结构域之间的主要胞内结构域4。β3和γ2亚基对突触抑制和生物体存活至关重要,因为缺失这些亚基基因的小鼠在出生后即死亡5,6。相比之下,α亚基的各个异构体对于大脑中与焦虑、镇静、觉醒等不同行为相关的特定突触连接功能具有重要作用,但单独来看并非生命所必需7-9。GABAA受体是多种具有强效镇静、催眠、抗焦虑和抗惊厥作用药物的主要作用靶点,这些药物包括苯二氮䓬类、巴比妥类、神经类固醇和麻醉剂7,10,11。
突触部位的 GABAA 受体通常包含一个 γ2 亚基、两个 β 亚基(最常见为 β2 或 β3)以及两个 α 亚基(α1、α2、α3 或 α5)12,13。主要的突触外受体类型则由 δ 亚基与两个 α 亚基(α4 或 α6)及两个 β 亚基(β2 或 β3)组合而成14。GABAA 受体在轴突、树突或胞体中的亚细胞定位及其插入细胞膜的过程依赖于 β 亚基的存在15,16。然而,不同 GABAA 受体亚型被选择性地整合到特定类型的突触中,与特定 α 亚基(α1、α2、α3 或 α5)的存在密切相关7,17,18。重要的是,在小鼠中敲除 α1 或 α2 亚基会导致抑制性突触发生超微结构改变19。这表明 GABAA 受体本身可能在调控突触形成过程中发挥直接作用。
研究表明,GABA能突触的发育是一系列精确协调的事件,其中不同类型的抑制性轴突所接触的神经元靶点,以及在每类抑制性突触处聚集的受体均具有选择性,并在功能上相互匹配17,20-22。GABA能突触这种特异性的基本原理引发了一个问题:在突触连接形成初期,突触前与突触后组分如何相互识别?
体外共培养实验已成功用于研究突触形成的一些机制,并检验单个跨越突触间隙蛋白在此过程中的作用。其中一对常见的、可双向发挥作用以介导突触形成与成熟的跨突触相互作用蛋白组合是神经连接蛋白(Neurexins, Nrxns)和神经配体蛋白(Neuroligins, NLs)。Nrxns 是突触前蛋白,其在层粘连蛋白-神经连接蛋白-性激素结合蛋白结构域内存在可变剪接,从而产生多种不同的亚型23。尽管 Nrxns 还可与其他蛋白相互作用,但 NLs 被认为是其普遍存在的突触后配体24。这些蛋白共同作用,使突触前膜与突触后膜紧密且稳定地贴合在一起25。其中最丰富的两种亚型为 NL-1 和 NL-2,分别存在于兴奋性突触和抑制性突触中26。最早用于研究跨突触蛋白相互作用的共培养模型系统之一,采用不同类型的非神经元细胞(最常见的是永生化细胞系,如人胚胎肾 HEK 293 细胞)过表达 NL-2。当这些细胞与脑桥神经元共培养时,可在 HEK 细胞表面附近观察到突触前蛋白的聚集,表明形成了类似突触的连接结构。在该共培养体系中加入可溶性 β-神经连接蛋白后,此类连接结构的形成受到抑制,提示 Nrxns 与 NLs 之间的跨突触相互作用对于突触连接的形成是必需的27。此外,在与解离的海马谷氨酸能和 GABA 能神经元共培养时,于 COS(CV-1(灵长类来源)Origin,并携带SV40 遗传物质)细胞中瞬时表达 β-神经连接蛋白,可诱导在两类细胞接触部位出现突触后蛋白 gephyrin 以及 GABAAR 亚基 γ2 和 α2 的表达28。另一个用于研究突触形成的共培养模型实例,是将瞬时转染了 GABAAR 亚基 α2/β3/γ2 和 NL-2 的 HEK293 细胞,与一群混合的下丘脑神经元共培养29。该研究得出结论:NL-2 的表达是抑制性突触形成的绝对必要条件。
然而,在最近的一项共培养研究中,稳定转染的α1/β2/γ2 GABAA在与GABA能中等棘状神经元共培养时,HEK293细胞中的Rs足以诱导功能性突触的形成,无需额外的跨突触或突触后黏附蛋白。然而,当NL-2与GABA共同表达时,突触的形成数量和强度均显著增强。ARs30。这表明该共培养模型系统相较于先前报道的模型系统具有优势,最显著的是突触接触检测的灵敏度和可靠性提高。促进突触接触检测整体改进的两个重要因素是:i)使用稳定转染的HEK293细胞系,其对GABA受体亚基具有高表达水平且表达稳定;ii)采用高分辨率成像与自动化图像分析相结合的方法,以更精确地识别突触标记物的共定位。AR亚基在单个细胞表面的表达。这种一致性有助于在不同共培养条件下进行定量比较。ii) 采用从胚胎纹状体培养得到的纯GABA能中等棘状神经元群体31 消除了使用混合神经元群体所带来的复杂性和模糊性,从而能够例如选择最合适的突触后 GABAA可用于突触形成过程中相互比较的R型。
人们认为,突触的形成涉及突触前和突触后细胞黏附复合体内的多种跨突触信号。由于突触信号具有双向性,且细胞黏附分子种类繁多,因此很难确定参与突触形成的關鍵组分。因此,将单一细胞黏附蛋白转染至非神经元细胞中(在本例中,为GABA能中等棘状神经元最常见的两种突触后靶细胞) 体内α1/β2/γ2 或 α1/β3/γ2 GABAARs32极大地降低了突触后表面可获取的跨突触信号的复杂性,从而能够对该蛋白在促进突触形成中的功效进行精确的定量分析。
方案
根据英国国内事务部[以及1986年11月24日欧洲共同体理事会指令(86/609/EEC)]的指南,将Sprague-Dawley大鼠或BAB/c近交系小鼠(Harlan,英国;使用的妊娠雌性动物数量为30只)进行饲养并实施安乐死。该项目已正式获得伦敦大学学院药学院伦理委员会的批准。
1. 仪器、培养基和培养皿的准备
- 开启超净工作台,并用70%乙醇清洁,以确保始终在无菌条件下操作。
- 配制HEK293细胞培养基,包含pH 7.4的杜氏改良伊格尔培养基(DMEM,500 ml)、L-谷氨酰胺(2 mM)、青霉素(50 Units/ml)、链霉素(50 μg/ml)和胎牛血清(10%)。
注意:青霉素和链霉素具有刺激性。 - 配制无血清神经元培养基,包含pH 7.4的Neurobasal培养基(500 ml)、B27添加剂(25 ml)、L-谷氨酰胺(2 mM)、青霉素(50 Units/ml)、链霉素(50 μg/ml)和葡萄糖(6 mM)。
- 配制500 ml HEPES缓冲盐溶液(HBSS),包含10倍浓度HBSS储备液(50 ml)、HEPES(1 M)(5 ml)和水(445 ml),pH调至7.4。
- 将磷酸盐缓冲液(PBS,pH 7.4;1 L)、水(1 L)、玻璃盖玻片(直径13 mm)和玻璃巴斯德吸管进行高压灭菌处理,以实现灭菌。
2. 表达α1/β3/γ2-GABAA受体的HEK293稳定细胞系的制备
- 接种 2×10⁶ 将HEK293细胞接种至10 cm无菌组织培养皿中,于37 °С、5%二氧化碳(CO₂)湿润培养箱中孵育2) 气氛(CO2 在培养箱中孵育过夜,以达到70-90%的融合度。
- 次日,用GABA转染HEK293细胞AR α1 亚基 cDNA 在 pcDN 3.1(+) 表达载体,包含G418二硫酸盐(表1)抗性基因,以及GABAAR β3 亚基 cDNA 在 表达载体,包含博莱霉素D1(phleomycin D1)表1) 抗性基因(均受人巨细胞病毒即时早期(CMV)启动子调控),采用阳离子脂质体配方,可与带负电荷的核酸分子形成复合物(表1按照制造商提供的方案进行。
- 简而言之,加入500 μl低血清培养基(pH 7.4; 表1)和每种cDNA质粒7.5 μg加入无菌15 ml离心管中,随后加入15 μl脂质体转染缓冲试剂,轻轻混匀,室温静置5 min。
- 向该混合物中加入 8.75 μl 脂质体转染试剂,轻轻混匀,室温静置 30 分钟。随后,加入 3 ml HEK293 细胞培养基(不含抗生素),用移液器将离心管中的内容物上下吹打两次,逐滴加入至生长于 10 cm 组织培养皿中的细胞,于 37 °С、5% CO₂ 湿润环境中孵育 48 小时。2 大气(CO2 培养箱)
- 用无菌 PBS(pH 7.4)轻轻洗涤 HEK293 细胞,并将转染后的 HEK293 细胞按以下比例稀释接种至新的 10 cm 组织培养皿中:1:3、1:5、1:7、1:10、1:15 和 1:20。此步骤可确保细胞不会过度汇合。
- 开始筛选同时表达GABA的HEK293细胞A通过向培养基中添加每种抗生素筛选标记物G418和博来霉素D1至终浓度800 µg/ml,筛选R亚基。将细胞置于37 °C、含5% CO₂的湿润培养箱中孵育。2 大气(CO2 培养箱)并每2天更换含抗生素的培养基(10 ml)。
- 当出现微小的白色菌落(通常约7天后),从每个培养皿中仔细挑选单个菌落,使用无菌的P1000移液器吸头收集。将其转移至含500 µl培养基的24孔组织培养板中的一个孔内,通过上下吹打使菌落充分重悬。确保每个孔中仅转移一个菌落(建议总共转移5–20个菌落)。将细胞置于37 °С、湿度控制、5 % CO₂的培养箱中孵育2 大气(CO2 培养箱)并每2天更换一次含抗生素的培养基。
- 当细胞集落融合度达到70-80%时,轻轻吹打培养基,使细胞从24孔组织培养板底部脱落。将细胞悬液转移并分至6孔组织培养板中的2个孔内。将细胞置于37 °C、5% CO₂的湿润培养箱中孵育。2 大气(CO2 培养箱)并每2天更换一次含抗生素的培养基。
- 当细胞融合度达到70 - 80%时,收集来自两个含有同一单克隆来源细胞的培养孔中的其中一个孔的细胞,并制备蛋白裂解液。简要而言,用pH 7.4的PBS洗涤细胞2次,加入200 µl含2%十二烷基硫酸钠(SDS)的PBS(pH 7.4)。收集裂解液并转移至微量离心管中。使用BCA蛋白检测试剂测定蛋白浓度(参见 表1) 按照制造商的说明书进行操作。分析GABA的α1和β3亚基的表达情况A 通过使用亚基特异性抗体(兔抗α1特异性抗体和兔抗β3特异性GABA受体抗体)进行SDS/PAGE及免疫印迹分析受体AR抗体,参见 表1 有关这些抗体的信息)。
- 将剩余孔中仅呈阳性的克隆从原孔中解离并转移至较大的6 cm组织培养皿中。在37 °С、5% CO₂的湿化培养箱中孵育细胞。2 大气(CO2 培养箱)并每2天更换一次含抗生素的培养基。
- 在抗生素筛选条件下,通过将细胞转移至10 cm组织培养皿,最终转移至组织培养瓶(T-75培养瓶),逐步扩增细胞克隆。将细胞置于37 °C、5% CO₂的湿化培养箱中孵育。2 大气(CO2 培养箱)并每2天更换含抗生素的培养基。
- 将每个克隆的70,000个细胞接种于玻璃盖玻片(直径13 mm)上,固定细胞后分析GABA的细胞表面表达及其共定位A通过免疫荧光检测R亚基。
- 选择表达高水平GABA受体α1和β3亚基的HEK293细胞阳性克隆A 受体,平板 2 x 10⁶ 将细胞接种至一个10 cm无菌组织培养皿中,在37 °С、湿润的5% CO₂环境中培养2 大气(CO2 培养箱)中过夜。确保细胞始终在含有抗生素(G418 和 Phleomycin D1)的培养基中孵育。
- 次日,用GABA转染HEK293细胞AR γ2s 亚基 cDNA,位于 pcDNA™ 3.1 载体中(+) 表达载体,携带潮霉素B抗性基因,使用非脂质体脂质转染试剂表1).
注意: 该转染方法可提高在抗生素持续筛选条件下生长缓慢的稳定细胞系中外源蛋白的存活率和表达效率。 - 在无菌的15 ml离心管中,加入250 μl增强剂和DNA浓缩缓冲液(表1) 和 1.4 μg 的 γ2s GABAA 受体亚基cDNA。加入11.2 μl增强剂,涡旋混匀1秒,室温静置5分钟。
- 加入35 μl非脂质体脂质转染试剂,涡旋振荡10秒,室温静置10分钟。加入3 ml含G418/博来霉素D1的培养基,用移液器将离心管中的内容物轻轻吹打混匀2次,然后逐滴加入生长于10 cm组织培养皿中的细胞。将细胞置于37 °C、湿度饱和、含5% CO₂的培养箱中孵育48小时。2 大气(CO2 培养箱)
- 用无菌 PBS 轻柔洗涤细胞,然后按以下比例将细胞稀释至新的 10 cm 组织培养皿中:1:3、1:5、1:7、1:10、1:15 和 1:20。
- 通过向含有G418/博来霉素D1的培养基中添加800 µg/ml的抗生素筛选标记物潮霉素B,开始筛选表达γ2s亚基的α1/β3-HEK293细胞。每2天用新鲜的含G418/博来霉素D1/潮霉素B培养基(10 ml)更换旧培养基。
- 重复 步骤 2.7–2.12在含有G418/博来霉素D1/潮霉素B的细胞培养基中持续筛选。
- 将阳性克隆保存于 -140 °C 的无抗生素细胞培养基中,并加入 10% 二甲基亚砜(DMSO),以备后续使用。
- 检测α1、β3和γ2s GABA受体亚基的表达水平A通过免疫印迹和免疫荧光检测各克隆在解冻后的R亚基表达,因为抗生素筛选条件下细胞存活率降低可能导致表达发生变化。
3. HEK293 细胞系的维持
- 将一管对照HEK293细胞或表达α1/β2/γ2-GABAARs(表1)或α1/β3/γ2-GABAARs的细胞(如上所述)解冻,加入至15 ml无菌离心管中的10 ml细胞培养基中。在440 × g条件下离心5分钟,以去除过量的DMSO。
- 弃去上清液,并将细胞重悬于1 ml新鲜细胞培养基中。
- 先向经多聚-D-赖氨酸(0.1 mg/ml)包被的10 cm组织培养皿中加入9 ml新鲜细胞培养基,再加入1 ml重悬的细胞。轻轻左右摇晃以分散细胞,并在37 °C、含5% CO2的湿润环境(CO2培养箱)中孵育。
- 次日,吸除培养基以去除细胞碎片,并更换为10 ml新鲜HEK293细胞培养基。
- 使用抗生素筛选稳定细胞系,以去除不表达GABAAR亚基因而也不表达抗生素抗性标记物的细胞。对于α1/β2/γ2稳定细胞系,将正常培养基更换为含G418(800 μg/ml)的新鲜细胞培养基;对于α1/β3/γ2细胞系,则更换为含G418(800 μg/ml)、博来霉素D1(Phleomycin D1,800 μg/ml)和潮霉素B(Hygromycin B,800 μg/ml)的新鲜细胞培养基。注意! G418具有刺激性,潮霉素B具有腐蚀性、毒性并具刺激性。
- 当细胞融合度达到>70%时,以较低密度传代至新的组织培养皿中。吸除10 ml细胞培养基,用pH 7.4的PBS短暂洗涤两次。加入1 ml胰蛋白酶-EDTA溶液(含蛋白酶胰蛋白酶(0.05%胰蛋白酶)和Ca2+螯合剂EDTA(0.02%)的PBS溶液,pH 7.4),使细胞从培养皿上脱落。注意! 胰蛋白酶-EDTA溶液具有刺激性。
- 向培养皿中加入含适当抗生素的10 ml细胞培养基,吸打混匀收集细胞。在440 × g条件下离心5分钟,弃上清后将细胞重悬于5 ml细胞培养基中。
- 按1:10比例将细胞传代至含有新鲜细胞培养基和适当抗生素的新组织培养瓶(T-75培养瓶)中。在37 °C、含5% CO2的湿润环境中(CO2培养箱)孵育细胞,每两天更换一次培养基。当细胞融合度超过>70%时进行传代(参见步骤2.8)。
4. GABA能中型多棘神经元培养的制备
- 在无菌条件下,准备24孔板,孔内放置经多聚-L-赖氨酸(0.1 mg/ml)包被的盖玻片(直径13 mm),于37 °C、5 % CO₂湿润环境中孵育2 大气(CO2 培养箱)
- 次日,用移液器吸去多余的聚-L-赖氨酸,用无菌水进行两次短暂的10秒洗涤和两次5分钟洗涤。加入层粘连蛋白(0.01 mg/ml),于37 °С、5% CO₂湿化培养箱中孵育过夜。2 大气(CO2 培养箱)
- 用70%乙醇对解剖区域进行消毒,并准备一套解剖工具,如弯头和直头组织镊、剪刀和镊子,将其放入70%乙醇中,以彻底灭菌解剖器械。
- 将用 CO 处死的妊娠大鼠/小鼠2 仰卧固定,并用70%乙醇清洁腹部皮肤。用镊子夹起皮肤,剪开腹壁的皮肤、肌肉和腹膜,暴露内脏器官及带有胚胎的子宫。从子宫中取出胚胎(E16-17),置于含预冷PBS的培养皿中。
- 将胚胎置于超净工作台中,进行断头处理,并将头部收集至含有预冷HBSS的新培养皿中。
- 在解剖显微镜下,使用弯头和直头镊子分离出脑组织。将脑组织转移至一个新的含有预冷HBSS的培养皿中。
- 分离两个大脑半球,小心去除脑膜。沿海马线切开,剥离皮层以暴露纹状体。观察位于半球前部、呈条纹状的白色结构即为纹状体。
- 分离纹状体并将其切成非常小的组织块(直径1 - 2 mm),使用火焰抛光的巴斯德移液管将组织收集至无菌的15 ml离心管中,总体积为1 ml。火焰抛光可确保组织在收集过程中不受损伤。
- 使用巴斯德移液管的火焰抛光尖端,吸取细胞并吹打8至10次。换用一支新的、尖端经火焰抛光后直径约为原始直径30%(1 mm)的移液管,将溶液进一步吹打4至6次,直至溶液呈现均一状态。
- 使用100 μm尼龙细胞滤网将细胞过滤至新的无菌离心管中。
- 使用血细胞计数板对细胞进行计数,将70,000个细胞接种至24孔组织培养板的每孔中,每孔体积为500 µl神经元培养基。轻轻左右摇晃培养板以混匀,随后在37 °С、5% CO₂的湿润培养箱中孵育。2 大气(CO2 孵育器)中孵育14天 体外 (体外培养天数)
- 7天后,检测神经元培养物的纯度;若存在胶质细胞,则向孔中加入阿糖胞苷(cytosine β-D-arabinoside, Ara-C;5 μM)以抑制其增殖。操作时,从每孔中移除250 μl神经元培养基(pH 7.4),并加入含Ara-C的250 μl新鲜培养基。 警告! 阿糖胞苷是一种刺激物。
5. 共培养制备
- 在神经元培养的第11天,在无菌条件下用聚-D-赖氨酸(0.1 mg/ml)包被6孔板,并在37 °C、5% CO2的湿化培养箱(CO2培养箱)中孵育过夜。
- 次日(神经元培养第12天),吸除多余的聚-D-赖氨酸,用无菌水短暂洗涤孔板2次,再用无菌水洗涤5分钟2次,然后加入新鲜细胞培养基(不含抗生素),使孔板表面吸附培养基中的少量血清进行包被。
- 从组织培养瓶(T-75)中吸除培养基,用PBS冲洗细胞两次,然后加入1 ml Ca2+/Mg2+螯合剂EDTA(0.48 mM),该试剂可温和且非酶解地使细胞解离。轻轻振荡培养瓶,使细胞从瓶底脱落。
- 加入10 ml细胞培养基(不含抗生素,以免干扰转染),吹打收集细胞并转移至无菌离心管中。在低速台式离心机中以440 × g离心5分钟,沉淀细胞。
- 弃去上清液,将细胞重悬于1 ml新鲜细胞培养基中。使用血细胞计数板对细胞进行计数,并以每孔3 × 10⁵个细胞的密度接种至6孔板中。轻轻振荡混匀,于37 °C、5% CO2的湿化培养箱(CO2培养箱)中孵育24小时。
- 次日(神经元培养第13天),使用脂质体转染试剂对HEK293细胞进行mCherry cDNA(克隆于pcDNA3表达载体中)的瞬时转染。简要操作如下:在无菌微量离心管中加入500 μl低血清培养基和5 μg mCherry cDNA。加入5 μl脂质体缓冲试剂,轻轻混匀后室温静置5分钟。
- 加入8.75 μl脂质体转染试剂,轻轻混匀后室温静置30分钟。用移液器将微量离心管中的液体上下吹打两次,逐滴加入6孔组织培养板的各孔中,然后于37 °C、5% CO2的湿化培养箱(CO2培养箱)中孵育。
- 次日(神经元培养第14天),从6孔板的每孔中吸除HEK293细胞培养基,每孔用PBS(pH 7.4)短暂洗涤两次。每孔加入300 μl Ca2+/Mg2+螯合剂EDTA(0.48 mM)和200 μl胰蛋白酶-EDTA溶液(0.02 – 0.48 mM),于37 °C孵育5分钟。
- 每孔加入1 ml新鲜HEK293细胞培养基(以终止胰蛋白酶活性),将脱落的细胞吸出并转移至无菌15 ml离心管中。室温下以440 × g离心5分钟,弃去上清液。将细胞沉淀重悬于500 μl神经元培养基(pH 7.4)中。
- 使用血细胞计数板对细胞进行计数,并以每孔30,000个细胞的密度接种至含有神经元的24孔组织培养板中。轻轻振荡培养板以分散细胞,将共培养体系置于37 °C、5% CO2的湿化培养箱(CO2培养箱)中孵育24小时。
6. 突触连接及其活性的分析
- 共培养23小时后,使用与荧光染料(Cy5,见表1)偶联的抗突触素膜腔域特异性抗体,通过依赖于活性的摄取方法,检测GABA能中型棘状神经元与HEK293细胞之间“活性”接触的形成。
注意:该抗体仅在突触小泡腔与细胞外空间连通时,才能接触到其结合的突触素膜腔域。这种情况特异性地发生在神经递质释放过程中,因此该抗体是标记活性突触前终末的优良标志物。 - 首先用神经元培养基(Neurobasal A培养基,pH 7.4;见表1)冲洗共培养物,然后加入以神经元培养基(Neurobasal A培养基,pH 7.4)按1:50稀释的Cy5标记小鼠抗突触素抗体,孵育30分钟。在此期间,将细胞置于37 °C、5% CO2的湿润环境中孵育(CO2培养箱)。
- 为阻断抗体的进一步进入,用冷的正常PBS(pH 7.4)快速洗涤共培养物三次:第一次用冷的正常PBS(pH 7.4),第二次用含200 mM NaCl的冷PBS(pH 7.4),第三次再用冷的正常PBS(pH 7.4)。
- 加入300 μl含4%多聚甲醛和4%蔗糖的PBS溶液(PFA,pH 7.4),振荡固定细胞10分钟。随后用PBS(pH 7.4)短暂洗涤两次,再进行两次较长时间的10分钟洗涤。
- 每孔加入0.3 M甘氨酸,振荡处理10分钟,以淬灭PFA的活性。
- 用PBS(pH 7.4)短暂洗涤两次,再进行两次10分钟的较长洗涤,然后每孔加入300 μl封闭液(含1% (w/v) 牛血清白蛋白(BSA)的PBS,pH 7.4),以减少抗体的非特异性结合。
- 吸除封闭液,加入针对γ2亚基N端结构域的豚鼠抗GABAAR-γ2抗体33(以PBS,pH 7.4按1:3,000稀释),4 °C孵育过夜。
- 次日,吸除各孔中的初级抗体,用PBS短暂洗涤两次,再进行两次10分钟的较长洗涤。
- 在封闭液中加入0.1% Triton X-100,室温孵育30分钟,以对细胞进行透化处理。
- 用PBS(pH 7.4)短暂洗涤两次,再进行两次10分钟的较长洗涤,然后加入小鼠抗谷氨酸脱羧酶(GAD)65抗体(1:4,000,表1)或小鼠抗突触素I抗体(1:1,000,表1),室温孵育120分钟。
- 用PBS(pH 7.4)短暂洗涤两次,再进行两次10分钟的较长洗涤,随后加入封闭液,室温孵育30分钟。
- 将适当的二抗(通常为与Cy5偶联的山羊抗豚鼠IgG、与Alexa Fluor 488偶联的山羊抗小鼠IgG或与Alexa Fluor 405偶联的山羊抗小鼠IgG,浓度均为2 μg/ml)在21,910 × g离心10分钟以去除抗体聚集体,然后将抗体按1:750稀释于封闭液中。将稀释后的抗体加入相应孔中,室温孵育1小时,并用铝箔包裹以避免荧光染料暴露于光线下导致光漂白。
- 最后,用PBS(pH 7.4)短暂洗涤两次,再进行两次10分钟的较长洗涤,以去除未结合的二抗。使用封片试剂(Prolong Gold,表1)封片,每盖玻片约加10 µl。在避光条件下室温静置24小时使其固化,然后转移至4 °C长期保存。
- 使用配备63X油镜的激光共聚焦显微镜分析样品。调整光照强度和探测器增益,避免信号饱和。
- 观察潜在的类似突触接触结构,这些区域表现为突触前终末(GAD65、突触素I或Cy5标记的抗突触素阳性)与通过微分干涉差(DIC)或mCherry荧光指示剂可视化的突触后HEK293细胞之间的共定位。
- 利用成像软件,通过每个细胞4–5 μm深度范围内的Z轴光学切片序列(8–10层),对潜在的类似突触接触结构进行计数。
结果
该神经元-HEK293细胞共培养模型系统的实验方案已经过精细优化,以确保细胞的最佳存活。在此系统中,突触样结构的形成及其分析依赖于所有三种GABAAR亚基稳定且一致地表达,并组装成功能性受体。因此,在将HEK293细胞加入神经元培养物之前,必须通过免疫细胞化学分析检测HEK293细胞表面三种亚基的表达情况。在本实验中,使用特异性识别这些亚基胞外表位的亚基特异性抗体,检测到α1、β2和γ2亚基(图1A)或α1、β3和γ2亚基(图1B)在细胞表面的表达。结果表明,这些亚基在HEK293细胞表面具有高度的共定位。
在确认GABAAR亚基在HEK293细胞表面的表达及其共定位后,将表达α1/β2/γ2 GABAAR亚基的HEK293细胞与培养14天(体外培养14天,DIV)的中型棘状神经元共培养。共培养细胞孵育24小时后,经固定并利用免疫细胞化学和共聚焦显微镜进行分析。接触点分析显示,GAD65阳性的GABA能轴突末梢仅与对照组HEK293细胞形成零星接触(图2A,2B)。在加入HEK293细胞后4小时,每个HEK293细胞上的接触点数量为7.3 ± 0.9,24小时后减少至每个HEK293细胞5.5 ± 0.5个连接(均值±标准误)。相比之下,GAD65阳性的GABA能轴突末梢与表达GABAAR的HEK293细胞形成了大量类似突触的接触。在加入HEK293细胞后4小时,每个HEK293细胞的接触点数量为28.3 ± 4.7,共培养24小时后进一步增加至每个HEK293细胞52.1 ± 6.3个(均值±标准误)(图2A,2B)。
为了确定这些类似突触的接触是否具有“活性”, 即 为支持囊泡递质释放,在孵育23小时后,向共培养体系中加入一种针对突触囊蛋白(synaptotagmin)囊腔结构域的Cy5标记抗体。该抗体仅在神经递质释放过程中,当突触囊泡腔与突触间隙的细胞外液之间形成孔道时,才能进入突触前神经末梢。递质释放后,该孔道关闭,使与突触囊蛋白结合的Cy5荧光抗体保留在囊泡内部。因此,只有实际参与神经递质释放的囊泡才会被该抗体标记。在这些实验中,对照组HEK293细胞与中等棘状神经元末梢之间的接触几乎没有任何“活性”,表现为突触前标记物GAD65/突触囊蛋白荧光与HEK293细胞中的mCherry荧光缺乏共定位图3A)。相比之下,中等棘状神经元末端与表达α1/β2/γ2的HEK293细胞之间形成了许多“活性”接触,这通过GAD65/synaptotagmin与特异性在HEK293细胞中表达的mCherry之间高度共定位得以证实(图 3B).
为了检测不同亚型的GABAAR 还可促进类似突触的形成 体外我们共培养了表达α1/β3/γ2的HEK293细胞与中等棘状神经元。同样,在共培养24小时后,对照组HEK293细胞极少接收到突触素阳性突触前终末的接触,平均每HEK293细胞仅形成10.8 ± 0.48(均值 ± 标准误)个接触图 4A 左侧,4B)。然而,表达α1/β3/γ2 GABA的HEK293细胞ARs 与中等棘状神经元突触素阳性突触前终末形成的类似突触的接触显著增多,在共培养 24 小时后,每 HEK293 细胞达到 25.3 ± 0.27(均值 ± 标准误)个接触图 4A 右侧,4B)。这表明 α1/β3/γ2 GABAA在HEK293细胞中表达的Rs也能够促进突触接触的形成,尽管其效力低于含有α1/β2/γ2的GABA受体A卢比
这些实验表明,我们实验室建立的共培养模型系统能够实现对突触接触形成的定量分析 体外 以及对不同亚型GABA受体功效的评估A此过程中的 Rs。这些实验进一步证明了 GABAARs 除了作为 GABA 能突触的关键功能组分外,还可能在抑制性神经元与适当神经元靶细胞之间突触接触的识别与形成过程中发挥关键作用,且该作用独立于其他突触黏附蛋白。

图1. 稳定表达GABAAR α1/β2/γ2 或 α1/β3/γ2 的HEK293细胞系中亚基表达的免疫细胞化学分析。 使用识别GABAAR亚基胞外结构域的抗体标记细胞表面表达的受体。(A) 高水平表达α1(Alexa Fluor 488)、β2(Alexa Fluor 555)和γ2(Cy5)亚基的HEK293细胞系。(B) 高水平表达α1(Alexa Fluor 488)、β2(Alexa Fluor 555)和γ2(Cy5)亚基的HEK293细胞系。比例尺:10 μm。请点击此处查看该图的放大版本。

图2. GABA能中型棘神经元在共培养条件下与表达α1/β2/γ2的HEK293细胞形成类似突触的接触。(A) 使用抗GAD65抗体对突触前终末进行荧光标记(绿色),HEK293细胞则通过mCherry(红色,左图)或GABAAR γ2亚基(蓝色,右图)进行标记,结果显示这些标记物之间存在共定位点,表明在共培养4小时或24小时后形成了类似突触的接触结构。比例尺:10 μm。(B) 类似突触接触的定量分析。根据微分干涉差(DIC)成像所显示的细胞形态和/或mCherry表达来识别HEK293细胞,并利用成像软件在每个细胞的Z轴层扫图像系列(每细胞8–10层)中人工计数GAD-65阳性斑点(绿色)与HEK293细胞表面之间的接触数量,结果以每个细胞的接触数表示。柱状图显示了中型棘神经元与对照组HEK293细胞(浅灰色)或α1/β2/γ2-HEK293细胞(黑色)在共培养4小时和24小时后的接触数量(均值±标准误,n = 8,来自两次独立实验)。本图经Fuchs et al. (2013)30 修改。 请点击此处查看该图的放大版本。

图 3. GABAA受体促进活性突触连接的形成。 在中型棘状神经元末梢(GAD65阳性,Alexa Fluor 405 青色)与 (A) 对照组 HEK293 细胞或 (B) HEK293-α1/β2/γ2 细胞共培养24小时后形成的类突触接触的免疫标记图像,两种HEK293细胞均瞬时转染了mCherry质粒(红色)。活性突触连接通过突触小泡腔域特异性抗突触素抗体(Cy5)与GAD65特异性抗体在突触前末梢的共定位,以及mCherry在HEK293细胞中的表达来识别。比例尺:10 μm。 请点击此处查看该图的放大版本。
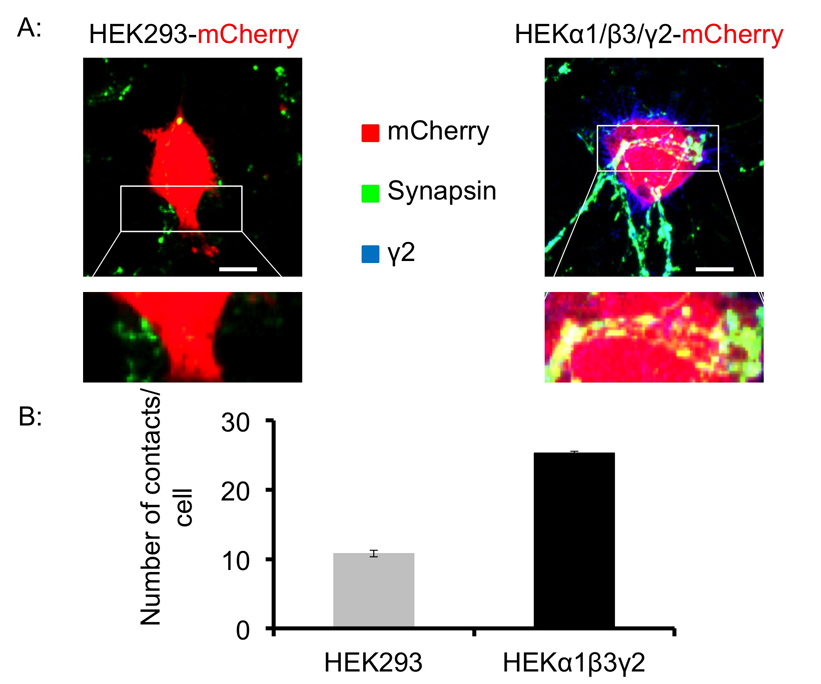
图 4. GABA 能中等棘状神经元在共培养条件下与表达 α1/β3/γ2 亚基的 HEK293 细胞形成类似突触的接触。(A) 使用抗突触素 I 抗体(绿色)对突触前末梢进行荧光标记,并对对照组 HEK293 细胞(左)或表达 α1/β3/γ2 的 HEK293 细胞(均瞬时转染 mCherry,红色)进行染色,结果显示在共培养 24 小时后,这些标记物之间存在共定位点,表明形成了类似突触的接触结构。比例尺:10 μm。(B) 类似突触接触的定量分析。通过 mCherry 表达鉴定 HEK293 细胞,并利用成像软件在每个细胞的 Z 轴层扫图像系列(每细胞 8–10 层)中人工计数突触素 I 阳性斑点(绿色)与 HEK293 细胞表面之间的接触数量,结果以每个细胞的接触数表示。该图显示了中等棘状神经元与对照组 HEK293 细胞(浅灰色)或 α1/β3/γ2-HEK293 细胞(黑色)在共培养 24 小时后的接触数量(均值 ± 标准误,n = 每组 8–12 个细胞,来自两次独立实验)。请点击此处查看该图的高清版本。
讨论
尽管本实验方案在技术上并不难操作,但必须遵循若干关键步骤,才能获得最准确且可重复的共培养实验结果。首先,培养的中型多棘神经元必须以最佳密度接种。若接种过稀,神经元生长会显著减慢,存活率也会大幅降低;反之,若接种过密,神经元容易发生聚集,从而影响与HEK293细胞接触的分析。其次,建议在将稳定表达GABAA受体的HEK293细胞接种至共培养体系前, transiently 转染表达一种荧光报告蛋白(如GFP或mCherry)。这有助于可靠识别HEK293细胞,避免因其形态和大小与神经元培养中偶见的存活胶质细胞相似而造成误判。为实现GFP或mCherry cDNA的高效转染,HEK293细胞系必须处于对数生长期,并以适当密度接种于6孔板中。接种过稀再进行转染会导致细胞生长不良,而接种过密则会影响细胞对cDNA的摄取。理想情况下,细胞应在转染当天达到70%至90%的融合度。第三,必须针对所使用的每种细胞系优化转染条件,因为不同细胞系的敏感性存在差异。这是由于GABAA受体在HEK293细胞中的组成型表达会降低细胞存活率,并削弱其在转染后的恢复能力。此外,细胞存活情况还取决于HEK293细胞中表达的GABAA受体亚型类型,某些细胞系明显比其他细胞系更敏感。使用脂质体试剂转染是快速增殖细胞系中表达外源蛋白的优选方法,因其可同时实现较高的转染效率和表达水平。然而,该试剂对生长缓慢的细胞系损伤过大,因此我们通常对这类细胞使用非脂质体转染试剂。该试剂的作用机制与脂质体试剂类似,但实现高效转染所需的DNA用量显著减少,从而提高了细胞存活率(约80%至90%,而使用脂质体试剂时约为60%),但转染效率较低(约60%)。最后,添加至神经元培养物中的对照HEK293细胞或表达α1/β2/γ2的HEK293细胞数量也需优化。加入细胞过少会导致HEK293细胞与神经元之间的接触难以有效分析,因为此类事件极为罕见;相反,加入过多HEK293细胞则会在数小时内引发神经元死亡。
胚胎中型多棘神经元培养物的理想制备应使用胚胎期15至17天(E15–E17)的纹状体组织。然而,实际操作中胚胎的发育年龄常略早于或晚于最佳时期。在此情况下,需要调整接种至培养体系中的神经元数量。对于早于E15的组织,接种密度应略低;而对于晚于E17的组织,则可能需要提高接种密度,以保证细胞的最佳存活率。此外,对于年龄较大的组织培养物,可能需要添加阿糖胞苷(Ara-C),以抑制胶质细胞的过度生长,因为较年长的组织中胶质细胞更为丰富。
在制备共培养体系时,应接种经优化数量的转染HEK293细胞或表达α1/β2/γ2的HEK293细胞,具体数量如上所述。然而,由于不同细胞系在存活率方面存在差异,可能需要针对每种细胞系单独确定最佳接种数量。通常情况下,每个24孔板的孔中已含有500 μl神经元培养基,此时应加入最多50 μl体积、约30,000个细胞,以确保神经元条件培养基不会过度稀释,并保持各孔内培养条件相对恒定。 例如 生长因子的浓度。向每个孔中加入超过50 μl的体积通常会导致神经元死亡。
共培养技术的一个主要缺点是,神经元培养物是由解离的细胞以单层形式生长而成的,这意味着神经元已被从其正常的微环境中移除,无法建立正常的解剖学结构。因此,这些神经元缺乏其他细胞所提供的适当连接、输入以及分泌分子,而这些因素可能影响突触发育的初始阶段。例如,在体条件下,中等棘状神经元受到来自皮层、丘脑及其他脑区的谷氨酸能输入的密集支配34,然而,在我们的神经元培养体系中,由于在纹状体组织解剖过程中这些输入纤维受到损伤,谷氨酸能突触无法形成。培养的中等棘状神经元缺乏功能性谷氨酸能突触,这如何影响它们彼此之间以及与表达GABAA受体的HEK293细胞之间形成GABA能突触的能力,目前仍是一个未解的问题。通过将中等棘状神经元与皮层谷氨酸能神经元共同培养,使其在添加HEK293细胞之前即可形成功能性突触35,这一问题便可轻易得到解决。另一种替代方法是设计基于脑片组织培养的共培养模型系统,该系统可保留部分细胞结构,而这些结构可能对神经元成熟和突触形成具有重要意义。然而,脑片组织培养具有致密且异质性的神经纤维网,可能会影响本研究中所进行的分析。使用共培养检测方法的另一个重要缺点是,HEK293细胞表面表达的GABAA受体并未像神经元中的那样形成簇状聚集,尽管已有研究表明,只要表面表达水平足够高,这种聚集似乎并非突触形成所必需30。例如,在啮齿类动物脑组织及海马培养物中,α1 GABAA受体亚基存在于所有锥体细胞各突触后区域的大多数GABA能突触中;而α2亚基则特异性地分布于部分位于胞体和树突上的突触,并在轴突起始段高度富集,这一点已通过免疫荧光和电子显微镜技术得到证实36。鉴于共培养体系中的突触形成仍可被可靠地检测和分析30,这表明HEK293细胞表面GABAA受体的密度可能与神经元突触簇内这些受体的密度相当,甚至更高。这至少部分解释了为何在共培养体系中,只要存在足够密度的正确组装的GABAA受体,突触黏附蛋白(如neuroligin)和突触后密度蛋白(如gephyrin)对于突触形成就并非必需。
已有充分文献记载,GABAA受体在结构和功能上具有异质性,其受体亚基组成决定了它们的亚细胞定位和药理学特性。例如,已知α2亚基的整合是GABA受体定位于突触部位的前提条件。ARs,而该亚基几乎仅存在于突触外GABAARs。仅包含αβ组合的受体也被认为主要定位于突触外区域12-14这种特异性在我们的共培养体系中是否得以维持,可通过将2或亚基cDNA瞬时转染至稳定表达α和β亚基的HEK293细胞系中,再将其加入神经元培养物之前进行检测。我们采用该方法的初步实验结果表明,仅在存在2亚基的情况下才能 readily 形成突触接触,提示所观察到的特异性 体内 很可能被保留 体外 (数据未显示)。
此外,GABAA含有不同α亚基的受体选择性地定位于与特定类型突触前神经元形成的突触接触处。例如,在苍白球中,α1-GABAARs 通常位于纹状体-苍白球(str-GP)和苍白球-苍白球(GP-GP)突触上,分别分布于中等棘状神经元的树突和胞体区域。α3-GABAARs 位于中等棘状神经元的近胞体区域,并接受局部 GP 轴突侧支的接触,而 α2-GABAARs 位于这些神经元的远端树突上,主要接受来自纹状体的输入32在其他脑区(如海马)的不同类型突触及神经元不同区室中,也已证实存在特定α亚基的表达。21 和新皮层18,20这些发现引发了一个问题:大脑中特异性抑制性突触是如何形成的?某种特定类型的突触前终末的黏附是否能够诱导特异性GABA受体的插入A受体亚型是否会根据其亚基组成被运输到特定的亚细胞位置,且其在质膜上的插入是否是特定来源轴突末梢黏附的前提条件?迄今为止,这些问题仍未得到解答。利用简化模型系统(如共培养模型系统)使我们能够开始回答这些复杂问题,因为该系统易于转染DNA构建体和施加试剂,并且重要的是,适用于活细胞成像分析。30因此,利用该模型系统,我们可以开始检测包括不同类型的GABA在内的单个分子的作用ARs,已知存在于突触接触部位。另一个优点是,该模型系统中的突触可在数分钟至数小时内快速形成,从而缩短实验周期。. 类似的共培养模型系统在过去已被成功用于筛选新型突触生成分子27,37,38.
了解中枢神经系统如何发育、成熟,并在神经元之间形成如此精细的连接以控制行为或认知等过程,具有根本性的重要意义。实现这一长远目标,必须阐明发育过程中调控细胞识别及细胞间通讯各个步骤的分子机制。由于系统本身的极端复杂性,目前只能在简化体系中精确研究这些多细胞相互作用的分子细节。然而,通过表达多种蛋白质组合并研究其相互作用,从而逐步增加体系复杂性的方法,相较于基因敲除等手段具有某些优势。这是因为单个基因敲除效应的准确解读,常受到补偿机制所引发的继发性改变干扰,尤其在发育中的大脑中,这些补偿机制可能掩盖原始损伤的真实效应。本文所述的简单而富有信息量的共培养技术,已助力发现了GABA在结构层面的重要作用ARs在突触形成中的作用,并为进一步研究GABAARs 及其他细胞黏附分子和/或突触基质蛋白在突触形成过程中相互作用。突触基质蛋白尤其受到关注,因为最近的研究已证明其在谷氨酸能突触形成中发挥关键作用39共培养模型的进一步发展至关重要,因为它们有望增进我们对指导“正常”大脑发育的分子机制的认识,从而加深我们对癫痫、精神分裂症、自闭症谱系障碍等多种神经发育疾病中这些机制如何发生改变的理解。
披露
作者声明不存在任何竞争性经济利益。
致谢
我们感谢英国医学研究理事会(MRC UK,项目编号G0800498)提供的经费支持。我们还要感谢苏黎世大学的J-M Fritschy教授提供针对GABAA受体亚基的γ2特异性抗体,以及伦敦大学学院药学院的R. Harvey教授提供含有抗生素抗性基因的pcDNA 3.1(+) 表达载体,用于构建稳定转染的HEK293细胞系。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM(杜氏改良伊格尔培养基) | Life Technologies | 11960-044 | 使用前于37 °C水浴中预热 |
| L-谷氨酰胺 | Life Technologies | 25030-024 | |
| 青霉素/链霉素 | Life Technologies | 15070-063 | 危险:刺激性 |
| FBS(胎牛血清) | Life Technologies | 10106-169 | |
| Neuralbasal | Life Technologies | 21103-049 | 使用前于37 °C水浴中预热 |
| B27添加剂 | Life Technologies | 17504-044 | |
| 葡萄糖 | Sigma-Aldrich | G8769 | |
| HBSS(10倍浓缩液) | Life Technologies | 14180-046 | |
| HEPES(1 M) | Life Technologies | 15630-056 | |
| PBS(1倍工作液) | Life Technologies | 10010-031 | |
| pcDNA 3.1(+) 哺乳动物表达载体(遗传霉素筛选) | Life Technologies | V790-20 | |
| pcDNA 3.1(+) 哺乳动物表达载体(Zeocin筛选) | Life Technologies | V860-20 | |
| pcDNA 3.1(+) 哺乳动物表达载体(潮霉素筛选) | Life Technologies | V870-20 | |
| 稳定表达HEKα1β2γ2细胞系 | Sanofi-Synthelabo, Paris | ||
| 聚-D-赖氨酸 | Sigma-Aldrich | P1149 | |
| G418硫酸盐(遗传霉素) | Sigma-Aldrich | G5013 | 危险:刺激性 |
| 博来霉素D1(Zeocin) | Life Technologies | R25001 | |
| 潮霉素B | Life Technologies | 10687-010 | 危险:有毒、刺激性及腐蚀性 |
| 胰蛋白酶-EDTA | Life Technologies | 25300-054 | 使用前于37 °C水浴中预热。危险:刺激性。 |
| 聚-L-赖氨酸 | Sigma-Aldrich | P6282 | |
| 层粘连蛋白 | Sigma-Aldrich | L2020 | |
| 100 μm 尼龙细胞筛 | VWR | 734-0004 | |
| 阿糖胞苷(Cytosine β-D-阿拉伯呋喃糖苷,Ara-C) | Sigma-Aldrich | C1768 | 危险:刺激性 |
| 螯合剂(Versene) | Life Technologies | 15040-033 | |
| 脂质体转染试剂(Lipofectamine LTX)及脂质体转染缓冲试剂(PLUS试剂) | Life Technologies | 15338-100 | 替代转染方法:Effectene试剂 |
| 非脂质体转染试剂(Effectene试剂) | Qiagen | 301425 | |
| 低血清培养基(Opti-MEM) | Life Technologies | 11058-021 | |
| 偶联Cy5的鼠抗突触素结合蛋白抗体 | Synaptic Systems | 105311C5 | |
| Neurobasal A | Life Technologies | 10888-022 | |
| 氯化钠(NaCl) | VWR | 27810.364 | |
| 甘氨酸 | Sigma-Aldrich | G1726 | |
| BSA(牛血清白蛋白) | Sigma-Aldrich | A3294 | |
| 豚鼠抗-γ2 GABAA受体抗体 | Prof. Jean Marc Fritschy | N/A | (瑞士苏黎世研究所)Fritschy, JM 和 Mohler, H. J. Comp. Neurol. 359 (1), 154-194 (1995)。 |
| Triton X-100 | Promega | H5141 | |
| 鼠抗谷氨酸脱羧酶(GAD)65抗体 | Merck Millipore | MAB351 | |
| 鼠抗突触素抗体 | Synaptic Systems | 106-011 | |
| 鼠抗-β2/3抗体(BD17) | Merck Millipore | MAB341 | |
| 兔抗-α1 GABAA受体抗体 | Professor Anne Stephenson | N/A | (伦敦大学学院药学院)FA Stephenson et al. J. Comp. Neurol. 416 (2), 158-172 |
| 偶联Cy5的山羊抗豚鼠抗体 | Merck Millipore | AP1085 | |
| 偶联Alexa Fluor 488的山羊抗鼠抗体 | Merck Millipore | AP124S | |
| 偶联Alexa Fluor 405的山羊抗鼠抗体 | Life Technologies | A31553 | |
| 偶联Alexa Fluor 555的山羊抗鼠抗体 | Life Technologies | A21422 | |
| 偶联Alexa Fluor 488的山羊抗兔抗体 | Life Technologies | A11008 | |
| 封片剂(Prolong Gold) | Life Technologies | P36930 | 室温使用 |
参考文献
- Wang, D. D., Kriegstein, A. R. Defining the role of GABA in cortical development. J Physiol. 587, 1873-1879 (2009).
- Ben-Ari, Y., Khalilov, I., Kahle, K. T., Cherubini, E. The GABA excitatory/inhibitory shift in brain maturation and neurological disorders. The Neuroscientist : a review journal bringing neurobiology, neurology and psychiatry. 18, 467-486 (2012).
- Structure Sieghart, W. pharmacology, and function of GABAA receptor subtypes. Adv Pharmacol. 54, 231-263 (2006).
- Unwin, N. Neurotransmitter action: opening of ligand-gated ion channels. Cell. 72, 31-41 (1993).
- Homanics, G. E., et al. Mice devoid of gamma-aminobutyrate type A receptor beta3 subunit have epilepsy, cleft palate, and hypersensitive behavior. Proceedings of the National Academy of Sciences of the United States of America. 94, 4143-4148 (1997).
- Gunther, U., et al. Benzodiazepine-insensitive mice generated by targeted disruption of the gamma 2 subunit gene of gamma-aminobutyric acid type A receptors. Proceedings of the National Academy of Sciences of the United States of America. 92, 7749-7753 (1995).
- Mohler, H. GABA(A) receptor diversity and pharmacology. Cell Tissue Res. 326, 505-516 (2006).
- Low, K., et al. Molecular and neuronal substrate for the selective attenuation of anxiety. Science. 290, 131-134 (2000).
- Rudolph, U., et al. Benzodiazepine actions mediated by specific gamma-aminobutyric acid(A) receptor subtypes. Nature. 401, 796-800 (1999).
- Rudolph, U., Knoflach, F. Beyond classical benzodiazepines: novel therapeutic potential of GABAA receptor subtypes. Nat Rev Drug Discov. 10, 685-697 (2011).
- Hulst, C., Atack, J. R., Kooy, R. F. The complexity of the GABAA receptor shapes unique pharmacological profiles. Drug Discov Today. 14, 866-875 (2009).
- Essrich, C., Lorez, M., Benson, J. A., Fritschy, J. M., Luscher, B. Postsynaptic clustering of major GABAA receptor subtypes requires the gamma 2 subunit and gephyrin. Nat Neurosci. 1, 563-571 (1998).
- Schweizer, C., et al. The gamma 2 subunit of GABA(A) receptors is required for maintenance of receptors at mature synapses. Mol Cell Neurosci. 24, 442-450 (2003).
- Belelli, D., et al. Extrasynaptic GABAA receptors: form, pharmacology, and function. The Journal of neuroscience : the official journal of the Society for Neuroscience. 29, 12757-12763 (2009).
- Connolly, C. N., Wooltorton, J. R., Smart, T. G., Moss, S. J. Subcellular localization of gamma-aminobutyric acid type A receptors is determined by receptor beta subunits. Proceedings of the National Academy of Sciences of the United States of America. 93, 9899-9904 (1996).
- Connolly, C. N., Krishek, B. J., McDonald, B. J., Smart, T. G., Moss, S. J. Assembly and cell surface expression of heteromeric and homomeric gamma-aminobutyric acid type A receptors. J Biol Chem. 271, 89-96 (1996).
- Klausberger, T., Roberts, J. D., Somogyi, P. Cell type- and input-specific differences in the number and subtypes of synaptic GABA(A) receptors in the hippocampus. The Journal of neuroscience : the official journal of the Society for Neuroscience. 22, 2513-2521 (2002).
- Thomson, A. M., Jovanovic, J. N. Mechanisms underlying synapse-specific clustering of GABA(A) receptors. Eur J Neurosci. 31, 2193-2203 (2010).
- Fritschy, J. M., Panzanelli, P., Tyagarajan, S. K. Molecular and functional heterogeneity of GABAergic synapses. Cell Mol Life Sci. 69, 2485-2499 (2012).
- Ali, A. B., Thomson, A. M. Synaptic alpha 5 subunit-containing GABAA receptors mediate IPSPs elicited by dendrite-preferring cells in rat neocortex. Cereb Cortex. 18, 1260-1271 (2008).
- Thomson, A. M., Bannister, A. P., Hughes, D. I., Pawelzik, H. Differential sensitivity to Zolpidem of IPSPs activated by morphologically identified CA1 interneurons in slices of rat hippocampus. Eur J Neurosci. 12, 425-436 (2000).
- Nyiri, G., Freund, T. F., Somogyi, P. Input-dependent synaptic targeting of alpha(2)-subunit-containing GABA(A) receptors in synapses of hippocampal pyramidal cells of the rat. Eur J Neurosci. 13, 428-442 (2001).
- Treutlein, B., Gokce, O., Quake, S. R., Sudhof, T. C. Cartography of neurexin alternative splicing mapped by single-molecule long-read mRNA sequencing. Proceedings of the National Academy of Sciences of the United States of America. 111, 1291-1299 (2014).
- Siddiqui, T. J., Craig, A. M. Synaptic organizing complexes. Current opinion in neurobiology. 21, 132-143 (2011).
- Tanaka, H., et al. Higher-order architecture of cell adhesion mediated by polymorphic synaptic adhesion molecules neurexin and neuroligin. Cell reports. 2, 101-110 (2012).
- Krueger, D. D., Tuffy, L. P., Papadopoulos, T., Brose, N. The role of neurexins and neuroligins in the formation, maturation, and function of vertebrate synapses. Current opinion in neurobiology. 22, 412-422 (2012).
- Scheiffele, P., Fan, J., Choih, J., Fetter, R., Serafini, T. Neuroligin expressed in nonneuronal cells triggers presynaptic development in contacting axons. Cell. 101, 657-669 (2000).
- Graf, E. R., Zhang, X., Jin, S. X., Linhoff, M. W., Craig, A. M. Neurexins induce differentiation of GABA and glutamate postsynaptic specializations via neuroligins. Cell. 119, 1013-1026 (2004).
- Dong, N., Qi, J., Chen, G. Molecular reconstitution of functional GABAergic synapses with expression of neuroligin-2 and GABAA receptors. Mol Cell Neurosci. 35, 14-23 (2007).
- Fuchs, C., et al. GABA(A) receptors can initiate the formation of functional inhibitory GABAergic synapses. Eur J Neurosci. 38, 3146-3158 (2013).
- Ventimiglia, R., Lindsay, R. Culturing nerve cells: Rat striatal neurons in low-density, serum-free culture. , 2nd edn, MIT Press. 371-393 (1998).
- Gross, A., et al. Differential localization of GABA(A) receptor subunits in relation to rat striatopallidal and pallidopallidal synapses. Eur J Neurosci. 33, 868-878 (2011).
- Fritschy, J. M., Mohler, H. GABAA-receptor heterogeneity in the adult rat brain: differential regional and cellular distribution of seven major subunits. J Comp Neurol. 359, 154-194 (1995).
- Doig, N. M., Moss, J., Bolam, J. P. Cortical and thalamic innervation of direct and indirect pathway medium-sized spiny neurons in mouse striatum. The Journal of neuroscience : the official journal of the Society for Neuroscience. 30, 14610-14618 (2010).
- Lalchandani, R. R., Vicini, S. Inhibitory collaterals in genetically identified medium spiny neurons in mouse primary corticostriatal cultures. Physiological reports. 1, (2013).
- Nusser, Z., Sieghart, W., Benke, D., Fritschy, J. M., Somogyi, P. Differential synaptic localization of two major gamma-aminobutyric acid type A receptor alpha subunits on hippocampal pyramidal cells. Proceedings of the National Academy of Sciences of the United States of America. 93, 11939-11944 (1996).
- Linhoff, M. W., et al. An unbiased expression screen for synaptogenic proteins identifies the LRRTM protein family as synaptic organizers. Neuron. 61, 734-749 (2009).
- Pettem, K. L., Yokomaku, D., Takahashi, H., Ge, Y., Craig, A. M. Interaction between autism-linked MDGAs and neuroligins suppresses inhibitory synapse development. J Cell Biol. 200, 321-336 (2013).
- Wit, J., et al. Unbiased discovery of glypican as a receptor for LRRTM4 in regulating excitatory synapse development. Neuron. 79, 696-711 (2013).
重印与许可
