本研究描述了一种基于将马源FcεRIα基因转染入大鼠嗜碱性白血病细胞而构建的基因工程检测系统的开发与应用。转染后的细胞可表达功能性受体,其过敏反应介质的释放可由IgE和抗原激活。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
IgE与其高亲和力Fc受体(FcεRI)结合后,再经抗原攻击,是介导IgE过敏反应的主要通路。由于IgE与FcεRI之间具有高亲和力结合特性,加之B细胞持续产生IgE,过敏通常终身存在,目前尚无永久性治愈方法。马,尤其是常被近亲繁殖的赛马,是极易发生超敏反应的哺乳动物物种,这些反应可严重影响其运动表现。马对过敏致敏的生理反应与人类和犬类中观察到的相似。本文描述了一种 原位 用于定量评估与马过敏反应相关的介质释放的检测系统。为此,编码马FcεRIα的基因被转染并表达于亲本大鼠嗜碱性白血病(RBL-2H3.1)细胞表面。转染后的马α链基因产物与内源性大鼠β链和γ链形成具有功能性的受体复合物。 1该检测系统可评估马源IgE致敏及抗原攻击后,转染了马FcεRIα的RBL-2H3.1细胞分泌介质的量,以β-己糖苷酶释放作为检测指标 2, 3介质释放率在100 ng/ml时达到峰值,为36.68% ± 4.88%-1 抗原。该检测方法是在先前用于研究人类和犬类过敏反应的检测方法基础上改进而来的 4, 5我们还表明,此类检测系统在过敏性疾病诊断工具的开发以及潜在治疗干预策略的安全性评估方面具有多种应用。 6, 2, 3.
引言
过敏现象已为人所知数千年。古埃及医学文献《埃伯斯纸草书》(约公元前1550年)中记载了哮喘的治疗方法,并讨论了用于治疗该病的草药疗法7。
目前,过敏被归类为I型超敏反应,即免疫系统的辅助性T细胞2型(TH2)介导针对环境抗原(称为变应原)产生免疫球蛋白E(IgE)抗体。这些变应原是多种多样的物质,通常与免疫系统中的细胞相互作用,刺激促炎性细胞因子(包括白细胞介素-4和白细胞介素-138, 9)的合成与分泌;香烟烟雾颗粒或柴油机尾气颗粒也具有类似作用,可增强IgE的合成10。
在过去50年中,工业化国家过敏表现的增加被认为是由环境污染物的影响以及环境日益卫生化趋势共同作用所致,这些因素共同促使免疫反应向以TH2细胞因子为主导的模式偏移,这即是“卫生假说”所提出的内容11。
如上所述,人类并非唯一受过敏困扰的哺乳动物。值得注意的是,马和狗也会产生典型的过敏反应,且一项研究12表明,与人类相似,马的过敏也与遗传和环境因素有关。因此,这些动物为研究遗传与环境因素在过敏发生中的相互作用、从致敏发展为疾病的过程,以及在临床症状出现后可能的干预策略提供了良好的模型
1887年,Stömmer 首次描述了人类与马哮喘之间的相似性13,组胺对马心血管系统的作用与人类非常相似14。马也是赛马产业的基石,该产业价值达720亿美元,每年的投注额高达1150亿美元15。
现代大多数赛马都是安妮·布伦特女士自1878年起培育的少量阿拉伯马的后代。现代赛马通常经过近亲繁殖以筛选优异的运动能力。它们易患遗传性疾病,其中包括对过敏反应的高度易感性。这些马的血清IgE水平甚至比最严重过敏的人类高出1000倍16。马的过敏反应通常表现为昆虫叮咬性超敏反应(IBH)17, 18。IBH是由库蠓属(Culicoides)昆虫叮咬引起的皮炎。另一种马过敏性疾病是复发性气道阻塞(RAO),主要影响肺部和气道,其特征为喘息和呼吸困难。一项研究发现,患RAO的马体内针对特定过敏原的IgE水平显著升高19,但另一项研究未能证实这一结果20。
关于马类过敏的研究主要集中在通过开发抗马IgE单克隆抗体(mAbs)来监测和中和马IgE 21, 22。此外,23的研究探讨了表达马高亲和力Fc受体α链(FcεRIα)的胞外结构域,以期检测并定量马血清中的IgE。Ledin24的另一项相关研究提出了一种新方法,即利用自身/非自身免疫原启动免疫系统,以中和血清中的IgE。然而,这些研究均缺乏有效的检测手段来评估其方案的安全性和有效性。本文中,我们介绍了一种适用于马类系统诊断与治疗策略研究的检测体系,该体系通过检测表达马FcεRIα的RBL-2H3.1细胞中β-己糖胺酶的释放量(作为细胞介质脱颗粒的指标)来实现。本方案基于先前的多项研究25, 4, 5, 2, 3,这些研究描述了将来自不同物种的IgE高亲和力受体IgE结合域基因转染至RBL细胞并进行工程化改造的方法。本方案详细说明了如何开展β-己糖胺酶释放实验,实验结果以三次重复实验的均值±标准差表示。
释放试验最初由 Siraganian 和 Hook25建立,用于研究人类过敏反应。Reuben Siraganian 博士领导的实验室团队还开发了 RBL 细胞系。这些 RBL 细胞被改造为表达人源 FcεRIα,相关方案已由4发表。该试验的最后一个关键进展来自 Neuberger26论文中 pSV 质粒的构建,该研究描述了通过将 IgE 重链基因克隆至小鼠 IgE 可变区基因下游,从而产生靶向半抗原 4-羟基-3-硝基-苯乙酰(NP)的 IgE 抗体,所获得的嵌合抗体具有完全功能。能够在靶向相同半抗原的同时,克隆其受体并在 RBL 细胞表面表达,使得该试验得以标准化,成为测定嗜碱性粒细胞脱颗粒的有用方案。
该检测方法确实有其优点和缺点。其优点在于可适用于任何哺乳动物系统,因此本实验室已将其用于检测人、犬和马系统的脱颗粒反应,只需合成相应生物体的IgE并将其受体克隆到RBL细胞表面即可实现。
另一方面,该检测方法的缺点在于RBL细胞对温度、机械和pH变化非常敏感,导致在同一实验中脱颗粒水平出现波动。因此,强烈建议每次实验均需设置三个重复孔,并取其平均值。此外,若将RBL细胞在组织培养中长期培养,其倾向于转变为非释放表型。>10 周 27,使其培养维护较为繁琐。它们还容易受到支原体细菌的污染,这类细菌在光学显微镜下不可见,且不会改变细胞形态,但会显著影响其脱颗粒水平,因此需要定期进行支原体检测。
访问受限。请登录或开始试用以查看此内容。
方案
1)细胞系的制备:
- 构建表达马源 FcεRIα 的 RBL-2H3.1 细胞系:
- 采用基本的单层细胞培养技术,使用携带马源 FcεRIα 基因(GenBank: Y18204.1)的 pEE6 质粒对亲本 RBL-2H3.1 细胞进行转染28。将 2 μg μl-1 质粒 DNA 加入 0.8 ml 浓度为 1.2 × 10⁷ 个细胞 ml-1 的细胞悬液中。使用 0.4 cm 电穿孔杯在 250 V、960 μF 条件下进行电穿孔,随后立即置于冰上孵育 10 分钟。
- 使用含 0.4 g 遗传霉素 G418 硫酸盐的培养基筛选转化细胞,再通过荧光标记的 IgE 抗体对存活细胞进行 FACS 分选。将获得的表达马源 FcεRIα 的 RBL-2H3.1 细胞系用于后续研究2, 3。
- 检测前抗体致敏:
- 从融合生长的培养皿中收获表达马源 FcεRIα 的 RBL-2H3.1 细胞,洗涤后重悬于培养基中,调整细胞密度至 5 × 10⁵ 个细胞 ml-1。
- 向细胞悬液中加入目标 IgE 抗体,使其终浓度为 1 ng ml-1,随后将 100 μl 细胞悬液加入 96 孔板的第 1–6 列,于 37 °C、5% CO2、90% 相对湿度条件下孵育 16 小时。孵育结束后,在进行释放实验前,于显微镜下检查各孔细胞的融合度及贴壁情况。
2)释放实验:
- 洗涤细胞:
- 将释放缓冲液(25 mM PIPES、120 mM 氯化钠、5 mM 氯化钾、0.04 mM 氯化镁和 1 mM 氯化钙)在 37 °C 下预热,以实现轻柔的细胞洗涤。
- 通过轻弹培养板去除细胞培养基,并加入 100 μl 预热至 37 °C 的释放缓冲液进行洗涤。重复此步骤两次。
- 抗原刺激:
- 在释放缓冲液中配制抗原(NIP-HSA 或 DNP-HSA)的系列稀释液,浓度分别为 0 ng ml-1、0.1 ng ml-1、1 ng ml-1、10 ng ml-1、100 ng ml-1、1,000 ng ml-1、10,000 ng ml-1,并在 37 °C 下预热。
- 第二次洗涤细胞后,弃去培养基,每孔加入 100 μl 不同浓度的抗原溶液。确保同一行的孔(例如 A1–6)加入相同浓度的抗原。
- 在 A 行设置阴性对照,加入 0 ng ml-1 抗原;从 B 到 G 行依次增加抗原浓度;H 行加入 triton-x 缓冲液(5% Triton X-100)以裂解细胞,作为阳性对照。在 37 °C 下孵育 20 分钟,使细胞释放其介质。
- 设置单个孔的对照:
- 孵育结束后,将 50 μl 细胞上清液转移至另一侧的孔中(例如 A1–6 转移至 A7–12 等)。弃去剩余的 50 μl 上清液,并向原孔(1–6 列)中加入 50 μl triton-x 缓冲液,以便将 7–12 列各孔中释放介质的量表示为 1–6 列细胞内总介质的百分比。
- 酶底物反应:
- 向所有孔中加入 50 μl β-己糖苷酶底物(将 50 mM 4-硝基苯基-N-乙酰-β-D-葡糖胺苷溶于 DMSO,再用柠檬酸缓冲液(0.2 M 柠檬酸和 0.2 M 醋酸钠,pH 4.5)稀释至 2 mM),以促进 β-己糖苷酶将底物转化为 4-硝基苯酚。将培养板在 37 °C 下孵育 2 小时。

- 终止反应:
- 通过向每个孔中加入 150 μl Tris 缓冲液(1 M Tris-HCl,pH 9)来终止反应,该缓冲液的高 pH 值可停止反应,并使 4-硝基苯酚转变为黄色。
- 读取并分析结果:
- 使用酶标仪在 405 nm 处读取酶标板,以测量黄色产物的吸光度。根据以下公式计算释放的 β-己糖胺酶的百分比:
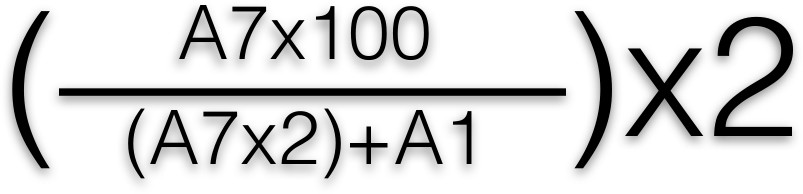
- 将此公式应用于每个孔,然后计算每行的平均值。A1 和 A7 表示 96 孔板中孔的位置。以抗原浓度为横坐标,β-己糖胺酶释放百分比(对应于总介质释放量)为纵坐标绘制曲线图2, 3。
访问受限。请登录或开始试用以查看此内容。
结果
将亲代 RBL-2H3.1 细胞及转染了马源 FcεRIα 受体基因的细胞首先用小鼠抗 DNP-HSA IgE 致敏,随后以 DNP-HSA 抗原进行激发。小鼠 IgE 可结合两个细胞系中内源性的大鼠受体,因此可作为对照,用于检测两个细胞系释放介质的能力(图 1 A)。该对照至关重要,应常规进行,因为在细胞培养中长期传代(> 10 周)后,RBL-2H3.1 细胞会逐渐向非分泌表型漂移27。亲代细胞介导物释放峰值为 51.54% ± 4.79%,而表达马源 FcεRIα 受体的细胞介导物释放峰值为 45.99% ± 5.76%。随后,这两个相同的细胞系用马源抗 NIP-HSA IgE 致敏,并以 NIP-HSA 抗原进行激发(图 1 B)。亲代细胞未发生介质释放,因为马源 IgE 无法结合内源性大鼠受体。相反,如预期所示,表达马源 FcεRIα 受体的 RBL-2H3.1 细胞在用马源抗 NIP-HSA IgE 致敏并以 NIP-HSA 抗原激发后,发生了介质释放,其峰值释放率为 36.68% ± 4.88%。
访问受限。请登录或开始试用以查看此内容。
讨论
总之,本研究的结果表明,当表达马源 FcεRIα 的 RBL-2H3.1 细胞经马源 IgE 致敏并受到抗原刺激时,其释放的介质峰值达到细胞内介质总量的 36.68% ± 4.88%,而未表达马源 FcεRIα 的 RBL-2H3.1 亲本细胞则无此反应。
因此,该检测方法为研究马类过敏反应提供了一种有用的工具 体外它能够测定肥大细胞/嗜碱性粒细胞谱系细胞释放的介质数量,因此有望推动马类过敏症的研究,无论是在评估致敏原方面,还是在研究IgE/受体阻断剂方面。
该检测方法经修改后用于研究马的过敏反应,此前已有文献报道其被用于研究人类和犬类的过敏反应。 4529 出于相同目的,采用表达人和犬 FcεRIα 的基因工程细胞系来研究过敏阻断剂(如以抑制 IgE/受体相互作用为靶点的疫苗)的有效性和安全性 30研究发现,包含完整Cε3结构域的免疫原具有过敏毒素样副作用,其他研究者曾提议将此类免疫原作为疫苗用于减弱犬类IgE介导的过敏反应 24根据我们的研...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明本文不存在任何竞争性经济利益。
致谢
作者感谢 Lynda Partridge 博士提供的建议和实验室设施。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 表达马FcεRIα的RBL-2H3.1细胞 | - | - | 实验室制备 |
| 抗NIP-HSA的马IgE | - | - | 实验室制备 |
| 96孔板 | Sigma | CLS3595 | - |
| 多通道移液器 | Anachem | - | - |
| 培养箱 | Galaxy R | - | - |
| 4-羟基-5-碘-3-硝基苯乙酸 | Cambridge Research Biochemicals | N-1070-1 | NIP-OH在实验室中与人血清白蛋白偶联制备NIP-HSA |
| 二硝基苯偶联人血清白蛋白 | Sigma | A6661 | 缩写为DNP-HSA |
| 酶标仪 | Anthos Labtec HT2 | - | - |
| PIPES | Sigma | P1851 | - |
| 氯化钠 | Sigma | S7653 | - |
| 氯化钾 | Sigma | P9333 | - |
| 氯化镁 | Sigma | M2670 | - |
| 氯化钙 | Sigma | C1016 | - |
| Triton X-100 | Sigma | X100 | - |
| 4-硝基苯基 N-乙酰-β-D-葡糖胺 | Sigma | N9376 | 储存液称为β-己糖胺酶底物,用DMSO配制成50 mM |
| 二甲基亚砜 | Sigma | D2650 | - |
| 柠檬酸 | Sigma | 251275 | - |
| 乙酸钠 | Sigma | S7670 | - |
| Tris | Sigma | T5941 | - |
参考文献
- Taudou, G., et al. Expression of the Alpha Chain of Human FcεRI in Transfected Rat Basophilic Leukemia Cells: Functional Activation after Sensitization with Human Mite-Specific IgE. Int Arch Allergy Immunol. 100 (4), 344-350 (1993).
- Sabban, S. Development of an in Vitro Model System for Studying the Interaction of EquuscaballusIgE with Its High-Affinity FcεRI Receptor. , The University of Sheffield. Sheffield. (2011).
- Sabban, S., Ye, H., Helm, B. A. Development of an in Vitro Model System for Studying the Interaction of EquuscaballusIgE with Its High-Affinity Receptor FcεRI. Vet ImmunolImmunopathol. 153 (1-2), 6-10 (2013).
- Wilson, A. P. M., Pullar, C. E., Camp, A. M., Helm, B. A. Human IgE mediates stimulus secretion coupling in rat basophilic leukemia cells transfected with the a chain of the human high-affinity receptor. Eur J Immunol. 23, 240-244 (1993).
- Hunter, M. J., Vratimos, A. P., Housden, J. E. M., Helm, B. A. Generation of canine-human Fc IgE chimeric antibodies for the determination of the canine IgE domain of interaction with FcεRIα. MolImmunol. 45 (8), 2262-2268 (2008).
- Rashid, A., et al. Review: Diagnostic and therapeutic applications of rat basophilic leukemia cells. MolImmunol. 52 (3-4), 224-228 (2012).
- Cohen, S. G. Asthma in antiquity: the Ebers Papyrus. Allergy Proc. 13 (3), 147-154 (1992).
- Dudler, T., et al. A link between catalytic activity, IgE-independent mast cell activation, and allergenicity of bee venom phospholipase A2. J. Immunol. 155, 2605-2613 (1995).
- Machado, D. C., Horton, D., Harrop, R., Peachell, P. T., Helm, B. A. Potential allergens stimulate the release of mediators of the allergic response from cells of mast cell lineage in the absence of sensitization with antigen-specific IgE. Eur J Immunol. 26 (12), 2972-2980 (1996).
- Smyth, L. J., et al. Assessment of the molecular basis of pro-allergenic effects of cigarette smoke. Environ Sci Technol. 34 (7), 1370-1374 (2000).
- Okada, H., Kuhn, C., Feillet, H., Bach, J. F. The 'hygiene hypothesis' for autoimmune and allergic diseases: an update. ClinExpImmunol. 160 (1), 1-9 (2010).
- Eder, C., et al. Influence of environmental and genetic factors on allergen-specific immunoglobulin-E levels in sera from Lipizzan horses. Equine Vet J. 33 (7), 714-720 (2001).
- Cook, W. R., Rossdale, P. D. The syndrome of 'Broken Wind' in the horse. Proceedings of the Royal Society of Medicine. 56, 972-977 (1963).
- Eyre, P., Lewis, A. J. Acute systemic anaphylaxis in the horse. Br. J. Pharmacol. 48 (3), 426-437 (1973).
- Bruggink, M. Global betting stable, but some countries suffer recession. , International Federation of Horseracing Authorities. Available from: http://www.horseracingintfed.com/Default.asp?section=Resources&area=0&story=664 (2009).
- Wagner, B. IgE in horses: occurrence in health and disease. Vet ImmunolImmunopathol. 132 (1), 21-23 (2009).
- Hellberg, W., et al. Equine insect bite hypersensitivity: immunoblot analysis of IgE and IgG subclass responses to Culicoidesnubeculosus salivary gland extract. Vet. Immunol. Immunopathol. 113 (1-2), 99-112 (2006).
- Schaffartzik, A., et al. Equine insect bite hypersensitivity: what do we know. Vet ImmunolImmunopathol. 147 (3-4), 113-126 (2012).
- Künzle, F., et al. IgE-bearing cells in bronchoalveolar lavage fluid and allergen-specific IgE levels in sera from RAO-affected horses. J Vet Med A PhysiolPatholClin Med. 54 (1), 40-47 (2007).
- Tahon, L., et al. In vitro allergy tests compared to intradermal testing in horses with recurrent airway obstruction. Vet ImmunolImmunopathol. (1-2), 85-93 (2009).
- Wagner, B., Radbruch, A., Rohwer, J., Leibold, W. Monoclonal anti-equine IgE antibodies with specificity for different epitopes on the immunoglobulin heavy chain of native IgE. Vet ImmunolImmunopathol. 92 (1-2), 45-60 (2003).
- Wilson, A. D., Harwood, L., Torsteinsdottir, S., Marti, E. Production of monoclonal antibodies specific for native equine IgE and their application to monitor total serum IgE responses in Icelandic and non-Icelandic horses with insect bite dermal hypersensitivity. Vet ImmunolImmunopathol. 112 (3-4), 156-170 (2006).
- McAleese, S. M., et al. Cloning and expression of the extra-cellular part of the alpha chain of the equine high-affinity IgE receptor and its use in the detection of IgE. Vet ImmunolImmunopathol. 110 (1-2), 187-191 (2006).
- Ledin, A., et al. Generation of therapeutic antibody responses against IgE in dogs, an animal species with exceptionally high plasma IgE levels. Vaccine. 24 (1), 66-74 (2006).
- Siraganian, R. P., Hook, W. A. Histamine release and assay methods for the study of human allergy. Manual of Clinical Immunology. , American Society for Microbiology. Washington, D. C. (1980).
- Neuberger, M. S., et al. A hapten-specific chimaericIgE antibody with human physiological effector function. Nature. 314 (6008), 268-270 (1985).
- Bingham, B. R., Monk, P. N., Helm, B. A. Defective Protein Phosphorylation and Ca2+ Mobilization in a low secreting variant of the rat basophilic leukemia cell line. The Journal of Biological Chemistry. 269 (30), 19300-19306 (1994).
- McAleese, S. M., Halliwell, R. E., Miller, H. R. Cloning and sequencing of the horse and sheep high-affinity IgE receptor alpha chain cDNA. Immunogenetics. 1 (51), 878-881 (2000).
- Hongtu, Y. Study of the structure/function relationship in canine and human IgE as the basis for the development of rational therapeutic intervention strategies in allergic disease. , The University of Sheffield. (2010).
- Sabban, S., et al. Towards a pan-anti-allergy vaccine. JIBTVA. 2 (2), 15-27 (2013).
- Moran, G., Burgos, R., Araya, O., Folch, H. In vitro bioassay to detect reaginic antibodies from the serum of horses affected with recurrent airway obstruction. Vet Res Commun. 34, 91-99 (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
