光学透明的斑马鱼胚胎被广泛用于实时研究和观察病原微生物与先天免疫细胞之间的相互作用。通过将脓肿分枝杆菌(Mycobacterium abscessus)显微注射结合荧光成像技术,可在斑马鱼胚胎中深入分析其关键致病特征,例如索状结构的形成。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
斑马鱼(Danio rerio胚胎越来越多地被用作感染模型,以研究脊椎动物先天免疫系统在宿主-病原体相互作用中的功能。 获得大量胚胎的便捷性、胚胎因体外发育而易于操作、其光学透明性,以及丰富的遗传学/免疫学工具和转基因报告基因品系资源,共同赋予了该模型系统的多功能性。 在这方面,本文描述了斑马鱼的使用作为一种 体内 研究时间顺序的模型系统 脓肿分枝杆菌 感染。该人类病原体可根据细胞壁组成呈现光滑型(S)或粗糙型(R)变异体,其相应的毒力可在斑马鱼胚胎和幼鱼中进行成像与比较。将S型或R型荧光标记的变异体直接显微注射至血液循环中 通过 尾静脉注射则分别导致慢性或急性/致死性感染。该生物系统可实现对分枝杆菌索状结构在促进脓肿形成中作用的高分辨率可视化与分析。此外,结合使用荧光标记的细菌与携带荧光标记巨噬细胞的转基因斑马鱼品系,为宿主-病原体相互作用的多色成像提供了独特机会。本文详细描述了制备均一 M. abscessus 接种物制备以及用于斑马鱼胚胎的静脉注射,以便后续对与巨噬细胞相互作用进行荧光成像。这些技术为未来研究涉及索状结构形成缺陷的突变体开辟了途径,并致力于阐明其对 M. abscessus 在完整脊椎动物中的致病性
引言
Mycobacterium abscessus 是一种新发的病原体,可在人类中引起多种临床综合征,包括皮肤感染以及严重的慢性肺部感染,后者多见于免疫功能低下者和囊性纤维化患者1,2,3,4。M. abscessus 还被认为是导致人类医院内感染和医源性感染的主要快速生长分枝杆菌之一。此外,近年来多项报道指出,M. abscessus 可能穿越血脑屏障,并在中枢神经系统(CNS)中引发严重病变5,6。尽管属于快速生长型分枝杆菌,M. abscessus 仍表现出多种与结核分枝杆菌(Mycobacterium tuberculosis)相似的致病特征,包括可在肉芽肿结构中长期潜伏以及在肺部形成干酪样病变的能力7。更令人担忧的是,M. abscessus 对抗生素的敏感性较低,导致这些 感染极难治疗,治疗失败率显著升高8,9。该菌种构成重大威胁的主要原因在于其对抗生素的固有耐药性,这已成为公共卫生机构高度关注的问题10,并成为肺移植的禁忌证之一11。
M. abscessus 呈现光滑(S)或粗糙(R)的菌落形态型,可导致不同的临床结局。与S型菌株相比,R型细菌倾向于首尾相连生长,形成绳索状或 cords 状结构。12,13多项基于细胞或动物模型的独立研究揭示了R形态型的高毒力表型。14,15来自流行病学研究,最严重的病例 M. abscessus 肺部感染似乎与R变异株相关16 是唯一一种在感染宿主中被观察到可长期持续存在的变异体3形态型差异取决于表面相关糖肽脂质(GPL)的存在(S型)或缺失(R型)。12然而,由于目前用于研究的细胞/动物模型存在固有的局限性 M. abscessus 感染后,我们对R型或S型变异株的病理生理事件仍知之甚少。在免疫功能健全小鼠中的感染研究 通过 静脉或气溶胶途径给药会导致短暂定植,阻碍了 使用小鼠 研究持续性感染以及用于 体内 药物敏感性试验17因此,构建可用于调控宿主反应的动物模型是一项重大挑战。在此背景下,近年来已开发出多种非哺乳类感染模型,包括 黑腹果蝇18 相较于小鼠模型,斑马鱼模型具有成本低、速度快和伦理接受度高等多种优势。斑马鱼(Danio rerio感染的动物模型也已被用于通过非侵入性成像技术,对感染进程和时间顺序进行可视化观察。 M. abscessus 活体动物感染19重要的是,还建立了概念验证,以证明其适用性 体内 抗生素对...的评估 M. abscessus17,20.
在过去的二十年中,斑马鱼被广泛用于研究各种病原体与宿主免疫系统之间的相互作用21。这种替代性脊椎动物模型日益成功,得益于其提供的重大且独特的研究机遇,推动并验证了其在深入理解多种病毒和细菌感染中的应用19,22,23,24,25,26,27,28,29。与其他大多数动物模型不同,斑马鱼胚胎具有光学透明性,可实现无创荧光成像30。 这使得研究人员能够以前所未有的细节研究感染了M. abscessus的斑马鱼胚胎,最终揭示了胞外索状结构(extracellular cording),这是细菌形态可塑性的一个典型例子。索状结构代表了一种逃避免疫系统的新机制,也是促进M. abscessus急性感染致病的关键机制19。
本研究报告利用斑马鱼胚胎,介绍了解析病理生理特征的新工具和新方法 M. abscessus 感染,并研究杆菌与先天免疫系统之间的密切相互作用。首先,提供一份详细的显微注射方案,包括细菌接种物的处理、胚胎制备及感染过程 本身,介绍如下。特别适用于评估的方法 M. abscessus 通过测量宿主存活率和细菌载量等不同参数来评估毒力的方法已被呈现。特别关注如何在时空层面上监测感染的进程与转归以及宿主对感染的免疫应答 M. abscessus 使用视频显微镜。此外,为研究巨噬细胞在期间的贡献与作用 M. abscessus 感染,描述了通过遗传学或化学方法制备巨噬细胞耗竭胚胎的方法。最后,记录了利用固定或活体胚胎可视化巨噬细胞或中性粒细胞特异性相互作用的实验方案。
本报告的目的是促进进一步研究,以揭示脓肿分枝杆菌(M. abscessus)的毒力机制,特别是束状生长在引发急性且不受控制的感染过程中的作用。
访问受限。请登录或开始试用以查看此内容。
方案
斑马鱼实验操作必须遵守相关机构和政府的法规。本研究中的斑马鱼实验在蒙彼利埃大学进行,遵循欧盟关于实验动物管理的指导方针(http://ec.europa.eu/environment/chemicals/lab_animals/home_en.htm),并已获得编号为 CEEA-LR-13007 的批准。
1. 试剂与显微注射设备的准备
- 通过将 0.06 g Instant Ocean 海盐溶解于 1 L 蒸馏水中制备鱼水31,然后经高压灭菌(120 °C,20 分钟)并储存于 28.5 °C,可保存长达 1 个月。
- 通过将 1 g 亚甲蓝溶解于 1 L 蒸馏水中制备亚甲蓝溶液。向 1 L 鱼水中加入 300 µl 亚甲蓝溶液以制得蓝色鱼水,随后高压灭菌并储存于 28.5 °C,可保存长达 1 个月。
注意:在鱼水中添加亚甲蓝可防止霉菌生长。 - 磷酸盐缓冲液(PBS)的制备
- 通过将 5.696 g Na2HPO4、680 mg KH2PO4、969 mg KCl 和 78.894 g NaCl 溶解于 1 L 蒸馏水中,用 HCl 调节 pH 至 7.0,制备 10 X PBS 储存液。为获得 1 X PBS,取 100 ml 10 X PBS 溶液加入 900 ml 蒸馏水中稀释,并在 120 °C 下高压灭菌 20 分钟。
- 加入 0.05% Tween 80 以制得 1 X PBST,室温保存可长达 1 年。
- 通过将 8.5 g NaCl、50 g 牛血清白蛋白、20 g D-葡萄糖、40 mg 牛肝过氧化氢酶和 0.5 g 油酸溶解于 1 L 蒸馏水中,制备油酸葡萄糖过氧化氢酶(OADC)增补液,然后过滤除菌,并在 4 °C 下保存,可保存长达 6 个月。
- 通过将 400 mg 三卡因粉末溶解于 97.9 ml 蒸馏水中,制备 100 ml 乙氧基苯甲酸甲磺酸盐(三卡因)储存液。加入 2.1 ml 1 M Tris(pH 9)以调节 pH 至 7.0,并将溶液储存于 -20 °C。
- 使用显微拉针仪,以如下参数(气压 650;加热 999;拉力 50;速度 80;时间 200)拉制硼硅酸盐玻璃毛细管(外径 1 mm × 内径 0.78 mm),制备显微毛细注射针。
- 在蓝色鱼水中制备 1.5% 琼脂溶液,将 25 ml 熔化的琼脂倒入 100 mm 培养皿中。在熔化的琼脂表面放置自制模具,以压印特定通道。“V”形通道用于定位胚胎,而“U”形通道用于放置卵(图 1)31。待琼脂凝固后,小心移除模具。
注意:用蓝色鱼水覆盖琼脂以防止脱水,并在 4 °C 下保存,可保存长达 2 个月。
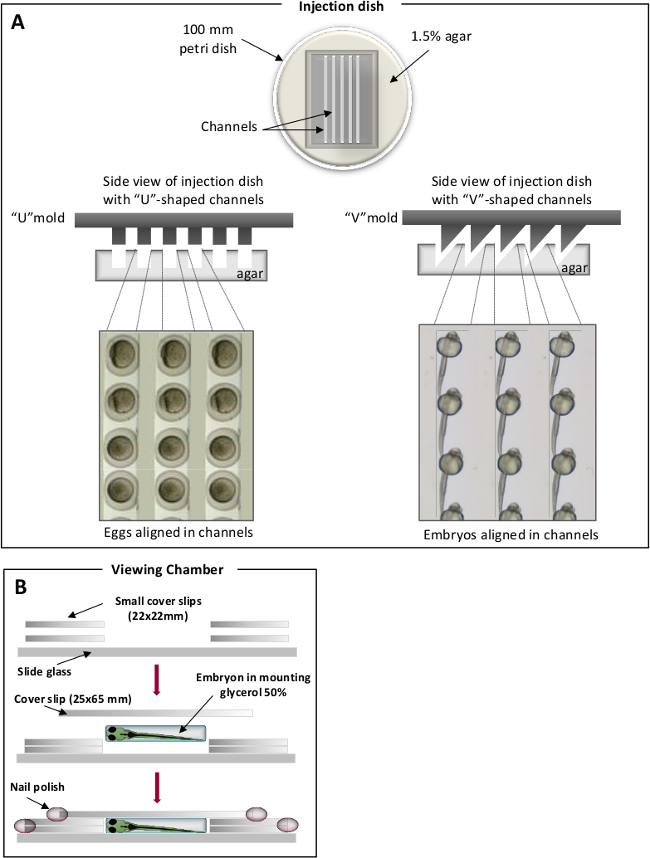
图1. 斑马鱼注射用定位腔室。(A) 用于卵的U形通道(左图)和用于胚胎的V形通道(右图)。斑马鱼卵/胚胎被放置在通道中,并沿同一轴线排列。(B) 用于显微观察的观察室。请点击此处查看该图的放大版本。
2. M. abscessus 接种物的制备与保存
- M. abscessus 生长条件
- 将 -80°C 甘油保藏的 M. abscessus 接种至含 10% OADC 和 0.5% 甘油的 Middlebrook 7H10 琼脂平板(7H10OADC)上,根据编码荧光蛋白的载体所携带的抗性标记添加相应的抗生素。于 30 °C 培养 4–5 天。
- 挑取一个荧光阳性的分枝杆菌菌落,接种至含有 OADC、0.2% 甘油和 0.05% Tween 80(7H9OADC/T)并添加所需抗生素的 1 ml Middlebrook 7H9 液体培养基中,置于 15 ml 无菌塑料管内。于 30 °C 静置培养 1 周。
注:Tween 80 可减少菌体聚集和结团。 - 将步骤 2.1.2 获得的预培养物重悬于 50 ml Middlebrook 7H9OADC/T 培养基中,分装至 150 cm2 组织培养瓶,调整终浓度为 OD600 = 0.1(相当于约 5×10⁷ 个细菌/ml),于 30 °C 继续培养 4 天,获得对数生长期菌液(OD600 = 0.6 至 0.8)。
注:为尽量减少结团,尤其是粗糙型菌株,培养时间不应超过 5 天。光滑型与粗糙型菌株的生长速率相似。
- M. abscessus 接种物的制备
注:由于粗糙型 M. abscessus 极易形成大聚集体并产生索状结构,因此在对胚胎进行显微注射前,必须经过特定处理以获得均一且定量可控的接种物。该处理同样适用于虽有聚集但程度较轻的光滑型菌株。- 将 150 cm2 组织培养瓶中对数生长期的菌液在室温下以 4,000 × g 离心 15 分钟,收集菌体至 50 ml 无菌塑料管中,弃上清后用 1 ml 7H9OADC/T 重悬菌体沉淀。将菌悬液分装至 1.5 ml 微量离心管中,每管 200 µl。
注:使用小体积样品和 1 ml 注射器操作,有助于获得高度均一的菌悬液。 - 用 26 号针头反复抽吸 15 次以均质化菌悬液,随后在水浴超声仪中进行三次超声处理,每次 10 秒,两次之间间隔 10 秒。加入 1 ml 7H9OADC/T 后短暂涡旋混匀,再以 100 × g 离心 3 分钟。
- 小心吸取含有分枝杆菌的上清液以避免吸入聚集体,并将均质化的菌悬液汇集至一个 50 ml 无菌塑料管中。
- 肉眼观察是否存在残留的细菌聚集体。
注:若仍有聚集体存在,可再进行一次 100 × g 离心 2 分钟,随后收集上清液。 - 将菌悬液以 4,000 × g 离心 5 分钟,弃上清后用 200 µl 7H9OADC/T 重悬菌体沉淀,立即用于注射。
- 通过将菌液进行系列稀释(使用 1 × PBST),涂布于 7H10OADC 琼脂平板,在 30 °C 培养 4 天后计数菌落形成单位(CFU),以确定最终细菌浓度。每批新制备的接种物均应测定 CFU。
- 将 5 µl 分装的接种物储存于 -80 °C,制备冷冻接种物储备液。
注:在使用 -80 °C 冷冻分装物前,必须测定其 CFU,因为冻融过程可能影响接种物中细菌的活力。这些冷冻接种物可直接用于后续注射实验。由于各分装管中 CFU 数量一致,因此可在不同实验间实现可重复的细菌注射。
- 将 150 cm2 组织培养瓶中对数生长期的菌液在室温下以 4,000 × g 离心 15 分钟,收集菌体至 50 ml 无菌塑料管中,弃上清后用 1 ml 7H9OADC/T 重悬菌体沉淀。将菌悬液分装至 1.5 ml 微量离心管中,每管 200 µl。
- 接种物质量控制
注:可采用抗酸染色法(Ziehl-Neelsen 染色,特异性针对分枝杆菌)比较 2.2 节所述均质化处理前后菌悬液的质量。- 取一滴均质化后的菌悬液点样并涂布于载玻片上,待其完全干燥后,在 65–70 oC 的加热板上固定至少 30 分钟,然后按照 Ziehl-Neelsen 染色方案进行染色。
- 使用显微镜 100 倍油镜观察染色后的涂片,并与未经处理的菌悬液涂片进行比较(图 2)。

图 2. 分散的M. abscessus接种物的制备。对在液体培养基中生长的R型或S型变异株,在任何处理前(上图)或处理后(下图)进行齐-尼染色,以减少分枝杆菌聚集体的大小和数量(依次进行吹打、超声处理和倾注洗涤)。使用配备100倍APO油镜(NA 1.4)的显微镜观察细菌。比例尺:20 µm。请点击此处查看该图的放大版本。
3. 准备斑马鱼胚胎
- 斑马鱼卵的产卵与收集
- 在产卵前一天,将成年斑马鱼放入繁殖室中进行配种,繁殖室由一个独立的鱼缸和卵收集篮组成,通常放入2条雄鱼和1条雌鱼(通常2:1的比例可获得最佳受精率)31。
注意:卵收集篮用于防止亲鱼吃掉卵,并便于卵的收集。 - 在受精后1小时(hpf),收集卵,并将发育正常的胚胎转移至盛有25 ml蓝色养鱼水的100 mm培养皿中(每皿最多放置100个胚胎),并在28.5 °C条件下培养。未受精的卵应丢弃。
- 在产卵前一天,将成年斑马鱼放入繁殖室中进行配种,繁殖室由一个独立的鱼缸和卵收集篮组成,通常放入2条雄鱼和1条雌鱼(通常2:1的比例可获得最佳受精率)31。
- 斑马鱼胚胎注射前的准备
- 在受精后约24小时(hpf),使用精细镊子在100 mm培养皿中去除胚胎的绒毛膜,并在28.5 °C条件下继续培养。
- 使用移液器收集30–48 hpf的胚胎,并转移至一个“V”形定位腔室中,腔室内加入25 ml含有270 mg/L三卡因的养鱼水。使用自制的微加载尖端工具(经修剪的微型加载尖端)将胚胎正确地放置于通道中,以优化后续的显微操作。
注意:进行尾静脉静脉内注射时,应使胚胎背侧朝下;进行尾部肌肉注射时,则应使背侧朝上。
4. 显微注射步骤
注意:M. abscessus 的显微注射操作步骤与先前报道的 M. marinum 注射方法32 类似。为评估 M. abscessus 感染的时间进程(包括存活率、细菌载量、感染动力学及感染特征),建议在 30 小时受精后(hpf)胚胎的尾静脉进行注射。为观察免疫细胞的募集情况,可在局部位点注射,例如在 48 小时受精后(hpf)胚胎的尾部肌肉进行注射。
- 根据步骤 2.2.6 确定的需接种的菌落形成单位(CFU)数量,将分枝杆菌接种物稀释于含 10% 红色酚红的 1 × PBST 中,以确认注射操作正确。
- 使用微量移液吸头将 5–10 µl 细菌接种物吸入毛细玻璃注射针中,将微注射针插入连接至注射仪的三维显微操作器的针夹内,并用精细镊子折断针尖,使开口直径达到 5–10 µm。
- 通过调节微注射压力(20–50 hPa)和时间(0.2 秒)来校准注射体积。
注意:通过肉眼观察接种物在胚胎卵黄中排出液滴的直径,来确定所需的注射体积。 - 进行尾静脉注射时,将胚胎腹侧朝向注射针(如第 3.2.2 节所述),将针尖置于泄殖腔开口附近,对准尾静脉,轻柔推进针尖进入胚胎,直至刚好刺入尾静脉区域。注入所需体积的细菌悬液,通常为 1–3 nl,每 nl 含约 100 CFU。
- 进行肌肉注射时,将胚胎背侧朝向注射针(如第 3.2.2 节所述),将针尖置于一个体节上方,注入少量接种物(1 nl)。
注意:与尾静脉注射类似,肌肉注射操作也具有挑战性,需注意避免过量注射而损伤周围组织。 - 注射完成后,将相同体积的细菌悬液注入一滴无菌 PBST 中,随后涂布于 7H10OADC 培养基上计数 CFU,以确认接种剂量。每根注射针可完成约 100 条胚胎的注射。
注意:由于粗糙型 M. abscessus 可能在注射针内持续形成聚集体,因此接种物制备后应立即进行注射。 - 将感染后的鱼类个体转移至含有 2 ml/孔鱼用培养水的 24 孔板中,于 28.5 °C 下培养。以注射 1–3 nl 1 × PBST 的胚胎作为对照组。
- 使用荧光显微镜观察胚胎中荧光标记细菌的感染情况。
5. 巨噬细胞耗竭胚胎的制备
注意:选择性耗竭组织中的巨噬细胞可用于研究其在感染过程中的作用与贡献。为直观验证巨噬细胞的耗竭效果,建议使用表达荧光蛋白的转基因品系,其中mCherry在巨噬细胞特异性mpeg1启动子的调控下特异性表达19。
- 基于脂质体包裹氯膦酸盐的实验步骤
注意:脂质体包裹氯膦酸盐(lipo-clodronate)处理可实现组织中巨噬细胞的选择性清除(但不影响中性粒细胞)19。该化合物既不改变胚胎存活率,也不影响细菌的完整性。脂质体包裹氯膦酸盐的详细制备方案已有文献报道33。- 在受精后24小时(24 hpf),去除胚胎的卵膜,并将其转移至装有含三卡因(tricaine)鱼水的“V”形注射培养皿中,以维持胚胎处于麻醉状态直至注射操作完成,具体操作如3.2.2节所述。将胚胎背侧朝下放置。
- 用脂质体包裹的氯膦酸盐(lipo-clodronate)溶液填充显微注射针,将该注射针安装至三维显微操作仪的针夹上,并使用精细镊子折断针尖,使针尖开口直径约为10 µm。
- 为校准注射体积,将显微注射压力调节至20 hPa,注射时间设为0.2秒。将针尖靠近泌尿生殖孔,对准尾静脉,轻柔推进针尖进入胚胎,直至刚好刺入尾静脉区域,注入所需体积的溶液(2–3 nl,注射3次)。
注意:lipo-clodronate悬浮液黏性较强,注射前应充分涡旋混匀,以避免堵塞血管系统并导致胚胎死亡。务必采用多次小体积连续注射的方式进行操作。 - 将注射后的胚胎转移至含有鱼水的100 mm培养皿中,并在28.5 °C条件下培养至感染实验开始。
- 通过荧光显微镜观察确认巨噬细胞是否被有效清除。
注意:在给予lipo-clodronate后,巨噬细胞的完全清除效果可持续4天。
- 基于吗啉寡核苷酸(morpholino)的实验步骤
- 在产卵前一天,将2条雄鱼和1条雌鱼用塑料隔板分隔后放入繁殖盒中,进行成年斑马鱼的配对繁殖。
- 次日,在斑马鱼饲养室光照开启约30分钟后,移除分隔雄鱼与雌鱼的隔板。在开始产卵后约20分钟内收集卵子,以优化受精率。收集卵子后,将其转移至盛有冷蓝色鱼水(4 °C)的100 mm培养皿中,以减缓其发育速度。
注意:精确控制产卵时间对于基于吗啉寡核苷酸的实验至关重要。吗啉寡核苷酸只能在卵子发育至四细胞期之前完成注射。 - 使用移液器收集卵子,并将其放入盛有冷蓝色鱼水的“U”形注射槽中,利用自制的微加载工具将卵子固定在槽道内。
- 按照先前报道的方法19,配制含有10%红色酚(red phenol)的pu.1吗啉寡核苷酸溶液。用该吗啉寡核苷酸溶液填充显微注射针,将注射针安装至三维显微操作仪的针夹上,然后用精细镊子折断针尖,使针尖开口直径达到5–10 µm。
- 为校准注射体积,将显微注射压力调节至20–50 hPa,注射时间设为0.2秒。将针尖靠近卵子,轻柔地穿过卵膜进入卵内,注入所需体积的吗啉寡核苷酸溶液,通常为3–5 nl。
- 显微注射完成后,将卵子转移至含有鱼水的100 mm培养皿中,并在28.5 °C条件下孵育,直至感染实验开始。
- 在30至48 hpf期间,通过荧光显微镜分析pu.1吗啉寡核苷酸处理胚胎中巨噬细胞是否实现有效(完全)清除。.
注意:根据注射浓度的不同,pu.1吗啉寡核苷酸可能也会影响早期中性粒细胞的数量。为在不影响中性粒细胞数量的前提下确认巨噬细胞的特异性清除,建议使用双转基因斑马鱼品系,其巨噬细胞和中性粒细胞分别带有荧光标记(中性粒细胞特异性表达GFP,由mpx启动子驱动)19。
6. 细菌负荷定量
- 菌落形成单位计数法测定
- 在预定时间点,将感染的胚胎分组收集至1.5 ml微量离心管中(每管1个胚胎,每种条件5个胚胎),置于冰上孵育10分钟以进行低温麻醉,随后使用过量三卡因(300–500 mg/L)实施安乐死。
- 用无菌水洗涤胚胎两次,将胚胎转移至新离心管中,使用26号针头加入用1×PBST稀释的2% Triton X-100裂解每个胚胎,并将悬液充分匀浆直至完全裂解。离心悬液后,将沉淀重悬于含0.05% Tween 80的1×PBST中。将匀浆液进行系列稀释后,接种于Middlebrook 7H10培养基平板上OADC 并根据供应商建议添加BBL MGIT PANTA补充剂。
注意: M. abscessus 比……更容易受到 NaOH 处理的影响 M. marinum 鱼裂解液的去污染而不影响 M. abscessus 使用BBL MGIT PANTA抗生素混合液可成功实现培养。 - 将培养板在37°C、5% CO₂培养箱中孵育4天 30 °C 并计数菌落。
- 通过活体胚胎中的荧光像素计数(FPC)测量进行测定
注意:为确定细菌载量 通过 荧光发射,使用为 ImageJ 免费软件开发的自制宏,通过 FPC(基于颗粒分析鉴定细菌)获取感染胚胎的连续图像并测量荧光强度。颗粒分析需要基于阈值范围的二值黑白图像,以区分目标荧光信号与背景。- 在预定时间点,按照3.2.2节所述方法,用三卡因麻醉感染的胚胎(每组条件5-10个)置于35 mm培养皿中。
- 移除水后,用含1%低熔点琼脂糖的鱼水浸没胚胎及整个培养皿表面,随后将胚胎侧向排列。在凝固的琼脂糖上覆盖含有三卡因的鱼水。
- 使用10倍物镜的落射荧光显微镜采集整个胚胎的荧光图像。
注意:荧光图像采集是FPC测量过程中的关键步骤。必须使用经校准的显示器和颜色校准探头。在采集过程中调整最佳曝光时间以获得最低背景信号,防止信号饱和。图像必须为8位tiff格式。为保证定量分析的准确性,整个实验过程中需保持相同的成像设置。 - 小心使用自制的微量移液头工具去除胚胎中的琼脂糖。如有需要,这些胚胎可用于后续分析。在定量细菌载量之前,每张图像都应进行质量控制。为分析图像并将荧光强度转换为每尾鱼的荧光蛋白浓度(FPC),请打开 ImageJ 免费软件。
注意:FPC 值反映了细菌负荷,如先前研究所示 M. marinum34. - 使用未感染胚胎的图像确定图像分析所需的阈值(可使用多个对照胚胎获得平均阈值)。前往图像 → 调整 → 阈值,然后在阈值窗口中将底部滑块向右移动,直至背景完全变为黑色即, 为获得背景值,应将其调至零,记录相应数值。
- 在 Image J 中,打开 FPC 宏(补充文件),并按照提示操作:定位待测图像所在的文件夹,输入先前确定的阈值,然后点击“OK”。
注意:该宏会自动减去背景,随后应用阈值。荧光信号通过颗粒分析进行识别。 - 将摘要窗口中的数据复制并粘贴到所需的数据分析软件中。
注意:与菌落形成单位(CFU)测定方法相比,荧光蛋白定量(FPC)方法具有非侵入性,可重复利用胚胎进行后续分析,并能够对个体水平上细菌负荷的动态变化/动力学进行监测。因此,该方法有助于显著减少实验动物使用数量,符合伦理规范要求。
7. 成像 M. abscessus 感染的胚胎
- 活体成像 M. abscessus 感染
- 将经三卡因麻醉的胚胎(见3.2.2)置于35 mm培养皿中的1%低熔点琼脂糖中,用于落射荧光显微镜观察前的固定。进行倒置共聚焦显微镜观察时使用玻璃底培养皿,进行正置共聚焦显微镜观察时使用单腔凹玻片。将胚胎调整至所需位置,并在凝固的琼脂糖上覆盖含三卡因的养鱼用水。
- 使用配备10倍物镜的落射荧光显微镜,对整个胚胎进行连续荧光采集和透射光图像获取。或者,使用配备40倍或63倍物镜的共聚焦显微镜观察感染后免疫细胞的活动情况。
- 成像固定后的 M. abscessus 感染胚胎
- 按照6.1.1所述方法处死胚胎,并将其转移至1.5 ml微量离心管中,用含4%多聚甲醛的1×PBST在室温下固定2小时,或在4 °C下过夜。用1×PBST洗涤胚胎两次,每次10分钟,以去除多聚甲醛。
注意:为保持荧光信号,固定后的胚胎必须避光保存。 - 为保持组织完整性和荧光信号,将胚胎依次在甘油浓度递增的溶液(10%、20%、30%、40%和50%,均用1×PBST稀释)中孵育,每种条件孵育10分钟。
注意:固定后的胚胎可在4 °C下以50%甘油保存数月。 - 将包埋在50%甘油中的胚胎置于观察室(图1B)31中。
- 在共聚焦显微镜上使用40倍或63倍物镜进行成像。
- 按照6.1.1所述方法处死胚胎,并将其转移至1.5 ml微量离心管中,用含4%多聚甲醛的1×PBST在室温下固定2小时,或在4 °C下过夜。用1×PBST洗涤胚胎两次,每次10分钟,以去除多聚甲醛。
访问受限。请登录或开始试用以查看此内容。
结果
尽管可注射多种解剖位点32,尾静脉注射常用于建立全身性感染,以便后续进行生存实验、细菌负荷测定、吞噬活性分析或类绳索结构形成等研究。尾部肌肉注射则用于评估巨噬细胞在注射部位的募集情况(图3A)。为研究和比较M. abscessus粗糙型(R)与光滑型(S)变异株的毒力,可将荧光标记的细菌悬液注射至30 hpf胚胎的尾静脉中(图3A)19。与S型变异株相比,R形态型在斑马鱼胚胎中引发更强烈且致死性的感染(图3B),其特征是在中枢神经系统(CNS)内迅速形成细菌性脓肿(图3C)。R型和S型变异株的全身注射均可导致中枢神经系统感染,其病理学差异和毒力表型可通过荧光显微镜观察(图3C)、每尾鱼的菌落形成单位(CFU)计数(图3D)或图像的荧光像素计数(FPC)定量分析(图3E)进行量化。重要的是,CFU与FPC的测定结果具有相关性,均表明在感染后3天...
访问受限。请登录或开始试用以查看此内容。
讨论
斑马鱼最近已成为利用宽场和共聚焦成像实时研究细菌感染动态的优良脊椎动物模型系统36将分散的分枝杆菌悬液(方案2.2)与显微注射方法(方案4)相结合,可实现可重复的系统性感染,并能够后续监测和可视化感染进展过程,特别关注细菌与宿主巨噬细胞之间的相互作用。毒力 M. abscessus 体内 可借助野生型的使用进行研究 金色 斑马鱼37研究相互作用 M. abscessus 以及宿主髓系细胞,可使用多种转基因斑马鱼品系,例如 Tg(mpeg1:mCherry) 以观察巨噬细胞19. 其他转基因报告基因品系,例如 as Tg(mpx:GFP)38 或 Tg(lyz:DsRed)39 分别使用绿色或红色的中性粒细胞,也可用于研究这些粒细胞在应对感染时的特定作用。
M. abscessus,尤其是粗糙型(R型)变异株,具有自然形成大...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 K. Kissa 提供有益的讨论以及脂质体包裹的氯膦酸盐,感谢 L. Ramakrishnan 慷慨赠送可用于表达 tdTomato 和 Wasabi 的质粒 pTEC27 与 pTEC15。本研究工作是法国国家科研署(ZebraFlam 项目 ANR-10-MIDI-009 和 DIMYVIR 项目 ANR-13-BSV3-007-01)以及欧洲共同体第七框架计划(FP7-PEOPLE-2011-ITN)资助项目(编号:PITN-GA-2011-289209)“Marie-Curie 初始培训网络 FishForPharma”的组成部分。我们还感谢 Association Gregory Lemarchal 和 Vaincre La Mucoviscidose(项目编号 RF20130500835)对 C.M. Dupont 的经费支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| BBL MGIT PANTA | BD 生物科学 | 245114 | |
| 牛血清白蛋白 | Euromedex | 04-100-811-E | |
| 牛肝过氧化氢酶 | Sigma-Aldrich | C40 | |
| Difco Middlebrook 7H10 琼脂 | BD 生物科学 | 262710 | |
| Difco Middlebrook 7H9 肉汤 | BD 生物科学 | 271310 | |
| 甲磺酸乙酯间氨基苯甲酸盐(Tricaine) | Sigma-Aldrich | A5040 | |
| 油酸 | Sigma-Aldrich | O1008 | |
| 多聚甲醛 | Delta Microscopie | 15710 | |
| 酚红 | Sigma-Aldrich | 319244 | |
| 吐温 80 | Sigma-Aldrich | P4780 | |
| 琼脂 | Gibco Life Technologie | 30391-023 | |
| 低熔点琼脂糖 | Sigma-Aldrich | ||
| Instant Ocean 海水盐 | Aquarium Systems Inc | ||
| 硼硅酸盐玻璃毛细管 | Sutter Instrument Inc | BF100-78-10 | 1 mm 外径 × 0.78 mm 内径 |
| 微量移液管拉制仪 | Sutter Instrument Inc | Flamming/Brown 微量移液管拉制仪 p-87 | |
| 显微注射仪 | Tritech Research | 数字显微注射仪,MINJ-D | |
| 镊子 | Sciences Tools Inc | Dumont # M5S | |
| 微量加样器吸头 | Eppendorf |
参考文献
- Brown-Elliott, B. A., Wallace, R. J. Clinical and taxonomic status of pathogenic nonpigmented or late-pigmenting rapidly growing mycobacteria. Clinical Microbiology Reviews. 15 (4), 716-746 (2002).
- Aitken, M. L., Limaye, A., et al. Respiratory outbreak of Mycobacterium abscessus subspecies massiliense in a lung transplant and cystic fibrosis center. American Journal of Respiratory and Critical Care Medicine. 185 (2), 231-232 (2012).
- Gilljam, M., Lindblad, A., Ridell, M., Wold, A. E., Welinder-Olsson, C. Molecular epidemiology of Mycobacterium abscessus, with focus on cystic fibrosis. Journal of Clinical Microbiology. 45 (5), 1497-1504 (2007).
- Roux, A. -L., Catherinot, E., et al. Multicenter study of prevalence of nontuberculous mycobacteria in patients with cystic fibrosis in France. Journal of Clinical Microbiology. 47 (12), 4124-4128 (2009).
- Lee, M. -R., Cheng, A., et al. CNS infections caused by Mycobacterium abscessus complex: clinical features and antimicrobial susceptibilities of isolates. The Journal of Antimicrobial Chemotherapy. 67 (1), 222-225 (2012).
- Talati, N. J., Rouphael, N., Kuppalli, K., Franco-Paredes, C. Spectrum of CNS disease caused by rapidly growing mycobacteria. The Lancet Infectious Diseases. 8 (6), 390-398 (2008).
- Medjahed, H., Gaillard, J. -L., Reyrat, J. -M. Mycobacterium abscessus: a new player in the mycobacterial field. Trends in Microbiology. 18 (3), 117-123 (2010).
- Griffith, D. E., Girard, W. M., Wallace, R. J. Clinical features of pulmonary disease caused by rapidly growing mycobacteria. An analysis of 154 patients. The American Review of Respiratory Disease. 147 (5), 1271-1278 (1993).
- Nessar, R., Cambau, E., Reyrat, J. M., Murray, A., Gicquel, B. Mycobacterium abscessus: a new antibiotic nightmare. The Journal of Antimicrobial Chemotherapy. 67 (4), 810-818 (2012).
- Sanguinetti, M., Ardito, F., et al. Fatal pulmonary infection due to multidrug-resistant Mycobacterium abscessus a patient with cystic fibrosis. Journal of Clinical Microbiology. 39 (2), 816-819 (2001).
- Griffith, D. E., Aksamit, T., et al. An official ATS/IDSA statement: diagnosis, treatment, and prevention of nontuberculous mycobacterial diseases. American Journal of Respiratory and Critical Care Medicine. 175 (4), 367-416 (2007).
- Howard, S. T., Rhoades, E., et al. Spontaneous reversion of Mycobacterium abscessus a smooth to a rough morphotype is associated with reduced expression of glycopeptidolipid and reacquisition of an invasive phenotype. Microbiology (Reading, England). 152 (Pt 6), 1581-1590 (2006).
- Chardi, A., Olivares, F., Byrd, T. F., Julián, E., Brambilla, C., Luquin, M. Demonstration of cord formation by rough Mycobacterium abscessus variants: implications for the clinical microbiology laboratory. Journal of Clinical Microbiology. 49 (6), 2293-2295 (2011).
- Byrd, T. F., Lyons, C. R. Preliminary characterization of a Mycobacterium abscessus mutant in human and murine models of infection. Infection and Immunity. 67 (9), 4700-4707 (1999).
- Catherinot, E., Clarissou, J., et al. Hypervariance of a rough variant of the Mycobacterium abscessus type strain. Infection and Immunity. 75 (2), 1055-1058 (2007).
- Catherinot, E., Roux, A. -L., et al. Acute respiratory failure involving an R variant of Mycobacterium abscessus. Journal of Clinical Microbiology. 47 (1), 271-274 (2009).
- Bernut, A., Le Moigne, V., Lesne, T., Lutfalla, G., Herrmann, J. -L., Kremer, L. In vivo assessment of drug efficacy against Mycobacterium abscessus using the embryonic zebrafish test system. Antimicrobial Agents and Chemotherapy. 58 (7), 4054-4063 (2014).
- Oh, C. -T., Moon, C., Jeong, M. S., Kwon, S. -H., Jang, J. Drosophila melanogaster for Mycobacterium abscessus infection. Microbes and Infection / Institut Pasteur. 15 (12), 788-795 (2013).
- Bernut, A., Herrmann, J. -L., et al. Mycobacterium abscessus cording prevents phagocytosis and promotes abscess formation. Proceedings of the National Academy of Sciences of the United States of America. 111 (10), E943-E952 (2014).
- Dubée, V., Bernut, A., et al. β-Lactamase inhibition by avibactam in Mycobacterium abscessus. Journal of Antimicrobial Chemotherapy. 70 (4), 1051-1058 (2015).
- Torraca, V., Masud, S., Spaink, H. P., Meijer, A. H. Macrophage-pathogen interactions in infectious diseases: new therapeutic insights from the zebrafish host model. Disease Models Mechanisms. 7 (7), 785-797 (2014).
- Alibaud, L., Rombouts, Y., et al. A Mycobacterium marinum TesA mutant defective for major cell wall-associated lipids is highly attenuated in Dictyostelium discoideum and zebrafish embryos. Molecular Microbiology. 80 (4), 919-934 (2011).
- Clay, H., Volkman, H. E., Ramakrishnan, L. Tumor necrosis factor signaling mediates resistance to mycobacteria by inhibiting bacterial growth and macrophage death. Immunity. 29 (2), 283-294 (2008).
- Palha, N., Guivel-Benhassine, F., et al. Real-time whole-body visualization of Chikungunya Virus infection and host interferon response in zebrafish. PLoS pathogens. 9 (9), e1003619(2013).
- Mostowy, S., Boucontet, L., et al. The zebrafish as a new model for the in vivo study of Shigella flexneri with phagocytes and bacterial autophagy. PLoS pathogens. 9 (9), e1003588(2013).
- Prajsnar, T. K., Cunliffe, V. T., Foster, S. J., Renshaw, S. A. A novel vertebrate model of Staphylococcus aureus reveals phagocyte-dependent resistance of zebrafish to non-host specialized pathogens. Cellular Microbiology. 10 (11), 2312-2325 (2008).
- Van der Sar, A. M., Appelmelk, B. J., Vandenbroucke-Grauls, C. M. J. E., Bitter, W. A star with stripes: zebrafish as an infection model. Trends in Microbiology. 12 (10), 451-457 (2004).
- Vergunst, A. C., Meijer, A. H., Renshaw, S. A., O’Callaghan, D. Burkholderia cenocepacia creates an intramacrophage replication niche in zebrafish embryos, followed by bacterial dissemination and establishment of systemic infection. Infection and Immunity. 78 (4), 1495-1508 (2010).
- Levraud, J. -P., Disson, O., et al. Real-time observation of Listeria monocytogenes-phagocyte interactions in living zebrafish larvae. Infection and Immunity. 77 (9), 3651-3660 (2009).
- Meijer, A. H., Spaink, H. P. Host-pathogen interactions made transparent with the zebrafish model. Current Drug Targets. 12 (7), 1000-1017 (2011).
- Westerfield, M. The Zebrafish Book: A Guide for the Laboratory Use of Zebrafish (Danio Rerio). , (2007).
- Benard, E. L., van der Sar, A. M., Ellett, F., Lieschke, G. J., Spaink, H. P., Meijer, A. H. Infection of zebrafish embryos with intracellular bacterial pathogens. Journal of Visualized Experiments. (61), e3781(2012).
- Van Rooijen, N., Sanders, A. Liposome mediated depletion of macrophages: mechanism of action, preparation of liposomes and applications. Journal of Immunological Methods. 174 (1-2), 83-93 (1994).
- Adams, K. N., Takaki, K., et al. Drug tolerance in replicating mycobacteria mediated by a macrophage-induced efflux mechanism. Cell. 145 (1), 39-53 (2011).
- Ramakrishnan, L. Looking within the zebrafish to understand the tuberculous granuloma. Advances in Experimental Medicine and Biology. 783, 251-266 (2013).
- Davis, J. M., Clay, H., Lewis, J. L., Ghori, N., Herbomel, P., Ramakrishnan, L. Real-time visualization of Mycobacterium-macrophage interactions leading to initiation of granuloma formation in zebrafish embryos. Immunity. 17 (6), 693-702 (2002).
- Lamason, R. L., Mohideen, M. -A. P. K., et al. SLC24A5, a putative cation exchanger, affects pigmentation in zebrafish and humans. Science (New York, NY). 310 (5755), 1782-1786 (2005).
- Renshaw, S. A., Loynes, C. A., Trushell, D. M. I., Elworthy, S., Ingham, P. W., Whyte, M. K. B. A transgenic zebrafish model of neutrophilic inflammation. Blood. 108 (13), 3976-3978 (2006).
- Hall, C., Flores, M. V., Storm, T., Crosier, K., Crosier, P. The zebrafish lysozyme C promoter drives myeloid-specific expression in transgenic fish. BMC developmental biology. 7, 42(2007).
- Takaki, K., Davis, J. M., Winglee, K., Ramakrishnan, L. Evaluation of the pathogenesis and treatment of Mycobacterium marinum in zebrafish. Nature Protocols. 8 (6), 1114-1124 (2013).
- Stoop, E. J. M., Schipper, T., et al. Zebrafish embryo screen for mycobacterial genes involved in the initiation of granuloma formation reveals a newly identified ESX-1 component. Disease Models Mechanisms. 4 (4), 526-536 (2011).
- Carvalho, R., de Sonneville, J., et al. A high-throughput screen for tuberculosis progression. PloS One. 6 (2), e16779(2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
