本文介绍了两种实验方案:一种用于检测能够成功侵入宿主并在其中存活的厌氧菌,另一种用于观察厌氧菌与宿主细胞之间的相互作用。该研究可应用于任何可培养的厌氧菌以及任何真核细胞类型。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在人体多个微环境(如肠道、口腔和阴道)中,厌氧菌的数量远超需氧菌。此外,厌氧菌感染较为常见,且多为内源性感染。某些厌氧病原体具有侵入人体细胞的能力,借此获得逃避免疫系统先天防御的适应性机制,并可调控宿主细胞行为。然而,在研究这些过程的实验中,确保厌氧菌保持活性可能面临挑战。Porphyromonas gingivalis 是一种革兰氏阴性厌氧菌,能够侵入多种真核非吞噬性细胞。本文概述了如何成功培养P. gingivalis,并评估其侵入人脐静脉内皮细胞(HUVECs)的能力。本研究建立了两种实验方案:一种用于检测能够成功侵入并在宿主细胞内存活的细菌,另一种用于观察细菌与宿主细胞的相互作用。这些技术需要使用厌氧培养箱,为P. gingivalis提供适宜生长的厌氧环境。
第一个方案基于抗生素保护实验,该方法被广泛用于研究细菌对宿主细胞的侵袭。然而,抗生素保护实验存在局限性:仅能检测经抗生素处理和宿主细胞裂解后仍可培养的胞内细菌。为了评估与宿主细胞相互作用的所有细菌(包括活菌和死菌),我们开发了一种利用荧光显微镜观察宿主-病原体相互作用的实验方案。细菌用2',7'-双(2-羧乙基)-5-(和-6)-羧基荧光素乙酰甲酯(BCECF-AM)进行荧光标记,并在厌氧条件下用于感染真核细胞。经多聚甲醛固定和0.2% Triton X-100透化处理后,使用TRITC标记的鬼笔环肽和DAPI对宿主细胞的细胞骨架和细胞核分别进行染色。通过在不同焦平面获取多张图像(Z轴层扫),实现细菌的时间-空间可视化。本研究中使用的方法可适用于任何可培养的厌氧菌以及任何类型的真核细胞。
引言
厌氧菌几乎定植于人体的所有表面。尽管在氧气浓度较低的肠道和泌尿生殖道菌群中占主导地位,它们也大量存在于皮肤、口腔、鼻腔和咽喉部位1。厌氧菌是内源性感染的常见病因,常从病变部位分离得到。然而,由于其营养要求苛刻,厌氧菌的分离与培养往往较为困难。涉及厌氧菌的研究必须在受限条件下进行。现代厌氧培养技术使研究人员能够模拟研究多种厌氧实验室菌株甚至临床分离株所需的厌氧环境2,3。
致病性厌氧菌与其寄生的宿主细胞之间已形成动态关系并共同进化。大多数厌氧菌在达到感染水平之前易被宿主免疫反应杀灭。然而,某些致病菌已进化出逃逸或干扰宿主免疫反应的机制。这些细菌通过逃避免疫识别、中和免疫介质、改变细胞介导的免疫、侵入宿主细胞以及干扰免疫信号通路等方式实现这一目标。4. 牙龈卟啉单胞菌一种与口腔及口腔外疾病相关的革兰氏阴性厌氧菌, 是一种高度适应的细菌病原体,能够引起宿主的致病性改变5-7.
牙齿与牙龈黏膜组织之间形成的深沟隙中积聚的生物膜菌斑微区可藏匿厌氧细菌,使其免受大气氧的暴露8这些牙周袋为多种厌氧病原体提供了生态位,例如 P. gingivalis9. P. gingivalis 是一种关键的病原菌,能够重塑口腔微生物群落,从而促进牙周病的发生与发展10它能产生大量毒力因子,这些因子可作用于多种宿主蛋白,并提供逃避宿主防御机制的途径。11它还能够侵入上皮细胞、内皮细胞、成纤维细胞和牙周膜细胞 体外12-14 和 体内15通过有效侵入宿主细胞, P. gingivalis 能够逃避免疫系统的攻击。有效侵入宿主细胞不仅使细菌得以逃避宿主防御机制,还可作为未来再次感染的储存库,同时改变宿主细胞的生理状态。因此,有必要深入研究宿主细胞介导细菌黏附与内化过程所涉及的分子机制。目前多个实验室的研究重点集中在解析细菌内化过程中相关的分子事件 P. gingivalis 宿主细胞的反应以及病原体用于抑制和劫持免疫反应并逃避宿主防御机制的策略。
能够识别和表征入侵宿主细胞病原体的检测方法有多种。然而, 体外 厌氧病原体研究给科研人员带来诸多实验难题,主要原因是难以在无氧条件下使用大型仪器开展实验。此外,真核细胞生长需要氧气,因此必须在组织培养孵箱中单独进行培养,这进一步增加了实验复杂性。一种可能的解决方法是在常氧环境下开展研究,但这会使厌氧菌无法生长。另一种方法是使用热灭活细菌来模拟感染并研究宿主细胞相互作用,然而热灭活细菌与活菌之间存在差异,会降低宿主-病原体相互作用研究的相关性16研究与宿主细胞相互作用且基因表达未发生改变的活菌至关重要;因此,培养这些细菌的方法对于 P. gingivalis 在厌氧条件下进行的方法已给出。此外,还展示了两种简单且具有成本效益的方案,用于评估 P. gingivalis 被人类脐静脉内皮细胞(HUVECs)内化。第一种方案基于常用的抗生素保护实验。尽管该实验操作简便,但使用厌氧微生物时需加以考虑。第二种方案需要使用荧光扫描显微镜来观察相互作用及内化的细胞 P. gingivalis每种检测方法均有其局限性与优势,本文将对此进行讨论,以期为研究者提供厌氧菌侵袭性的研究框架。尽管本论文研究 P. gingivalis 以及HUVECs,这些方案也可用于多种其他厌氧细菌和其他类型的宿主细胞。
访问受限。请登录或开始试用以查看此内容。
方案
以下方案将描述培养和研究厌氧菌P. gingivalis侵袭的方法;然而,这些方案也可用于多种其他厌氧病原体。尽管本方案使用了HUVECs,但也可适用于其他免疫性和非免疫性的真核细胞。
1. 厌氧培养箱的使用与维护
注意:P. gingivalis 是一种对空气中正常氧浓度敏感的厌氧菌。培养 P. gingivalis 必须具备可控的厌氧环境。
- 在此,于乙烯基厌氧室中维持一种指定为混合厌氧气体(80% N2, 10% H2, 10% CO2)的人工环境(图1A)。使用气闸室(图1B)将物品从实验室环境转移至厌氧室。气闸室需手动操作,在引入混合厌氧气体前,先用 N2 气体置换两次。
- 使用硫化氢去除柱(图1C)以实现无需维护的硫化氢清除。在厌氧室内放置除湿器,以去除催化剂反应生成的 H2O,避免产生促进污染扩散的气溶胶。
注意:硫化氢是多种厌氧细菌自然代谢的副产物,其积累对细菌具有毒性,并可能导致电子设备损坏以及催化剂寿命缩短。 - 使用风扇箱将厌氧室内的气体循环通过钯催化剂,以在氢气存在条件下去除氧气(图1D)。
注意:循环空气(HEPA)过滤器可去除粒径为 0.22 µm 或更大的空气传播污染物。 - 在位于厌氧室内部的 37 °C 培养箱中培养厌氧细菌。在厌氧室内操作时,应采用标准无菌技术。
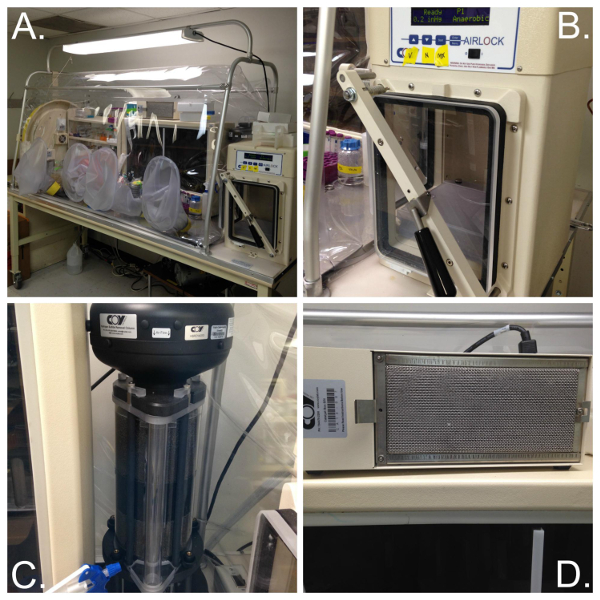
图1. 厌氧乙烯基室及其组件。(A)一个完全与大气氧隔离的乙烯基厌氧室,可同时为两人提供操作空间(32 英寸 × 78 英寸)。室内配备一个设定在 37 °C 的培养箱(后中部)。(B)气闸室用于将物品从实验室环境转移至厌氧室。图示为一个通过控制器操作的自动气闸室,可编程自动执行创建厌氧环境所需的抽真空和吹扫程序。(C)硫化氢去除柱可无需维护地高效去除有害的硫化氢。(D)两个催化剂风扇箱分布在厌氧室内,用于促进腔体内部气氛通过钯催化剂循环,在氢气存在下除去氧气。厌氧室的设置应按照制造商的说明进行。请点击此处查看该图的放大版本。
2. 厌氧菌的制备
注意:P. gingivalis 具有耐氧性,可在有氧条件下保存,但在氧气浓度高于6%的环境中无法生长17,18。培养P. gingivalis及其他厌氧菌时必须使用厌氧培养箱(图1)。操作微需氧菌前,必须接受关于厌氧培养箱使用的规范培训与教育19。
- 在实验前至少12小时将所有液体培养基和培养板平衡至厌氧条件,以去除残留的氧气。
- 将牙龈卟啉单胞菌(P. gingivalis)从-80 °C冰箱转移至厌氧工作站,使其解冻。
- 用接种环将牙龈卟啉单胞菌(P. gingivalis)划线接种于胰蛋白酶大豆血琼脂平板(TSA II,含5%绵羊血)。用Parafilm封膜后,于37 °C厌氧培养箱中培养4–7天。
- 使用无菌接种环将牙龈卟啉单胞菌(P. gingivalis)接种至3 ml添加了血红素和甲萘醌的脑心浸液(BHI)液体培养基中,该培养基为富集型非选择性液体培养基,适用于厌氧菌和苛养微生物的分离与培养。
注意:如需长期保存,可将BHI培养的菌液与甘油或DMSO混合(终浓度10–20%),置于-80 °C冰箱保存。 - 通过1:10稀释制备牙龈卟啉单胞菌(P. gingivalis)的起始培养物,并让细菌生长至对数中期。
注意:需测定细菌悬液的光密度,并调整待检测各菌株的细菌浓度。对于牙龈卟啉单胞菌(P. gingivalis),OD660 为 0.7 的悬液对应于对数生长中期,细菌浓度约为 7 × 10⁸ 个细胞/ml。上述方案中描述的培养条件专用于牙龈卟啉单胞菌(P. gingivalis),其他细菌菌株可能需要进行相应调整。
3. 内皮细胞培养
注意:购买混合的原代人脐静脉内皮细胞(HUVEC),并按照生产商说明书在含有血管内皮生长因子(VEGF)的基础培养基中,于37 °C、5% CO2条件下进行培养。
- 在15 ml VEGF培养基中,以每瓶2.5 × 10⁵ 个细胞的密度将HUVECs接种于T-75培养瓶中。
注意:通过与4.0%台盼蓝按1:1稀释来检测细胞活力。细胞膜受损的细胞会摄取台盼蓝,而在双目光学显微镜下观察时,膜完整健康的细胞则呈白色。计数100个细胞,确保存活率超过80%20。 - 每隔2天更换一次预热的新鲜VEGF培养基,直至细胞融合度达到约80%。
- 用预热的PBS洗涤细胞一次。加入2 ml 0.25%胰蛋白酶-EDTA溶液,孵育5分钟,随后加入2 ml胰蛋白酶中和液,使细胞从T-75培养瓶中脱落。
- 将悬浮的HUVECs收集至50 ml锥形管中。用PBS冲洗T-75培养瓶中残留的细胞,并转移至50 ml锥形管中。
- 以200 × g离心10分钟。
- 弃去上清液,将细胞沉淀重悬于10 ml预热的VEGF培养基中。
- 使用血细胞计数板或类似的细胞计数装置测定细胞浓度。
- 根据细胞悬液浓度计算需接种至6孔板(每孔400,000个细胞)或含盖玻片的12孔板(每孔50,000个细胞)的体积。HUVECs将于次日准备好用于实验。
4. 存活率检测侵袭/相互作用(铺板)
注意:进行此实验时,准备两块6孔板,每孔接种400,000个内皮细胞。其中一块用于评估与宿主细胞结合并被其内化的细菌;另一块用于检测胞内细菌。使用6孔板可在一次实验中对两个样本进行三重复实验。本实验方案的流程请参见存活率检测流程图(图2)。
- 按照上述方法(见第1部分)培养厌氧菌,直至其达到对数中期生长(OD660 0.5-0.7).
- 在5,000 × g条件下离心细菌10分钟。
注意:若离心机位于厌氧工作站外部,需将菌液样本置于密封良好的15 ml离心管中,并用封口膜包裹管盖以防氧气渗入。 - 将沉淀物置于 P. gingivalis 回到培养室后,弃去上清液。用PBS洗涤,再次离心收集细菌沉淀,然后在VEGF培养基中重悬。将所有待测菌株分别制备成OD值相同的悬液660 0.7,对应于对数生长中期(约 7 x 10⁸ 细胞/ml)。细菌现在可用于感染实验。
- 将含有 HUVECs 的 6 孔板从组织培养孵箱转移至厌氧舱内。吸除培养基,并用厌氧 PBS 洗涤三次。每孔加入 2 ml 厌氧 VEGF 培养基,将培养板置于 37 °C 在厌氧培养箱中孵育20分钟,以平衡温度,用于感染实验。
注意:将细菌接种于血琼脂平板上培养,以确保用于感染的菌株具有均一性,且在感染前未受污染。 - 以细菌感染复数(MOI 细菌:宿主细胞)为 100:1 的条件感染宿主细胞。
注:感染前通过对单个孔进行台盼蓝排斥实验来确定 HUVEC 细胞数量。细菌细胞数量通过光密度(例如, OD 为 0.5 时 = 5 × 10⁸ 细胞/ml)。根据 HUVECs 的浓度将细菌浓度调整至适当的 MOI21. - 将含有感染HUVCE的6孔板放入厌氧培养箱中,使细菌与宿主细胞相互作用30分钟。
- 在厌氧舱内用BHI(1.0% w/v)配制皂苷,并通过滤膜过滤 0.2 µm 过滤器
- 附着和内化细菌的存活率
- 从培养箱中取出培养板,吸除培养基,用厌氧 PBS 洗涤三次,加入 2 ml 过滤后的 1.0% 皂苷溶液(按步骤 4.8 所述方法配制)。孵育 15 分钟,使宿主细胞裂解。
- 用细胞刮刀刮取每个孔的底部。收集每个孔中的细胞混合物,并用BHI进行1:1稀释。
- 继续对样品进行连续稀释。根据细菌种类和浓度,调整稀释倍数。起始稀释比例可选择1:100或1:1,000。
- 培养皿 200 µl 按所需稀释度涂布于血琼脂平板上。用 Parafilm 封口膜包裹平板,置于厌氧培养箱中培养 37 °C.
- 孵育七天后 37 °C移除培养皿,使用光源箱手动计数菌落形成单位(CFUs)。
注意:需对菌落形成单位(CFUs)进行计数。当 CFUs 数量较多时,可拍摄图像并使用计算机软件辅助完成 CFUs 的计数。
- 细胞内细菌的存活率
- 从培养箱中取出培养板,用厌氧 PBS 洗涤三次,加入含补充抗生素的 2 ml VEGF 培养基(300 µg/ml 庆大霉素 400 µg/ml 甲硝唑的
- 孵育1小时。务必测试抗生素,确保其对目标细菌菌株具有100%的杀灭效果,并确认其不会穿透宿主细胞。22,23.
- 吸弃培养基,加入 2 ml 过滤的 1.0% 皂苷溶液。孵育 15 分钟,以使宿主细胞裂解。
- 用细胞刮刀刮取每个孔底部的细胞。收集每个孔中的细胞混合物,并用BHI进行1:1稀释。
- 将样品进行连续稀释(1:100,1:1,000)。
- 培养皿 200 µl 在血琼脂平板上进行所需稀释度的涂布。用 Parafilm 封膜包裹平板,置于厌氧培养箱中。
- 孵育七天后 37 °C 移除平板并计数菌落形成单位(CFUs)。
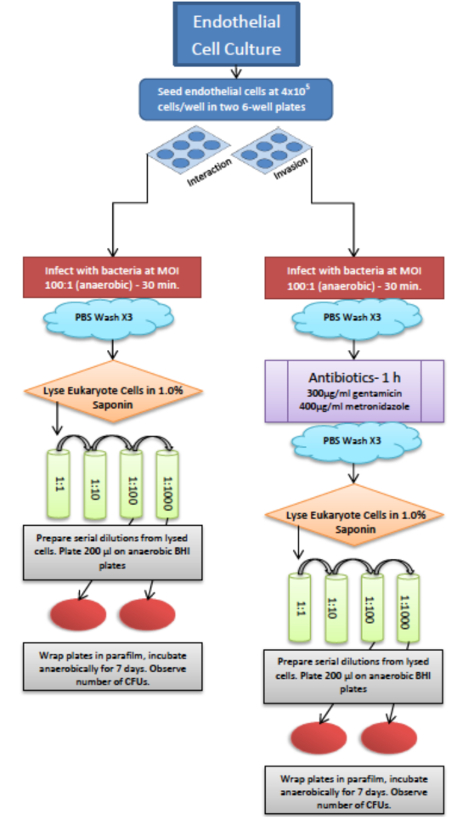
图2. 厌氧菌与真核细胞共存实验方案的示意图。可同时进行总细菌存活率和内化细菌存活率的两项检测。请点击此处查看该图的放大版本。
5. 细菌进入宿主细胞的内化作用(荧光显微镜观察)
注意:P. gingivalis 使用 2',7'-双(2-羧乙基)-5-(和-6)-羧基荧光素乙酰氧基甲酯(BCECF-AM)进行标记。BCECF-AM 是一种无荧光、可穿透细胞膜的染料;其在细胞内酯酶的作用下转化为荧光素 BCECF,可用于指示细胞活力。P. gingivalis 经 BCECF-AM 染色后用于感染真核细胞。感染后,细胞经固定并用 DAPI 和 TRITC-鬼笔环肽进行染色。用于染色真核细胞细胞核的 DAPI 也可标记细菌的细胞核,从而提供一种识别无法通过代谢切割 BCECF-AM 的非活性细菌的对照方法。宿主细胞则用 TRITC-鬼笔环肽(一种红色肌动蛋白染料)进行标记。
- 高压灭菌盖玻片。在接种内皮细胞前,无菌地将盖玻片加入12孔板中,每孔接种 5 × 10⁴ 个细胞。(实验前一天准备)
- 按照上述方法,将内皮细胞接种于12孔板中的18 mm(#1.5厚度)圆形盖玻片上。
- 按照第1节所述方法,准备处于对数中期生长阶段的厌氧细菌(OD660 = 0.5–0.7)。
- 用厌氧PBS洗涤细菌两次:在5,000 × g 条件下离心,将菌体沉淀重悬于PBS中,终浓度为5–7 × 10⁸ 个细胞/mL。
- 向2 mL细菌悬液(5–7 × 10⁸ 个细胞/mL)中加入20 µL的0.2 mM BCECF-AM,使BCECF-AM的终浓度为2 µM。
- 在37 °C避光孵育30分钟。
- 将接种有内皮细胞的18 mm(#1.5厚度)圆形盖玻片的12孔板从细胞培养箱转移至厌氧工作站中,用PBS洗涤,并更换为厌氧VEGF培养基。
注意:在光学显微镜下确认HUVECs细胞状态良好。HUVECs应达到约80%汇合度,形态应与生产商提供的标准一致。 - 将标记后的细菌在5,000 × g 条件下离心10分钟,以去除残留的BCECF-AM染料,然后重悬于2 mL厌氧VEGF培养基中。
- 以感染复数(MOI)100:1(细菌:宿主细胞)的比例,用标记的细菌感染宿主细胞。
- 在厌氧工作站中37 °C孵育30分钟。
- 感染后,用PBS洗涤细胞三次,然后用新配制的4.0%多聚甲醛固定10分钟。
注意:细胞固定后,后续实验可在厌氧工作站外进行。 - 用PBS洗涤盖玻片三次。
- 加入1 mL 0.2% Triton X-100,作用10分钟。
- 用PBS洗涤盖玻片三次。
- 向盖玻片上加入50 µL TRITC鬼笔环肽(50 µg/mL),孵育45分钟。
- 洗涤盖玻片三次,从12孔板中取出,置于载玻片上,使用含DAPI的软封片剂封片,并用指甲油封边。
注意:载玻片可在避光条件下保存数月。避免光照以防止荧光淬灭。 - 使用共聚焦显微镜观察样本。
- 此处使用34通道光谱系统(32通道阵列探测器和两个侧置PMT探测器,以及一个透射光探测器),该系统基于AxioObserver(倒置)显微镜平台,配备电动XY载物台。系统配备五种激光器:蓝色二极管(405 nm)、多线氩离子(458、488、514 nm)、绿色二极管(561 nm)、红色HeNe(633 nm)以及440 nm脉冲激光器。荧光寿命成像系统(FRET-FLIM)配备两个杂化GaAsP探测器。
- 使用双通道滤光片同时检测DAPI和TRITC的荧光信号,激发波长分别为340–380 nm和540–560 nm,发射波长分别为435–485 nm和570–590 nm。使用激发波长440–500 nm、发射波长510–590 nm的滤光片检测BCECF-AM的荧光信号。
注意:对每种研究的细菌菌株均应设置BCECF-AM的对照实验,以确保活细菌标记正确。首先验证死细菌为DAPI阳性而BCECF阴性;其次确认活细菌能够将BCECF-AM代谢为荧光素BCECF。可能需要测试不同浓度的细菌或BCECF-AM染料,以获得最佳标记效果。
访问受限。请登录或开始试用以查看此内容。
结果
上述方案用于研究牙龈卟啉单胞菌(P. gingivalis)与内皮细胞之间的宿主-病原体相互作用。本研究中使用了P. gingivalis W83菌株以及携带PG0228基因缺失的P. gingivalis V3150突变菌株。PG0228基因预测可编码一种可能影响RNA和蛋白质水平的蛋白质,最终可能影响P. gingivalis与宿主细胞的相互作用。为探究PG0228对P. gingivalis与宿主细胞相互作用能力的影响,比较了亲本菌株与突变菌株与人脐静脉内皮细胞(HUVECs)相互作用的能力。本研究采用了存活实验方案(图2)。因此,两种菌株均按照步骤2所述条件培养至对数生长期。两种菌株具有相似的生长曲线,因此在感染前对细胞数量进行归一化处理时未遇到显著问题。经过七天的孵育后,在血琼脂平板上观察到菌落形成单位(CFUs)(图3)。将不同稀释度的样品(1:10(图3A)、1:100(图3C)和1:1,000(
访问受限。请登录或开始试用以查看此内容。
讨论
上述所有方法均可用于设计特异性检测厌氧菌与真核细胞相互作用的实验。然而,要成功开展这些实验,需考虑若干因素。首先是研究所用的微生物菌株。
在使用存活率检测和显微镜分析比较两种菌株时,确保它们处于相似的生长阶段并达到相近的细胞浓度至关重要,因为上述任何差异都可能影响侵袭效率13。当两种细菌菌株的生长曲线不同时,应进行调整,以最终获得具有稳定浓度的相似生长模式21。此外,应将细菌均匀分散,避免细胞聚集。同时,选择能够有效清除胞外细菌的抗生素也极为关键。如果所选抗生素对宿主细胞具有不良影响,则可使用其他替代抗生素或裂解酶24,25。最后,必须考虑菌株异质性;尽管某一种细菌可能被确认具有侵入宿主细胞的能力,但不同菌株之间的致病性可能存在显著差异26,因此应对每一种待研究的菌株开展预实验。
第二个关键步骤是在设计实验方案时确定最佳的孵育时间与细菌接种量(感染复数 [MOI],即用于感染宿主细胞的细菌数量)。较短的孵育时间可用于评估细菌被宿主细胞内化的...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢宫崎博博士、Scott Henderson博士、Todd Kitten博士、Justin Hutcherson博士、Catherine Jauregui博士以及Collin R. Berry。本研究由美国国立卫生研究院国家牙科与颅面研究所(NIH NIDCR)资助,项目编号为R01DE016124、R01DE018039和R01DE023304,授予J.P. Lewis。
显微成像在弗吉尼亚联邦大学解剖学与神经生物学系显微成像中心完成,部分资金来自美国国立卫生研究院神经疾病与中风研究所中心核心资助(5P30NS047463)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙烯厌氧培养箱-型号B | Coy Laboratory Products | Model 2000 培养箱 | |
| 含5%羊血的TSA II胰蛋白酶大豆琼脂 | BBL | 221261 | |
| 人脐静脉内皮细胞(10名供体混合样本) | LifeLine Technology | FC-0044 | |
| VascuLife VEGF完全培养基试剂盒 | LifeLine Technology | LL-0003 | |
| TrypKit | LifeLine | LL-0013 | |
| 皂苷 | Riedel-de Haen | 16109 | |
| 硫酸庆大霉素盐 | Sigma-Aldrich | G-1264 | |
| 甲硝唑 | Sigma-Aldrich | M-3761 | |
| BCECF-AM | LifeTechnologies | B1150 | |
| TRITC鬼笔环肽 | Sigma-Aldrich | P1951 | |
| 18 mm圆形盖玻片 | Electron Microscopy Sciences | 72222-01 | |
| 含DAPI的VectaShield封片剂 | Vector Laboratories | H-1200 |
参考文献
- Hentges, D. J. The Anaerobic Microflora of the Human Body. Clin. Infect. Dis. 16 (4), S175-S180 (1993).
- Willis, A. T. Anaerobic bacteriology: clinical and laboratory practice. , (2014).
- Wren, M. W., Baldwin, A. W., Eldon, C. P., Sanderson, P. J. The anaerobic culture of clinical specimens: a 14-month study. J. Med. Microbiol. 10 (1), 49-61 (1977).
- Woolard, M. D., Frelinger, J. A. Outsmarting the host: bacteria modulating the immune response. Immunol. Res. 41 (3), 188-202 (2008).
- Mayrand, D., Holt, S. C. Biology of asaccharolytic black-pigmented Bacteroides species. Microbiol. Rev. 52 (1), 134-152 (1988).
- Lamont, R. J., Jenkinson, H. F. Life below the gum line: pathogenic mechanisms of Porphyromonas gingivalis. Microbiol. Mol. Biol. Rev. 62 (4), 1244-1263 (1998).
- Haffajee, A. D., Socransky, S. S. Microbial etiological agents of destructive periodontal diseases. Periodontol. 2000. 5 (1), 78-111 (1994).
- Listgarten, M. A. Structure of the microbial flora associated with periodontal health and disease in man. A light and electron microscopic study. J. Periodontol. 47 (1), 1-18 (1976).
- Ximénez-Fyvie, L. A., Haffajee, A. D., Socransky, S. S. Comparison of the microbiota of supra- and subgingival plaque in health and periodontitis. J. Clin. Periodontol. 27 (9), 648-657 (2000).
- Darveau, R. P., Hajishengallis, G., Curtis, M. A. Porphyromonas gingivalis as a potential community activist for disease. J. Dent. Res. 91 (9), 816-820 (2012).
- Holt, S. C., Kesavalu, L., Walker, S., Genco, C. A. Virulence factors of Porphyromonas gingivalis. Periodontol. 2000. 20 (1), 168-238 (1999).
- Lamont, R. J., Yilmaz, öZ. In or out: the invasiveness of oral bacteria. Periodontol. 2000. 30 (1), 61-69 (2002).
- Lamont, R. J., et al. Porphyromonas gingivalis invasion of gingival epithelial cells. Infect. Immun. 63 (10), 3878-3885 (1995).
- Belton, C. M., Izutsu, K. T., Goodwin, P. C., Park, Y., Lamont, R. J. Fluorescence image analysis of the association between Porphyromonas gingivalis and gingival epithelial cells. Cell. Microbiol. 1 (3), 215-223 (1999).
- Rautemaa, R., et al. Intracellular localization of Porphyromonas gingivalis thiol proteinase in periodontal tissues of chronic periodontitis patients. Oral Dis. 10 (5), 298-305 (2004).
- Kaufmann, S. H. Immunity to intracellular bacteria. Annu. Rev. Immunol. 11 (1), 129-163 (1993).
- Diaz, P., Rogers, A. The effect of oxygen on the growth and physiology of Porphyromonas gingivalis. Oral Microbiol. Immunol. 19 (2), 88-94 (2004).
- Lewis, J. P., Iyer, D., Anaya-Bergman, C. Adaptation of Porphyromonas gingivalis to microaerophilic conditions involves increased consumption of formate and reduced utilization of lactate. Microbiology. 155, 3758-3774 (2009).
- Edwards, A. N., Suarez, J. M., McBride, S. M. Culturing and maintaining Clostridium difficile in an anaerobic environment. J. Vis. Exp. (79), e50787(2013).
- Strober, W. Trypan blue exclusion test of cell viability. Curr. Protoc. Immunol. , (2001).
- Koch, A. L., Crandall, M. Photometric measurement of bacterial growth. The American Biology Teacher. 30 (6), 481-485 (1968).
- Wikins, T. D., Holdeman, L. V., Abramson, I. J., Moore, W. E. Standardized single-disc method for antibiotic susceptibility testing of anaerobic bacteria Antimicrob. Agents Chemother. 1 (6), 451-459 (1972).
- Bauer, A. W., Kirby, W. M., Sherris, J. C., Turck, M. Antibiotic susceptibility testing by a standardized single disk method. Am. J. Clin. Pathol. 45 (4), 493-496 (1966).
- Mandell, G. L. Interaction of intraleukocytic bacteria and antibiotics. J. Clin. Invest. 52 (7), 1673-1679 (1973).
- Menzies, B. E., Kourteva, I. Internalization of Staphylococcus aureus by endothelial cells induces apoptosis. Infect. Immun. 66 (12), 5994-5998 (1998).
- Naito, M., et al. Determination of the genome sequence of Porphyromonas gingivalis strain ATCC 33277 and genomic comparison with strain W83 revealed extensive genome rearrangements in P. gingivalis. DNA Res. 15 (4), 215-225 (2008).
- Goebel, W., Kuhn, M. Bacterial replication in the host cell cytosol. Curr. Opin. Microbiol. 3 (1), 49-53 (2000).
- Gospodarowicz, D. III C. Extracellular matrix and control of proliferation of vascular endothelial cells. J. Clin. Invest. 65 (6), 1351-1364 (1980).
- DeQuach, J. A., et al. Simple and high yielding method for preparing tissue specific extracellular matrix coatings for cell culture. PloS One. 5 (9), e13039(2010).
- Sellers, J. R., Cook, S., Goldmacher, V. S. A cytotoxicity assay utilizing a fluorescent dye that determines accurate surviving fractions of cells. J. Immunol. Methods. 172 (2), 255-264 (1994).
- Van Veen, H. W., et al. Generation of a proton motive force by the excretion of metal-phosphate in the polyphosphate-accumulating Acinetobacter johnsonii strain 210A. J. Biol. Chem. 269 (47), 29509-29514 (1994).
- Jackson, V. N., Halestrap, A. P. The kinetics, substrate, and inhibitor specificity of the monocarboxylate (lactate) transporter of rat liver cells determined using the fluorescent intracellular pH indicator, 2',7'-bis(carboxyethyl)-5(6)-carboxyfluorescein. J. Biol. Chem. 271 (2), 861-868 (1996).
- He, J., et al. Role of Porphyromonas gingivalis FeoB2 in metal uptake and oxidative stress protection. Infect. Immun. 74 (7), 4214-4223 (2006).
- Anaya-Bergman, C., et al. Porphyromonas gingivalis ferrous iron transporter FeoB1 influences sensitivity to oxidative stress. Infect. Immun. 78 (2), 688-696 (2010).
- Ueshima, J., et al. Purification, gene cloning, gene expression, and mutants of Dps from the obligate anaerobe Porphyromonas gingivalis. Infect. Immun. 71 (3), 1170-1178 (2003).
- Johnson, M. B., Criss, A. K. Fluorescence microscopy methods for determining the viability of bacteria in association with mammalian cells. JoVE. (79), (2013).
- Cordes, T., Maiser, A., Steinhauer, C., Schermelleh, L., Tinnefeld, P. Mechanisms and advancement of antifading agents for fluorescence microscopy and single-molecule spectroscopy. Physical Chemistry Chemical Physics. 13 (14), 6699-6709 (2011).
- Pawley, J. Handbook of biological confocal microscopy. , (2010).
- Gursoy, U., Könönen, E., Uitto, V. Prevotella intermedia ATCC 25611 targets host cell lamellipodia in epithelial cell adhesion and invasion. Oral Microbiol. Immunol. 24 (4), 304-309 (2009).
- Sengupta, D., et al. Interaction of Prevotella intermedia strain 17 leucine-rich repeat domain protein AdpF with eukaryotic cells promotes bacterial internalization. Infect. Immun. 82 (6), 2637-2648 (2014).
- Reyes, L., Herrera, D., Kozarov, E., Roldán, S., Progulske-Fox, A. Periodontal bacterial invasion and infection: contribution to atherosclerotic pathology. J. Clin. Periodontol. 40, S30-S50 (2013).
- Grant, M. M., et al. Oxygen tension modulates the cytokine response of oral epithelium to periodontal bacteria. J. Clin. Periodontol. 37 (12), 1039-1048 (2010).
- Biedermann, A., Kriebel, K., Kreikemeyer, B., Lang, H. Interactions of Anaerobic Bacteria with Dental Stem Cells: An In Vitro Study. PloS One. 9 (11), e110616(2014).
- Kriebel, K., Biedermann, A., Kreikemeyer, B., Lang, H. Anaerobic Co-Culture of Mesenchymal Stem Cells and Anaerobic Pathogens-A New In Vitro Model System. PloS One. 8 (11), e78226(2013).
- Peyyala, R., Kirakodu, S. S., Novak, K. F., Ebersole, J. L. Oral microbial biofilm stimulation of epithelial cell responses. Cytokine. 58 (1), 65-72 (2012).
- Halldorsson, S., Lucumi, E., Gòmez-Sjöberg, R., Fleming, R. M. Advantages and challenges of microfluidic cell culture in polydimethylsiloxane devices. Biosens Bioelectro. 63, 218-231 (2015).
- Iyer, D., et al. AdpC is a Prevotella intermedia 17 leucine-rich repeat internalin-like protein. Infect. Immun. 78 (6), 2385-2396 (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
