本论文报告了一种使用果蝇种群培养笼定期培养黑腹果蝇(Drosophila melanogaster)种群的详细实验方案。
本文内容
摘要
摘要
生物化学和分子生物学实验通常需要大量的 DNA、RNA、蛋白质及其他细胞组分。Drosophila 较短的生活周期使其能够以较低的经济成本,同步地从胚胎、幼虫、蛹和成虫中收集到大量材料。大量繁殖果蝇的主要策略之一是使用果蝇群体培养笼。这一在Drosophila研究领域中常用且实用的工具,可根据所需发育阶段的均一性,高效地定期产生毫克至数十克量级的胚胎。尽管建立群体培养笼可能耗时较长,但一旦建立,长期(数月)维持所需工作量显著减少,并可在短时间内快速获取大量生物材料。本文介绍了一种详细且灵活的Drosophila melanogaster群体培养笼维持方案,起始材料为上一轮收获的1.5克材料。
引言
结合遗传学与生物化学方法的能力使得Drosophila成为进行生物化学和分子生物学研究的尤为合适的模式生物1-3。此类研究通常需要大量的生物材料,不仅来自成年果蝇,还包括幼虫4、蛹5和胚胎6-8。为了获得大量材料,研究人员使用称为果蝇"群体培养笼"的大型容器来培养果蝇。这些培养笼由塑料制成的圆柱体构成,两端覆盖网罩,以便将食物引入笼内,同时防止果蝇逃逸。这些培养笼可自行制作9-11,也可从公司购买(见特定材料/设备表格)。
使用该系统大量培养果蝇的一个主要优势在于,可以控制果蝇的生命周期12,使所有果蝇以相对同步的方式发育。这种同步化通过在精确的时间点接种新胚胎、饲喂幼虫/成虫以及处死成年果蝇来实现。使用同步化的果蝇群体对于发育研究尤为有用13。
从少量果蝇开始建立一个新的种群培养笼是一个耗时的过程,需要经过多轮扩增9-11。即使使用较大的容器,如果蝇培养瓶或小型培养笼,整个过程仍可能持续数月。为了避免这一耗时的步骤,许多黑腹果蝇(Drosophila)实验室会定期维持此类种群培养笼。最便捷的方法是从已建立的种群培养笼中收集胚胎,以此作为新培养笼的起始材料。通常,大多数实验室会维持野生型种群培养笼,例如Oregon R或Canton S。本文提供了一套详细的果蝇种群培养笼维持实验方案。
方案
1. 启动周期:接种胚胎
注意:本周期起始于上一周期收集的 1.5 g 材料(由胚胎和/或部分一龄幼虫组成的混合物)。该材料将与活性酵母混合物一同放入塑料容器中(参见特定材料/设备列表),直至发育至蛹期。在将胚胎和幼虫的生物混合物加入容器后,需盖上盖子以防止幼虫逃逸。为保证空气流通,必须在盖子上打孔。为防止幼虫从孔中逃出,应使用泡沫塞。最后,建议佩戴手套和实验服,不仅在本步骤中,整个实验流程中均应如此,以避免衣物被漂白剂污染或沾染污渍。
- 设置塑料容器。
- 使用刀片在塑料容器盖上切出三个约2.2 cm的方形孔。在每个孔的四个角贴上胶带(3/4英寸标签胶带),以确保泡沫塞(50 × 55 mm,d × l)紧密贴合,然后在每个孔中插入一个泡沫塞。
- 用塑料保鲜膜覆盖塑料容器内部。在此薄膜上再铺一层棉花,覆盖塑料容器底部。用手将棉花撕碎。
- 准备果蝇培养基。
- 在500 ml烧杯中加入333 ml去离子水。在磁力搅拌器搅拌下,加入167 μl丙酸和1.08 ml磷酸(分别来自99.96%和85%的储备液)。
- 缓慢加入77.5 g活性干酵母,避免形成大块团块。待干酵母溶解后,加入38.8 g蔗糖。
注意:蔗糖应最后加入,因为一旦加入该成分,发酵将立即开始。
- 蔗糖溶解后立即把培养基倒在棉花上,并确保均匀覆盖。用盖子盖紧塑料容器,防止实验室内的果蝇逃逸并污染培养基。
- 将上一轮收获的1.5 g胚胎(未去壳)用5 ml 70%乙醇重悬。将两张滤纸各剪成两半,使用刮铲或宽口移液管(必要时可剪切)将生物混合物均匀分配至4张滤纸上。将滤纸平铺在浸湿的棉花上,盖上盖子。最后,将塑料容器在室温(24ºC)和湿度(35%)条件下培养至蛹期。
注意:塑料容器不应置于湿室中,否则会促进细菌生长。
2. 周期的延续:从胚胎到成虫。
注意:本周期阶段从第1天将胚胎放入塑料容器开始,持续至第9天 稍后成虫将从蛹中羽化。在这8天内,无需进行任何操作,只需监测胚胎是否正常发育至下一阶段 果蝇 生活周期直至羽化。若幼虫在此期间开始死亡并变黑,需检查泡沫塞是否过紧,并确保提供充足的通风。此阶段是清洁上一轮使用过的果蝇群体培养笼的适宜时机。
- 在成年雌蝇将卵产入果蝇培养基后约 24 小时,观察胚胎发育为 1龄 幼虫(参见步骤 3)。这些幼虫将在步骤 1 准备的果蝇培养基中取食 4 天,期间生长并蜕皮两次,依次发育为 2龄 和 3龄 幼虫。
- 清洁果蝇群体培养笼。
- 将培养笼置于 4 ºC 环境中至少 30 分钟,以减缓果蝇活动。取下覆盖在笼子一侧的网罩,迅速用一个较大的生物危害塑料袋封住开口端,然后将笼内内容物倒入袋中。
- 保持生物危害袋覆盖在笼子一侧,将笼子垂直放置于水槽上方,使装有生物危害物的一侧朝下。小心取下塑料袋,防止果蝇逃逸,并将其丢弃至生物危害废物容器中。
- 小心地将上方网罩打开至足以形成一个小孔,用水冲洗笼子内部,使残留果蝇被冲入水槽。逐渐扩大开口,彻底清除笼内所有果蝇。
- 用清水和肥皂清洗培养笼及两个网罩。待网罩仍保持湿润时,将其固定在洁净干燥的培养笼两侧,并在笼内放入一张实验室吸水纸,以防止步骤 1.1.2 中准备的塑料膜粘附于笼壁。此时,培养笼已为下一个周期做好准备。
- 初始设置后第 4 天,观察幼虫进入化蛹阶段。幼虫在此阶段将持续 4 天。
注:在此阶段,蛹将覆盖塑料容器内整个棉质表面。 - 在蛹期期间且在首批成虫羽化前,打开塑料容器,将带有全部蛹的棉质材料连同其上的塑料膜一起转移至洁净的群体培养笼内的实验室吸水纸上。用双结封闭网罩,并清洗塑料容器及盖子,以备下一周期使用。
注:附着于盖子上的蛹应予以丢弃,并在羽化前通过高压灭菌或冷冻方式销毁。
3. 成虫果蝇。
注意:蛹期持续4天后,首批果蝇将从蛹中羽化。在24至48小时内,所有果蝇应已完成羽化。在此生命周期阶段,需提供食物,以创造适宜繁殖的环境。
- 准备糖蜜培养基平板。
- 在1 L的锥形瓶中加入556.25 ml去离子H2O、90 ml糖蜜和22 g琼脂。加入搅拌子,高压灭菌30 min,冷却后加入9.25 ml含10% Tegosept的95% EtOH。
- 将混合物倒入尺寸为21 × 14.5 cm的肉盘中。确保总体积足以制备15–17个平板。静置10–20 min使其凝固,并用塑料薄膜覆盖每个平板以防止干燥。可同时配制多个1 L锥形瓶。将糖蜜平板用塑料膜包裹后于4 ºC保存,待需要时使用。
- 将覆盖湿酵母的糖蜜平板放入成虫果蝇所在的饲养笼中。
- 在放入平板前,先将饲养笼置于4 ºC冷室中30 min。
- 在烧杯中加入200 ml去离子H2O,边搅拌边缓慢加入干酵母粉。当混合物稠度接近花生酱时停止添加干酵母,以防止果蝇陷入食物中。
注意:必须避免食物溶液凝固,否则将难以覆盖糖蜜平板,并在后续收卵过程中造成困难(参见第4.3节)。 - 取一张糖蜜平板,撕去其表面的塑料薄膜,用勺子或刮刀在其表面均匀涂布一层新配制的湿酵母,确保整个表面完全覆盖。
- 在饲养笼仍处于冷室中时,打开网口,小心地将涂有湿酵母的糖蜜平板放入笼内。关闭网口,将饲养笼移至室温环境。
注意:插入平板时可用一个空肉盘覆盖其上以方便操作,但需确保不阻碍果蝇接触糖蜜平板。
- 每24–48 hr更换一次食物平板,以防止酵母过度干燥。成虫果蝇对脱水极为敏感。
4. 周期结束:收集胚胎
注意:果蝇在羽化后 3 - 5 天时繁殖力最强。因此,在此期间进行收集可获得最高的胚胎产量。在完成所需的收集后,本周期即告结束。应按照步骤 2.2 的规定将果蝇处死,并清洁饲养笼。
- 通常,在果蝇羽化后2天,按照3.2.5节所述,将一个新的糖蜜托盘连同新鲜的湿性食物放入笼中。为提高产卵量,可用手指轻轻将湿酵母表面抹平并形成均匀薄层 尽可能保持不规则。如果笼内已有旧的食物托盘,在添加新托盘前,需小心将其移除,并丢弃至生物危害袋中。另一个提高产量的技巧是移除棉质层,使所有卵均产在食物中。将笼子置于室温条件下维持。
- 将胚胎观察为微小的白色斑点。
注意:卵已准备好收集。为常规维护果蝇饲养笼,建议收集时间为2天。此次收集物主要包含胚胎,极少含有1龄幼虫。st 三龄幼虫。参见代表性结果,了解不同采集时间点收获的胚胎的典型产量。 - 收集胚胎
- 将笼子置于冷室中约30分钟。在此期间,按照第1节所述准备下一个周期的塑料容器和果蝇食物。
- 在8 L的高压灭菌托盘中加入水 ¼ 总容量的,并加入 1 ml 10% Triton X-100。在将笼子置于冷室期间,小心移除糖蜜板并将其放入生物危害袋中。
- 将托盘从袋子中取出,并迅速浸入灭菌托盘中的洗涤剂溶液内(以防止果蝇逃逸)。密封生物危害袋,并将其放入生物危害容器中。不含洗涤剂的水中,果蝇不会被淹死。
- 使用大号画笔和蒸馏水枪将胚胎和酵母从糖蜜上冲洗下来。将培养板和糖蜜丢弃至生物危害废物盒中。
- 将溶液小心地通过三层筛网套装(最上层为30目粗筛,中间为40目,最下层为100目)过滤。用蒸馏水枪冲洗最上层的团块,直至无团块残留。
注意:成年果蝇和3rd 三龄幼虫将被保留在筛子30中。- 用蒸馏水冲洗高压灭菌托盘,并将冲洗液倒入筛网中。如果酵母仍有结块,移除上层筛网并重复此过程。大部分的 1st 以及全部的 2nd 三龄幼虫将保留在筛子中40。
- 移除第二个筛子。第三个(底部)筛子中的黄色物质是胚胎与小型1st 三龄幼虫。用蒸馏水枪将所有卵移至筛子的一侧,用刮勺收集并称重。
- 在这些周期中,胚胎/幼虫的收集产量介于7至13克之间。仅使用其中1.5克材料用于启动下一个周期(第1节)。其余胚胎可用于进一步处理,或予以弃置。
5. 后续处理
注意:未用于延续种群的胚胎可立即用于实验,或 alternatively 可在 -80 ℃ 冻存 ºC. 两种方案中,胚胎可能需要 首先进行去壳处理。
- 进行去壳处理时,将胚胎在50%次氯酸钠溶液中洗涤2分钟,然后用蒸馏水彻底冲洗。
- 冷冻胚胎时,先用纸巾用力按压以干燥胚胎,然后用刮勺将其转移至15或50 ml的锥形管中并称重。最后将锥形管浸入液氮中2 几秒钟。
结果
果蝇群体的维持基于其生命周期。因此,在将初始的胚胎和幼虫生物混合物放入塑料容器后(图1A受精卵最多在2天内孵化成幼虫,幼虫将生长4天,期间相对同步地经历不同的龄期幼虫阶段(参见 图1B).
幼虫完成第3次蜕皮后rd 幼虫龄期阶段,它们将化蛹,并在塑料容器内的棉絮表面以及容器盖内壁上形成蛹。图1C)。此化蛹期将持续约4天,直至果蝇完成变态过程。在此期间,强烈建议将果蝇转移至饲养笼中。自周期启动后第9至10天,首批成虫将开始羽化。图1D第11天时,所有个体均已从蛹中羽化。
在羽化后第3至5天(第13至15天)收集胚胎的产量最高,到第17天(羽化后7天)产量最终下降。因此,建议在第13天添加最后一盘新鲜食物,并在第15天收集卵(图1E 和 F),以获得最大数量的胚胎。若在收集前额外增加三天,可能导致食物过于干燥,从而降低所收集胚胎的产量。表1 显示了6个连续收集周期的产量情况,每个周期起始材料为1.5 g;图2 为推荐的完整周期收集时间安排。
在2天内收集的材料主要由胚胎组成,但也存在少量幼虫。从饲养笼维护的角度来看,这些幼虫并不会造成问题,因为一定程度的发育不同步是正常现象。然而,对于某些生物化学实验而言,胚胎的纯度至关重要,但同时又需要收集大量卵子以满足实验需求。因此,在快速加入含食物的新培养板后,于室温下分别在1小时和3小时进行多次连续短时收集,以评估该方法所能获得的产量和纯度(表2 和 图3)。1小时的连续收集初始产量较低(14.5 mg),但随后各次收集的胚胎量逐渐增加(最后一次除外)。初次产量较低可能是由于更换食物过程中果蝇受到应激所致,之后逐渐适应环境。另一方面,在五次连续收集中均未观察到幼虫(图3A),表明更短时间的收集可获得更高的纯度。若未将棉塞从饲养笼中移除,则前期发育的幼虫更有可能残留并进入新加入的培养板中。即使移除了棉塞,有时幼虫仍会沿饲养笼壁爬行,并在收集过程中进入食物中。
在连续收集3小时的情况下,产量范围为840至1250 mg,约为1小时收集量的10倍。这些胚胎的纯度接近100%(图3B)。偶尔可观察到少量幼虫。某些发育研究需要所收集胚胎具有高度同步性。为提高同步性纯度,建议弃去第一次收集的培养皿,因为在非理想条件下,雌性果蝇可能会保留较成熟的卵,并在条件改善时(例如更换新的培养皿后)将其产出。此外,需要注意的是,较老的成年果蝇(>6天)产生的胚胎同步性较低。为高精度验证胚胎同步程度,建议对收集的胚胎进行DAPI染色分析。
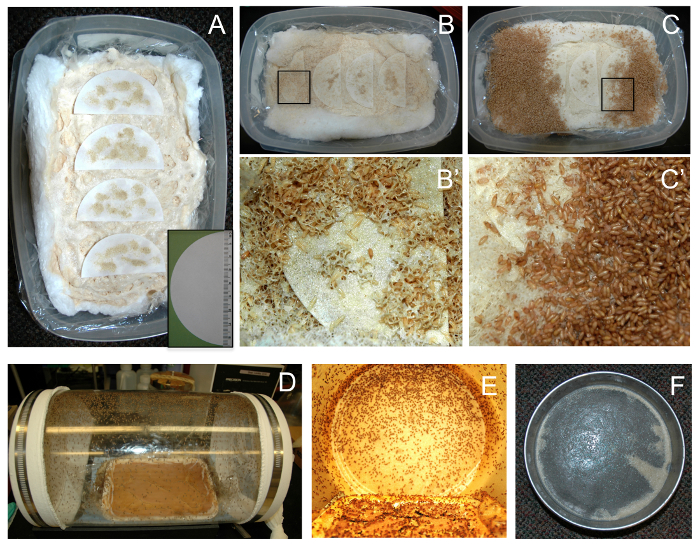
图1. 该 黑腹果蝇 果蝇种群培养笼中的生命周期 (A) 将1.5 g胚胎接种至塑料盒容器中以启动循环。作为参考,下图中标尺滤纸的长度为8.5 cm。B) 周期启动5天后,幼虫生长相对同步。C第8天时,大多数果蝇处于蛹期。下图面板中 B (B')和 C (C')是上图中相应区域的放大图像。D10天后,成虫从蛹中羽化。E第15天,在开始收集胚胎前,种群培养笼内的成虫。果蝇食物上黄白色的物质为已受精的卵。F经过整个笼周期后,从最粗的100目筛底部收集的胚胎(以及少量幼虫)。 请点击此处以查看此图的放大版本。
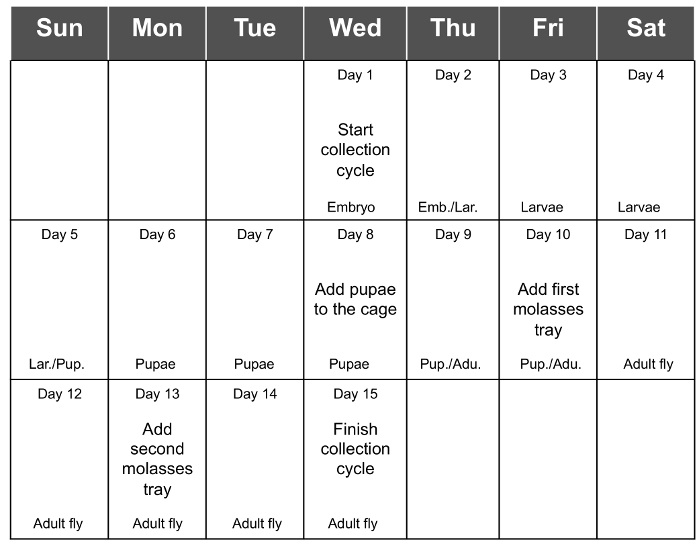
图2. 完整周期采集时间表。图2展示了完整周期采集的推荐时间安排。请点击此处查看该图的放大版本。
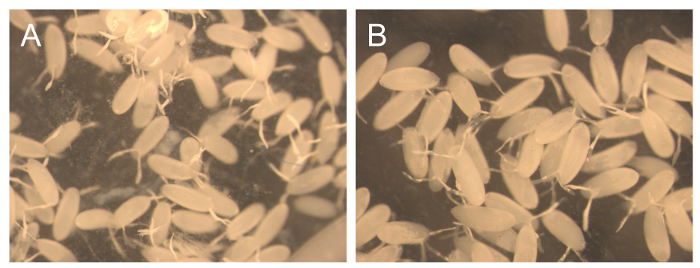
图 3. 连续收集1小时和3小时后的纯度。 在更换新食物培养皿后1小时(A)和3小时(B)收集的胚胎代表性图像。请点击此处查看该图的放大版本。
| 循环次数 | 产量 (g) |
| 1 | 10.3 |
| 2 | 9.5 |
| 3 | 10.3 |
| 4 | 12.7 |
| 5 | 10 |
| 6 | 7.1 |
表1. 多次循环收集的产量。 表1展示了6次连续循环收集的产量,起始物料量为1.5 g。每次循环中,第13天添加最后一盘食物,第15天进行收获。
| 收集编号 | 收集时长(小时) | 产量(mg) |
| 1 | 1 | 14.5 |
| 2 | 1 | 21.6 |
| 3 | 1 | 56.1 |
| 4 | 1 | 160.1 |
| 5 | 1 | 106.1 |
| 1 | 3 | 960 |
| 2 | 3 | 840 |
| 3 | 3 | 1250 |
表2. 1小时和3小时连续采集的产量。表2显示了添加新食物后连续5次1小时采集以及放置新糖蜜板后连续3次3小时采集的产量。
讨论
从1.5 g材料开始,每个周期可获得7至13 g的胚胎收集量。要获得如此数量的材料,关键在于维持果蝇生活周期各个阶段的适宜培养条件。
最重要的参数是温度和湿度,应分别为 24 ºC 和 35%。如果在实验室的常规环境中无法保持这两个参数恒定,可将果蝇培养笼置于培养箱或环境控制室中。其他方案建议使用 70% 的湿度以及恒定的 24 小时光照-黑暗循环,以提高产卵量9,10。然而,将湿度维持在约 35% 可避免细菌污染,且由于本方案的目的仅为维持种群培养笼,果蝇将被饲养在实验室正常的光照环境中。
另一个重要之处是尽量减少对成年果蝇的干扰。建议将饲养笼放置在远离果蝇培养室的独立区域,以避免来自其他果蝇的交叉污染。
不建议培养大量转基因和突变果蝇种群,因为很难维持其纯度,且在大规模种群培养笼中可能出现显著的异常交配行为14。
大量培养黑腹果蝇(Drosophila)时可能遇到的一个问题是存在螨虫和/或霉菌等其他生物,它们会与果蝇竞争食物,从而降低产卵量。为避免此问题,必须保持所有设备清洁,每次使用后用清水和肥皂清洗培养笼、网罩和果蝇培养盒,并更换一次性材料(如泡沫塞)。为抑制霉菌生长,在步骤1.2制备果蝇食物时需向湿酵母中添加丙酸和磷酸,在步骤3.1制备糖蜜培养皿时加入Tegosept。当时间紧迫且材料无法立即清洗时,有时可将塑料盒或筛子等物品暂时放置于-20 ˚C环境中保存。
一个完整的收集周期持续14至15天,从将胚胎接种到果蝇培养盒中开始,到最后一次收集日结束。在此期间,建议制定一个时间表,以便记住果蝇种群培养笼维护过程中的所有必要步骤(图2),这些步骤在方案部分有详细说明。从接种卵开始,直到成虫果蝇羽化,只需定期检查塑料培养盒,并在发生化蛹时将其移入培养笼中。此后,需每隔2至3天喂食果蝇一次,直至为下一个新周期接种胚胎。在整个操作流程中,最耗时的一天是进行胚胎收集和接种以启动新周期的那一天。如方案中所述,成虫羽化后3至5天产卵量最高,之后约2天开始下降。这使我们可以在一定程度上灵活选择进行卵收集的具体日期。
如果由于任何原因收集到的胚胎产量少于所需的起始量(1.5 g),总可以在第二天添加一个新的糖蜜培养皿以收集更多卵。为了持续收集,建议同时维持两个培养笼;如果需要更大量的胚胎,也可以使用更大的培养笼。若进行短时间收集,提高产量的一种方法是利用早晨产卵的高峰期。
大量收集不同发育阶段样本具有诸多优势。例如,从群体培养笼中收集的胚胎已成功应用于免疫沉淀实验 6-8,从解离的幼虫中大量收集幼虫组织已被证明是进行3C实验的极佳材料来源4 和RNA制备15,成年果蝇的头部已被用于ChIP实验16此外,通常需要成虫来制备用于组织培养的果蝇提取物17.
笼养系统最具前景的应用之一是为高通量分析提供材料,用于在病原体、生物分子、化学物质和电离辐射暴露条件下,对基因、转录本、蛋白质和代谢物进行分析与筛选。在这些大规模分析中需要大量个体,而本文所述的果蝇群体培养笼在获取不同发育阶段的大量Drosophila材料以供分析和筛选方面具有重要帮助18。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 Yixian Zheng(卡内基华盛顿研究所,美国马里兰州巴尔的摩)提供的原始实验方案以及在初期建立过程中的帮助,并感谢 Lei 实验室成员对本文手稿的审阅。本研究由美国国家糖尿病、消化与肾脏疾病研究所院内研究计划资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 细菌琼脂 | Beckton Dickinson | 214010 | |
| 库瑞特实用棉卷 | Kendall | 2287 | |
| 干酵母 | Affymetrix | 23540 | |
| 滤纸 | GE Healthcare Life Science | 1001-085 | |
| 泡沫管塞 | Jaece | L800-D2 | 直径 50 mm × 长度 55 mm |
| 果蝇群体饲养笼 | Flystuff | 59-116 | 直径 9″ × 长度 14.4″,包含笼网 |
| 肉类托盘 | Genpak | 1002S (#2S) | 8.25 × 5.75 × 0.5 英寸 |
| 糖蜜 | Grandma´s | ||
| 塑料容器 | Rubbermaid | 4022-00 | |
| 塑料薄膜 | Glad | ||
| 磷酸 | Fisher Scientific | S 93326 | 有毒,需在化学通风橱中操作 |
| 丙酸 | Fisher Scientific | A258-500 | 有毒,需在化学通风橱中操作 |
| 不锈钢 筛网 #100 | VWR | 57324-400 | |
| 不锈钢 筛网 #40 | VWR | 57324-272 | |
| 不锈钢 筛网 #30 | VWR | 57324-240 | |
| 蔗糖 | MP | 152584 | |
| 对羟基苯甲酸甲酯 | LabScientific | FLY5501 | |
| 吐温- X100 | Fisher Scientific | BP151-500 |
参考文献
- Lim, S. J., Boyle, P. J., Chinen, M., Dale, R. K., Lei, E. P. Genome-wide localization of exosome components to active promoters and chromatin insulators in Drosophila. Nucleic Acids Res. 41, 2963-2980 (2013).
- Ong, C. T., Van Bortle, K., Ramos, E., Corces, V. G. Poly(ADP-ribosyl)ation regulates insulator function and intrachromosomal interactions in Drosophila. Cell. 26, 148-159 (2013).
- Gonzalez, I., Mateos-Langerak, J., Thomas, A., Cheutin, T., Cavalli, G. Identification of regulators of the three-dimensional polycomb organization by a microscopy-based genome-wide RNAi screen. Mol Cell. 8, 485-499 (2014).
- Magbanua, J. P., Runneburger, E., Russell, S., White, R. A variably occupied CTCF binding site in the ultrabithorax gene in the Drosophila bithorax complex. Mol Cell Biol. 35, 318-330 (2014).
- Maksimenko, O. Two new insulator proteins, Pita and ZIPIC, target CP190 to chromatin. Genome Res. 25, 89-99 (2015).
- Lei, E. P., Corces, V. G. RNA interference machinery influences the nuclear organization of a chromatin insulator. Nat Genet. 38, 936-941 (2006).
- Matzat, L. H., Dale, R. K., Moshkovich, N., Lei, E. P. Tissue-specific regulation of chromatin insulator function. PLoS Genet. 8, e1003069(2012).
- King, M. R., Matzat, L. H., Dale, R. K., Lim, S. J., Lei, E. P. The RNA-binding protein Rumpelstiltskin antagonizes gypsy chromatin insulator function in a tissue-specific manner. J Cell Sci. 1, 2956-2966 (2014).
- Sisson, J. C. Culturing large populations of drosophila for protein biochemistry. Cold Spring Harb Protoc. , (2007).
- Shaffer, C. D., Wuller, J. M., Elgin, S. C. Raising large quantities of Drosophila for biochemical experiments. Methods Cell Biol. 44, 99-108 (1994).
- Roberts, D. B., Standen, G. N. The elements of Drosophila biology and genetics. Drosophila: A practical approach. Roberts, D. B. , Oxford University Press. Oxford. 1-53 (1998).
- Ashburner, M., Roote, J. Culture of Drosophila: The laboratory setup. Cold Spring Harb Protoc. , (2007).
- Dahlberg, O., Shilkova, O., Tang, M., Holmqvist, P. H., Fb Mannervik, M. P-TEb, The super elongation complex and mediator regulate a subset of non-paused genes during early Drosophila embryo development. PLOS Genet. 13, e1004971(2015).
- Zhang, S. D., Odenwald, W. F. Misexpression of the white (w) gene triggers male-male courtship in Drosophila. Proc Natl Acad Sci USA. 6, 5525-5529 (1995).
- Chak, L. L., Mohammed, J., Lai, E. C., Tucker-Kellogg, G., Okamura, K. A deeply conserved, noncanonical miRNA hosted by ribosomal DNA. RNA. 21, 375-384 (2015).
- Moshkovich, N., Lei, E. P. HP1 recruitment in the absence of argonaute proteins in Drosophila. PLOS Genet. 12, e1000880(2010).
- Drosophila RNAi Screening Center [Internet]. , Available from: http://www.flyrnai.org/DRSC-PRC.html (2015).
- Pandey, U. B., Nichols, C. D. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 63, 411-436 (2011).
重印与许可
