我们提供了一种可重复的基本方法,用于裂殖酵母有性生命周期的长期显微观察。通过文中所述的少量调整,该方案可使研究聚焦于生殖过程的不同阶段。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
裂殖酵母 Schizosaccharomyces pombe 是研究有丝分裂细胞周期调控、细胞分裂机制以及细胞极性的重要模式系统。此外,关于其有性生殖的经典实验为当前对DNA重组和减数分裂的理解提供了关键性成果。近年来对裂殖酵母交配过程的研究,进一步提出了有关外界刺激响应机制、极性细胞生长以及细胞-细胞融合的有趣问题。为了深入研究这些课题,我们开发了一种简便的显微镜观察整个有性生命周期的实验方案。本文所述方法可轻松调整以研究特定的交配阶段。简言之,将细胞在富氮培养基中培养至对数生长期后,转移至无氮培养基中,饥饿处理一定时间,以诱导进入所需研究的有性生命周期阶段。随后将细胞置于自行制备、易于构建的琼脂糖垫片腔室上进行成像观察。该方法可实现从交配起始直至孢子最终形成全过程的持续监测。
引言
尽管细胞间的基因交换是生殖过程中的核心事件,但它依赖于一系列促进细胞分化、实现伴侣选择、完成细胞间融合并维持基因组稳定性的事件。因此,有性生命周期为研究诸多生物学问题提供了一个理想的模型系统,这些问题包括发育转换、对外源刺激的响应、质膜融合以及染色体分离等。 等等。 利用裂殖酵母的有性周期研究这些现象,可借助该模式系统强大的遗传学工具、成熟的高通量研究方法以及先进的显微镜技术。裂殖酵母的有性生殖是一种异型事件,发生在具有不同交配类型的P细胞和M细胞之间。这两种细胞类型差异性地表达多种基因。1,2 包括分泌型P因子和M因子的合成相关基因、信息素受体Map3和Mam2,以及信息素蛋白酶Sxa1和Sxa2。同宗配合菌株,例如常用的 h90 菌株,在单个基因组中携带两种交配型的遗传信息,细胞在有丝分裂生命周期中经历复杂的交配型转换模式(详见参考文献)。3). 也常使用多种几乎从不或完全不发生交配型转换的异宗分裂酵母分离株4,最显著的是 h+ N (P型)和 h- (M型)菌株。
在裂殖酵母中,进入有性生命周期受到严格的营养调控。只有在缺乏氮源的条件下,裂殖酵母细胞才会停止有丝分裂繁殖,并产生可扩散的信息素,以信号传递方式感知交配伴侣的存在,并促进有性周期的后续步骤(参见参考文献5)。氮源剥夺会解除对交配关键转录调控因子 Ste11 的抑制作用,该因子作为发育开关,促进包括信息素受体及信息素合成基因在内的交配特异性基因的表达6,7。信息素与受体结合后激活受体偶联的G蛋白α亚基及下游MAPK信号通路,进一步增强 Ste11 的转录活性8-10,从而在交配双方之间形成正反馈,增加信息素的产生。信息素水平对于通过调控细胞极性主调控因子——Rho家族GTP酶Cdc42——诱导不同的细胞极化状态至关重要11。当暴露于低浓度信息素时,活化的Cdc42以动态斑块形式在细胞周边区域移动,此阶段无细胞生长现象。随着信息素水平升高,Cdc42活性稳定于单一区域,并形成极化突起(称为“shmoo”),促使交配细胞相互接触。随后,两个单倍体交配伴侣融合形成二倍体合子。近期研究表明,一种由交配诱导的甲型肌动蛋白成核因子Fus1组装而成的新型肌动蛋白结构对细胞融合至关重要12。该融合焦点富集依赖V型肌球蛋白的过程,并定位细胞壁降解机制,从而实现细胞壁重塑,使质膜接触而不发生细胞裂解12。细胞融合后,两个细胞核相互靠近并发生核融合(karyogamy)。接着,在合子内由驱动蛋白dynein介导的细胞核来回运动(“马尾”运动)促进同源染色体配对13,14,随后进入减数分裂。最终,减数分裂产生的四个产物在孢子形成过程中被包裹为独立的孢子。
由于其过程复杂且涉及多个步骤,对交配过程进行详细监测一直具有挑战性。其中两个显著的难点在于整个过程耗时超过十五小时,以及细胞难以同步。这些困难可通过单细胞显微镜技术得以克服。本文介绍了一种研究裂殖酵母有性生命周期的通用实验方案。经过少量调整后,该方案可用于研究该过程中的各个不同阶段,包括交配相关基因产物的诱导、交配型转换后同源细胞之间以及非同源配对细胞之间的细胞极化与配对、细胞-细胞融合、融合后的“马尾”核运动、减数分裂以及孢子形成。该方法能够:1)在融合前、融合过程中及融合后,随时间推移轻松观察荧光标记蛋白的动态变化;2)区分不同交配型细胞的行为特征;3)测量并定量分析如出芽(shmooing)、交配、融合或孢子形成效率等参数。
访问受限。请登录或开始试用以查看此内容。
方案
裂殖酵母有性生殖的显微镜分析
1. 培养基制备
- 通过混合以下组分制备最低孢子形成培养基(MSL-N)15:葡萄糖:10 g/L,KH2PO4:1 g/L,NaCl:0.1 g/L,MgSO4·7H2O:0.2 g/L。添加微量元素(10,000倍浓缩液):100 µl/L,维生素(1,000倍浓缩液):1 ml/L,以及 0.1 M CaCl2 ml/L。使用孔径为 0.22 μm 的滤器过滤灭菌,并在室温(RT)下保存。
- 使用以下维生素(1,000倍浓缩液)储备液:泛酸:1 g/L,烟酸:10 g/L,肌醇:10 g/L,生物素:10 mg/L。使用孔径为 0.22 μm 的滤器过滤灭菌,并在 4 °C 下保存。
- 使用以下微量元素(10,000倍浓缩液)储备液:硼酸:5 g/L,MnSO4:4 g/L,ZnSO4·7H2O:4 g/L,FeCl2·6H2O:2 g/L,MoO3:0.4 g/L,KI:1 g/L,CuSO4·5H2O:0.4 g/L,柠檬酸:10 g/L。使用孔径为 0.22 μm 的滤器过滤灭菌,并在 4 °C 下保存。
- 通过将 10 ml MSL-N 与 0.2 g 琼脂糖混合,制备含 2% 琼脂糖的 MSL-N 培养基(用于制作琼脂糖垫室)。在微波炉中高火加热约 2 分钟,直至琼脂糖完全溶解,然后分装至微量离心管中,每管 0.5 ml。在室温(RT)下保存。
- 通过向 MSL-N 中添加 (NH4)2SO4:2 g/L、亮氨酸:0.225 g/L、腺嘌呤:0.225 g/L、尿嘧啶:0.225 g/L,制备含氮最低孢子形成培养基(MSL+N)。使用孔径为 0.22 µm 的滤器过滤灭菌,在室温(RT)下保存。
注意:本培养基中添加亮氨酸、腺嘌呤和尿嘧啶以支持营养缺陷型菌株的生长。若所用菌株具有其他营养缺陷(例如 his3Δ),应额外补充相应的氨基酸。请注意,建议使用完全原养型菌株,因为只有此类菌株才能实现高效的交配效率。 - 制备 200 ml VALAP 用于密封观察室。在烧杯中加入等质量的羊毛脂、凡士林(或其他石油冻)和石蜡,低温加热并间歇搅拌,直至充分混合均匀。将混合物分装至若干小型培养皿中,在室温(RT)下保存。
2. 接合实验用裂殖酵母菌株的培养(图1)。
- 第1天,晚上:
从固体培养基上挑取新鲜划线的菌株,接种于含有3 ml MSL+N的培养管中。使用直径约2.5 cm的平底试管。若使用其他培养管或培养瓶,需调整培养体积。置于摇床中振荡过夜(O/N)培养,温度为 25 °C,200 rpm。若使用异交型菌株,需分别接种。- 次日早晨用培养基稀释细胞悬液,以确保培养物在600 nm处测得的光密度(O.D.6000.4–0.8
注:O.D.600 以分光光度计测得的光密度值(O.D.)作为裂殖酵母细胞浓度的代理指标时,在约0.1–1.0范围内呈线性关系。600 = 0.1 对应于 1.4 × 10⁶ 每毫升细胞数。因此,若初始 O.D.600 读数超出此范围时,样品需稀释或浓缩,以获得可靠的测量结果。
- 次日早晨用培养基稀释细胞悬液,以确保培养物在600 nm处测得的光密度(O.D.6000.4–0.8
- 第2天,晚上:
将细胞用 20 ml MSL+N 培养基稀释至 O.D.600 = 0.025 的100 ml三角瓶中。将菌株在过夜培养(O/N)条件下孵育 30 °C,200 rpm。
注意:野生型细胞培养物应达到 O.D.600 第二天早晨(15 小时后)约为 0.8。若使用世代时间较长的菌株,应相应调整稀释倍数。 - 第3天,上午:
测量 O.D.600 以验证培养物的细胞密度是否达到O.D.600 ~0.8。若使用异交型菌株,需混合等量的配对细胞。在1,000 × g离心收集细胞,并转移至1.5 ml离心管中。用1 ml MSL-N培养基洗涤细胞三次。将细胞重悬于3 ml MSL-N培养基中,并稀释至O.D.600 = 1.5.- 为了直接观察姐妹细胞之间的交配,将细胞直接制样用于成像(参见方案第2.4节)。使用同宗配合型 h90 菌株在氮源剥夺后发生的有丝分裂过程中将进行交配型转换。将细胞立即置于琼脂糖垫上,可确保细胞分裂后子代细胞彼此相邻排列。
- 为了监测细胞极化(探索性动态和出芽现象),将 1–3 ml 细胞培养物置于培养条件下孵育 30 °C,200 rpm 振荡 3–4 小时,然后再进行细胞成像固定。在此 3–4 小时内,最后一次有丝分裂已完成。少数细胞将已启动极化,但大多数细胞才刚刚开始探索性极化动态过程。
- 为监测细胞间融合,将1-3 ml细胞培养物孵育于 30 °C,200 rpm 振荡 4–6 小时,然后进行细胞固定以用于成像。
- 用于监测 融合后事件:将1-3 ml细胞培养物孵育 30 °C,200 rpm 振荡 8 小时,然后接种细胞进行成像。
- 为了监测对特定信息素浓度的反应(仅适用于异宗配合菌株),将3 ml细胞培养物置于 30 °C,200 rpm 振荡 3–4 小时,然后进行细胞装载以成像。
- 从含有 MSL-N 的微量离心管中取出 95 °C 加热块(见下文方案部分 2.4.1)。将 P 因子或 M 因子以所需浓度直接加入熔化的 MSL-N 琼脂糖中。立即充分涡旋混匀,随后进行垫片制备。
- 细胞铺板后,将培养垫在15–30分钟内孵育 25 °C 成像前,P因子和M因子信息素使用甲醇配制的1 mg/ml储备液。
注意:若使用突变菌株,孵育时间可能有所不同。细胞在液体培养基中长时间孵育后可能出现聚集现象,某些突变菌株中的聚集可能尤为明显。聚集的细胞无法在琼脂糖垫上形成单层,因而难以实现自动聚焦和成像。若细胞出现严重聚集,应在洗涤并重悬于无氮培养基后(如实验方案第2.3.1节所述),立即将其接种至琼脂糖垫上,并进行孵育 30 °C 成像前
- 用于成像的细胞制片
- 制备MSL-N琼脂糖垫16 通过熔解一份等分试样 95 °C 加热块10-15分钟并加入 200 μl 在由隔片隔开的两块载玻片之间(图1B)。使用厚度约为 0.5 mm 的垫片。制备垫片时,可使用剪裁成条状的纸板,例如随限制性内切酶提供的纸板。
- 沉淀物 100 μl 以1,000 × g离心1分钟收集细胞,弃上清液,将细胞重悬于残留的2-4 μl 培养基中。切勿用新鲜培养基重悬,以免延迟交配。
- 2–3 分钟后小心移除间隔片和顶部的玻璃盖片。若需同时制备多个菌株,应在制备琼脂糖垫前先准备好细胞浓缩液。
- 添加 1 μl 将细胞滴加到载片上,等待液滴开始干燥(约1分钟),然后加盖盖玻片,并用VALAP密封。
- 让垫片静置至少30分钟后再进行成像 25 °C 或室温(RT)。
- 为了获得处于不同交配阶段的细胞混合物,在 MSL-N 中洗涤后立即制备载片(见第 2.3 节),并在 18 °C 过夜(约15小时)。该方法适用于以高时间分辨率对处于不同交配阶段的细胞或信号较弱的样品进行成像。
3. 酵母细胞交配过程的活细胞成像
- 调整图像采集参数。
注意:此处提供的图像采集参数是针对 DeltaVision 平台优化的,该平台由定制的 Olympus IX-71 倒置显微镜、Plan Apo 60X/1.42 NA 或 U-Plan Apo 100X/1.4 NA 物镜、CoolSNAP HQ2 相机以及 Insight SSI 7 色复合光源组成。硬件由 softWoRx v4.1.2 控制,该软件还支持数字自动对焦。- 确保自动对焦的时间间隔不超过 15 分钟,因为更长时间的 Z 轴漂移可能超出软件自动对焦系统的校正能力。若使用基于硬件的自动对焦系统,则可采用更长的时间间隔。
- 调整成像时间间隔。首次对荧光标记蛋白进行实验时,建议以每 10 分钟采集一次图像、持续约 15 小时作为起始条件。该时间间隔可在避免显著光漂白的前提下,完整呈现整个交配过程的动态变化。
- 若需更精确地记录融合等事件的发生时间,可采用 5 分钟或更短的时间间隔。较短的间隔需要使用强荧光染料,以实现低曝光时间和最小光漂白。当时间间隔短于 1 分钟时,应避免过夜显微成像,而应按照方案第 2.4.6 节所述,制备包含所有交配阶段的混合样品。
- 调整图像曝光时间。测试 50 至 300 毫秒之间的曝光时间,力求在信噪比与光漂白之间取得平衡,从而获得大量具有可辨识信号的时间点(通常超过 100 个)。
- 调整 Z 轴层扫参数。每 0.3 µm 采集一层,覆盖 5 µm 的深度,可提供良好的成像范围。需注意,Z 轴层扫会进一步增加光损伤,可通过使用 OAI(光轴积分,即对样品总深度进行单次扫描采集)来最小化。良好的自动对焦系统可减少对多层 Z 扫描的需求,强烈推荐使用。
- 研究交配型特异性行为的技巧:
- 对于异宗配合菌株,使用表达不同荧光蛋白的 h- 和 h+ 细胞,以便区分两种细胞类型。可使用任何遗传编码的荧光蛋白,表达为细胞质形式或与内源蛋白融合的形式;我们已成功使用 sfGFP(GFP 的一种快速折叠变体)17。内源蛋白通常通过同源重组在其基因组天然位点进行荧光标记14。
- 对于同宗配合菌株,可在交配型特异性启动子(如信息素受体基因 map3 和 mam2 的启动子)控制下,表达遗传编码的细胞质荧光蛋白,分别驱动 P 和 M 细胞中的表达。map3 和 mam2 的启动子在营养生长期间不活跃,在氮饥饿条件下被诱导激活18,19。通常将这些启动子驱动的细胞质 GFP 或 mCherry 表达构建体整合到不影响有性生命周期正常进程的基因组位点(如 ura4、leu1)12。
- 使用交配型特异性的细胞质荧光标记(如方案第 3.2.2 节所述),通过观察荧光信号从一个配对细胞向另一个细胞的转移,精确判断细胞融合的发生时间。
4. 交配与融合效率的定量分析
- 为了定量分析交配和融合效率11,12,在MSL-N洗涤后立即将细胞点样至MSL-N琼脂糖载片上(如上文步骤2.3.1所述),并在25 °C孵育24小时后进行成像(图1A)。采用本方案,同宗配合的野生型菌株交配效率可达约60%,融合效率达99%。为检验突变株中观察到的这些数值降低是代表终末表型还是仅表现为延迟现象,可重复实验并将孵育时间延长至36小时。
- 交配效率按以下公式计算:
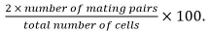 交配对包括合子、子囊以及根据相对位置和相互生长趋势识别出的未融合细胞对。
- 融合效率按以下公式计算:
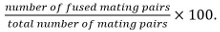
注意:若已知所研究的突变体不影响孢子形成,则可通过是否能够形成孢子来识别融合的交配对。若无法使用孢子形成作为检测指标,则可通过观察仅在一个交配伴侣中表达的胞质标记物是否扩散至两个伴侣中来判断是否发生融合。
访问受限。请登录或开始试用以查看此内容。
结果
移除氮源后裂殖酵母的生长与交配动态
由于氮源饥饿是裂殖酵母启动有性生殖的前提条件,因此按照图1所述方案,监测野生型同宗配合h90菌株从含氮丰富的培养基转移至无氮培养基后的变化(图2)。简言之,细胞在MSL+N培养基中过夜培养至对数生长期(O.D.600 = 0.5),收集后洗涤,并重悬于MSL-N液体培养基中,使终浓度O.D.600 = 1.5。每隔2小时取样,用calcofluor染色并进行成像(图2A-D)。
Calcofluor 染色(图 2A)显示,在富氮培养基中,约有 21% 的细胞正在进行分裂(n >300,图 2B),分裂时的平均细胞长度为 15.2 ± 1.4 ...
访问受限。请登录或开始试用以查看此内容。
讨论
环境条件,尤其是营养物质的可利用性,会显著影响裂殖酵母的生理状态。氮源饥饿是启动有性生殖所必需的条件,最初会导致有丝分裂细胞周期进程发生显著变化(参考文献21和图2)。当从指数生长期的细胞群体中去除氮源后,细胞分裂时的大小迅速减小(图2C),大多数细胞在有丝分裂进程中的停滞长度短于新出生的指数生长期细胞(参考文献21和图2D)。当交配型相反的细胞停滞于有丝分裂阶段时,它们会寻找交配伙伴并进一步形成合子并进行孢子形成(图2B、2E、2F)。在野生型细胞形成的二维单层培养中,超过百分之六十的h90细胞会成功配对,几乎全部细胞都会发生细胞融合(图2G)。在异宗配合菌株混合培养中,交配效率略低,并依赖于细胞密度及其相对位置(图2G)。为获得高交配效率,本实验方案中最关键的环节之一是确保细胞在整个过程中维持在指定的密度范围内。如图2所示,通过监测细胞大...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
AV 获得了欧洲分子生物学组织(EMBO)长期博士后奖学金的支持。Martin 实验室的研究工作由 SGM 获得的欧洲研究委员会(ERC)启动基金(GeometryCellCycle)和瑞士国家科学基金会基金(31003A_155944)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 葡萄糖 | Sigma-Aldrich | G8270-10KG | |
| KH2PO4 | Sigma-Aldrich | 1.05108.0050 | |
| NaCl | Sigma-Aldrich | 71381 | |
| MgSO4•7H2O | Sigma-Aldrich | 63140 | |
| CaCl2 | Sigma-Aldrich | 12095 | |
| 泛酸盐 | AppliChem | A2088,0025 | |
| 烟酸 | AppliChem | A0963,0100 | |
| 肌醇 | AppliChem | A1716,0100 | |
| 生物素 | AppliChem | A0967,0250 | |
| 硼酸 | Sigma-Aldrich | B6768-1KG | |
| MnSO4 | AppliChem | A1038,0250 | |
| ZnSO4•7H2O | Sigma-Aldrich | Z4750 | |
| FeCl2•6H2O | AppliChem | A3514,0250 | |
| 三氧化钼(VI) (MoO3) | Sigma-Aldrich | 69850 | |
| KI | AppliChem | A3872,0100 | |
| CuSO4•5H2O | AppliChem | A1034,0500 | |
| 柠檬酸 | AppliChem | A2344,0500 | |
| 琼脂糖 | Promega | V3125 | |
| (NH4)2SO4 | Merck | 1.01217.1000 | |
| L-亮氨酸 | Sigma-Aldrich | L8000-100G | |
| 腺嘌呤半硫酸盐,微量 99% | Sigma-Aldrich | A9126-100G | |
| 尿嘧啶 | Sigma-Aldrich | U0750 | |
| 羊毛脂 | Sigma-Aldrich | L7387 | |
| 凡士林 | Reactolab | 92045-74-4 | |
| 石蜡 | Reactolab | 7005600 |
参考文献
- Mata, J., Bahler, J. Global roles of Ste11p, cell type, and pheromone in the control of gene expression during early sexual differentiation in fission yeast. Proc Natl Acad Sci U S A. 103 (42), 15517-15522 (2006).
- Xue-Franzen, Y., Kjaerulff, S., Holmberg, C., Wright, A., Nielsen, O. Genomewide identification of pheromone-targeted transcription in fission yeast. BMC Genomics. 7, 303(2006).
- Klar, A. J. Lessons learned from studies of fission yeast mating-type switching and silencing. Annu Rev Genet. 41, 213-236 (2007).
- Beach, D. H., Klar, A. J. Rearrangements of the transposable mating-type cassettes of fission yeast. EMBO J. 3 (3), 603-610 (1984).
- Merlini, L., Dudin, O., Martin, S. G. Mate and fuse: how yeast cells do it. Open Biol. 3 (3), 130008(2013).
- Mochizuki, N., Yamamoto, M. Reduction in the intracellular cAMP level triggers initiation of sexual development in fission yeast. Mol Gen Genet. 233 (1-2), 17-24 (1992).
- Sugimoto, A., Iino, Y., Maeda, T., Watanabe, Y., Yamamoto, M. Schizosaccharomyces pombe ste11+ encodes a transcription factor with an HMG motif that is a critical regulator of sexual development. Genes Dev. 5 (11), 1990-1999 (1991).
- Kjaerulff, S., Lautrup-Larsen, I., Truelsen, S., Pedersen, M., Nielsen, O. Constitutive activation of the fission yeast pheromone-responsive pathway induces ectopic meiosis and reveals ste11 as a mitogen-activated protein kinase target. Mol Cell Biol. 25 (5), 2045-2059 (2005).
- Obara, T., Nakafuku, M., Yamamoto, M., Kaziro, Y. Isolation and characterization of a gene encoding a G-protein alpha subunit from Schizosaccharomyces pombe: involvement in mating and sporulation pathways. Proc Natl Acad Sci U S A. 88 (13), 5877-5881 (1991).
- Toda, T., Shimanuki, M., Yanagida, M. Fission yeast genes that confer resistance to staurosporine encode an AP-1-like transcription factor and a protein kinase related to the mammalian ERK1/MAP2 and budding yeast FUS3 and KSS1 kinases. Genes Dev. 5 (1), 60-73 (1991).
- Bendezu, F. O., Martin, S. G. Cdc42 explores the cell periphery for mate selection in fission yeast. Curr Biol. 23 (1), 42-47 (2013).
- Dudin, O., et al. A formin-nucleated actin aster concentrates cell wall hydrolases for cell fusion in fission yeast. J Cell Biol. 208 (7), 897-911 (2015).
- Chikashige, Y., et al. Telomere-led premeiotic chromosome movement in fission yeast. Science. 264 (5156), 270-273 (1994).
- Bahler, J., et al. Heterologous modules for efficient and versatile PCR-based gene targeting in Schizosaccharomyces pombe. Yeast. 14 (10), 943-951 (1998).
- Egel, R., Willer, M., Kjaerulff, S., Davey, J., Nielsen, O. Assessment of pheromone production and response in fission yeast by a halo test of induced sporulation. Yeast. 10 (10), 1347-1354 (1994).
- Tran, P. T., Marsh, L., Doye, V., Inoue, S., Chang, F. A mechanism for nuclear positioning in fission yeast based on microtubule pushing. J Cell Biol. 153 (2), 397-411 (2001).
- Pedelacq, J. D., Cabantous, S., Tran, T., Terwilliger, T. C., Waldo, G. S. Engineering and characterization of a superfolder green fluorescent protein. Nat Biotechnol. 24 (1), 79-88 (2006).
- Kitamura, K., Shimoda, C. The Schizosaccharomyces pombe mam2 gene encodes a putative pheromone receptor which has a significant homology with the Saccharomyces cerevisiae Ste2 protein. EMBO J. 10 (12), 3743-3751 (1991).
- Tanaka, K., Davey, J., Imai, Y., Yamamoto, M. Schizosaccharomyces pombe map3+ encodes the putative M-factor receptor. Mol Cell Biol. 13 (1), 80-88 (1993).
- Motegi, F., Arai, R., Mabuchi, I. Identification of two type V myosins in fission yeast, one of which functions in polarized cell growth and moves rapidly in the cell. Mol Biol Cell. 12 (5), 1367-1380 (2001).
- Sajiki, K., Pluskal, T., Shimanuki, M., Yanagida, M. Metabolomic analysis of fission yeast at the onset of nitrogen starvation. Metabolites. 3 (4), 1118-1129 (2013).
- Miyawaki, A., Nagai, T., Mizuno, H. Mechanisms of protein fluorophore formation and engineering. Curr Opin Chem Biol. 7 (5), 557-562 (2003).
- Dyer, J. M., et al. Tracking shallow chemical gradients by actin-driven wandering of the polarization site. Curr Biol. 23 (1), 32-41 (2013).
- Beta, C., Bodenschatz, E. Microfluidic tools for quantitative studies of eukaryotic chemotaxis. Eur J Cell Biol. 90 (10), 811-816 (2011).
- Lee, S. S., et al. Quantitative and dynamic assay of single cell chemotaxis. Integr Biol (Camb). 4 (4), 381-390 (2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
