研究 Aβo 的作用 体内我们建立了一种模型,通过在海马体内重复灌注可溶性Aβo,并结合使用渗透泵在海马体内持续灌注Aβo抗体(6E10),以抵消Aβo的神经毒性作用。
本文内容
摘要
摘要
海马依赖性外显记忆(对事实和事件的记忆)衰退是阿尔茨海默病(AD)最早期的临床症状之一。已有充分证据表明,突触丢失及其引发的神经退行性变是预测AD记忆障碍的最佳指标。最新研究强调了可溶性β-淀粉样蛋白寡聚体(Aβo)的神经毒性作用,这种寡聚体在人类大脑中大约于临床症状出现前10至15年便开始积累。大量研究报告指出,可溶性Aβo与AD模型动物及患者中的记忆缺陷密切相关。尽管在神经元和脑片培养体系中已观察到Aβo诱导的神经退行性变,但在许多动物模型中重现这一现象仍具挑战性。本文展示的重复Aβo灌注模型克服了这一难题,有助于研究开发新型疾病修饰疗法的两个关键方向:识别可用于早期AD诊断的生物标志物,以及阐明AD发病初期Aβo诱导记忆缺陷的分子机制。由于可溶性Aβo会相对较快地聚集为不溶性的Aβ纤维,而后者的临床相关性较差,因此需每日新鲜制备可溶性Aβo,并连续六天每天注射一次,以在海马区引发显著的细胞死亡。我们使用了专为同时灌注Aβo和通过渗透泵持续输注Aβo抗体(6E10)而设计的套管。这种创新的体内方法现可用于临床前研究,以验证潜在AD疗法在痴呆前期患者中预防Aβo沉积及其神经毒性的有效性。
引言
最初认为,脑内不溶性 Aβ 物种的积聚是阿尔茨海默病(AD)发病机制的核心。1,2 然而,淀粉样斑块也在一些认知功能正常的老年人中被检测到。3-7 为克服斑块沉积与 AD 认知缺陷之间相关性较差的问题,最新研究显示,在疾病早期即存在具有毒性的可溶性 Aβ 寡聚体(Aβo),其与患者的临床状态具有更强的相关性。8-14 由于 Aβ 寡聚化过程具有高度动态性,因此有研究提出,多种 Aβ 寡聚体而非单一特定类型的寡聚体均可诱导神经毒性。14-16 由于大量研究表明 Aβ 寡聚体可在突触及神经元丢失之前引发突触功能障碍,17-24 目前的理论认为,针对 Aβ 的治疗可能在 AD 早期阶段更为有效,而此前临床试验所测试的多为疾病晚期阶段。
阿尔茨海默病(AD)发病机制的一个显著特征是疾病晚期出现的大范围且广泛的细胞死亡,以及在记忆缺陷达到临床可检测水平时,局部脑区中观察到的显著突触和神经元丢失。从内嗅皮层(EC)投射至齿状回(DG)的穿通通路在AD早期即受到显著干扰25,26。在AD的轻度认知障碍(MCI)前驱期,当症状开始显现时,已在EC中检测到显著的细胞死亡,同时在DG中也观察到突触丢失25,26。
尽管大量证据已明确指出可溶性Aβo在阿尔茨海默病(AD)早期的神经毒性作用8-14,但在动物模型中重现神经元培养或脑片培养中观察到的Aβo诱导的神经退行性变仍具有较大挑战性27。大多数过表达Aβ的转基因AD模型虽具有淀粉样斑块、tau蛋白过度磷酸化、突触功能缺陷和记忆障碍等特征27,但在模拟AD患者海马区所见的细胞死亡方面效果较差。为克服这些技术难题,我们开发了一种基于脑内输注可溶性Aβo的模型。我们先前报道过,反复向海马区输注可溶性Aβo可导致渐进性神经元丢失和tau蛋白过度磷酸化,这两种病理特征均与AD中的记忆功能下降密切相关28。在此,我们展示了一种用于测试AD治疗策略的新方法,该方法采用特制的套管,结合渗透泵实现Aβo的输注与Aβo抗体(6E10)的持续共输注。
渗透泵提供了一种独特的方法,可在 Aβo 输注部位直接测试任何抗体(或其他化合物)对 Aβo 诱导的神经退行性变的 in vivo 有效性。因此,这些泵成为验证潜在治疗药物在阿尔茨海默病(AD)中作用机制的可靠概念验证工具。鉴于近期研究指出可溶性 Aβo 在 AD 早期阶段具有关键影响,目前许多针对 Aβo 的治疗方法正在学术和制药实验室中接受测试。这种新型动物模型能够模拟早期 AD 中观察到的突触和神经元丢失,而渗透泵则用于在 Aβo 输注部位持续输注治疗剂。过去几年中,针对轻度至中度患者的 AD 疗法反复失败,促使研究人员开始在痴呆前期患者中启动试验,即在 Aβo 大量积聚并造成不可逆脑损伤之前进行干预。在此背景下,测试能够防止 Aβo 沉积及其继发性神经毒性的新化合物,可能对临床前患者具有重要意义。
方案
伦理声明:本项目的动物实验方案已获得蒙特利尔圣心医院动物护理委员会的批准,符合加拿大动物护理委员会指南的要求。
1. 立体定位手术前的导管制备
- 剪取将用于连接套管与渗透压泵的PE50导管(长度为6 cm)(见图1A)。用人工脑脊液(aCSF)填充PE50导管,并封闭导管两端。将导管保存在4 °C环境中,待用。
2. 通过立体定位进行套管植入
- 在无菌条件下进行手术。通过高压灭菌法对所有手术器械和材料进行灭菌。彻底清洁立体定位仪和操作区域,并用70%乙醇溶液消毒。佩戴外科口罩、头帽和无菌手套。
- 通过腹腔注射(i.p.)给予氯胺酮和赛拉嗪混合溶液(剂量分别为100 mg/kg和10 mg/kg)对大鼠进行麻醉。通过轻捏脚趾检查动物是否无反应,以确认麻醉效果。
- 在手术前至少30分钟,对已麻醉动物皮下注射(s.c.)非甾体类抗炎药(美洛昔康;1 mg/kg)。
- 使用电推剪剃除动物头部毛发,并用含2%葡萄糖酸氯己定和2%异丙醇的溶液对皮肤进行三次消毒。在动物眼睛上涂抹兽用眼膏,防止麻醉期间角膜干燥。
- 将动物固定在立体定位仪上,插入耳杆。将一根导管固定在立体定位仪的持针器臂上。在动物头顶皮下注射局部麻醉剂(布比卡因(1.5 mg/kg)和利多卡因(1.5 mg/kg))。 整个手术过程中通过鼻罩持续给予3%异氟烷以维持麻醉。手术区域应使用无菌巾覆盖,但本演示中未覆盖以便更清晰展示操作技术。
- 使用手术刀在动物头顶做一条长约3 cm的切口。在切口周围安装4个组织钳,以充分暴露颅骨。使用圆头剪刀在动物肩胛骨之间的皮下组织剪出一个大小为2 × 2 cm2的皮下囊袋。
- 用刀片刮除颅骨骨膜。 若出现出血,用纱布按压止血。
- 确认颅骨在立体定位仪上保持水平且对位良好。为确保颅骨水平,需测量前囟(bregma)和后囟(lambda)处的高度坐标,并以前囟坐标作为后续操作的参考点。
- 以前囟为起点,计算将双侧植入海马区的两根导向导管的坐标(前后向:-0.42 cm;内外向:±0.30 cm;背腹向:-0.28 cm,参照Paxinos和Watson大鼠脑图谱)29。用记号笔标记导管植入位置。
- 在两侧导管植入点处用钻头在颅骨上钻孔(直径0.5 mm)。在上述两点上下约5 mm处再钻两个孔,用于植入固定螺钉,以便后续使用牙科水泥加固导管。
- 用手术刀剪去预先充满aCSF的导管一端,将其插入导管的斜角接口。用牙科水泥固定第一根导管。注意避免在第二根导管的预定位置周围涂抹牙科水泥。
- 等待牙科水泥干燥2–3分钟,然后将持针器臂从第一根导管上取下,并将第二根导管固定于其上。重复步骤2.11和2.12。在两根导向导管上均插入假导管。确保假导管与导向导管长度一致,以防止组织渗入或堵塞导管。
- 将两根导管的游离端插入先前在动物肩胛骨之间制作的皮下囊袋中。取下组织钳,使用4-0缝线缝合皮肤。
注意:上方的导向导管需保持暴露,以便后续进行Aβo灌注。 - 将动物从立体定位仪上取下并放回笼中。术后恢复期间,将笼子置于加热水毯上,直至动物苏醒。笼子应部分置于加热垫上,以便大鼠在需要时可自行远离热源。持续密切监测动物,直至其恢复足够的意识以维持胸卧位。
- 术后将大鼠送回动物房恢复10天,并进行严密观察。
注意:动物在完全恢复前不得与其他动物合笼饲养。术后连续两天每日给予美洛昔康(1 mg/kg)以缓解疼痛。
3. 渗透泵安装
- 在植入前一日,按照生产商说明,在无菌条件下将6E10抗体(1 mg/ml;100 µl)和对照IgG1抗体(1 mg/ml;100 µl)注入渗透泵中。将渗透泵置于无菌蒸馏水中,37 °C下过夜孵育以激活泵体。
- 使用3%异氟烷麻醉大鼠,以植入渗透泵(0.5 µl/hr,持续7天)。剃除肩胛骨之间的毛发,并用含2%葡萄糖酸氯己定和2%异丙醇的溶液消毒皮肤。使用手术刀在肩胛骨之间做一长约2 cm的切口,以定位与引导套管相连的PE50导管。
- 用手术刀切断带有牙科水泥的PE50导管末端。将渗透泵与PE50导管连接,并在泵与导管连接处添加少量牙科水泥以固定连接。
- 使用4-0缝合线紧密缝合皮肤。将动物放回笼中,并置于加热的水垫 上。观察动物从异氟烷麻醉中迅速苏醒(约5分钟)。
注意:手术过程约需5至10分钟。
4. 在清醒自由活动大鼠中进行 Aβo 注射
- 按照先前报道的方法制备 Aβo 溶液(0.2 µg/µl)28,30。在室温下使 Aβo 动态且自发聚集 1 小时,然后进行灌注。
- 在输注泵上安装两个 10 µl 注射器。用无菌蒸馏水填充注射器,每支注射器加入 5 µl。使用手术刀将两根 PE50 导管切成约 60 cm 长。使用 1 ml 注射器和 21G 针头,将无菌蒸馏水充满两根导管。
- 将 1 ml 注射器保留在导管一端,并将另一端连接至 Hamilton 注射器。取下 1 ml 注射器,检查导管内无气泡存在。
- 将内插管插入 PE50 导管末端。使用无菌蒸馏水,通过 Hamilton 注射器将连接至 PE50 导管的内插管填充至 1 µl 刻度。通过将活塞回抽至 2 µl 位置形成一个气泡。
- 使用低吸附枪头反复吹打混合 Aβo 溶液,避免混合过程中产生气泡。通过将活塞回抽至 3.5 µl 位置,使两根内插管各吸入 1.5 µl 的 Aβo 溶液。
- 在两根导管的气泡前后用记号笔标记刻度线,作为灌注过程的观察参考点。进行灌注时,将鼠笼移至输注泵附近,并打开笼盖。
- 将大鼠放入束缚器中,紧紧拉紧 束缚器颈部周围的绑带以固定其头部。从两个导向插管中移除假插管。将先前准备好的内插管插入导向插管中。确认其已完全插入并牢固固定于导向插管基部。
- 释放大鼠,将其放回笼中以减少应激反应。密切观察,确保导管未发生缠绕,且灌注过程正常进行。
- 启动输注泵。以 0.1 µl/min 的速度注入 1 µl Aβo 溶液(持续 10 分钟)。灌注过程中,观察注射器活塞是否从 3.5 µl 移动至 2.5 µl,并确认两根 PE50 导管中的气泡持续移动。
- 灌注结束后,将内插管保留在原位 5 分钟,以促进 Aβo 溶液的有效扩散。将大鼠重新放入束缚器中,取出内插管,并用帽状导向插管封闭,防止注入溶液反流。使用长度刚好在插管弯臂前终止的假插管。将动物放回其笼中。
- 连续 6 天,每天重复一次 Aβo 灌注。通过断头法处死动物。
结果
通过在Long-Evans大鼠体内植入套管,研究Aβo的神经毒性作用 海马体的齿状回。可溶性Aβo连续六天每天注射一次. 我们使用了专门设计的套管,通过渗透泵在海马区同时输注Aβo以及持续输注6E10或对照IgG1抗体图1A)。免疫组织化学实验中,大鼠经麻醉后行心脏灌注,依次使用0.9% NaCl和4%多聚甲醛溶液灌注,脑组织在4%多聚甲醛溶液中固定48小时,随后在15%蔗糖溶液中浸泡24小时。游离的冠状面切片(40 µm) 用 0.3% H2O2 30 分钟,用 1% 山羊血清封闭 1 小时,并在 4℃ 过夜孵育 4 °C 使用抗全Aβ抗体进行孵育。切片在加抗体前用70%甲酸处理3分钟。采用ABC复合物及0.05% 3,3-二氨基联苯胺溶液进行显色。切片贴附于明胶包被的玻片上,室温干燥2小时,经梯度乙醇脱水(30%、70%、95%和100%),浸入甲苯5分钟,然后加盖盖玻片。对于焦油紫染色,切片在0.5%焦油紫溶液中孵育10分钟,再在0.5%醋酸溶液中孵育1分钟,梯度乙醇脱色(70%、95%和100%),浸入甲苯5分钟,最后加盖盖玻片。
本研究结果显示,Aβo 在灌注位点附近的齿状回(DG)区域沉积,并伴随该区域细胞死亡。我们发现,6E10 抗体处理可显著降低 Aβo 水平(图 1B)。在 Aβo 注射位点附近观察到明显的神经变性,而 6E10 抗体处理减轻了这一现象(图 1B)。这些结果与我们在小鼠中反复灌注 Aβo 后观察到的 DG 区域 Aβo 累积现象一致28。本研究中通过 6E10 抗体免疫治疗清除淀粉样蛋白沉积的结果,与另一项在转基因 AD 小鼠模型中开展的研究报道相符31。
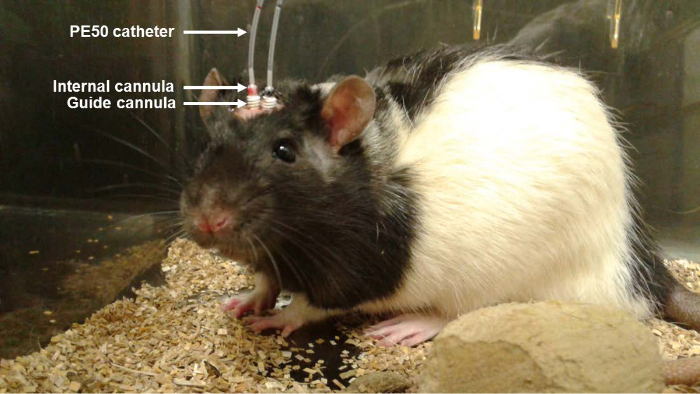
图1. 大鼠在Aβo输注期间双侧套管的实物照片。 使用连接至插入导向套管的内套管的PE50导管,将Aβo溶液(0.2 µg/µl;1 µl)每日一次、连续6天注入清醒且自由活动的大鼠体内。对照(Ctl)IgG1或6E10抗体通过皮下置于动物肩胛骨之间的渗透泵直接输注至Aβo输注部位。 请点击此处查看该图的放大版本。
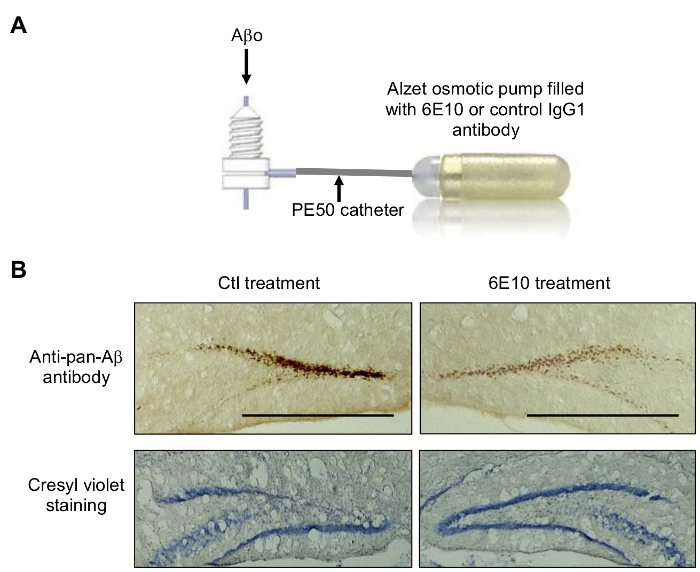
图2. Aβo沉积诱导的神经元丢失可通过6E10抗体治疗得到缓解。 A,连续6天每天一次注射Aβo(0.2 µg/µl;1 µl),并通过渗透泵在输注部位给予对照抗体(IgG1)或6E10抗体治疗。B,齿状回(DG)中Aβo的典型积聚情况(切片位于导管插入位置紧邻处),以及用焦油紫染色显示细胞丢失的代表性结果。比例尺:50 µm(n = 4)请点击此处查看该图的放大版本。
讨论
本方案中有若干关键步骤需要特别注意。植入套管时,应避免在牙科水泥过于液态时使用,以防止堵塞第二个套管的孔道。必须在连接泵的P50导管自由端放置牙科水泥,以防止刺激及可能引发的炎症反应。在进行立体定位手术当天,应使用与导向套管等长的假性套管,以避免堵塞套管。然而,在安装泵后,应改用较短的假性套管,使其末端止于套管弯曲臂之前,以便泵中的溶液能够顺利输注至海马区。需密切监测Aβo的输注过程,并确认导管中的气泡在输注期间持续移动。在输注过程中,务必确保注射套管完全插入导向套管内。
如果在Aβ输注过程中遇到问题,请确认内套管是否堵塞。若发生堵塞,应通过内套管注入无菌蒸馏水进行冲洗。如果外套管阻塞,请将内套管旋转插入外套管中。否则,可上下移动内套管。束缚过程可能对大鼠造成应激,尤其是在第一天。为减轻动物的应激反应,我们建议在立体定位手术前对大鼠进行操作训练,并使其适应束缚装置。
这种新颖且灵活的方法具有诸多优势 体内 方法。实际上,在灌注前可精确控制所注射Aβo的性质,且可使用不同类型的Aβ制备物(例如合成的) 与 脑源性 Aβ 溶液)可被注射以评估其神经毒性 体内该模型还可用于研究不同Aβ物种发挥作用的机制(例如单体、低分子量和高分子量寡聚体、原纤维)均可诱导神经毒性效应 体内,以及免疫治疗等干预手段可能如何抵消其在脑内的有害影响。由于输注操作在清醒且自由活动的动物中进行,因此避免了麻醉剂与Aβo溶液在信号通路之间可能产生的混杂效应,这一点已在先前的研究中得到证实。32,33 自由活动动物的给药操作也可在给药前后的任何时间与行为学测试相兼容。
可通过向不同年龄的动物输注Aβo并安装泵来确定Aβo及治疗在衰老过程中的作用。由于神经退行性变发生在输注部位附近,因此可在不同且局部的脑区诱导突触和神经元的丢失。通过同时输注Aβo和对照物(如溶剂或乱序Aβ),可在同一动物体内进行自身对照,以控制个体差异。相反,Aβo或对照溶液也可双侧注射至左右海马体,例如在进行行为学任务测试时。Aβo输注与治疗可同时进行,也可在Aβo输注后安装泵,以评估治疗在Aβ沉积后是否有效。此处描述的相同方案也可用于Aβo的脑室内输注。可在神经元丢失前后相对短的时间内评估Aβo对细胞内信号通路的影响。此外,还可调整Aβ的剂量和输注次数,以获得不同程度的Aβ致病性。
尽管该技术具有很高的通用性,但仍存在一些局限性。导管植入会对组织造成机械性损伤,并在术后最初几天内引发神经炎症。因此,在开始Aβo输注前,必须至少等待术后一周时间,并设置适当的对照组(如注入溶剂或无活性的乱序Aβ),以校正这些因素的影响。此外,为限制溶液扩散,仅能输注少量体积的Aβo。
渗透泵为旨在预防Aβ诱导的神经退行性变的药物在临床前验证提供了一种方便且独特的递送方法。由于先前研究已表明,使用6E10抗体进行免疫治疗可减少脑内Aβ的积聚31,因此我们采用6E10抗体作为概念验证,以验证我们这种新的体内研究方法。在此模型中使用渗透泵的方法,现在可用于开发新型的疾病修饰疗法,从而在临床前阿尔茨海默病患者中预防Aβo的沉积及其神经毒性。
披露
本视频文章的出版由ALZET渗透泵赞助。
致谢
感谢动物实验中心的Caroline Bouchard在大鼠实验方面提供的帮助。A.S. 获得了J.A. De Sève硕士奖学金,B.P. 获得了蒙特利尔大学COPSE奖学金。本研究由魁北克健康研究基金会(FRQS)-辉瑞公司资助项目以及蒙特利尔圣心医院研究中心启动资金资助,资助对象为J.B.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 人工脑脊液 (aCSF) | Harvard Apparatus | 59-7316 | |
| PE 50 导管薄壁 | Plastics one | C232CT | |
| 盐酸氯胺酮 (100 mg/ml) | Bioniche | 1989529 | |
| 盐酸赛拉嗪 (100 mg/ml) | Bimeda | 8XYL004C | |
| 美洛昔康 (5 mg/ml) | Norbrook | 215670I01 | |
| 2% 葡萄糖酸氯己定与 2% 异丙醇溶液 | Carefusion | 260100C | |
| 盐酸利多卡因 | Alveda Pharma | 0122AG01 | |
| 盐酸布比卡因 | Hospira | 1559 | |
| 眼用软膏 | Bausch and Lomb inc. | 2125706 | |
| 立体定位仪框架 | Stoelting | 51600 | |
| 立体定位套管固定臂 | Harvard Apparatus | 72-4837 | |
| 钻孔机 | Dremel | 8050-N/18 | |
| 引导套管 | Plastics one | 326OPG/spc | |
| 注射套管 | Plastics one | C315I/spc | |
| 假性套管 | Plastics one | C315DC/spc | |
| 涂层薇乔快线缝合线 4-0 | Ethicon | VR2297 | |
| 牙科丙烯酸粘固剂 | Harvard Apparatus | 72-6906 | |
| 螺钉 | JI Morris Company | P0090CE125 | |
| 6E10 抗体(小鼠 IgG1 同型) | BioLegend | 803003 | |
| 小鼠 IgG1 同型对照抗体 | Abcam | AB18447 | |
| Alzet 渗透压泵型号 1007D | Durect corporation | 290 | |
| 异氟烷 | Baxter | CA2L9100 | |
| β-淀粉样蛋白 1-42 | rPeptide | A-1163-1 | |
| Hamilton 注射器 (10 µl) | Fisher Scientique | 14815279 | |
| 输注注射泵 CMA 402 | Harvard Apparatus | CMA8003110 | |
| 1 ml 注射器 | BD | 309659 | |
| 21 G 针头 | Terumo | NN-2125R | |
| 保温垫 | Lomir Biomedical | RTS04 |
参考文献
- Hardy, J. A., Higgins, G. A. Alzheimer's disease: the amyloid cascade hypothesis. Science. 256, 184-185 (1992).
- Selkoe, D. J. Toward a comprehensive theory for Alzheimer's disease. Hypothesis: Alzheimer's disease is caused by the cerebral accumulation and cytotoxicity of amyloid beta-protein. Ann. N.Y. Acad. Sci. 924, 17-25 (2000).
- Terry, R. D., et al. Physical basis of cognitive alterations in Alzheimer's disease: synapse loss is the major correlate of cognitive impairment. Ann. Neurol. 30, 572-580 (1991).
- Giannakopoulos, P., et al. Tangle and neuron numbers, but not amyloid load, predict cognitive status in Alzheimer's disease. Neurology. 60, 1495-1500 (2003).
- Price, J. L., Morris, J. C. Tangles and plaques in nondemented aging and "preclinical" Alzheimer's disease. Ann. Neurol. 45, 358-368 (1999).
- Reiman, E. M., et al. Fibrillar amyloid-beta burden in cognitively normal people at 3 levels of genetic risk for Alzheimer's disease. Proc. Natl. Acad. Sci. USA. 106, 6820-6825 (2009).
- Aizenstein, H. J., et al. Frequent amyloid deposition without significant cognitive impairment among the elderly. Arch. Neurol. 65, 1509-1517 (2008).
- Mc Donald, J. M., et al. The presence of sodium dodecyl sulphate-stable Abeta dimers is strongly associated with Alzheimer-type dementia. Brain. 133, 1328-1341 (2010).
- Tomic, J. L., Pensalfini, A., Head, E., Glabe, C. G. Soluble fibrillar oligomer levels are elevated in Alzheimer's disease brain and correlate with cognitive dysfunction. Neurobiol. Dis. 35, 352-358 (2009).
- Naslund, J., et al. Correlation between elevated levels of amyloid beta-peptide in the brain and cognitive decline. JAMA. 283, 1571-1577 (2000).
- Hardy, J. Amyloid double trouble. Nat. Genet. 38, 11-12 (2006).
- Hardy, J., Selkoe, D. J. The amyloid hypothesis of Alzheimer's disease: progress and problems on the road to therapeutics. Science. 297, 353-356 (2002).
- Haass, C., Selkoe, D. J. Soluble protein oligomers in neurodegeneration: lessons from the Alzheimer's amyloid beta-peptide. Nat. Rev. Mol. Cell Biol. 8, 101-112 (2007).
- McLean, C. A., et al. Soluble pool of Abeta amyloid as a determinant of severity of neurodegeneration in Alzheimer's disease. Ann. Neurol. 46, 860-866 (1999).
- Hepler, R. W., et al. Solution state characterization of amyloid beta-derived diffusible ligands. Biochemistry. 45, 15157-15167 (2006).
- Martins, I. C., et al. Lipids revert inert Abeta amyloid fibrils to neurotoxic protofibrils that affect learning in mice. EMBO J. 27, 224-233 (2008).
- Lesne, S., et al. A specific amyloid-beta protein assembly in the brain impairs memory. Nature. 440, 352-357 (2006).
- Hung, L. W., et al. Amyloid-beta peptide (Abeta) neurotoxicity is modulated by the rate of peptide aggregation: Abeta dimers and trimers correlate with neurotoxicity. J. Neurosci. 28, 11950-11958 (2008).
- Ono, K., Condron, M. M., Teplow, D. B. Structure-neurotoxicity relationships of amyloid beta-protein oligomers. Proc. Natl. Acad. Sci. USA. 106, 14745-14750 (2009).
- Lambert, M. P., et al. Diffusible, nonfibrillar ligands derived from Abeta1-42 are potent central nervous system neurotoxins. Proc. Natl. Acad. Sci. USA. 95, 6448-6453 (1998).
- Shankar, G. M., et al. Amyloid-beta protein dimers isolated directly from Alzheimer's brains impair synaptic plasticity and memory. Nat. Med. 14, 837-842 (2008).
- Shankar, G. M., et al. Natural oligomers of the Alzheimer amyloid-beta protein induce reversible synapse loss by modulating an NMDA-type glutamate receptor-dependent signaling pathway. J. Neurosci. 27, 2866-2875 (2007).
- Cleary, J. P., et al. Natural oligomers of the amyloid-beta protein specifically disrupt cognitive function. Nat. Neurosci. 8, 79-84 (2005).
- Townsend, M., Shankar, G. M., Mehta, T., Walsh, D. M., Selkoe, D. J. Effects of secreted oligomers of amyloid beta-protein on hippocampal synaptic plasticity: a potent role for trimers. J. Physiol. 572, 477-492 (2006).
- Gomez-Isla, T., et al. Profound loss of layer II entorhinal cortex neurons occurs in very mild Alzheimer's disease. J. Neurosci. 16, 4491-4500 (1996).
- DeKosky, S. T., Scheff, S. W., Styren, S. D. Structural correlates of cognition in dementia: quantification and assessment of synapse change. Neurodegeneration. 5, 417-421 (1996).
- Brouillette, J. The Effects of Soluble Abeta Oligomers on Neurodegeneration in Alzheimer's Disease. Curr. Pharm. Des. 20, 2506-2519 (2014).
- Brouillette, J., et al. Neurotoxicity and memory deficits induced by soluble low-molecular-weight amyloid-beta1-42 oligomers are revealed in vivo by using a novel animal model. J. Neurosci. 32, 7852-7861 (2012).
- Paxinos, G., Watson, C. The rat brain in stereotaxic coordinates. , Academic Press. New York. Fourth edition (1998).
- Broersen, K., et al. A standardized and biocompatible preparation of aggregate-free amyloid beta peptide for biophysical and biological studies of Alzheimer's disease. PEDS. 24, 743-750 (2011).
- Thakker, D. R., et al. Intracerebroventricular amyloid-beta antibodies reduce cerebral amyloid angiopathy and associated micro-hemorrhages in aged Tg2576 mice. Proc. Natl. Acad. Sci. USA. 106, 4501-4506 (2009).
- Papon, M. A., Whittington, R. A., El-Khoury, N. B., Planel, E. Alzheimer's disease and anesthesia. Front. Neurosci. 4, 272(2011).
- Le Freche, H., et al. Tau phosphorylation and sevoflurane anesthesia: an association to postoperative cognitive impairment. Anesthesiology. 116, 779-787 (2012).
重印与许可
