本文介绍了一种建立原代人胎盘(绒毛)和蜕膜器官培养的简单方法。绒毛和蜕膜器官培养是研究人类母胎界面病理发生机制的宝贵工具。文中展示了对兼性胞内细菌单核细胞增生李斯特菌(Listeria monocytogenes)的感染实验。
本文内容
摘要
摘要
胎盘在不同物种间表现出显著的解剖学差异。为了更好地理解人类胎盘的生物学与病理生理学,必须使用人类细胞和组织来设计实验。器官培养的一个优势在于能够维持三维(3D)结构组织和细胞外基质。本文所述方法的目标是成功建立人妊娠组织的离体(ex vivo)器官培养体系,并在72–96小时期间内保持其健康培养状态。本方案详细说明了从手术室获取的、经研究知情同意的新鲜胎盘及蜕膜标本的即时处理流程。这些标本通常数量丰富,若不用于研究则会被丢弃。文中提供了这些样本无菌采集的详细操作步骤,包括如何根据形态学特征选择适宜组织以建立三维器官培养的具体指导。将胎盘绒毛组织和蜕膜组织分别显微解剖为2–3 mm3大小的组织块,置于基质包被的Transwell滤膜上,进行数天的独立培养。绒毛和蜕膜器官培养体系非常适合用于研究人类宿主与病原体之间的相互作用。与其他模式生物相比,这些人类组织培养体系在研究具有不同宿主特异性模式的病原体感染机制方面具有独特优势。作为示例,我们展示了临床上重要的兼性胞内细菌病原体Listeria monocytogenes对胎盘和蜕膜器官培养组织的感染过程。
引言
母胎界面的感染与炎症是导致妇女和儿童发病与死亡的重要原因。了解病原体如何感染这些组织,对于开发预防和治疗早产及胎儿死亡等疾病的新策略至关重要。然而,母胎界面存在显著的种间差异,这使得实验研究变得复杂。此外,大多数微生物病原体具有宿主特异性,因此许多动物模型无法完全模拟人类感染性疾病。某些生物体(如Haemophilus influenzae、Salmonella typhi、Vibrio cholerae以及多种其他病原体)仅在人类中具有严格致病性,而另一些病原体(如单核细胞增生李斯特菌)则表现出中等程度的宿主特异性1。宿主特异性已在致病过程的多个方面得到证实,包括定植2、播散3、免疫逃逸4和营养获取5。因此,选择最佳的宿主模型系统极为重要。
胎盘由胎儿细胞和母体血液组成,是一种在妊娠过程中快速发育的器官6。简而言之,人类胎盘由树状的胎儿"绒毛"结构构成,这些结构浸润在母体血液中。气体和营养物质的交换发生在覆盖绒毛树表面的特化胎儿细胞层——滋养层细胞上。母体子宫的黏膜层在非妊娠女性中称为子宫内膜,在妊娠期间则在结构和功能上转化为蜕膜,以适应胎儿-胎盘单位的植入。绒毛树通过来自附着细胞柱并侵入蜕膜的绒毛外滋养层细胞(EVT)锚定于子宫壁。因此,母-胎界面由蜕膜和胎盘共同构成。
本文所述的器官培养技术已被用于研究临床上相关的人类病原体(包括单核细胞增生李斯特菌(L. monocytogenes)和刚地弓形虫(Toxoplasma gondii))穿过胎盘屏障的位置和机制2,7。这些离体(ex vivo)器官培养系统能够模拟体内(in vivo)组织结构,可被视为研究人类胎盘形成过程的生理相关性极高的模型系统。其他培养技术还包括全器官外植体、器官切片,以及嵌入三维基质中的组织或干细胞类器官。有关这些方法的更多细节,请参阅近期的一篇全面综述8。请注意,本方案适用于蜕膜和胎盘绒毛的分别培养。若需研究胎盘细胞与蜕膜细胞之间的相互作用,则可能更适合采用共培养技术。我们建议感兴趣的读者参考此前已报道的绒毛-蜕膜共培养技术,该技术已被用于研究滋养层细胞介导的蜕膜血管重塑的研究人员所采用9-11。
方案
实验均按照《赫尔辛基宣言》所阐述的原则进行。本研究已获得加利福尼亚大学旧金山分校机构审查委员会(CHR# 11-05530)的批准。所有患者均签署了书面知情同意书,同意采集样本并进行后续分析。组织样本以去标识化标本的形式收集。
注意:研究人员必须获得其所在机构人类受试者审查委员会的批准。根据妊娠史或胎盘异常情况对标本进行排除的标准,应根据具体研究的需求而定。
注意:本方案所有步骤均应采用适当的安全条件(生物安全二级实验室标准)12。
1. 采集日前的准备工作
- 对用于采集的滤网/镊子,以及用于显微解剖的剪刀/镊子进行高压灭菌。
- 准备足够体积的洗涤缓冲液(每份样本500 ml,配方见表1)。
- 准备足够体积的0.22 µm无菌过滤采集培养基(每份样本100 ml,配方见表1)。
- 将细胞外基质(ECM,详细信息见试剂表)分装,用于长期保存。
- 将ECM以固态形式储存于-20 °C。为保证最佳性能,避免反复冻融。在4 °C条件下解冻至形成黏稠溶液,并在冷室中使用预冷的移液器吸头分装成300 µl每份。将分装后的样品储存在-20 °C。
2. 新鲜组织的采集
警告:处理新鲜人体组织时,研究人员必须遵循通用预防措施(OSHA)以防止血源性病原体传播,并须接受过机构提供的适当培训。必须佩戴适当的个人防护装备,包括手套、眼部防护装置和实验服。
- 将高压灭菌的滤网(每个样本一个)、高压灭菌的镊子、洗涤缓冲液(大瓶装)、收集培养基(每个样本25 ml,置于50 ml锥形管中)、喷瓶、10%次氯酸钠溶液、70%乙醇、组织收集托盘、记号笔以及冰桶/冷藏箱运送至医院/诊所。
注意:样本将被送至靠近手术室的一个指定用于研究的区域。无需使用无菌组织培养操作台,但应尽快完成样本收集,研究人员应按以下说明对操作表面进行适当消毒。 - 将装有洗涤缓冲液的大瓶放置在水槽旁,用10%次氯酸钠溶液和70%乙醇喷洒出液口。将玻璃制组织收集托盘置于光源(透射光板或观片灯)上,并用10%次氯酸钠溶液和70%乙醇进行消毒。静置晾干。
- 由临床医生将样本从手术室转移至样本处理室。在水槽处,将样本倾倒在无菌手持滤网上,用洗涤缓冲液反复冲洗组织数次,然后将整个样本连同缓冲液转移至已消毒并放置在光源上的玻璃托盘中。
注意:临床医生对组织的评估为首要任务,因此以下步骤仅可在临床医生口头确认已完成评估后进行。 - 使用无菌镊子选取胎盘绒毛和蜕膜组织(图2A 和 图3A),分别转移至不同的50 ml锥形管中。在管上标注孕周。
注意:建议用于胎盘和蜕膜研究的孕周分别为小于9周和小于16周。在本机构,仅采集每份样本的一部分用于科研,必须保留足够的组织以供临床病理诊断使用。 - 将样本置于冰上保存并运输至研究实验室。
- 若需连续收集多个样本,应在每次采集样本之间按照上述方法,使用10%次氯酸钠溶液和70%乙醇对玻璃托盘进行消毒。
3. 器官培养板的制备
注意:以下步骤应在生物安全柜中使用无菌技术进行操作。最好将解剖显微镜置于无菌区域内,但若能快速完成显微解剖操作,并频繁将器械浸入70%乙醇中,则此条件并非绝对必要。
- 将 ECM 小瓶置于冰上解冻。用预冷的收集培养基以 1:1 比例稀释 ECM,通过移液混匀。移液时应缓慢操作,避免产生气泡。每孔 6 孔组织培养板需要 100 µl 此悬浮液,可容纳 3–4 个器官培养物。
- 将 transwell 小室(孔径 0.4 µm)放入 6 孔组织培养板的每孔中。
- 在每个 transwell 小室上覆盖一层薄薄的 ECM/培养基悬浮液(100 µl)。
- 将培养板置于冰上,并立即开始建立器官培养。或者,可在组织采集前预先准备培养板,此时需用封口膜包裹后于 4 °C 保存以备后续使用。不建议保存超过 6 小时,否则 ECM 会干燥。
4. 器官培养体系的建立
注意:此步骤描述了如何将蜕膜器官培养物和绒毛器官培养物分别置于不同的Transwell中。这些组织彼此不接触。若研究人员希望采用蜕膜与绒毛直接接触的共培养技术,可参考先前的文献9,10。
- 用收集液将样本清洗两次,每次清洗之间以1,000 × g离心。将组织转移至无菌培养皿中,并置于解剖显微镜的载物台上。将6孔板置于显微镜旁的冰上。
- 使用无菌弹簧解剖剪和镊子对组织进行显微解剖,以制备2-3 mm的绒毛类器官培养物(图2A).
注意:绒毛器官培养物体积小,血管化良好 "树木" 具有2至3个分支,并可见明显的绒毛外滋养层(EVT)细胞柱11仅使用绒毛组织非常重要 <9周的孕早期标本,因为在此早期阶段,绒毛外滋养层细胞向细胞外基质的侵袭最为显著13. - 选择血管化良好的绒毛,其具有明显的绒毛外滋养层细胞柱。绒毛外滋养层细胞柱呈 bulbous 状, "模糊", "蓬松的" 末端(参考图中箭头所示) 图2A).
- 使用无菌镊子将3至4棵绒毛树转移至每个Transwell小室中。调整分支,使绒毛树平置于细胞外基质(ECM)上方,并分开聚集成团的分支。
- 使用无菌弹簧解剖剪和镊子对蜕膜组织进行显微解剖,制备成3 mm3 蜕膜器官培养图3A).
注意:标本包含两种不同类型的蜕膜组织,即壁蜕膜和包蜕膜(分别为左侧和右侧组织碎片) 图3A). - 用剪刀修剪至3 mm3 壁蜕膜组织碎片。不使用包蜕膜进行这些培养。使用镊子分离并去除任何凝结的母体血液。
- 使用无菌镊子将3-4块蜕膜组织转移至每个Transwell小室中。
- 向孔底部加入1 ml收集培养基。将培养板置于37 °C、5% CO₂条件下过夜培养。2
- 对于需要模拟正常妊娠早期胎盘氧张力的实验,应将绒毛器官培养物维持在相对低氧环境(3% O₂)中。2).
注意:实验室可选方案包括可置于现有培养箱内的小型低氧培养室,或可引入外部氮气的三气培养箱2 气体以降低氧气浓度。 - 加入 1 ml 绒毛或蜕膜培养基表1培养12-16小时后,加入至Transwell上室。
注意:在培养的首个过夜期间不添加培养基,可使绒毛外滋养层细胞柱发生侵袭(绒毛培养),并使组织(包括绒毛和蜕膜)牢固嵌入细胞外基质(ECM)中。 根据我们的经验,蜕膜器官培养可维持活性达72小时,绒毛器官培养可维持活性达96小时。我们建议将实验终点设置在此时间范围内。 参见 表1 用于绒毛和蜕膜培养基的配制。 绒毛培养基含有高比例的胎牛血清(FBS),而蜕膜培养基则添加了维持蜕膜化状态的妊娠激素(孕酮、17β-雌二醇)表1).
5. 单核细胞增生李斯特菌(L. monocytogenes)培养物的制备
注意:有关单核细胞增生李斯特菌( L. monocytogenes)的长期保存,以及该生物体在脑心浸液(BHI)肉汤和琼脂中的培养与生长的详细方案,请参见 Wang et al.14
- 从划线接种的BHI琼脂平板上挑取单个L. monocytogenes菌落,接种于3 ml BHI液体培养基中。
- 将L. monocytogenes培养物在30 °C条件下静置培养过夜(16小时)。
注意:此培养条件可使细菌生长进入稳定期。L. monocytogenes在30 °C时具有鞭毛,可增强对宿主细胞的侵袭能力15。
6. 器官培养物的感染 L. monocytogenes
- 将 PBS 和绒毛或蜕膜培养基(表 1)预热至 37 °C。
- 使用无菌镊子移除未侵入细胞外基质因而漂浮在孔中的器官培养组织块。
- 小心吸去 transwell 底部的培养基。用移液器轻轻加入 1 ml 预热的 PBS 至孔中,清洗上层和下层 transwell,重复两次,每次之间小心吸出液体。再轻轻加入 1 ml 不含抗生素的绒毛或蜕膜培养基至上层和下层 transwell。注意不要扰动器官培养组织。
- 让组织在不含抗生素的培养基中孵育至少 1 小时,以确保抗生素被完全清除。
注意:L. monocytogenes 培养物在静止期的密度约为每毫升 1 × 10⁹ 菌落形成单位(CFU)。用于感染器官培养物的细菌数量应根据实验需求通过经验确定。 - 对于野生型 L. monocytogenes,常规感染实验表明,使用过夜培养物按 1:50 稀释(即每孔 1 ml 培养基中含 4 × 10⁷ L. monocytogenes)可实现有效的侵袭。将适量细菌重悬于不含抗生素的绒毛或蜕膜培养基中。
- 吸去 transwell 上层的培养基,轻轻加入 1 ml 接种液。将培养板置于 37 °C、5% CO2 条件下孵育,以允许细菌侵入。
- 通过吸去上层和下层 transwell 中的培养基以去除胞外细菌。用预热的 PBS 清洗孔两次。每孔加入 1 ml 含 50 µg ml-1 庆大霉素的绒毛或蜕膜培养基。将培养板置于 37 °C、5% CO2 条件下孵育。
注意:L. monocytogenes 是一种兼性胞内细菌,可在胞外培养基中生长,也可在细胞内生长,并能在不进入胞外空间的情况下实现细胞间传播。庆大霉素对胞外的 L. monocytogenes 具有杀菌作用,因此可用于检测 L. monocytogenes 在器官培养组织中的胞内生长和扩散16。
注意:绒毛和蜕膜器官培养物中可重复的 L. monocytogenes 感染通常在孵育 5 小时后发生。在加入庆大霉素前的孵育时间可根据实验需求以及该病原体侵入组织的能力进行调整。为更好地了解最易受感染的解剖部位,可采用较短的孵育时间2。 - 在整个实验过程中,将培养板维持在 37 °C、5% CO2 环境中。每天更换每孔中的全部培养基。
注意:根据我们的经验,感染 L. monocytogenes 的蜕膜器官培养物可维持活性达 48 小时,绒毛器官培养物可维持活性达 72 小时。
7. 组织培养物的收获用于组织病理学检查
- 将10 ml 16%的储备安瓿液用30 ml PBS稀释,配制4%的新鲜多聚甲醛溶液。4%多聚甲醛溶液于4 °C避光保存,一周内使用。使用前恢复至室温。
- 吸出上室和下室培养液。用室温 PBS 轻柔冲洗小室两次。向顶部小室轻柔加入 1 ml 4% 多聚甲醛,以完全覆盖类器官培养物。
- 在室温下用4%多聚甲醛孵育20分钟。避免孵育时间过长,以免导致组织过度固定。
- 吸弃多聚甲醛,于室温下用 PBS 洗涤两次。将固定的器官培养物包埋于 OCT 包埋剂中,冷冻后在恒冷切片机上切片。"固定冷冻")。通常情况下,经过固定处理的冷冻组织比未经固定处理的冷冻组织更容易切片。
注意:有关OCT包埋和冷冻切片的完整方案,请参阅已发表方案中的相关部分17,18根据实验需求以及实验室设备和储存条件,组织样本也可经石蜡包埋后使用切片机进行切片。19. - 进一步制备组织切片用于常规苏木精染色 & 伊红染色、免疫荧光或免疫组织化学18,20,21.
结果
图1 (改编自 Zeldovich 与 Bakardjiev22)示意图展示了相关的胎盘及子宫解剖结构。图2 展示了胎盘绒毛的代表性大体及组织学图像,而图3展示了蜕膜组织。
本方案首先描述在医院或诊所采集新鲜胎盘及蜕膜组织的步骤。所采集的标本为胎儿胎盘组织(绒毛)与母体子宫成分(蜕膜)的混合物。使用含广谱抗生素和抗真菌剂的缓冲液冲洗后,通过透射光灯箱肉眼检查整个标本。将绒毛与蜕膜分别置于不同试管中,并冰上运输至实验室。在实验室中,利用解剖显微镜观察健康组织的细微形态特征。代表性绒毛组织照片(图 2A和蜕膜组织 (图3A使用带有两个外部蛇形灯管的解剖显微镜拍摄的参考图像如图所示。
绒毛器官培养物由孕早期标本制备而成。培养物由含有2-6个分支的小型终末绒毛树组成。应重点分离以细胞滋养层柱终止且血管化良好的绒毛分支。这些特征表现为“绒毛状”或“模糊状”的分支末端(箭头所示),以及如图2A左侧绒毛树分支中可见的淡粉红色至红色线性着色。相比之下,该图像右侧绒毛树的血管结构和细胞滋养层则不易观察,因此不适合用于培养。在培养的第一天内,细胞滋养层迁移进入细胞外基质(ECM),从而将绒毛树锚定于Transwell小室的基质中。
蜕膜类器官培养物由妊娠早期及妊娠第二阶段早期的标本制备而成。整个子宫内膜在胚胎着床后不久即转化为蜕膜。更具体而言,基蜕膜指位于胎盘/着床部位下方的子宫黏膜,包蜕膜指覆盖在胎儿表面的黏膜,壁蜕膜则指子宫内膜的其余部分。在解剖显微镜下观察可见,妊娠早期标本主要由壁蜕膜和包蜕膜组成(分别为左侧和右侧的组织碎片) 图3A). 蜕膜帽因其薄而膜状的特性易于辨认。进行器官培养时,将蜕膜壁修剪至3 mm3 用显微解剖剪将组织剪成小块,并用镊子去除附着的凝血块。
过夜孵育后,组织被单核细胞增生性李斯特菌(L. monocytogenes)感染。上述感染方案基于庆大霉素保护实验,用于研究兼性胞内细菌的胞内生长与扩散16。在不含抗生素的培养基中,器官培养物与L. monocytogenes共同孵育5小时。随后用无菌PBS洗涤培养物以去除培养基中的细菌。之后加入庆大霉素以清除胞外生物体。本实验室先前的研究采用免疫荧光和共聚焦显微镜技术,在感染后的不同时间点确定细菌在组织中的定位2。器官培养物用PBS冲洗后,以4%多聚甲醛固定,随后可选择在OCT包埋剂中冷冻包埋并保存于-80 °C,或石蜡包埋后室温保存。组织切片可用于免疫荧光(IF)或免疫组织化学(IHC)分析,以检测细菌及真核细胞的定位。图2B为感染后72小时、来自8.3周绒毛器官培养物的冷冻切片的代表性免疫荧光图像。注意在绒毛分支末端的绒毛外滋养层细胞(EVT)中存在大量细菌(绿色荧光),而覆盖绒毛表面的合体滋养层(红色荧光)内细菌相对较少。在之前的研究中,我们采用类似的免疫荧光染色方法,在感染后不同时间点对绒毛器官培养物中的L. monocytogenes进行定位。在72小时内,感染从EVT逐渐扩散至合体层下方的细胞滋养层及绒毛间质。值得注意的是,合体滋养层对感染具有抵抗性2。
代表性光学显微镜图像的 H&来自14.3周标本的苏木精-伊红染色的石蜡包埋蜕膜组织切片如图所示 图3B 和 3C. 将此ECM包被的Transwell膜嵌入以显示器官培养 原位 (图3B)。图像显示上皮细胞衬覆的腺体(星号)和内皮细胞衬覆的血管(菱形)不均匀地分布于蜕膜基质细胞区。此外,母体免疫细胞以可变密度散在分布于整个蜕膜基质中。免疫组化(IHC)和免疫荧光(IF)染色可用于确定细菌在特定常驻免疫细胞相对位置中的微解剖定位。例如,CD14+ 巨噬细胞(绿色荧光)定位于血管壁内衬,并散在分布于间质中图3D),而大聚集体的 L. monocytogenes (红色荧光)主要在感染后48小时的蜕膜基质中观察到图3D).
| 洗涤缓冲液 | 收集介质 | 绒毛状培养基 | 蜕膜培养基 |
| PBS | 含 GlutaMAX 的 DMEM/F-12 | 含 GlutaMAX 的 DMEM/F-12 | 含 GlutaMAX 的 DMEM/F-12 |
| 青霉素 100 IU/ml | 胎牛血清 2.5% | 胎牛血清 20% | 胎牛血清 2.5% |
| 链霉素 100 μg/ml | 青霉素 100 IU/ml | 青霉素 100 IU/ml | 17β-雌二醇 300 pg/ml |
| 庆大霉素 50 μg/ml | 链霉素 100 μg/ml | 链霉素 100 μg/ml | 孕酮 20 ng/ml |
| 两性霉素B 1.25 μg/ml | 庆大霉素 50 μg/ml | ||
| 两性霉素B 1.25 μg/ml |
表1:培养基配方。 洗涤缓冲液、收集培养基、绒毛培养基和蜕膜培养基的成分及浓度。
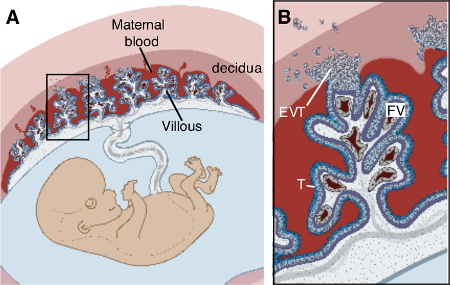
图1. 胎盘结构。(A)母体子宫内胎儿-胎盘单位的结构,(B)A图中方框区域的放大显示,由胎儿滋养层细胞(T)构成的胎盘绒毛浸润于母体血液中,并通过绒毛外滋养层细胞(EVT)锚定于蜕膜。绒毛内部包含胎儿血管(FV)、成纤维细胞和胎儿巨噬细胞。改编自Zeldovich & Bakardjiev22。请点击此处查看此图的放大版本。
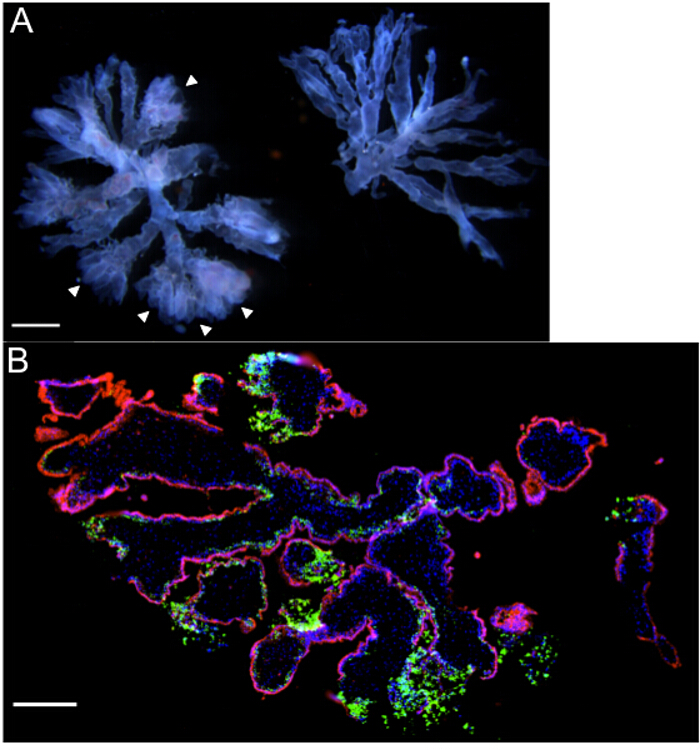
图 2: 绒毛器官培养——代表性大体及显微图像。 (A)在解剖显微镜下观察到的两个终末绒毛树,孕龄为6周。注意“绒毛状”末端(箭头所示)以及左侧绒毛树枝状结构中穿行的明显胎儿血管系统,这些特征使该样本适用于器官培养。(B)绒毛器官培养感染单核细胞增生性李斯特菌72小时后的免疫荧光显微图像(孕龄8.3周),显示细胞外绒毛滋养层细胞中存在大量细菌负荷[绿色]。DAPI染色呈蓝色,βHCG阳性合体滋养层细胞呈红色。比例尺 = 1 mm(A),250 µm(B)。请点击此处查看该图的放大版本。
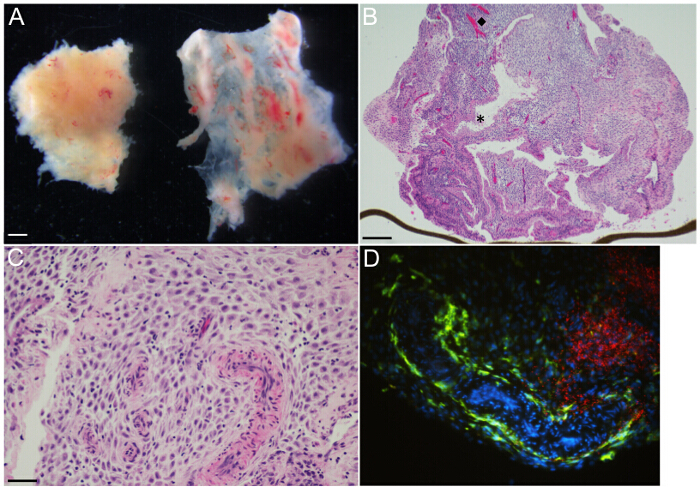
图3: 蜕膜器官培养——代表性大体及显微图像。 (A)妊娠6周时的壁蜕膜[左侧]和包蜕膜[右侧],在解剖显微镜下观察。(B) 妊娠14.3周壁蜕膜器官培养的H&E染色切片显示腺体和血管在蜕膜基质中呈异质性分布。菱形符号(◆)和星号(*)分别标示典型的血管和腺体。底部边缘的棕色线条为Transwell膜的边缘。 (C) 妊娠14.3周壁蜕膜器官培养的H&E染色切片在更高放大倍数下显示肌性螺旋小动脉嵌入蜕膜基质中。母体免疫细胞体积小,核呈深染圆形,不规则分布于基质中。(D) 器官培养感染L. monocytogenes 48小时后的免疫荧光显微图像,显示大量细菌[红色]存在于蜕膜基质中,母体CD14+巨噬细胞[绿色]排列在扭曲的血管腔周围,并散在分布于基质中。比例尺 = 1 mm (A),250 µm (B),50 µm (C 和 D)。 请点击此处查看该图的放大版本。
讨论
近交系、转基因和基因敲除小鼠品系可作为实验系统,用于稳健地验证各种机制。然而,尽管核心遗传物质在总体上具有保守性,小鼠与人类的功能基因组在调控元件方面仍存在显著差异23。因此,动物模型中前景良好的临床前研究结果有时无法在人类患者中重现也就不足为奇了。胎盘表现出极高的物种间差异性,这使得动物模型在人类疾病研究中的适用性受到限制24。鉴于人类与小鼠免疫学方面的显著差异25以及胎盘解剖结构的明显趋异进化,采用人妊娠组织的离体(ex vivo)器官培养系统进行实验研究是更为合理的选择。
本实验方案中的描述、照片图像和教学视频指导研究人员如何在经细胞外基质包被的Transwell组织培养插入式小室上建立绒毛和蜕膜类器官培养体系。该技术的优势包括显微解剖操作相对简便,以及Transwell系统提供的机械支撑,尤其相较于其他方法(如三维包埋基质或器官切片培养)更为便捷。将类器官培养物悬浮于膜支持结构上,可实现组织所有表面的营养物质交换,并可在短期内维持其活性(绒毛组织培养可维持96小时,蜕膜组织培养可维持72小时)。该技术能够在组织水平上研究人类胎盘生物学,其生物学相关性无疑高于单层细胞培养模型。
本方案中最关键的步骤是对合适的绒毛和蜕膜组织进行显微解剖,以用于器官培养。文中通过照片展示了理想的组织样本(图2A 和 图3A),以帮助初次接触妊娠标本观察的研究人员。尤其重要的是选择那些分支末端为绒毛外滋养层(EVT)细胞柱的绒毛树,因为这些细胞将迁移到细胞外基质(ECM)中,帮助将绒毛锚定在膜上。对于两种类型的器官培养而言,在更换培养基时都应尽量减少对组织的扰动,建议以谨慎且从容的方式进行移液操作。
该技术仅存在极少的困难。偶尔样本会出现污染。污染通常为细菌性(偶见多微生物性),并在培养1-2天后才变得明显。一旦观察到污染,应使用漂白剂处理,丢弃培养物,并对组织培养箱进行灭菌,以防止长期问题。污染可能由多种途径引起:宫内感染、手术过程中、样本采集/处理过程中,或器官培养维持过程中。其中,采集和处理步骤是最可能引入污染的时机和环节。因此,在样本收集和显微解剖过程中,应尽量减少操作时间。这将降低样本暴露于周围非无菌环境的风险。根据实验室的配置,解剖显微镜可置于无菌组织培养罩内。
此处展示的是使用医学相关病原体L. monocytogenes感染后对器官培养物进行组织病理学分析,作为本实验方案的一种可能应用。通过感染后对细菌和宿主免疫细胞进行免疫荧光定位,可深入了解人类宿主对病原体的免疫应答。蜕膜器官培养可作为一种互补的ex vivo实验技术,用于验证体内小鼠感染实验所得数据,包括一些引人关注的研究报告,这些报告表明小鼠蜕膜巨噬细胞的防御功能存在缺陷26,27。此外,人类器官培养还可用于混合感染策略,例如使用多种同源L. monocytogenes菌株组成的竞争性接种物。器官培养物的竞争性感染是一种灵敏的方法,可用于评估毒力因子在人类宿主中的作用。该方法的一个限制是组织的存活能力,仅限于短期培养(绒毛组织培养为96小时,蜕膜组织培养为72小时)。这一时间范围适用于L. monocytogenes等快速生长的微生物感染,但对于需要更长时间才能在组织中定植并扩散的病原体,则可能需要更长的培养时间。
为了减轻全球妊娠并发症的负担,研究必须聚焦于理解人类母胎界面的病理生理学机制。细菌、真菌和病毒等病原体从母体传播至胎儿,可导致严重的妊娠并发症及胎儿感染。通常认为,对实验动物进行可控的体内感染是研究病原体如何在器官间定植和迁移的金标准28。由于胎盘解剖结构在不同哺乳动物物种之间存在显著差异,因此在研究策略中纳入人类组织显得尤为重要。人类绒毛和蜕膜器官培养是研究宿主-病原体相互作用的高度相关模型系统。为了研究这一至关重要 yet 尚未充分理解的器官,研究人员可充分利用通常被丢弃的人类胎盘和蜕膜标本,采用本文所述的器官培养策略进行研究。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 Cristina Faralla 和 David Lowe 提供的有益讨论。我们感谢 Mark Weinstein 以及旧金山综合医院病理科提供的专业建议。本研究工作得到了美国国立卫生研究院资助 R01AI084928 和 Burroughs Wellcome 基金 41259(授予 A.I.B.)的支持;G.A.R. 得到了 F32AI108195、儿科病理学会青年研究者研究基金以及加州大学教师多样性合作伙伴计划校长博士后奖学金的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 灭菌袋 | Fisher Scientific | 01-812-54 | 用于单独灭菌解剖工具的高压灭菌步骤 |
| 细网筛 | Cuisinart(Amazon.com) | NA | 用铝箔完全包裹,并在组织采集前进行高压灭菌。 |
| 带龙头的塑料桶 | Fisher Scientific | 03-007-647 | 用于大量制备洗涤缓冲液。 |
| 冰袋 | Nortech labs | GB8818 | 这些物品无需购买,可从任何常规实验室运输中回收再利用,只要其包装中包含这些物品即可。 |
| 70% 乙醇 | VWR | V1001 | 70% 溶液,通过将 dH₂O 加入溶质制备20至190或200 proof的科研级酒精 |
| 10% 次氯酸钠溶液 | Waxie 卫生用品公司 | CLO 30966 | 由dH₂O配制的10%溶液20. |
| 光源箱 | Litebox Lumina(dickblick.com) | 55305-2009 | 请注意,替换用灯泡也可在 Blick 购买(55305.0100) |
| 显微解剖镊 | 斯托尔廷 | 52102-43 | 4英寸,1 × 2 × 0.5 毫米3,轻微弯曲 |
| 显微解剖镊 | 斯托尔廷 | 52102-06 | 4英寸,直型,精细,锋利 |
| 显微解剖弹簧剪 | 斯托尔廷 | 52130-01P | 麦克弗森-范纳斯弹簧剪,8.5 cm,0.33 mm 尖端,微弯 |
| 解剖显微镜 | 徕卡显微系统 | MZ16 或 M60 | 我们已成功使用所列的模型。 外部鹅颈式柔性光源有帮助作用,但并非必需。 |
| 50 ml 离心管 | Sigma-Aldrich(康宁) | CLS4558 | |
| 磷酸盐缓冲液 | Gibco(ThermoFisher Scientific) | 10010023 | 我们从本校组织培养核心设施购买,也有其他类似的选择可供使用。 |
| 10倍浓度磷酸盐缓冲液 | Teknova | P0195 | 配制洗涤缓冲液时,我们使用10倍浓度的PBS |
| 含GlutaMAX的DMEM/F-12营养混合物(Ham氏) | Gibco(Life Technologies) | 10565-018 | 我们购买这种特定的培养基配方,含有 2.438 g/L 碳酸氢钠、55 mg/L 丙酮酸钠和 4.5 g/L 葡萄糖 |
| 庆大霉素 | 赛默飞世尔科技 | 15710072 | 1,000倍浓缩液。建议配制后分装保存于-20℃ °C,以避免冻融。 |
| 青霉素/链霉素 | Gibco(ThermoFisher Scientific) | 15140-122 | 100倍浓缩储备液 建议在 -20 ℃ 下分装并储存 aliquots °C,以避免冻融。 |
| 两性霉素B | Gibco(ThermoFisher Scientific) | 15290-018 | 500倍浓缩液 建议在 -20 ℃ 下分装并储存 aliquots °C,以避免冻融。 |
| 孕酮 | Sigma-Aldrich | P8783 | 1 mM 储存液的配制方法:将 15.7 mg 孕酮粉末溶于 15.7 ml 乙醇中,再加入 34.3 ml PBS,混匀后经无菌滤器过滤,分装并保存于 -20 ℃ °C. |
| 17β-雌二醇 | Sigma-Aldrich | E2758 | 10 μ将13.5 mg雌二醇粉末溶于10 ml乙醇中,再加入40 ml PBS,配制成M储备液。溶液经无菌过滤后分装,并于-20℃保存。 °C. |
| 瓶顶真空滤器(0.22 μm) | Sigma-Aldrich(康宁) | CLS430769 | 制备完成后对收集培养基进行无菌过滤 |
| 6孔组织培养板 | BD Falcon | 353224 | 聚苯乙烯,组织培养处理 |
| 6孔Transwell小室 | Millipore | PICM03050 | 插入物 - 30 mm 直径,0.4 μm孔径亲水性聚四氟乙烯膜 |
| 细胞外基质(例如,Matrigel基质) | BD 生物科学 | 354234 | 我们已在研究中使用了Matrigel基质。它在室温及-20℃下呈固态 °C. 避免反复冻融。将瓶子在4℃下解冻至黏稠溶液状态 °C,并准备约 300 μ在冷室中使用预冷的移液器吸头分装L等份。将分装样品储存在-20 °C. |
| 多聚甲醛,16% w/v 水溶液 | Alfa Aesar | 30525-89-4 | 用于组织固定时,通过将储存液用PBS稀释,配制新鲜的4%多聚甲醛溶液。 |
| 组织培养箱,保持在37 °37°C,5% CO2,3% 氧气(绒毛类器官培养可选) | 在某些实验中,可能更倾向于使用低氧条件。 可通过多种方式实现,包括通过气瓶、Tygon 软管和减压阀添加外源性氮气。 | ||
| 台式离心机 |
参考文献
- Pan, X., Yang, Y., Zhang, J. R. Molecular basis of host specificity in human pathogenic bacteria. Emerging microbes & infections. 3, e23(2014).
- Robbins, J. R., Skrzypczynska, K. M., Zeldovich, V. B., Kapidzic, M., Bakardjiev, A. I. Placental syncytiotrophoblast constitutes a major barrier to vertical transmission of Listeria monocytogenes. PLoS pathogens. 6, e1000732(2010).
- Zhang, J. R., et al. The polymeric immunoglobulin receptor translocates pneumococci across human nasopharyngeal epithelial cells. Cell. 102, 827-837 (2000).
- Ngampasutadol, J., et al. Human C4b-binding protein selectively interacts with Neisseria gonorrhoeae and results in species-specific infection. Proceedings of the National Academy of Sciences of the United States of America. 102, 17142-17147 (2005).
- Pishchany, G., et al. Specificity for human hemoglobin enhances Staphylococcus aureus infection. Cell host & microbe. 8, 544-550 (2010).
- Benirschke, K., Kaufmann, P., Baergen, R. N. Pathology of the Human Placenta. , Springer-Verlag. Berlin Heidelberg. (2012).
- Robbins, J. R., Zeldovich, V. B., Poukchanski, A., Boothroyd, J. C., Bakardjiev, A. I. Tissue barriers of the human placenta to infection with Toxoplasma gondii. Infection and immunity. 80, 418-428 (2012).
- Shamir, E. R., Ewald, A. J. Three-dimensional organotypic culture: experimental models of mammalian biology and disease. Nature reviews. Molecular cell biology. 15, 647-664 (2014).
- Hazan, A. D., et al. Vascular-leukocyte interactions: mechanisms of human decidual spiral artery remodeling in vitro. The American journal of pathology. 177, 1017-1030 (2010).
- Dunk, C., et al. A novel in vitro model of trophoblast-mediated decidual blood vessel remodeling. Laboratory investigation; a journal of technical methods and pathology. 83, 1821-1828 (2003).
- Hunkapiller, N. M., Fisher, S. J. Chapter 12. Placental remodeling of the uterine vasculature. Methods in enzymology. 445, 281-302 (2008).
- Miller, J. M., et al. Guidelines for safe work practices in human and animal medical diagnostic laboratories. Recommendations of a CDC-convened, Biosafety Blue Ribbon Panel. MMWR Surveill Summ. 61 Suppl, 1-102 (2012).
- Lash, G. E., et al. Low oxygen concentrations inhibit trophoblast cell invasion from early gestation placental explants via alterations in levels of the urokinase plasminogen activator system. Biol Reprod. 74, 403-409 (2006).
- Wang, N., Strugnell, R., Wijburg, O., Brodnicki, T. Measuring bacterial load and immune responses in mice infected with Listeria monocytogenes. Journal of visualized experiments : JoVE. , (2011).
- Palmer, M. E., Watson, A. L., Burton, G. J. Morphological analysis of degeneration and regeneration of syncytiotrophoblast in first trimester placental villi during organ culture. Hum Reprod. 12, 379-382 (1997).
- Elsinghorst, E. A. Measurement of invasion by gentamicin resistance. Methods in enzymology. 236, 405-420 (1994).
- Kucherenko, M. M., et al. Paraffin-embedded and frozen sections of Drosophila adult muscles. Journal of visualized experiments : JoVE. , (2010).
- Croy, B. A., Yamada, A. T., DeMayo, F. J., Adamson, S. L. The Guide to Investigation of Mouse Pregnancy, 1st Edition. , (2014).
- JoVE Science Education Database. General Laboratory Techniques. Histological Sample Preparation for Light Microscopy. JoVE. , (2016).
- Troy, T. C., Arabzadeh, A., Enikanolaiye, A., Lariviere, N., Turksen, K. Immunohistochemistry on paraffin sections of mouse epidermis using fluorescent antibodies. Journal of visualized experiments : JoVE. , (2008).
- Chi, V., Chandy, K. G. Immunohistochemistry: paraffin sections using the Vectastain ABC kit from vector labs. Journal of visualized experiments : JoVE. , e308(2007).
- Zeldovich, V. B., Bakardjiev, A. I. Host defense and tolerance: unique challenges in the placenta. PLoS pathogens. 8, e1002804(2012).
- Yue, F., et al. A comparative encyclopedia of DNA elements in the mouse genome. Nature. 515, 355-364 (2014).
- Robbins, J. R., Bakardjiev, A. I. Pathogens and the placental fortress. Current opinion in microbiology. 15, 36-43 (2012).
- Mestas, J., Hughes, C. C. Of mice and not men: differences between mouse and human immunology. J Immunol. 172, 2731-2738 (2004).
- Redline, R. W., Shea, C. M., Papaioannou, V. E., Lu, C. Y. Defective anti-listerial responses in deciduoma of pseudopregnant mice. The American journal of pathology. 133, 485-497 (1988).
- Redline, R. W., McKay, D. B., Vazquez, M. A., Papaioannou, V. E., Lu, C. Y. Macrophage functions are regulated by the substratum of murine decidual stromal cells. The Journal of clinical investigation. 85, 1951-1958 (1990).
- Bakardjiev, A. I., Theriot, J. A., Portnoy, D. A. Listeria monocytogenes traffics from maternal organs to the placenta and back. PLoS pathogens. 2, e66(2006).
重印与许可
