本文描述了一种高通量、自动化的烟草原生质体生产和转化方法。该机器人系统能够在模式BY-2体系中实现大规模平行的基因表达与功能研究,且该技术有望拓展应用于非模式作物。
本文内容
摘要
摘要
近十年来,从模式植物到作物物种,植物原生质体的应用重新受到关注,广泛用于信号转导通路、转录调控网络、基因表达、基因组编辑以及基因沉默等研究。此外,原生质体再生植株方面也取得了显著进展,进一步推动了这些系统在植物基因组学中的应用。本研究建立了一种利用机器人平台自动化完成‘Bright Yellow’ 2(BY-2)烟草悬浮培养细胞中原生质体分离与转化的实验方案。转化过程通过使用花椰菜花叶病毒35S启动子(35S)驱动的橙色荧光蛋白(OFP)报告基因(pporRFP)进行验证。原生质体中OFP的表达通过落射荧光显微镜检测确认。分析还包括利用碘化丙啶评估原生质体产率的方法。最后,本研究采用低成本食品级酶进行原生质体分离,避免了高通量自动化原生质体分离与分析中因使用昂贵的实验室级酶带来的成本限制。根据本研究所建立的方案,从原生质体分离到转化的全过程可在4小时内完成,且无需人工干预。尽管本研究的方案在BY-2细胞系中进行了验证,但其操作流程和方法可推广至其他任何植物悬浮培养或原生质体系统,有望加速作物基因组学的研究进程。
引言
近年来,人们大力推动转基因作物的设计,以应对多种病害1,赋予除草剂抗性2,提高抗旱3,4和耐盐能力5,防止植食性动物取食6,增加生物量产量7,以及降低细胞壁的顽抗性8。这一趋势得益于新型分子工具的发展,这些工具可用于创制转基因植物,包括利用CRISPR和TALENs进行基因组编辑9,以及通过dsRNA10、miRNA11和siRNA12实现基因沉默。尽管这些技术简化了转基因植物的创制过程,但也造成了瓶颈:产生的转基因植株数量巨大,无法通过依赖植株再生的传统系统进行有效筛选。与此瓶颈相关的是,虽然基因沉默和基因组编辑载体可以快速导入植物,但许多靶向性状并未产生预期效果,而这一问题通常直到植物在温室中分析时才被发现。在本研究中,我们开发了一种针对植物原生质体的快速、自动化、高通量筛选方法,专门用于解决当前在大量基因组编辑和基因沉默靶点早期筛选中存在的瓶颈问题。
使用原生质体相较于完整植物细胞,在自动化平台的开发中具有多项优势。首先,原生质体是在植物细胞壁被消化后分离得到的,由于细胞壁这一屏障已不存在,转化效率得以提高13在完整的植物细胞中,目前仅有两种被广泛认可的转化方法,即基因枪法14 和 农杆菌介导的转化15这两种方法均难以直接应用于液体处理平台,因为基因枪法转化需要专用设备,而 农杆菌介导的转化需要共培养以及后续去除细菌,这两种步骤均不适用于高通量方法。对于原生质体而言,转化通常采用聚乙二醇(PEG)介导的转染进行16,仅需几次溶液更换,非常适合液体处理平台操作。其次,根据定义,原生质体为单细胞培养体系,因此植物细胞培养中常见的细胞聚团和链状结构问题在原生质体中不会出现。在使用基于微孔板的分光光度计进行快速筛选时,细胞聚团或细胞处于多个焦平面会导致测量结果不一致。由于原生质体的密度高于其培养基,它们会沉降到孔板底部,形成单层结构,有利于基于微孔板的分光光度测定。最后,尽管植物悬浮细胞培养物主要来源于愈伤组织17,原生质体可从多种植物组织中分离获得,从而能够鉴定组织特异性表达。例如,分析某个基因在根或叶中的特异性表达能力对于表型预测可能具有重要意义。因此,本研究建立的实验方案通过分离广泛使用的烟草(Nicotiana tabacum L.)‘Bright Yellow’2(BY-2)悬浮培养物。
由于在植物细胞分子分析中的广泛应用,BY-2悬浮培养细胞被称为高等植物的"HeLa"细胞18。近年来,BY-2细胞已被用于研究植物胁迫因子的影响19-22、细胞内蛋白质定位23,24以及基础细胞生物学问题25-27,显示出这些培养体系在植物生物学中的广泛用途。BY-2培养体系的另一个优势是可利用aphidicolin实现细胞周期同步化,从而提高基因表达研究的可重复性28。此外,已有方法采用低成本酶制剂从BY-2细胞中提取原生质体29,30,因为传统用于原生质体制备的酶类成本较高,难以适用于高通量系统。因此,下述方案虽以BY-2悬浮培养体系为基础进行验证,但应可适用于任何植物细胞悬浮培养体系。概念验证实验采用来自石珊瑚Porites porites的橙色荧光蛋白(OFP)报告基因(pporRFP)31,并在CAMV 35S启动子的调控下进行。
方案
1. 悬浮细胞培养物的建立
- 制备液体BY-2培养基:将4.43 g Linsmaier & Skoog基本培养基、30 g蔗糖、200 mg KH2PO4和200 µg 2,4-二氯苯氧乙酸(2,4-D)加入900 ml蒸馏水中,用0.1 M KOH调节pH至5.8。调节pH后,用蒸馏水定容至1,000 ml,并进行高压灭菌。培养基可在4 °C下保存最多2周。
- 取一个250 ml锥形瓶,加入100 ml液体BY-2培养基和一块在固体BY-2培养基(含1%琼脂的液体BY-2培养基)上生长的BY-2愈伤组织(>1 cm直径),用铝箔密封。在28–30 °C条件下振荡培养5天。
注意:BY-2愈伤组织长期保存时应维持在固体培养基上,因为液体培养物会迅速过度生长。培养体积可根据需要调整,通常100 ml培养物可接种三十三块6孔板。 - 将2 ml对数生长期的BY-2培养物转移至98 ml新鲜BY-2培养基中,在28–30 °C条件下振荡培养5–7天。
注意:已建立的液体培养物可定期通过5–7天培养物1:100稀释进行传代,而不必使用愈伤组织接种。 - 充分混匀培养物(细胞会迅速沉降),取6 ml细胞培养液转移至15 ml圆底离心管中,静置至少10分钟使细胞沉降。通过去除上清液将压紧细胞体积调节至总体积的50%。
- 轻轻颠倒混匀离心管,用宽口枪头吸取500 µl细胞悬液加入6孔板的每一孔中用于消化。此步骤应使用宽口枪头转移细胞,因为细胞密度高,容易堵塞标准枪头。
2. 原生质体分离
- 启动机器人系统的各个组件(图1A),并打开微孔板搬运器的任务调度软件。任务调度程序将微孔板搬运器与其他设备集成,以实现各设备之间的板转移。
- 在实验开始前,需在微孔板搬运器软件中定义本方案所用耗材(例如,微孔板、盖子)的技术参数,以及每件耗材的起始和终止位置,具体步骤如下:
- 在微孔板搬运器软件的主工具栏中点击设置(Setup),然后选择管理容器类型(Manage Container Types)命令。
- 如果容器类型已在现有容器类型库中列出,则选择相应的容器。
- 如果容器类型未在现有容器类型库中列出,则点击添加(Add)以定义新的容器类型。
- 添加新容器类型后,将该容器的尺寸(高度、宽度、堆叠尺寸和夹持器偏移量)输入对应的选项卡中,并点击保存(Save)。
- 若制造商未提供准确尺寸,则需使用游标卡尺精确测量所有尺寸至最接近的毫米。容器尺寸测量错误将导致微孔板搬运器运行失败。
- 对微孔板搬运器将要使用的全部容器类型重复步骤 2.2.2 至 2.2.4.1。完成所有耗材的设置后,必须定义每种容器的起始和终止位置(步骤 2.2.6)。
注:本方案中涉及的耗材包括 6 孔板、深孔板和 96 孔荧光筛选板。 - 要定义每种容器的起始和终止位置,请在特定协议中点击起始/终止(Start/End)选项卡。首先选择每种容器的起始位置,然后在起始和终止位置均勾选带盖/无盖(Lidded/Unlidded)选项。对所有容器重复此操作。
注:若容器将保留在其他设备上(而非微孔板搬运器上),则可将终止位置留空。
- 在此阶段,手动将所有微孔板加载至整个工作流程的起始位置。将 96 孔荧光筛选板放入 Hotel 2,含 BY-2 细胞的 6 孔板放入 Hotel 3,用于转化的 96 深孔板放置于加热/制冷板巢 2,将含有酶溶液的 50 ml 锥形管(见补充文件,第 1.2.2 节)放置于多功能分配器上。
- 若本方案中将进行转化操作,需预先在 96 深孔板的每个孔中加入 10 µl 质粒 DNA(1 µg/µl,A260/280 > 1.8),其中包含 OFP 报告基因构建体,并将其置于板加热/制冷器上于 4 °C 孵育。每个孔用于一次独立的转化,因此填充的孔数取决于实验设计。
- 将所有试剂和微孔板按指定位置装载到自动液体处理平台上,并在自动化控制软件中定义每个物品的位置(图1B)。
- 在巢位 2 中放置一个 96 孔板,其中第 1 列每孔预装 200 µl 含 40% PEG 的 MMg 溶液(0.4 M 甘露醇,100 mM MgCl2,4 mM MES,pH 5.7),第 2 列每孔 200 µl 碘化丙啶(PI,1 µg/ml),第 3 列每孔 200 µl 乙醇,并在巢位 8 放置一盒移液枪头。
- 要在自动液体处理平台软件中定义耗材位置,请从菜单中选择工具(Tools),然后点击耗材编辑器(Labware Editor)。
- 从下拉菜单中选择耗材类型,或使用新建耗材(New Labware)按钮定义新的耗材类型。
- 通过选择主协议(Main Protocol)选项卡并点击配置耗材(Configure Labware),定义所选每件耗材的位置。确保在运行协议前,所有放置在自动液体处理平台上的耗材均已正确定义。
- 要启动自动协议,请点击“Profile Explorer”窗口,并选择要运行的协议名称(原生质体分离、细胞计数 和 PEG 介导的转化)。
- 点击运行(Run)以初始化协议中将使用的所有设备。
- 最后,在“Work Explorer”窗口中点击添加工作单元(Add Work Unit),以验证系统中所有容器/耗材的状态,并启动自动协议。
注:自动协议的完整描述详见补充文件。
3. 建立细胞计数标准曲线
- 手动将原生质体浓缩至1 ml体积中,浓度为1 × 10⁶ 个原生质体/ml。在1,000 × g条件下离心10分钟,弃去上清液。
- 向原生质体沉淀中加入900 µl预冷至4 °C的70%乙醇,重悬沉淀。冰上孵育10分钟以固定细胞。
- 向原生质体中加入100 µl碘化丙啶(PI,1 µg/ml),用于细胞核染色,以便通过酶标仪检测。
- 从第2列开始,在96孔荧光筛选板的每列每行中加入80 µl液体BY-2培养基。
- 在96孔荧光筛选板的第1列中,向每孔加入70 µl原生质体悬液和50 µl BY-2培养基。
- 将该板放入自动化液体处理平台的6号巢位,运行2倍系列稀释。
- 在自动化液体处理平台上进行系列稀释时,点击Launch Serial Dilution Wizard,并调整转移体积(60 µl)、混合次数和体积(2次,70 µl)、起始孔(第1列,A-F行)、稀释孔(第2-11列,A-F行)以及吸液和排液参数(距孔底0.5 mm)。
- 设置参数后,保存并运行程序。
注意:由于所有原生质体均已被PI标记(因细胞已固定),荧光强度与原生质体浓度成正比。 - 系列稀释完成后,将板从9号巢位取出,插入酶标仪,并运行酶标仪软件中的标准曲线程序。
注意:通过比较各孔中PI的荧光信号(激发波长536 nm,发射波长620 nm)与已知的原生质体浓度,将生成一条标准曲线。
- 酶标仪程序完成后,取出微孔板,收集所有转基因细胞,并按照生物安全规程进行高压灭菌或其他失活处理。
4. 转化作用的显微分析
- 从机器人系统的 Hotel 1 中取出转化后的原生质体平板(自动化方案 3 的产物,补充文件)。
- 打开倒置显微镜、相机和荧光灯。
- 选择 10X 物镜以初步聚焦原生质体,打开卤素灯,并关闭荧光灯的快门。
- 将平板载入显微系统,使用明场模式对原生质体进行聚焦。
- 完成对原生质体的聚焦后,关闭卤素灯泡,并打开荧光灯的快门。
- 选择 CY3/TRITC 滤光片组,用于观察转基因原生质体表达的 pporRFP 蛋白。
- 扫描每个孔,确定表达 pporRFP 荧光标记的原生质体数量。
- 计算转化效率,即表达荧光标记的原生质体总数与原生质体总数之比。
- 将含有转基因细胞的平板收集至经批准的生物安全袋中,按照生物安全规程进行高压灭菌或其他失活处理。
结果
在本研究中,BY-2细胞的倍增时间因培养温度不同而介于14至18小时之间,这与以往报道的平均细胞周期长度为15小时的结果一致。在此倍增速率下,采用1:100的起始接种量进行培养,可在5至7天内获得细胞压实体积(PCV)达50%的培养物。在本实验方案中,使用200 ml培养基进行培养,7天后可获得100 ml的PCV,足以接种33块6孔板。就原生质体产量而言,按照本方案指定条件进行消化,每孔可获得4.70 × 10⁵ ± 5.77 × 10³个原生质体,即每块6孔板可获得2.82 × 10⁶个原生质体(图2A)。根据这些数据,单次6孔板消化所得原生质体可接种214块96孔板(每孔70 µl),并且由于配备了两个加热/制冷板站,可同时进行两块6孔板的消化。因此,在一次三小时的消化流程中,最多可获得5.64 × 106个原生质体。
尽管每次消化方案所产生的原生质体总数可作为该系统的一个评估指标,但还需评估原生质体在经过实验方案各个步骤转移过程中的浓度损失情况。因此,本研究在方案的每一步转移操作后均检测了原生质体的浓度。在完成消化方案后,将 1.15 x 10⁴ ± 1.35 x 10² 个原生质体转移至96孔深孔板的每个孔中(若进行转化实验)或96孔荧光筛选板中(图2B)。在完成转化方案后,将 1.23 x 10³ ± 4.66 x 101 个原生质体转移至96孔荧光筛选板中(图2C)。除了转移的原生质体数量外,还必须测定其活力,以确保多次移液操作未对原生质体造成损伤。
根据活力检测结果,原生质体在消化后活力为 95.1 ± 0.04%,转移至 96 孔荧光筛选板后为 92.1 ± 0.06%,转化程序完成后为 91.7 ± 16.67%。尽管经历了多次移液操作,各样品之间无显著差异(p > 0.44)。除该活力评估外,还建立了一种通过测量经 PI 染色的原生质体总数来确定实验各阶段原生质体浓度的方案。如图 3所示,通过测定该系统中已知浓度原生质体的荧光强度,绘制出标准曲线。该标准曲线拟合良好(R2 = 0.967),原生质体总数范围为每孔 0 至 30,000 个。为验证标准曲线的准确性,测定了已知原生质体数量(通过血细胞计数板计算得出,分别为 8,125 和 24,375)样品的荧光强度,并利用标准曲线方程计算其原生质体数量。根据结果,标准曲线预测每孔原生质体数量分别为 9,560 和 28,200,误差为 15% 和 14%。考虑到使用血细胞计数板计数细胞本身也存在变异性,该误差在可接受范围内。
除了细胞数量和活力的结果外,转化实验方案成功获得了表达OFP的转基因细胞(图2D-F)。然而,由于本研究使用了较大的16,028 bp双元质粒,且该方案未针对BY-2原生质体进行专门优化,导致转化效率较低,约为2%。如讨论部分所述,针对BY-2原生质体对转化方案的试剂和条件进行优化,有望提高转化效率。就本方案而言,转化实验的设计旨在验证从原生质体分离到转化这一概念路径的可行性,并已成功实现了该目标。
在成功验证所有独立步骤后,获得了从原生质体分离到转化整个流程的时间数据。如图4所示,主要耗时集中在消化阶段,该阶段需要3小时才能完成细胞壁的完全消化并释放原生质体。在此过程中,微孔板在板式振荡器与板式加热/冷却仪1之间的孵育站来回运行18个循环,由板移动器在两个站点之间转移微孔板。板式振荡器与板式加热/冷却仪1之间的转移时间仅为8.9秒,确保消化过程的绝大部分时间用于孵育和振荡。从程序启动至多功能分配器完成酶液的全部加载,总耗时为2.2分钟。总体而言,完整的原生质体分离流程共耗时3小时22.8分钟。根据这些结果,原生质体分离流程中88%的时间用于消化步骤。在完成原生质体分离后,随即启动转化流程,并在27.5分钟内完成。与原生质体分离流程类似,转化流程中72%的时间用于反应孵育。该流程中唯一另一个具有显著耗时(占总流程时间>10%)的步骤是由自动化液体处理平台初始化程序,占整个流程总时间的14%。因此,该流程86%的时间用于初始化和孵育,仅有14%的时间用于移液和转移操作。整个原生质体分离与转化过程的总时长为3小时50分钟53秒,期间无需操作人员进行任何外部干预。
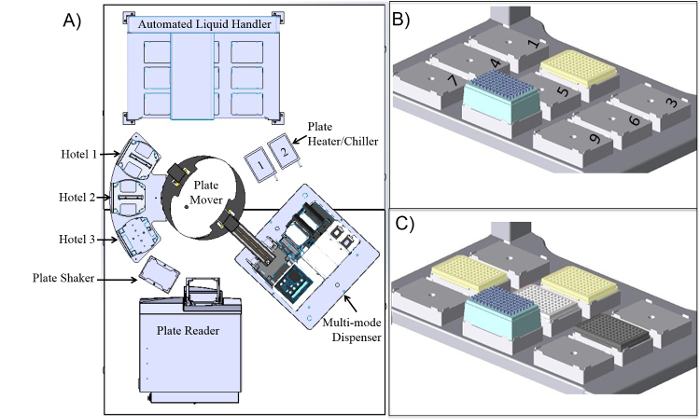
图1: 机器人平台的示意图及在实验流程中自动化液体处理平台的配置。 (A)该机器人系统由3个板堆/板位组成,可通过板移动器进行访问。板位1为指定的盖板/去盖站,板位2为96孔荧光板堆,板位3为6孔板堆。系统配备两个液体处理装置:一个自动化液体处理平台和一个基于喷嘴的多模式分配器。为实现加热/冷却,机器人平台配备两个板加热/制冷单元,以及一个用于混匀板的板振荡器。最后,系统配备基于单色器的酶标仪用于检测荧光。所有组件均安装在一个定制的生物安全柜内。(B)自动化液体处理平台的初始配置,其中巢位2放置试剂板,吸头盒放置在巢位8。(C)在启动实验流程前,自动化液体处理平台的配置状态:深孔板位于巢位4,96孔荧光筛选板位于巢位6,含有原生质体的6孔板位于巢位5。请点击此处查看该图的放大版本。
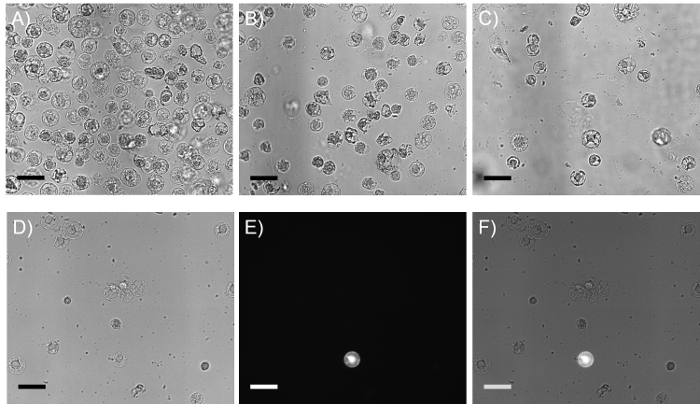
图 2: 每次转移后及用橙色荧光蛋白报告基因转化后的 BY-2 原生质体代表性图像。 (A-C)6 孔板中 BY-2 原生质体密度、从 6 孔板转移 70 µl 至 96 孔板后的原生质体密度,以及转化后 96 孔荧光筛选板中的显微图像。 (D)转化后 BY-2 原生质体的明场显微图像。 (E)表达 OFP 基因的荧光 BY-2 原生质体,使用 Cy3/TRITC 滤光片组观察。 (F)明场与荧光显微图像的叠加,显示转化效率较低。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
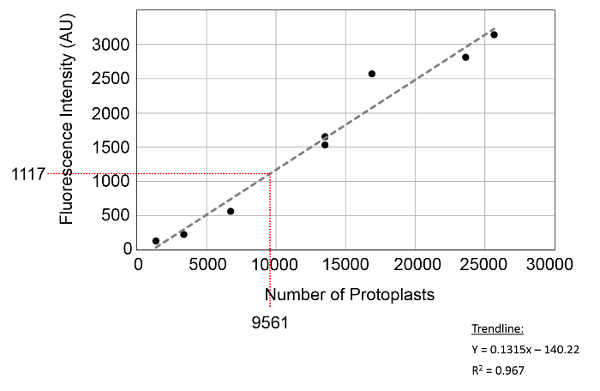
图3: 用于计算原生质体数量的标准曲线。 可通过将任意单位(AU)下的荧光强度与标准曲线方程进行比较,来计算特定孔中所含的原生质体数量。在图中所示点处,通过标准曲线法与血细胞计数板法对原生质体数量进行了验证,其中酶标仪测得原生质体数量为9,561个,血细胞计数板计数结果为8,125个。总体而言,两种技术之间的误差为15%。请点击此处查看该图的放大版本。
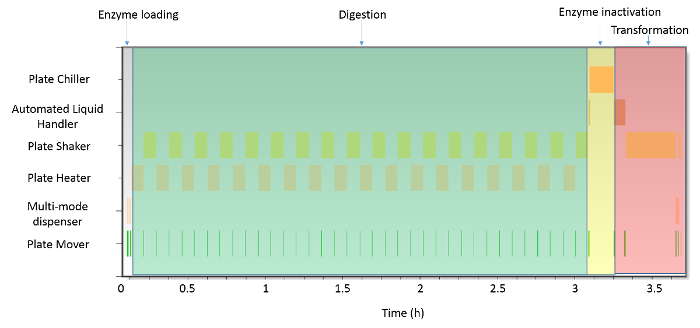
图 4: 制备 BY-2 原生质体及遗传转化操作流程的甘特图。 该实验方案的大部分时间(约 3 小时)用于消化 BY-2 细胞以产生原生质体。酶溶液的加载与灭活仅占整个操作时间的 12%。同样,转化反应在平板摇床中的孵育步骤占整个转化流程的 72%。总体而言,从原生质体分离到完成遗传转化的全过程耗时不足 4 小时(共计 3 小时 50 分 53 秒)。请点击此处查看该图的放大版本。
补充文件:原生质体分离、细胞计数和PEG介导转化的自动化操作流程。 本文件包含了为在机器人平台上完成上述各项任务而开发的完整操作流程。请点击此处下载该文件。
讨论
上述方案已成功用于BY-2烟草悬浮细胞培养物的原生质体分离、计数和转化;然而,该方案可轻松推广至任何植物悬浮培养体系。目前,原生质体的分离与转化已在多种植物中实现,包括玉米(Zea mays)10、胡萝卜(Daucus carota)32、胡杨(Populus euphratica)33、葡萄(Vitis vinifera)34、油棕(Elaeis guineensis)35、生菜(Lactuca sativa)36、芥菜(Brassica juncea)37、水稻(Oryza sativa)38和柳枝稷(Panicum virgatum)39,40。尽管不同物种在培养和消化条件上存在差异,但就本研究建立的方案而言,更换培养基或调整消化条件不应改变其基本流程。为适应不同物种,操作人员可在启动协议前加载所需的培养基和消化酶,因此更换这些组分极为简便。此外,该方案还可用于筛选多种消化条件,并由系统测定原生质体的产量。这一功能至关重要,因为在高通量应用中必须使用低成本酶,因此尽量减少消化过程中酶的用量具有重要意义。
与培养和消化类似,在将该系统用于转化来自不同植物物种的原生质体时,需要对转化方案进行相应修改。目前已有大量研究致力于优化植物原生质体中聚乙二醇(PEG)介导的转化效率16,35,多种因素会影响转化效率。在本研究中,影响转化效率的一个限制因素是所用双元测试质粒的较大尺寸(16,028 bp),该质粒用于模拟基因组编辑质粒的大小。在以往关于BY-2原生质体的PEG介导转化研究中,转化效率可达40–60%;然而,这些研究使用的是较小的5,000 bp质粒41,42。不同物种间PEG介导转化的主要修改参数包括PEG和MgCl2的浓度、DNA的用量与浓度,以及反应时间。由于PEG和MgCl2溶液是通过试剂板加入系统,而DNA已预先加载至深孔板中,因此上述条件可在上述方案中轻松调整。此外,孵育时间的延长或缩短,以及混合速度的调整,均可由机器人平台精确控制。当前转化方案的一个局限性在于,由于PEG介导的BY-2原生质体转化效率较低,无法利用酶标仪对荧光报告基因进行有效筛选。而在其他物种中,例如Arabidopsis thaliana和玉米16,PEG介导的转化效率可达40–90%。在这些系统中,可利用机器人上的酶标仪快速鉴定转化子。因此,能够识别出含有阳性转化子的孔,并定量分析其表达水平。对于启动子筛选等应用而言,这一功能将显著提升当前方案的实用性,并将在系统的后续版本中加以实现。
除了优化 BY-2 原生质体的转化效率外,若干改进措施还可提高该系统的转化效率和整体通量。以往关于原生质体转化自动化的研究中,在加入洗涤液前允许原生质体沉降至孔板底部43在本实验方案中,原生质体在平底孔板中通过平板摇床混合,以防止沉降并保持其悬浮状态。此外,在转化过程中,原生质体不得在深孔板中沉降,以减少其对聚乙二醇(PEG)的暴露,因为长时间暴露于PEG可能产生毒性。因此,当原生质体从深孔板转移至96孔荧光筛选板时,使用W5溶液将其稀释约10倍,最终浓度为1.23 × 10³ ± 4.66 x 101 每孔原生质体。为了增加转化后转移的原生质体数量,可增加一个孵育步骤,使原生质体沉降,随后移除上清液,并加入较小体积的液体BY-2培养基。此外,若在系统中加入基于平板的离心机,则此步骤可更快完成。另一项可增强系统功能的改进是使用活/死荧光检测法,在转化前评估分离所得原生质体的活力。在当前方案中,曾测试荧光素二乙酸酯(FDA)作为活细胞染料;然而,BY-2原生质体的背景荧光掩盖了FDA信号。若使用更稳定的活力染料,则可将原生质体活力确定为红色(PI)与绿色(Calcein AM)荧光的比值, 等等。)荧光检测,并参照细胞计数方案进行标准化。这些改进将为系统增加更多功能,并将在后续方案中予以纳入。
关于本实验方案,有几个关键步骤必须严格遵守,以确保方案的成功。首先,BY-2细胞培养物的培养时间/健康状态至关重要,必须保证能够分离出具有活性的原生质体以用于后续操作。如步骤1.3所述,将对数生长期的培养物以1:50的细胞与新鲜培养基比例转移至新的培养瓶中,并继续培养5–7天,可获得最大数量的活性原生质体。若使用指定接种量但培养时间过长或过短,将显著降低原生质体的得率,并导致后续实验失败。第二个关键步骤是步骤1.5,若使用普通移液器吸头而非指定的宽口吸头,会导致吸头堵塞,造成转移体积不准确。关于自动化系统的设置,步骤2.4中所述在自动液体处理平台上的板位排列至关重要,若布局不当,将导致液体处理仪的机械臂无法触及6孔板中的所有孔位。由于自动液体处理平台的设计限制,6孔板必须放置在第5号巢位中,否则所选实验程序将无法成功运行。同样,若未在板位移动软件中正确设定实验耗材的类型(步骤2.2),仪器将无法正确抓取或放置耗材,导致程序中止。在细胞计数实验中,关键步骤为使用乙醇固定细胞(步骤3.2)。若在使用PI染色前未对细胞进行固定处理,则仅有非活性细胞被标记,而非全部原生质体群体,从而无法准确计数所分离的原生质体数量。最后一个关键步骤是步骤4.6,即为显微镜分析pporRFP荧光标记的表达选择合适的荧光滤光片。若使用其他"红色"滤光片组合,会导致叶绿素产生背景荧光,显著增强所有含叶绿体的原生质体中的信号,从而无法准确计算转化效率。严格遵循这些关键步骤中的各项参数,是确保实验成功并获得高度可重复数据集的最重要保障。
披露
作者声明不存在任何竞争性经济利益。
致谢
本研究由高级研究计划署-能源(ARPA-E)资助,项目编号为 DE-AR0000313。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Orbitor RS 微孔板转移仪 | Thermo Scientific | ||
| Bravo 液体处理系统 | Agilent | ||
| Synergy H1 多功能酶标仪 | BioTek | ||
| MultiFlo FX 多功能分液器 | BioTek | ||
| Teleshake | Inheco | 3800048 | |
| CPAC 超平加热/冷却模块 | Inheco | 7000190 | |
| Vworks 自动化软件 | Agilent | 用于控制 Agilent Bravo 并编写其操作程序的软件 | |
| Momentum 软件 | Thermo Scientific | 用于控制 Orbitor RS 的任务调度软件 | |
| Liquid Handling Control 2.17 软件 | Biotek | 用于控制 MultiFlo FX 并编写其操作程序的软件 | |
| IX81 倒置显微镜 | Olympus | ||
| Zyla 3-Tap 显微成像相机 | Andor | ||
| ET-CY3/TRITC 滤光片组 | Chroma Technology Corp | 49004 | |
| Rohament CL | AB Enzymes | 样品瓶 | 低成本纤维素酶 |
| Rohapect UF | AB Enzymes | 样品瓶 | 低成本果胶酶 |
| Rohapect 10L | AB Enzymes | 样品瓶 | 低成本果胶酶/阿拉伯聚糖酶 |
| Linsmaier & Skoog 基础培养基 | Phytotechnology Laboratories | L689 | |
| 2,4-二氯苯氧乙酸 | Phytotechnology Laboratories | D295 | |
| 碘化丙啶 | Sigma Aldrich | P4170 | |
| 聚乙二醇 4000 | Sigma Aldrich | 95904-250G-F | 原为 Fluka PEG |
| 碘化丙啶 | Fisher Scientific | 25535-16-4 | Acros Organics |
| CaCl2 | Sigma Aldrich | C7902-1KG | |
| 乙酸钠 | Fisher Scientific | BP333-500 | |
| 甘露醇 | Sigma Aldrich | M1902-1KG | |
| 蔗糖 | Fisher Scientific | S5-3 | |
| KH2PO4 | Fisher Scientific | AC424205000 | |
| KOH | Sigma Aldrich | P1767 | |
| Gelzan CM | Sigma Aldrich | G1910-250G | |
| 6 孔板 | Thermo Scientific | 103184 | |
| 96 孔 1.2 ml 深孔板 | Thermo Scientific | AB-0564 | |
| 96 孔光学底板 | Thermo Scientific | 165305 | |
| Finntip 1000 宽口移液吸头 | Thermo Scientific | 9405 163 | |
| NaCl | Fisher Scientific | BP358-10 | |
| KCl | Sigma Aldrich | P4504-1KG | |
| MES | Fisher Scientific | AC17259-5000 | |
| MgCl2 | Fisher Scientific | M33-500 |
参考文献
- Atkinson, H. J., Lilley, C. J., Urwin, P. E. Strategies for transgenic nematode control in developed and developing world crops. Curr. Opin. Biotech. 23 (2), 251-256 (2012).
- Duke, S. O. Perspectives on transgenic, herbicide-resistant crops in the United States almost 20 years after introduction. Pest Manag. Sci. 71 (5), 652-657 (2015).
- Mir, R., Zaman-Allah, M., Sreenivasulu, N., Trethowan, R., Varshney, R. Integrated genomics, physiology and breeding approaches for improving drought tolerance in crops. Theor. Appl. Genet. 125 (4), 625-645 (2012).
- Hu, H., Xiong, L. Genetic engineering and breeding of drought-resistant crops. Annu. Rev. Plant Bio. 65, 715-741 (2014).
- Marco, F., et al. Plant Biology and Biotechnology. , Springer. 579-609 (2015).
- Edgerton, M. D., et al. Transgenic insect resistance traits increase corn yield and yield stability. Nat. Biotechnol. 30 (6), 493-496 (2012).
- Vanhercke, T., et al. Metabolic engineering of biomass for high energy density: oilseed-like triacylglycerol yields from plant leaves. Plant Biotech. J. 12 (2), 231-239 (2014).
- Baxter, H. L., et al. Two-year field analysis of reduced recalcitrance transgenic switchgrass. Plant Biotech. J. 12 (7), 914-924 (2014).
- Xing, H. L., et al. A CRISPR/Cas9 toolkit for multiplex genome editing in plants. BMC Plant Biol. 14 (1), 327(2014).
- Cao, J., Yao, D., Lin, F., Jiang, M. PEG-mediated transient gene expression and silencing system in maize mesophyll protoplasts: a valuable tool for signal transduction study in maize. Acta Physio. Plant. 36 (5), 1271-1281 (2014).
- Martinho, C., et al. Dissection of miRNA pathways using Arabidopsis mesophyll protoplasts. Mol. Plant. 8 (2), 261-275 (2015).
- Bart, R., Chern, M., Park, C. J., Bartley, L., Ronald, P. C. A novel system for gene silencing using siRNAs in rice leaf and stem-derived protoplasts. Plant Methods. 2 (1), 13(2006).
- Jiang, F., Zhu, J., Liu, H. -L. Protoplasts: a useful research system for plant cell biology, especially dedifferentiation. Protoplasma. 250 (6), 1231-1238 (2013).
- Martin-Ortigosa, S., Valenstein, J. S., Lin, V. S. Y., Trewyn, B. G., Wang, K. Nanotechnology meets plant sciences: Gold functionalized mesoporous silica nanoparticle mediated protein and DNA codelivery to plant cells via the biolistic method. Adv. Funct. Mater. 22 (17), 3529-3529 (2012).
- Křenek, P., et al. Transient plant transformation mediated by Agrobacterium tumefaciens: Principles, methods and applications. Biotechnol. Adv. , (2015).
- Yoo, S. D., Cho, Y. H., Sheen, J. Arabidopsis mesophyll protoplasts: a versatile cell system for transient gene expression analysis. Nat. Protoc. 2 (7), 1565-1572 (2007).
- Mustafa, N. R., de Winter, W., van Iren, F., Verpoorte, R. Initiation, growth and cryopreservation of plant cell suspension cultures. Nat. Protoc. 6 (6), 715-742 (2011).
- Nagata, T., Nemoto, Y., Hasezawa, S. Tobacco BY-2 cell line as the "HeLa" cell in the cell biology of higher plants. Int. Rev. Cytol. 132 (1), 1-30 (1992).
- Centomani, I., et al. Involvement of DNA methylation in the control of cell growth during heat stress in tobacco BY-2 cells. Protoplasma. , 1-9 (2015).
- Sgobba, A., et al. Cyclic AMP deficiency stimulates a stress condition in tobacco BY-2 cells. BioTechnologia. 94 (2), (2013).
- Väisänen, E. E., et al. Coniferyl alcohol hinders the growth of tobacco BY-2 cells and Nicotiana benthamiana seedlings. Planta. 242 (3), 747-760 (2015).
- Ortiz-Espìn, A., et al. Over-expression of Trxo1 increases the viability of tobacco BY-2 cells under H2O2 treatment. Ann. Botany. 116 (4), 571-582 (2015).
- Ito, Y., et al. cis-Golgi proteins accumulate near the ER exit sites and act as the scaffold for Golgi regeneration after brefeldin A treatment in tobacco BY-2 cells. Mol. Bio. Cell. 23 (16), 3203-3214 (2012).
- Madison, S. L., Nebenführ, A. Live-cell imaging of dual-labeled Golgi stacks in tobacco BY-2 cells reveals similar behaviors for different cisternae during movement and brefeldin A treatment. Mol. Plant. 4 (5), 896-908 (2011).
- de Pinto, M. C., et al. S-nitrosylation of ascorbate peroxidase is part of programmed cell death signaling in tobacco Bright Yellow-2 cells. Plant Physiol. 163 (4), 1766-1775 (2013).
- Hanamata, S., et al. In vivo imaging and quantitative monitoring of autophagic flux in tobacco BY-2 cells. Plant Signa. Behav. 8 (1), 22510(2013).
- Sakai, A., Takusagawa, M., Nio, A., Sawai, Y. Cytological Studies on proliferation, differentiation, and death of BY-2 cultured tobacco cells. Cytologia. 80 (2), 133-141 (2015).
- Yasuhara, H., Kitamoto, K. Aphidicolin-induced nuclear elongation in tobacco BY-2 cells. Plant Cell Physiol. 55 (5), 913-927 (2014).
- Buntru, M., Vogel, S., Stoff, K., Spiegel, H., Schillberg, S. A versatile coupled cell-free transcription-translation system based on tobacco BY-2 cell lysates. Biotechnol. Bioeng. 112 (5), 867-878 (2015).
- Buntru, M., Vogel, S., Spiegel, H., Schillberg, S. Tobacco BY-2 cell-free lysate: an alternative and highly-productive plant-based in vitro translation system. BMC Biotechnol. 14 (1), 37(2014).
- Alieva, N. O., et al. Diversity and evolution of coral fluorescent proteins. PLoS ONE. 3 (7), 2680(2008).
- Maćkowska, K., Jarosz, A., Grzebelus, E. Plant regeneration from leaf-derived protoplasts within the Daucus genus: effect of different conditions in alginate embedding and phytosulfokine application. Plant Cell Tiss. Org. 117 (2), 241-252 (2014).
- Guo, Y., Song, X., Zhao, S., Lv, J., Lu, M. A transient gene expression system in Populus euphratica Oliv. protoplasts prepared from suspension cultured cells. Acta Physio. Plant. 37 (8), 1-8 (2015).
- Wang, H., Wang, W., Zhan, J., Huang, W., Xu, H. An efficient PEG-mediated transient gene expression system in grape protoplasts and its application in subcellular localization studies of flavonoids biosynthesis enzymes. Sci. Hort. 191, 82-89 (2015).
- Masani, M. Y. A., Noll, G. A., Parveez, G. K. A., Sambanthamurthi, R., Pruefer, D. Efficient transformation of oil palm protoplasts by PEG-mediated transfection and DNA microinjection. PLoS One. 9 (5), 96831(2014).
- Sasamoto, H., Ashihara, H. Effect of nicotinic acid, nicotinamide and trigonelline on the proliferation of lettuce cells derived from protoplasts. Phytochem. Lett. 7, 38-41 (2014).
- Uddin, M. J., Robin, A. H. K., Raffiand, S., Afrin, S. Somatic embryo formation from co-cultivated protoplasts of Brassica rapa & B. juncea. Am. J. Exp. Ag. 8 (6), 342-349 (2015).
- Hayashimoto, A., Li, Z., Murai, N. A polyethylene glycol-mediated protoplast transformation system for production of fertile transgenic rice plants. Plant Physiol. 93 (3), 857-863 (1990).
- Mazarei, M., Al-Ahmad, H., Rudis, M. R., Stewart, C. N. Protoplast isolation and transient gene expression in switchgrass, Panicum virgatum L. Biotechnol. J. 3 (3), 354-359 (2008).
- Mazarei, M., Al-Ahmad, H., Rudis, M. R., Joyce, B. L., Stewart, C. N. Switchgrass (Panicum virgatum L.) cell suspension cultures: Establishment, characterization, and application. Plant Sci. 181 (6), 712-715 (2011).
- Locatelli, F., Vannini, C., Magnani, E., Coraggio, I., Bracale, M. Efficiency of transient transformation in tobacco protoplasts is independent of plasmid amount. Plant Cell Rep. 21 (9), 865-871 (2003).
- Di Sansebastiano, G. P., Paris, N., Marc-Martin, S., Neuhaus, J. M. Specific accumulation of GFP in a non-acididc vacuolar compartment via a C-terminal propeptide-mediated sorting pathway. Plant J. 15 (4), 449-457 (1998).
- De Sutter, V., et al. Exploration of jasmonate signalling via automated and standardized transient expression assays in tobacco cells. Plant J. 44 (6), 1065-1076 (2005).
重印与许可
