本论文描述了一种多光谱光学传感器,该传感器能够有效检测人工接种了不同密度二斑叶螨种群的早季棉花所遭受的损害。
本文内容
摘要
摘要
本研究旨在评估一种基于地面的多光谱光学传感器作为遥感工具,用于检测二斑叶螨(TSSM)Tetranychus urticae Koch 在温室栽培棉花上引起的叶片损伤。TSSM 是一种多食性害虫,可危害多种大田和园艺作物。在美国中南部地区,该害虫常在棉花生长早期造成严重危害,而非传统认为的生长后期无害状态。评估杀螨剂的效果对于维持现有化学药剂及新研发防控药剂的有效性、防止抗药性的产生具有重要意义。对叶螨数量进行统计以评估药剂效果,过程繁琐且耗时。因此,通常采用主观的目视损伤评级方法来间接评估叶螨种群密度。归一化植被指数(NDVI)是描述植被冠层光谱反射特征、评估由叶螨侵染引起的植物胁迫与健康状况应用最广泛的统计指标。研究结果表明,多光谱光学传感器能够有效区分早季棉花上由T. urticae引起的不同程度的侵染。该遥感技术可替代目视评级方法,用于评估杀虫剂处理效果。
引言
二斑叶螨 二斑叶螨 (Koch)是多种大田和园艺作物上的多食性世界性害虫1,2它生活在植物底面的网状结构中,以群体形式存在。3,4在过去十年中,它已从美国中南部的晚季害虫演变为早季害虫。5TSSM 是第 5 个th 棉花最具破坏性的害虫,在2011年导致美国棉花产量损失约57,441包,减产0.167%6,7其短生命周期、高繁殖力、单倍体-二倍体性别决定机制,以及降解和解毒外源性物质的能力,共同加剧了对杀虫剂抗性的产生。8目前,杀螨剂仍然是抑制螨类的唯一可靠控制手段 T. urticae因此,昆虫学家需持续评估现有及新研发的杀螨剂的防治效果。
由于人工计数叶螨存在困难,通常采用主观评分等级来估计叶螨造成的危害程度。一些研究采用了二项式抽样法,仅对受害叶片的比例进行评分,而非统计每片叶子上的叶螨数量9。在评估危害时,使用了叶片红化指数等级作为评判标准,该等级从斑点状褪绿和轻微红化到植被大面积红化不等。二斑叶螨(T. urticae)在棉花上的空间分布模式符合成簇分布特征9。在棉株叶片上,叶螨的分布从稀疏到高度聚集均有存在,并且在田间条件下保持这种分布模式。由于其体型微小、具有活动能力且繁殖力强,加之成簇分布的特性,使得对二斑叶螨(TSSM)进行准确计数十分困难。因此,需要可靠的替代技术来评估叶螨密度,以便定量评价杀螨剂对二斑叶螨的防治效果。
本研究的目的是利用光学多光谱传感器,区分受不同密度的二斑叶螨危害的棉花植株。我们的目标是确定基于地面的光学传感器是否能够对健康棉花植株与受叶螨危害的植株进行分类和区分。
方案
1. 在菜豆上建立二斑叶螨种群
- 在温室中,将芸豆(Phaseolus vulgaris L.)种植于装有盆栽土的塑料托盘(56 x 28 x 5 cm3)中,如图1所示。
- 根据处理方式和重复编号,使用标记棒对托盘进行标识。
- 将温室温度设定并维持在90 °F,相对湿度保持在70%。
- 将芸豆植株培养至1-2片三出复叶期10,如图2所示。
- 从自然感染螨虫的棉花植株上采集受害叶片,以获取叶螨。
- 根据需要多次将带有叶螨的棉花叶片放置于芸豆植株上,直至托盘内所有植株均被大量二斑叶螨(TSSM)侵染。
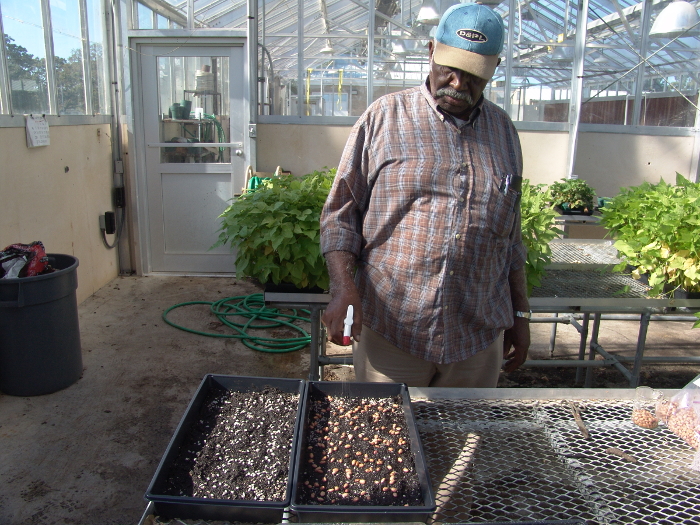
图1:在塑料托盘中种植斑豆。在温室中将斑豆种子种植于塑料托盘(56 x 28 x 5 cm3)中,并每天浇水。请点击此处查看此图的放大版本。

图 2:具三出复叶的菜豆。 子叶出土后形成的第一个真叶为单叶(单小叶叶)。随后长出的叶为具细锯齿叶尖的三出复叶。请点击此处查看该图的放大版本。
2. 将棉叶螨转移到棉花植株上
- 在温室中,按照步骤 1.3 的要求,将非转基因(Non-Bt)棉花植株种植于塑料托盘(56 x 28 x 5 cm)中,使其生长至具有 4-5 片真叶的阶段,如图 3所示。
- 将朱砂叶螨种群从芸豆转移至具有 4-5 片真叶的幼嫩棉花植株上。
- 对于轻度侵染的植株,转移 3 团朱砂叶螨。注意:在极高侵染水平下,朱砂叶螨会形成团块或球状结构11,并悬挂在叶片尖端,如图 4所示。
- 在带有朱砂叶螨团块的芸豆叶片尖端下方放置一个托盘。
- 用剪刀剪下带有朱砂叶螨团块的芸豆叶片尖端,使团块落入托盘中,如图 5和图 6所示。
- 将托盘倒扣在塑料托盘中生长的棉花植株上方,轻敲使朱砂叶螨团块落入棉花植株上,如图 7所示。注意:每个托盘约含有 100 株棉花植株。
- 将 3 团朱砂叶螨随机分布在棉花植株上。
- 对于中度侵染的植株,转移 20 团朱砂叶螨。
- 在带有朱砂叶螨团块的芸豆叶片尖端下方放置一个托盘。
- 用剪刀剪下芸豆叶片尖端,使其落入托盘中。
- 在托盘中收集 20 团朱砂叶螨。
- 将托盘倒扣在棉花植株上方,轻敲使朱砂叶螨团块落入约 100 株在温室中培养的棉花植株上。
- 对于重度侵染的植株,转移 40 团朱砂叶螨。
- 在带有朱砂叶螨团块的芸豆叶片尖端下方放置一个托盘。
- 用剪刀剪下芸豆叶片尖端,使其落入托盘中。
- 在托盘中收集 40 团朱砂叶螨。
- 将托盘倒扣在棉花植株上方,轻敲使朱砂叶螨团块落入约 100 株棉花植株上,并将其随机分散。
- 对于轻度侵染的植株,转移 3 团朱砂叶螨。注意:在极高侵染水平下,朱砂叶螨会形成团块或球状结构11,并悬挂在叶片尖端,如图 4所示。

图3. 处于4-5片真叶期的棉花植株。 子叶从土壤中伸出,呈叶状结构,相对着生于幼苗茎上。顶端分生组织从子叶间伸出,并形成第一片真叶。 请点击此处查看该图的放大版本。

图 4. 二斑叶螨群体悬挂在三叶菜豆叶片上。 二斑叶螨以群体形式生活,当种群密度达到较高水平时,会形成团块或棉絮状结构,并聚集在叶片顶端以便扩散。 请点击此处查看该图的放大版本。
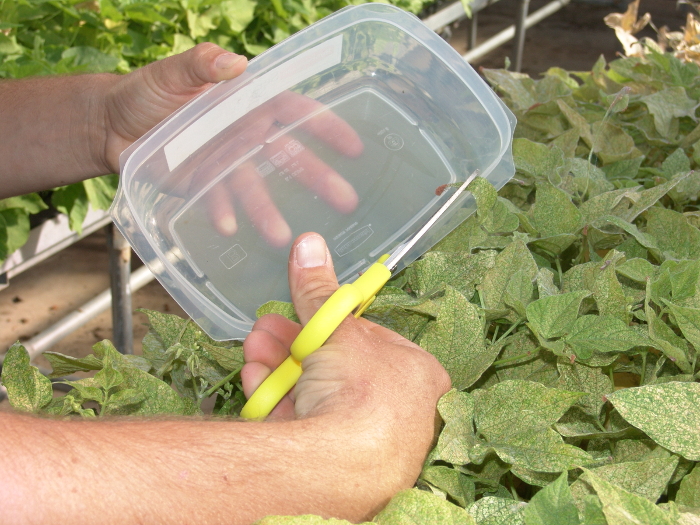
图 5. 使用剪刀剪取含有二斑叶螨群体的菜豆叶片尖端。 用剪刀剪下带有二斑叶螨群体的三出复叶菜豆叶片尖端,用于接种棉花植株。请点击此处查看该图的放大版本。
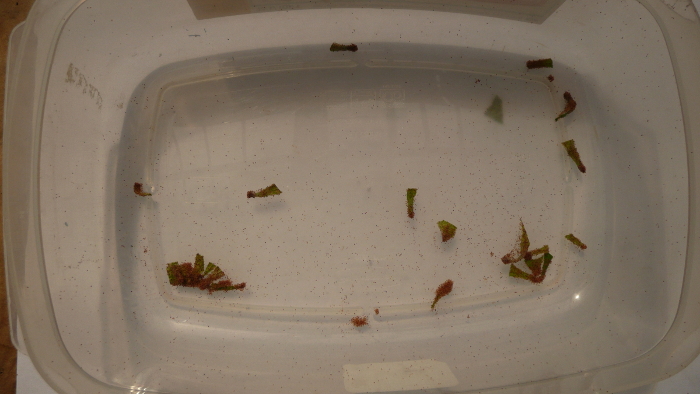
图6. 放置于培养皿内的菜豆叶片尖端上的二斑叶螨群体。 当在试验植株上发现足够数量带有二斑叶螨(TSSM)的三小叶菜豆叶片尖端时,将其取下并放入培养皿中。这些样本用于建立轻度、中度和重度三种处理组,分别接种3、20和40个二斑叶螨群体。请点击此处查看该图的放大版本。
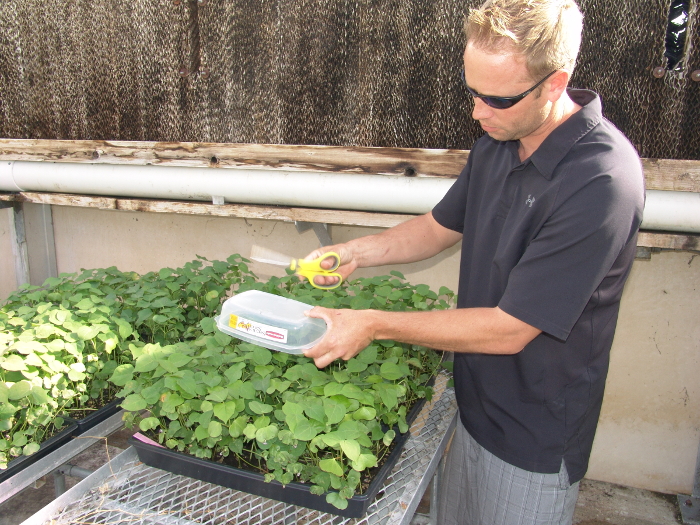
图7. 将托盘倒置。 将含有三叶菜豆叶尖和TSSM的托盘倒置在棉花冠层上,以使测试植物染螨。 请点击此处查看该图的放大版本。
3. 使用多光谱光学传感器扫描受二斑叶螨侵染的棉花植株
- 如图8所示,将光学传感器水平安装在温室框架上,距地面约7英尺处。设置扫描仪与植物冠层之间的距离为36英寸。使用木工水平仪确保传感器处于水平状态。
- 将未受虫害的棉株托盘放置在带轮手推车上。
- 打开传感器开关,缓慢推动手推车经过传感器下方,直至托盘完全通过传感器头部(如图8所示)。关闭开关,将手推车撤回。
- 重复步骤3.3三次,共完成3次重复。
- 对所有棉株托盘重复上述操作。
- 在处理后第1、5、6、7、9、10、12、13和14天(DAT)重复扫描。扫描获得归一化差异植被指数(NDVI)值12。将NDVI值传输并存储至掌上电脑,随后可将其以文本格式下载到计算机中。
注意:NDVI通过以下公式计算:NDVI = (NIR - RED)/(NIR + RED),其中RED和NIR分别为660 nm和770 nm波长处红光和近红外光谱的光谱反射率值(0-255)。
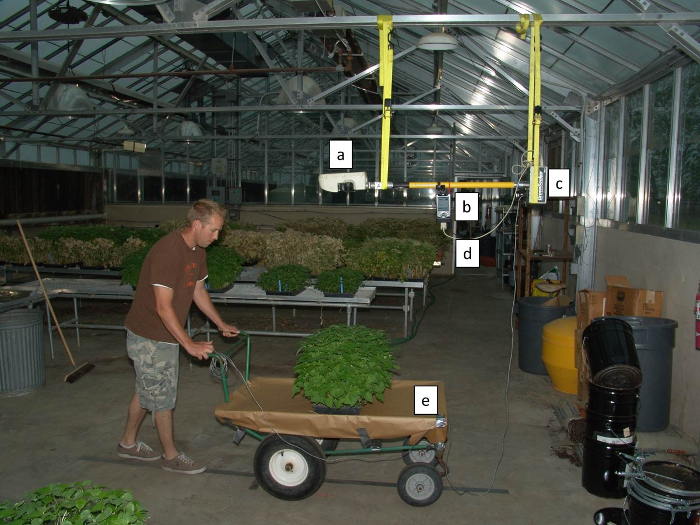
图8. 一种多光谱光学传感器,用于定量测量不同二斑叶螨(TSSM)密度侵染下棉花植株的健康状况。 装有测试植株的带轮推车在传感器探头下方缓慢移动,以获取光谱反射率数值。a 为传感器探头;b 为掌上电脑;c 为电池仓及输入/输出端口;d 为RS-232串行数据电缆;e 为提供均匀背景的卡纸。请点击此处查看该图的放大版本。
4. 数据分析
- 使用 Proc Means 过程13获取最大 NDVI 值。以第 0 天作为参考值,计算每次观测日 NDVI 值的降低百分比。使用重复测量 PROC GLM 过程13分析数据。
注意:均值在 P = 0.05 水平下采用邓肯多范围检验(Duncan's Multiple Range Test)进行分离。具有相同小写字母的均值之间无显著差异。 - 按图 9所示方式对数据进行图形化展示14。
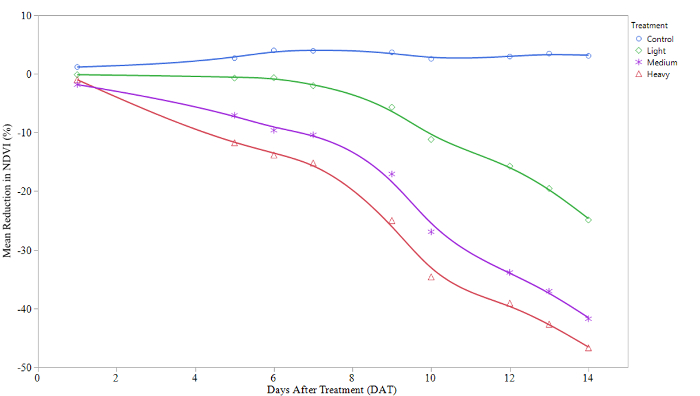
图9. 相对于处理后天数的NDVI百分比降低或变化。 使用JMP软件以图形方式展示NDVI百分比变化与采样天数(DAT)之间的函数关系。请点击此处查看该图的放大版本。
结果
传感器发射红光和红外光,这些光随后被植物冠层反射回来。反射光作为电磁波谱中可见光和近红外波段的定量测量指标,并以NDVI(归一化差异植被指数)读数的形式进行数值记录。NDVI值的范围为0至0.99。NDVI读数越高,表明植物冠层越健康。健康的植被吸收可见光并反射近红外光,而不健康的植被则反射更多的可见光和更少的近红外光。NDVI可作为光合作用活性的替代指标,该光谱特性与光合有效辐射具有高度相关性15,16,17,18。极低的NDVI值(0.1及以下)对应于岩石或沙地等荒芜区域,中等值(0.2至0.3)代表灌木和草原,而高值(0.6至0.8)则指示温带和热带植被。反射率测量是在白天光照条件下,于光谱的红光和近红外区域获取的。
NDVI 通过以下公式计算:NDVI = (NIR - RED)/(NIR + RED),其中 RED 和 NIR 分别代表在 660 nm 和 770 nm 处红光和近红外光谱范围内的光谱反射率值(0-255)。传感器每 100 毫秒记录一次反射率值。在分析中,采用传感器每次获取的 NDVI 值数组中的最大 NDVI 读数,以尽量减少背景反射的影响,并提供稳定可重复的数值结果。
方差分析结果显示,与未处理对照相比,轻度、中度和重度受害的棉花植株在NDVI降低百分比上均存在显著差异(F = 436.4;P <0.0001;df = 3, 32)。在试验期间,描述植株活力的NDVI值在不同观测日期之间也表现出显著差异(F = 1398.2;P <0.0001;df = 8, 256)。此外,NDVI值的降低百分比在观测期间(DAT)与处理措施呈负相关,但偶尔偏离此趋势,并与DAT存在显著交互作用(F = 201.5;P <0.0001;df = 24, 256)。多变量方差分析(MANOVA)中关于DAT无效应的检验标准同样显著(Wilk's λ = 0.00913;F = 339.0;P <0.0001;df = 8, 25)。类似地,DAT与处理之间的交互作用也达到显著水平(Wilk's λ = 0.00101;F = 29.8;P <0.0001;df = 24, 73)。
图9展示了在观察期间通过NDVI值反映的植物活力百分比变化。NDVI值的正向变化表明植物健康生长,而负向变化则表明自首次测量(即 第0天)以来植物活力下降。未受虫害的对照组植物在整个研究过程中表现出持续的营养生长,而受二斑叶螨(TSSM)侵害的植物则随时间推移出现健康状况恶化。表1中所示处理组的均值分离分析显示,在第5天之前,各处理组(轻度、中度和重度)与对照组之间的NDVI值降低百分比无显著差异;但从第5天起,各虫害等级组与对照组之间出现显著偏离,并在此后持续保持极显著差异。该数据表明,光学传感器可有效替代费时费力的人工取样方法,用于评估杀螨剂在棉花上的防治效果。
| 处理后天数(DAT) | |||||||||
| 侵染程度 | 1 | 5 | 6 | 7 | 9 | 10 | 12 | 13 | 14 |
| 对照 | 1.18 ±0.33a | 2.70 ±0.40a | 4.0 ±0.36a | 3.94 ±0.37a | 3.68 ±0.53a | 2.57 ±0.42a | 2.96 ±0.47a | 3.48 ±0.38a | 3.08 ±0.22a |
| 轻度 | -0.13 ±0.13b | -0.71 ±0.29b | -0.65 ±0.28b | -2.02 ±0.47b | -5.68 ±0.72b | -11.17 ±0.94b | -15.73 ±1.76b | -19.54 ±1.68b | -24.9 ±1.90b |
| 中度 | -1.83 ±0.42c | -7.06 ±0.63c | -9.61 ±0.53c | -10.39 ±0.57c | -17.06 ±0.80c | -26.92 ±0.72c | -33.84 ±0.96c | -37.05 ±1.14c | -41.74 ±0.73c |
| 重度 | -0.97 ±0.58bc | -11.76 ±0.29d | -13.83 ±0.86d | -15.20 ±0.63d | -25.0 ±1.0d | -34.63 ±0.54d | -39.07 ±0.94d | -42.68 ±0.62d | -46.71 ±0.63 |
表1:棉花植株被不同数量的二斑叶螨群落侵染后,最大归一化植被指数(Max NDVI)的降低百分比。 在温室中塑料托盘内种植的棉花植株被接种三种不同密度的蜘蛛螨。轻度(Light)处理组每托盘接种3团或簇二斑叶螨,中度(Medium)处理组每托盘接种20团,重度(Heavy)处理组每托盘接种40团。根据邓肯多重极差检验(Duncan's Multiple Range Test,P = 0.05)将处理均值与对照组进行分离。均值后标有相同小写字母者在5%概率水平上无显著差异。
讨论
传统上,田间杀虫剂药效试验包括施用不同剂量的药剂处理,并与未处理对照进行比较。通过评估对二斑叶螨(TSSM)幼螨和成螨具有不同毒性的杀螨剂,以确定化学处理是否能够减轻其造成的危害。采集二斑叶螨样本并带回实验室,在显微镜下进行检查,统计并记录二斑叶螨的不同发育阶段。为准确评估各处理组的危害程度,并以统计学上可接受的精度加以区分,必须采集足够数量的寄主植物样本。所需样本数量取决于该生物的分布特征。二斑叶螨高度聚集的分布模式导致不同取样区域之间存在较大变异,因此必须采集大量植株样本,以确保种群数量估计的可重复性。然而,经费、人力、时间以及统计精度等因素均会影响取样技术的选择。研究人员应优化配置现有资源,在保证最高精度的前提下,以最低成本完成取样工作。
昆虫学家通常不通过目视计数二斑叶螨(TSSM)的各个发育阶段,而是根据从无损害到不同程度损害的分级标准来评估受害情况。例如,一些研究人员提出了二项式抽样法,该方法仅记录受侵染叶片的比例,而非每片叶子上的叶螨数量9,19。另有研究者基于叶片红化指数等级来估算二斑叶螨对棉花造成的损害,该指数等级从斑点状褪绿和轻微红化直至植株冠层大面积红化不等19。这些方法具有主观性,依赖于个人对损害程度的判断,因而带有经验性和偏倚。为了能够以统计学精度评估并区分不同处理之间的差异,亟需一种更为可靠且定量的二斑叶螨损害评估方法。
基于地面的多光谱光学传感器似乎是一种改进的采样工具,可定量测定二斑叶螨(TSSM)造成的损害,并比许多研究人员采用的目视损伤评分系统更精确地区分不同处理。然而,有研究人员报告指出,与数据量较少且仅包含两个波长的多光谱遥感相比,数据密集型的高光谱遥感提供了大量光谱特征,可用于识别和检测作物胁迫及冠层特性20,21。Reisig 和 Godfrey 使用高光谱光谱仪发现,近红外反射波长≈850 nm 是区分节肢动物侵害与未受侵害棉花的有用光谱指标22。在本研究中,我们证明了仅使用两个光谱波段(近红外值≈770 nm)的多光谱反射率值即可识别并表征受不同密度 TSSM 侵害的棉花植株。此外,我们此前已报道,多光谱光学传感器不仅能有效区分受 TSSM 密度差异显著的棉花植株,还表明在温室条件下,施用标签推荐最低剂量一半的螺甲螨酯(spiromesifen)比阿维菌素(abamectin)在控制棉花苗期 TSSM 方面更为有效23。
多光谱光学传感器可安装在移动式研究平台上,能够从植被冠层的处理区域获取反射率数值,且无需依赖人为主观判断。因此,可大幅减少人力投入,高效获得杀螨效果数据。NDVI数据可轻松上传至计算机,并利用商业统计软件进行分析。此外,可在移动平台上加装GPS接收器以采集GPS坐标,进而生成田间损害分布图。通过采集植物冠层的多光谱反射特征,多光谱光学传感器为识别和量化植物胁迫提供了一种快速且成本效益高的方法。与传统田间巡查相比,该方法可在更短时间内覆盖更大面积,且对植物冠层具有更高的空间分辨率。需要特别注意的是,美国不同地区棉花上二斑叶螨(TSSM)的损害阈值存在差异。例如,在加利福尼亚等干旱环境中,TSSM造成的损害通常高于降雨频繁、湿度较高的美国中南部地区24。因此,由TSSM损害导致的产量损失及其相应的损害阈值也会有所不同。然而,来自密西西比州、阿肯色州和田纳西州的报告表明,棉花上TSSM的防治阈值通常出现在30%至50%的植株被侵染且种群数量持续上升时5。此外,田间种植的植物常面临多种胁迫因素,包括水分胁迫以及节肢动物植食性害虫的取食,这些因素之间的相互作用可能显著降低植物生产力,并可能影响损害阈值的确定。TSSM可降低棉花的气孔导度、光合作用速率和蒸腾速率25。温室中生长的植物会受到紫外线(UV)辐射的影响,这会显著改变气孔功能、光合作用及冠层形态26,27,并可能对植物胁迫产生叠加效应。然而,TSSM可通过栖息于植物冠层下表面、受阳光辐射遮蔽的微生境来规避UV辐射28,29,30,从而在其内生存。
光学传感器距离目标冠层的高度以及传感器相对于目标的方向是显著影响多光谱光学传感器获取的反射率值的重要因素31。例如,当移动式科研平台穿过行播作物田块(如棉花冠层尚未闭合时),传感器的测量结果可能因其方向与行向平行或垂直而产生差异。此外,土壤及其他背景物质可能对传感器读数产生较大影响,尤其是在传感器方向垂直于行向时。为了获得传感器的最大响应,传感器探头应正对并直接位于作物行的上方,且与行向保持一致。尽管将光束方向垂直于行向可能更容易接收到背景土壤的反射信号,但在棉花冠层已闭合、植被茂密的情况下,这种设置可能是可接受的。此外,操作人员应遵循制造商关于工作高度范围(81–122 cm)的建议,并将传感器探头与目标行向对齐,以获得最大信号响应。使用前应对传感器电池进行充电,或在使用过程中保持连接电源,以避免出现故障。电池电量过低可能导致读数错误。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 Chris Parker 每天对植物进行扫描,以及 Curtis Hubbard 在温室中对植物的精心养护。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| GreenSeeker | 天宝农业部 科罗拉多州韦斯特敏斯特 | Model 505 | 红光NDVI传感器 |
| 菜豆 | Producer's Co-op.,布赖恩,德克萨斯州 | 不适用 | 自由选择项目 |
| Deltapine 棉花种子 | Brazos Bottom Crop Care,德克萨斯州卡德威尔,77836 | 不适用 | 436 RR;非Bt &和抗农达棉种 |
| 塑料托盘 | BWI,舒伦贝格,德克萨斯州 | FG1020NL7 | 56 cm × 28 cm |
| 标记棒 | Gempler's,Janesville,WI 53547 | 产品编号 # 151276 | 耐用型钉状花盆标记牌 |
| 4轮园艺手推车 | Farm Tek,美国艾奥瓦州戴尔斯维尔,邮编52040 | 产品编号 # 108676 | 61 厘米 × 122 厘米 |
参考文献
- Hoy, M. A. Agricultural acarology: Introduction to integrated mite management. 7, CRC Press. (2011).
- Jeppson, L. R., Keifer, H. H., Baker, E. W. Mites injurious to economic plants. , Univ of California Press. (1975).
- Brandenburg, R., Kennedy, G. Ecological and agricultural considerations in the management of twospotted spider mite (Tetranychus urticae Koch). Agric. Zool. Rev. 2, 185-236 (1987).
- Saito, Y. The concept of "life types" in Tetranychinae. An attempt to classify the spinning behaviour of Tetranychinae. Acarologia. 24 (4), 377-391 (1983).
- Gore, J., et al. Impact of two-spotted spider mite (Acari: Tetranychidae) infestation timing on cotton yields. Journal of Cotton Science. 17, 34-39 (2013).
- Adamczyk, J. J., Lorenz, G. M. Beltwide Cotton Conference. , National Cotton Council. Memphis, TN. 981-1000 (2016).
- Williams, M. R. Beltwide Cotton Conference. , National Cotton Council. Memphis, TN. 1013-1057 (2016).
- Van Leeuwen, T., Vontas, J., Tsagkarakou, A., Dermauw, W., Tirry, L. Acaricide resistance mechanisms in the two-spotted spider mite, Tetranychus urticae and other important Acari: A review. Insect Biochem Mol Biol. 40 (8), 563-572 (2010).
- Wilson, L., Morton, R. Seasonal abundance and distribution of Tetranychus urticae (Acari: Tetranychidae), the two spotted spider mite, on cotton in Australia and implications for management. Bull Entomol Res. 83 (02), 291-303 (1993).
- Fernandez, F., Gepts, P., Lopez, M. Stage of development of the common bean plant. Communication Information Support Unit edn. , CIAT. 32(1986).
- Clotuche, G., et al. The formation of collective silk balls in the spider mite Tetranychus urticae Koch. PLoS. ONE. 6 (4), 1804-1807 (2011).
- Rouse, J. W., Haas, R., Schell, J., Deering, D. Monitoring vegetation systems in the Great Plains with ERTS. NASA special publication. 1 (SP-351), 309-317 (1974).
- SAS v.9.4. , SAS Institute Inc. Cary, NC. (2012).
- JMP v.11. , SAS Institute Inc. Cary, NC. (2013).
- Asrar, G., Fuchs, M., Kanemasu, E., Hatfield, J. Estimating absorbed photosynthetic radiation and leaf area index from spectral reflectance in wheat. Agron J. 76 (2), 300-306 (1984).
- Myneni, R. B., Hall, F. G. The interpretation of spectral vegetation indexes. Geoscience and Remote Sensing, IEEE Transactions on. 33 (2), 481-486 (1995).
- Sellers, P. J. Canopy reflectance, photosynthesis and transpiration. Int J Remote Sens. 6 (8), 1335-1372 (1985).
- Tucker, C. J., et al. Higher northern latitude normalized difference vegetation index and growing season trends from 1982 to 1999. Int. J. Biometeorol. 45 (4), 184-190 (2001).
- Wilson, L., et al. Within-plant distribution of spider mites (Acari: Tetranychidae) on cotton: a developing implementable monitoring program. Environ Entomol. 12 (1), 128-134 (1983).
- Fitzgerald, G. J., Maas, S. J., Detar, W. R. Spider mite detection and canopy component mapping in cotton using hyperspectral imagery and spectral mixture analysis. Precision Agriculture. 5 (3), 275-289 (2004).
- Herrmann, I., et al. Spectral monitoring of two-spotted spider mite damage to pepper leaves. Remote Sensing Letters. 3 (4), 277-283 (2012).
- Reisig, D., Godfrey, L. Spectral response of cotton aphid-(Homoptera: Aphididae) and spider mite-(Acari: Tetranychidae) infested cotton: Controlled studies. Environ Entomol. 36 (6), 1466-1474 (2007).
- Martin, D. E., Latheef, M. A., López, J. D. Evaluation of selected acaricides against twospotted spider mite (Acari: Tetranychidae) on greenhouse cotton using multispectral data. Exp Appl Acarol. 66 (2), 227-245 (2015).
- Boudreaux, H. B. The effect of relative humidity on egg-laying, hatching, and survival in various spider mites. J Insect Physiol. 2 (1), 65-72 (1958).
- Bondada, B., Oosterhuis, D., Tugwell, N., Kim, K. Physiological and cytological studies of two spotted spider mite, Tetranychus urticae K., injury in cotton. Southwest Entomol. 20 (2), 171-180 (1995).
- Teramura, A. H. Effects of ultraviolet B radiation on the growth and yield of crop plants. Physiol Plant. 58 (3), 415-427 (1983).
- Teramura, A. H., Sullivan, J. H. Effects of UV-B radiation on photosynthesis and growth of terrestrial plants. Photosynthesis Res. 39 (3), 463-473 (1994).
- Ohtsuka, K. Deleterious effects of UV-B radiation on herbivorous spider mites: they can avoid it by remaining on lower leaf surfaces. Environ Entomol. 38 (3), 920-929 (2009).
- Sakai, Y., Osakabe, M. Spectrum-specific damage and solar ultraviolet radiation avoidance in the two-spotted spider mite. Photochem Photobiol. 86 (4), 925-932 (2010).
- Suzuki, T., Watanabe, M., Takeda, M. UV tolerance in the two-spotted spider mite, Tetranychus urticae. J Insect Physiol. 55 (7), 649-654 (2009).
- Martin, D. E., López, J. D., Lan, Y. Laboratory evaluation of the GreenSeeker handheld optical sensor to variations in orientation and height above canopy. International Journal of Agricultural and Biological Engineering. 5 (1), 43-47 (2012).
重印与许可
