本文介绍一种基于辣根过氧化物酶标记的二抗和酪胺信号放大技术的高灵敏度免疫化学方法,用于绘制5mC氧化衍生物的空间分布图谱。
本文内容
摘要
摘要
脊椎动物基因组中的胞嘧啶碱基甲基化(5-甲基胞嘧啶,5mC)通常与转录沉默相关。5-羟甲基胞嘧啶(5hmC)、5-甲酰基胞嘧啶(5fC)和5-羧基胞嘧啶(5caC)是近年来发现的由5mC经酶促氧化产生的修饰胞嘧啶碱基,其生物学功能仍相对不明确。已有多种方法,从生化技术到基于抗体的技术,被用于研究这些修饰在不同生物系统中的基因组分布和整体含量。尽管其中一些方法可用于定量评估这些5mC的修饰形式,但大多数方法无法提供这些DNA修饰在不同细胞类型中分布的空间信息,而此类信息对于正确理解其功能作用至关重要。本文介绍一种高灵敏度的免疫化学检测方法,用于检测胞嘧啶的修饰形式。该方法允许这些表观遗传标记与蛋白质谱系标记共检测,并可用于研究它们的核内定位,从而有助于揭示其在不同实验背景下的潜在生物学功能。
引言
DNA中胞嘧啶碱基的甲基化(5mC)是脊椎动物基因组中一种主要的表观遗传标记,与转录沉默相关1。5mC由DNA甲基转移酶(DNA methyltransferases)建立并维持2-5,已被证实参与多种生物学过程,包括基因组印记、X染色体失活、细胞分化和发育3, 6。因此,5mC基因组分布模式的异常与多种疾病相关7, 8-11。尽管在理解5mC在发育和疾病中的作用方面已取得进展,但在发育组织和成体组织中这一修饰如何被清除仍 largely 未知。近年来提出了几种可能的DNA去甲基化机制,包括主动去甲基化和被动去甲基化机制12, 13, 14, 15。在真核生物DNA中发现ten-eleven translocation酶(tet1/2/3)介导5mC逐步氧化的产物,如5-羟甲基胞嘧啶(5hmC)、5-甲酰基胞嘧啶(5fC)和5-羧基胞嘧啶(5caC)16, 17, 18, 19,引发了关于这些产物是否作为DNA去甲基化过程的中间体,或本身即为稳定的表观遗传标记的推测13。已有研究表明,碱基切除修复通路中的胸腺嘧啶-DNA糖基化酶(TDG)能够结合并从DNA中切除5fC和5caC19, 20,这提示这些5mC的修饰衍生物可能参与主动DNA去甲基化过程。最近的研究证据显示,5fC/5caC可调节RNA聚合酶II的延伸速率,表明这些修饰可能参与转录调控29。鉴于5mC氧化形式潜在的生物学重要性,已采用多种生物化学及基于抗体的技术来研究其在基因组中的分布和整体含量16, 19-24。
鉴于大多数脊椎动物器官由不同类型的细胞组成,且修饰的胞嘧啶碱基在组织和细胞类型中具有特异性分布16-18, 20, 23, 25-27,确定氧化型5mC衍生物在不同组织中的空间分布成为揭示其生物学功能所必需的重要实验任务。大多数生化及基于抗体的方法无法提供有关5mC修饰形式在不同组织和细胞类型中分布的空间信息。相比之下,基于免疫化学的技术可快速评估5mC28及其氧化衍生物20的空间分布和核内定位。然而,据报道,小鼠基因组中5fC(每106个胞嘧啶中约20个)和5caC(每106个胞嘧啶中约3个)的丰度极低18,这对常规免疫化学技术构成了重大挑战。
本文介绍一种高灵敏度的免疫化学方法,可对哺乳动物脑组织中胞嘧啶的氧化形式进行稳健且快速的检测。该方法通过使用辣根过氧化物酶标记的二抗并结合信号放大步骤,克服了检测极低含量5fC和5caC的技术难题。此外,该技术还可用于同时检测胞嘧啶的修饰形式与谱系特异性标志物,从而有效补充其他方法,有助于阐明这些表观遗传标记的生物学功能。
方案
所有涉及动物的实验操作均按照诺丁汉大学伦理审查委员会的规定进行。
1. 选择适用于免疫染色的合适组织制备方法
- 按照先前所述方法制备野生型CD1小鼠胚胎和成年脑组织的石蜡包埋切片25。免疫染色方法可采用经4%甲醛(FA)或4%多聚甲醛(PFA)固定的脑组织切片25。
注意: 使用石蜡包埋组织切片时,需在抗体标记前进行脱蜡处理。由于本方案中用于DNA变性的2–4 M盐酸(HCl)处理步骤与大多数抗原修复策略不兼容,因此我们建议采用冷冻切片或切片机切片,以实现5mC氧化衍生物与蛋白质标志物的共检测。
2. 脱去石蜡包埋组织切片中的石蜡
- 在运行的 II 级生物安全柜中,将石蜡包埋的组织切片放入盛有二甲苯的考普林瓶中清洗,室温下每次 10 分钟,共清洗两次。
注意:必须使用新鲜的二甲苯,因为石蜡去除不完全可能导致染色结果不一致。 - 脱蜡后,在室温下依次用 95%、75% 和 50% 乙醇各清洗 10 分钟,快速对组织切片进行水化。
3. 冷冻切片和切片机切片的固定与通透处理
- 将复水的组织切片置于冰上预冷的4% PFA或4% FA中,在室温下固定15分钟。
- 用PBS(磷酸盐缓冲盐水)在室温下洗涤切片5分钟,以去除多余的固定液。
- 将切片放入盛有PBX(含0.5% Triton X-100的PBS)的考普林瓶中,在室温下透化处理30分钟。随后用PBT(含0.01% Tween 20的PBS)短暂洗涤切片,以去除多余的PBX。
4. Oxi-5mC 衍生物的免疫染色
- 将已通透的切片置于 2 N HCl 中,在室温下孵育 60 分钟,以实现 DNA 的脱嘌呤。
注意:尽管更高浓度的 HCl(例如,4 N)可更有效地使 DNA 变性,但其与 oxi-mCs 和 DAPI 的共检测不兼容。 - 将切片置于 10 mM Tris-HCl(pH 8.5)中,在室温下孵育 30 分钟以中和 HCl。或者,在 PBS 中洗涤切片三次,每次 5 分钟。随后在 PBT 中孵育切片 5 分钟,室温下进行。
- 小心移除组织切片周围区域的液体,避免在任何步骤中使组织切片完全干燥,可通过轻轻晃动载玻片实现。使用疏水屏障笔在不接触切片的情况下围绕切片画圈。
注意:使用疏水屏障笔可减少染色所需抗体的体积,并允许在同一张载玻片上用不同抗体对多个切片进行染色。 - 在湿盒中,于室温下用 100 µl 封闭液(含 10% 牛血清白蛋白的 PBS)孵育切片 1 小时。
注意:省略此步骤不会影响对修饰胞嘧啶碱基染色的效率。 - 在湿盒中,于室温下用 100 µl 封闭液稀释的一抗混合液(小鼠单克隆抗-5hmC 抗体按 1:5,000 稀释,兔多克隆抗-5caC 抗体按 1:1,000 稀释)孵育组织切片 1 小时。如有需要,也可在 4 °C 下过夜孵育。
注意:未加一抗处理的切片可作为染色程序的合适阴性对照。富含 5caC、5fC 和 5hmC 的妊娠后 12.5 天小鼠胚胎脑切片 20 可作为阳性对照。 - 在室温下,将切片置于盛有 PBT 的 Coplin 染色缸中,每次 5 分钟,共洗涤三次,以去除多余的一抗。
注意:增加洗涤液体积可降低背景染色。 - 去除多余的 PBT,如有必要,由于 PBT 含有去垢剂,可能削弱疏水屏障,需再次用疏水屏障笔围绕切片画圈。
- 在封闭液中,将辣根过氧化物酶标记的山羊抗兔二抗按 1:400 稀释,将 555 标记的驴抗小鼠二抗按 1:400 稀释。
- 在湿盒中,于室温下用 100 µl 来自 步骤 4.9 的二抗混合液孵育组织切片 1 小时。
- 在室温下,将组织切片置于盛有 PBT 的 Coplin 染色缸中,每次 5 分钟,共洗涤三次。
- 将组织切片置于 100 µl 酪胺工作液(在酪胺信号放大缓冲液中按 1:200 稀释)中,在室温下孵育 2 分钟。
- 立即将载玻片在 PBT 中洗涤三次,每次 5 分钟,以去除多余的酪胺溶液。
- 小心去除多余的 PBT,并立即在切片上滴加一滴封片介质(见材料清单),覆盖切片。
- 轻轻将盖玻片置于组织切片上,并立即用指甲油密封盖玻片边缘。
- 将组织切片在 4 °C 下保存数小时后再进行显微镜观察。使用荧光显微镜在 405、488 和/或 555 nm 波长下观察(10–40X 放大倍数)。
结果
为了确定5hmC在脑组织切片中的分布情况,我们对该表观遗传修饰与终末分化神经元标志物NeuN进行了共检测,使用了 commercially available anti-5hmC 抗体,该抗体可特异性结合5hmC修饰,而不与其他形式的修饰胞嘧啶发生交叉反应20, 25。对成年脑组织中5hmC和5caC分布的免疫组织化学分析显示,强烈的5hmC染色信号与NeuN阳性细胞共定位,而NeuN阴性的胶质细胞中基因组5hmC水平较低(图1)20。
我们最近的研究表明,Tet依赖的5mC氧化在神经干细胞(NSCs)谱系特化过程中具有活性20。尽管在NSCs中通过免疫化学方法无法检测到5fC和5caC,但在NSCs向神经元和胶质细胞谱系分化的早期阶段,这两种修饰却表现出明显的免疫染色信号。这两种修饰的积累是瞬时的,且与早期神经元和胶质细胞分化标志物的出现同步20。为了确定5caC在分化中的NSCs中的分布情况,我们在诱导胶质分化3天后的NSCs固定培养物中,对该修饰与胶质细胞标志物GFAP进行了共染色分析。与NSCs或成熟星形胶质细胞(数据未显示)不同,我们在这些培养物中表达GFAP的相当大比例细胞中观察到强烈的5caC信号(图2)20。
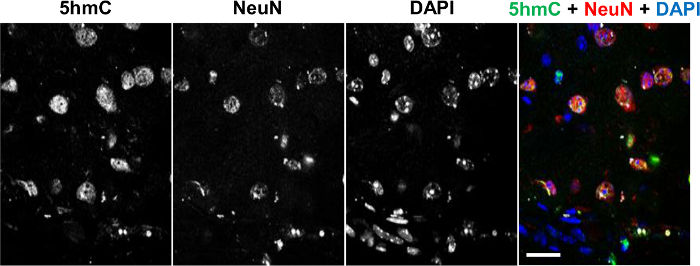
图1. 成年脑组织中5hmC(绿色)与NeuN(红色)的共免疫染色,DAPI(蓝色)复染。 分别显示各通道及合并图像。比例尺为25 µm。请点击此处查看该图的放大版本。
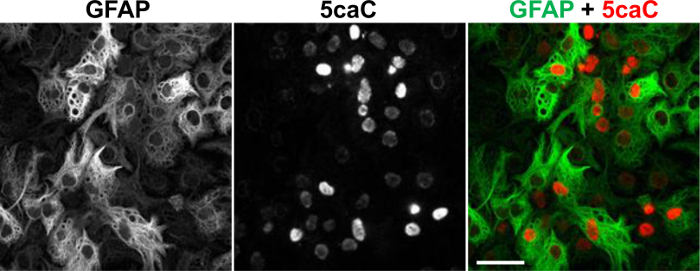
图 2. 神经干细胞培养在胶质分化第 3 天时 5caC 与 GFAP 的共免疫染色。 分别显示各单独通道及合并图像。比例尺为 20 µm。请点击此处查看该图的放大版本。
讨论
尽管某些组织中5mC氧化衍生物5fC和5caC的报道丰度较低,可能对标准免疫化学方案造成显著限制,但通过使用辣根过氧化物酶标记的二抗,仍可在固定组织和细胞中检测到这些胞嘧啶修饰(图2)。然而,每批次酪胺信号放大试剂盒的酪胺溶液孵育时间需通过实验优化,以确保信号强度与酪胺信号放大时间之间呈现线性关系,具体细节可参考Almeida 等 201226。此外,将洗涤步骤置于考普林瓶中进行,有助于高效去除多余的抗体,从而显著提高信号与背景的比值。在酪胺溶液孵育后,必须立即用PBT溶液洗涤以终止反应,从而降低背景染色。在整个操作过程中,必须严格避免切片发生任何程度的干燥。
通过在37 °C下进行脱嘌呤反应,可以提高DNA脱嘌呤的效率。虽然使用4 N HCl相较于2 N HCl能够增强5mC修饰形式的染色效果,但使用4 N HCl进行DNA脱嘌呤会阻碍与DAPI的共染色,因为DAPI仅与双链DNA发生相互作用。
尽管该技术在可检测的情况下能够对细胞碱基的修饰形式提供可靠的半定量评估,但无法用于评价5mC或其氧化衍生物的绝对水平。因此,我们建议采用其他互补且定量的方法16, 19-24。自从在哺乳动物基因组中发现5mC氧化衍生物以来,已开发出多种方法用于研究其生物学功能16, 19-24。尽管这些方法在确定5mC氧化衍生物的绝对水平方面具有重要价值,但无法提供有关其空间分布的信息20, 26。我们已成功应用此处所述的方法,在发育中和成年脑组织的不同细胞类型中绘制了5mC氧化衍生物的空间分布与定位图谱20
通过揭示其空间分布20,该技术对于理解5mC氧化衍生物在多种生物学背景下的生物学意义及其命运至关重要,这些背景包括细胞分化、发育和疾病,其中均可检测到5mC的这些修饰衍生物。此外,本文所述方法可通过评估不同孵育时间下酪胺与过氧化物酶反应的动力学(其与染色强度成正比),对不同组织中5mC氧化衍生物进行半定量评估26。
披露
作者声明无利益冲突。
致谢
感谢诺丁汉大学生命科学学院高级显微镜单元、英国医学研究理事会人类生殖科学单元(爱丁堡)组织学团队、布鲁塞尔自由大学神经科学研究所以及FNRS提供的帮助与支持。本研究由英国医学研究理事会(MRC)资助(项目编号 MR/L001047/1,授予 A.D.J.)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 柯普林瓶 | Cole-Parmer | UY-48585-30 | 玻璃材质 |
| 二甲苯 | 仅可在 II 级生物安全柜中使用 | ||
| 磷酸盐缓冲液(PBS) | Fisher Scientific | 12821680 | pH 7.5,使用前过滤 |
| 4% 多聚甲醛(PFA) | Sigma Aldrich | P6148 | 配制后可分装保存于 -20 °C,数月内稳定 |
| 4% 甲醛(FA) | Sigma Aldrich | F8775 | 配制后可分装保存于 -20 °C,数月内稳定 |
| 无水变性乙醇,组织学级 | Sigma Aldrich | 64-17-5 | 在 PBS 中配制成 95%、75%、50% |
| 含 0.01% Tween 20 的 PBS | Sigma Aldrich | P9416 | PBT |
| 含 0.5% Triton X-100 的 PBS | Sigma Aldrich | X100 | PBX |
| 2 N HCl | Sigma Aldrich | 71826 | 注意:剧毒 |
| 100 mM Tris-HCl | Promega | H5121 | 调节 pH 至 8.5 |
| 疏水屏障笔 | Abcam | ab2601 | 用于免疫组织化学 |
| 载玻片湿盒 | Scientific Device Laboratory | 197-BL | |
| 抗-5mC 小鼠抗体 | Diagenode | C15200081 | 单克隆一抗 |
| 抗-5hmC 抗体 | Active Motif | 39791 | 兔多克隆一抗 |
| 抗-5caC 抗体 | Active Motif | 61225 | 兔多克隆一抗 |
| 辣根过氧化物酶标记的抗兔二抗 | Dako | K1497 | |
| 555 标记的山羊抗小鼠抗体 | Molecular probes | A-11005 | 二抗 |
| 10% BSA | Sigma Aldrich | A9418 | 封闭液 |
| 22 × 32 mm 玻璃盖玻片 | BDH | 406/0188/24 | |
| 酪酰胺信号放大系统 | Perkin Elmer | NEL741001KT | 可使用其他荧光染料标记的二抗进行氧化-5mC 的共检测 |
| 含 DAPI 的封片剂 | Vector Labs | H-1200 | |
| 无色指甲油 | |||
| 鸡多克隆抗 GFAP 抗体 | Thermo Scientific | PA5-18598 | 1:400 稀释 |
| 抗 NeuN 小鼠单克隆抗体 | Merck milipore | MAB377B | 1:400 稀释 |
参考文献
- Bird, A. DNA methylation patterns and epigenetic memory. Genes Dev. 16, 6-21 (2002).
- Reik, W., Dean, W., Walter, J. Epigenetic reprogramming in mammalian development. Science. 293, 1089-1093 (2001).
- Jaenisch, R., Bird, A. Epigenetic regulation of gene expression: how the genome integrates intrinsic and environmental signals. Nat Genet. 33, 245-254 (2003).
- Li, E., Bestor, T. H., Jaenisch, R. Targeted mutation of the DNA methyltransferase gene results in embryonic lethality. Cell. 69 (6), 915-926 (1992).
- Okano, M., et al. DNA methyltransferases Dnmt3a and Dnmt3b are essential for de novo methylation and mammalian development. Cell. 99 (3), 247-257 (1999).
- Cedar, H., Bergman, Y. Programming of DNA methylation patterns. Annu Rev Biochem. 81, 97-117 (2012).
- Amir, R. E., et al. Rett syndrome is caused by mutations in X-linked MECP2, encoding methyl-CpG-binding protein 2. Nat Genet. 23, 185-188 (1999).
- Chouliaras, L., et al. Consistent decrease in global DNA methylation and hydroxymethylation in the hippocampus of Alzheimer's disease patients. Neurobiol Aging. 34, 2091-2099 (2013).
- Jowaed, A., et al. Methylation regulates alpha-synuclein expression and is decreased in Parkinson's disease patients' brains. J Neurosci. 30, 6355-6359 (2010).
- Reik, W., et al. Age at onset in Huntington's disease and methylation at D4S95. J Med Genet. 30, 185-188 (1993).
- Landgrave-Gòmez, J., Mercado-Gòmez, O., Guevara-Guzmán, R. Epigenetic mechanisms in neurological and neurodegenerative diseases. Front Cell Neurosci. 27, 9-58 (2015).
- Seisenberger, S., Peat, J. R., Hore, T. A., Santos, F., Dean, W., Reik, W. Reprogramming DNA methylation in the mammalian life cycle: building and breaking epigenetic barriers. Philos Trans R Soc Lond B Biol Sci. 368 (1609), (2013).
- Wu, H., Zhang, Y. Mechanisms and functions of Tet protein-mediated 5- methylcytosine oxidation. Genes Dev. 25, 2436-2452 (2011).
- Oswald, J., et al. Active demethylation of the paternal genome in the mouse zygote. Curr Biol. 10 (8), 475-478 (2000).
- Ooi, S. K., Bestor, T. H. The colorful history of active DNA demethylation. Cell. 133 (7), 1145-1148 (2008).
- Kriaucionis, S., Heintz, N. The nuclear DNA base 5-hydroxymethylcytosine is present in Purkinje neurons and the brain. Science. 324, 929-930 (2009).
- Tahiliani, M., et al. Conversion of 5-methylcytosine to 5-hydroxymethylcytosine in mammalian DNA by MLL partner TET1. Science. 324, 930-935 (2009).
- Ito, S., et al. Tet proteins can convert 5-methylcytosine to 5-formylcytosine and 5-carboxylcytosine. Science. 333, 1300-1303 (2011).
- He, Y. F., et al. Tet-mediated formation of 5-carboxylcytosine and its excision by TDG in mammalian DNA. Science. 333, 1303-1307 (2011).
- Wheldon, L. M., et al. Transient accumulation of 5-carboxylcytosine indicates involvement of active demethylation in lineage specification of neural stem cells. Cell Rep. 7, 1353-1361 (2014).
- Yu, M., et al. Base-resolution analysis of 5-hydroxymethylcytosine in the mammalian genome. Cell. 149, 1368-1380 (2012).
- Lu, X., et al. Chemical modification assisted bisulfite sequencing (CAB-Seq) for 5-carboxylcytosine detection in DNA. J Am Chem Soc. 26, 9315-9317 (2013).
- Globisch, D., et al. Tissue distribution of 5-hydroxymethylcytosine and search for active demethylation intermediates. PLoS One. 5, e15367(2010).
- Szwagierczak, A., et al. Sensitive enzymatic quantifi cation of 5- hydroxymethylcytosine in genomic DNA. Nucleic Acids Res. 38, e181(2010).
- Ruzov, A., et al. Lineage-specific distribution of high levels of genomic 5-hydroxymethylcytosine in mammalian development. Cell Res. 21, 1332-1334 (2011).
- Almeida, R. D., et al. Semi-quantitative immunohistochemical detection of 5-hydroxymethyl-cytosine reveals conservation of its tissue distribution between amphibians and mammals. Epigenetics. 7, 137-140 (2012).
- Lister, R., et al. Global epigenomic reconfiguration during mammalian brain development. Science. 341, 1237905(2013).
- Santos, F., Dean, W. Chapter 11, Using immunofluorescence to observe methylation changes in mammalian preimplantation embryos. Nuclear reprogramming methods and Protocols. , Humana Press. Totowa, NJ. 129-138 (2006).
- Wang, L., et al. Molecular basis for 5-carboxycytosine recognition by RNA polymerase II elongation complex. Nature. 523, 621-625 (2015).
重印与许可
