本文介绍了一种利用恒化器培养技术在特定条件下对微生物进行适应性实验室进化的实验方案,并讨论了进化菌株的基因组分析方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
使用恒化器进行微生物适应性实验室进化的操作步骤
* These authors contributed equally
本文内容
摘要
摘要
自然进化涉及遗传多样性,例如环境变化以及小种群之间的选择。适应性实验室进化(ALE)是指在受控条件和胁迫因素下,利用活体生物观察进化的实验情境;在此过程中,生物体被人为地迫使其发生进化改变。微生物在环境中会受到多种胁迫因素的影响,并能够调控某些应激诱导蛋白以提高其生存几率。自然界中自发发生的突变会引起微生物基因组的改变,从而影响其生存能力。长期暴露于恒化器培养条件下会促使自发突变的积累,并使适应性最强的菌株成为优势种群。与菌落转移和连续传代方法相比,恒化器培养导致更多的细胞分裂次数,因而产生更多样化的种群。尽管用于ALE的恒化器培养需要更复杂的培养装置,但一旦运行开始,其人工操作强度较低。对适应菌株进行比较基因组学和转录组学分析,可提供关于胁迫因素如何促进突变以克服胁迫的进化线索。本文的目标是在受控的实验室条件下实现微生物的加速进化。
引言
微生物能够存活并适应多种环境。在严重胁迫条件下,微生物可通过随机基因组突变获得有益的表型,并经过正向选择实现适应,这一过程称为“适应性进化”1-3。因此,微生物细胞可通过改变代谢网络或调控网络以实现最佳生长,从而完成适应。近年来出现的重要微生物趋势,例如超级细菌暴发以及强健微生物菌株的出现,均与胁迫条件下的适应性进化密切相关。在明确的实验室条件下,我们能够研究分子进化的机制,甚至控制微生物进化的方向,以满足多种应用需求。与多细胞生物不同,单细胞生物特别适合进行实验室适应性进化(ALE),原因如下:其再生速度快、可维持大规模种群,且易于建立并维持均一的环境。结合近年来DNA测序技术与高通量技术的进步,ALE使得研究人员能够直接观察导致系统性调控变化的基因组改变,同时也能观测突变动态以及种群多样性。通过对ALE菌株的分析,还可确定基因工程策略4,5。
恒化器培养是一种用于在发酵过程中获得稳态细胞并提高生产效率的方法6添加新鲜培养基,并在过程中收获培养液(后者包含培养基和生物量)。然而,长期连续培养会改变培养物的稳态生产率,并导致培养过程中自发突变的积累与选择图1a)。在各种选择压力(胁迫因子)下,突变的积累会增强。在长期连续培养的恒化器中逐步增加胁迫强度,可实现对抵抗特定胁迫因子(如温度、pH、渗透压、营养匮乏、氧化作用、有毒代谢产物等)的突变持续进行筛选。 等等。 从固体培养基转移菌落以及从液体培养基进行连续传代(重复批次培养)也可使研究人员获得进化后的微生物图1b 和 1c)。尽管恒化器培养需要较为复杂的方法,但其多样性库(重复次数和种群规模)高于通过菌落转移和连续传代技术所获得的水平。在恒化器培养(稳态)过程中,单个细胞所受到的稳定胁迫以及细胞状态变异性的降低,是适应性进化实验(ALE)相较于基于分批培养技术的其他优势。胁迫诱导的ALE Escherichia coli 本文介绍了在高琥珀酸盐条件下处理的实验方案。

图 1:实验室适应性进化的方法。(A)恒化器法;(B)连续传代法;(C)菌落传代法。上方图示说明了适应性实验室进化(ALE)各种方法的原理,下方图示展示了在 ALE 过程中细胞数量的增长情况。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 仪器设备准备
- 获取一个恒化器瓶(150–250 ml)或带有进液口和出液口的锥形瓶(250 ml)。用硅胶管连接各端口,以实现 10–100 ml/hr 的流速。可选地,使用通气口、排气口以及控温水循环的进水口和出水口。
- 获取一个适用于恒化器罐的装置,该装置可提供搅拌和温度控制功能(或使用旋转振荡培养箱)。
- 使用两台蠕动泵,分别用于输送新鲜培养基和收集培养物。
- 获取一个带有培养基出口和空气进口的储液罐(10–20 L)。
- 获取适用于稀释速率的硅胶管即内径 0.8 mm,流速范围 0.06–36 ml/min;L/S 13 管路。
2. 培养基的配制与灭菌
- 初始培养基
- 在恒化器瓶中,将0.3 g葡萄糖、0.08 g NH4Cl、0.05 g NaCl、0.75 g Na2HPO4·2H2O和0.3 g KH2PO4溶于90 ml蒸馏水(D.W.)中。
- 使用夹子将恒化器瓶及连接管路密封,但不要封闭通气口。
- 将恒化器瓶置于高压灭菌器中,在121 °C下灭菌15分钟。灭菌后,将恒化器瓶置于室温下保存。
- 将0.02 g MgSO4·7H2O、0.01 g CaCl2和0.1 mg硫胺素溶于10 ml D.W.中(溶液A)。
- 使用注射器和预先灭菌的注射器滤器(孔径0.45 µm)过滤溶液A。
- 将溶液A的滤液加入恒化器瓶中。
- 应激培养基
- 在储液瓶中,将30 g葡萄糖、8 g NH4Cl、5 g NaCl、75 g Na2HPO4·2H2O、30 g KH2PO4和300 g六水合琥珀酸二钠(Na2·succinate·6H2O;本实验所用的应激因子)溶于9.9 L D.W.中。
- 使用夹子将储液瓶及连接管路密封,但不要封闭通气口。
- 将储液瓶置于高压灭菌器中,在121 °C下灭菌15分钟。灭菌后,将储液瓶置于室温下保存。
- 将2 g MgSO4·7H2O、1 g CaCl2和10 mg硫胺素溶于100 ml D.W.中(溶液A)。
- 使用注射器和预先灭菌的注射器滤器(孔径0.45 µm)过滤溶液A。
- 将溶液A的滤液加入储液瓶中。
- 在无菌条件下,将已灭菌的硅胶管连接至储液瓶,并连接蠕动泵。
- 高应激培养基
- 参照第2.2节方法配制培养基,但提高应激因子浓度(即,在琥珀酸适应过程中提高3–5 g/L)。
注:本方案适用于可通过培养基施加的应激条件。若为温度、振荡或光照等物理应激因子,应相应设计培养方案。
- 参照第2.2节方法配制培养基,但提高应激因子浓度(即,在琥珀酸适应过程中提高3–5 g/L)。
3. 初次培养
- 将一株野生型 E. coli 单菌落接种至含有 4 ml 初始培养基的 15 ml 试管中。
- 将试管置于摇床培养箱中,于 37 °C、220 rpm 条件下培养 12 小时。
- 无菌操作将 1 ml 预培养液转移至恒化器培养瓶中。
- 将恒化器培养瓶在 37 °C 下培养 6 小时,同时提供通气(空气流速 50 ml/min)和搅拌(200 rpm)。
4. 应激适应
- 无菌条件下将泵的硅胶管末端连接到恒化器罐。
- 启动出口泵(10 ml/hr 或更高),并收集培养物。
注意:培养物应处于对数生长期,通常在初始培养后 4–8 小时。 - 检测出口管路中培养物的光密度(600 nm)。
- 启动进液泵(10 ml/hr,对应稀释速率为 0.1 hr-1)。
- 每 24 小时检测一次出口管路中培养物在 600 nm 处的光密度。
- 运行恒化器至少 96 小时(9.6 倍体积更换)。若光密度保持稳定,则更换含有高应激培养基的储液罐。若光密度低于 0.2,则停止进液泵 6 小时,重新启动进液泵后确认光密度恢复至 0.2 以上。
- 通过更换为含有更高应激物浓度的储液罐,逐步提高应激物浓度。
- 当适应性培养物达到某一关键节点时(例如,菌株适应了 100 g/L 丁二酸应激),取样并保存用于后续基因组分析。
- 样品保存时,将培养物样品(0.5 ml)与灭菌的 80% 甘油溶液(0.5 ml)混合,于 -80 °C 保存。
注意:若微生物在适应性进化(ALE)过程中获得了降解应激物的能力,则发酵罐中的应激物浓度将不同于新鲜储液罐中的浓度。
5. 耐受性菌株的单菌落分离
- 制备含有相同胁迫剂且培养基浓度相同的琼脂平板培养基(1.6% 琼脂)。
- 取恒化器流出液培养物(0.1 ml)涂布于平板,于 37 °C 培养 16 小时。
- 用无菌牙签挑取平板上的单菌落,接种至含有与恒化器中相同胁迫剂及相同培养基浓度的 15 ml 试管培养基中,培养 6 小时。
- 取 1 ml 菌液转移至含有 50 ml 培养基的 250 ml 三角瓶中。每隔 1 小时收集 0.5 ml 菌液,测定 600 nm 处的光密度(O.D.)。在施加胁迫剂的条件下,比较适应菌株与野生型菌株的生长速率。
访问受限。请登录或开始试用以查看此内容。
结果
为实现高琥珀酸盐胁迫适应,将野生型 E. coli W3110 菌株在恒化器中以 D = 0.1 hr-1 的稀释速率培养 270 天(图 2)。
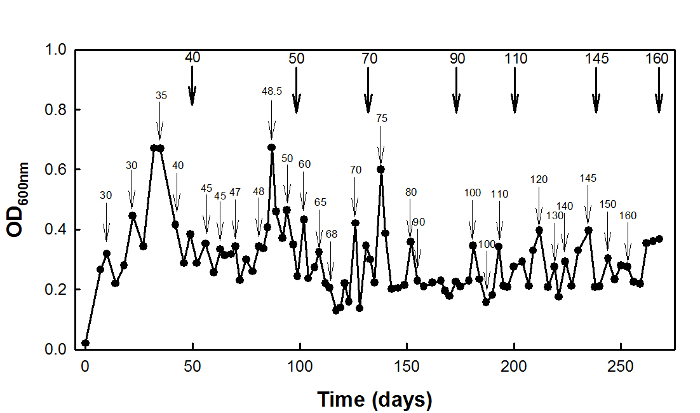
图2:高琥珀酸盐胁迫适应性 E. coli 使用恒化培养的W3110。 细箭头表示胁迫剂浓度增加的时间点,粗箭头表示培养物保存的时间点。带箭头的数字表示胁迫剂六水合琥珀酸钠的浓度。图中展示了适应性进化实验(ALE)过程中生物量的变化及胁迫剂浓度的变化。该图改编自 生物科学与生物工程杂志7.
访问受限。请登录或开始试用以查看此内容。
讨论
由于微生物具有快速的生长速率和丰富的遗传多样性,它们能够适应几乎所有的环境。适应性实验室进化技术可使微生物在特定设计的条件下发生进化,从而筛选出在给定条件下具有有利自发突变的个体微生物。
连续培养技术在实现人工驱动进化方面比传代培养技术更具优势,原因如下:(a)稳定的环境——由于传代培养技术基于固体或液体培养基中的分批培养,细胞所处的环境在分批培养过程中不断变化,而连续培养系统中的环境压力则保持恒定;(b)更大的种群规模与持续选择——连续培养系统具有更大的种群规模,可提供比传代培养更高的遗传多样性。连续培养技术的持续选择过程比传代培养的间歇性选择更快速地推动进化。在适应性实验室进化(ALE)过程中,必须确保连续培养体系不被其他微生物污染,整个培养过程需维持无菌条件。ALE过程可通过改变胁迫因素(如氧化胁迫、渗透胁迫和有毒产物胁迫)进行调整。然而,基于连续培养的ALE也存在一些技术局限性。进化过程具有随机性,因此不同研究者可能无法获得完全相同的进化结果,尽管突变所导致的表型效应可能存在关联。另一局限性在于,当胁迫因子浓度上升过快时,可能导致连续培养体系中的细胞被洗脱。若生物量下降至某...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由韩国科学、信息通信技术与未来规划部(智能合成生物学中心项目 2012M3A6A8054887)提供资金支持。P. Kim 获得韩国天主教大学(2015 年)提供的奖学金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 微型恒化器发酵罐 | Biotron Inc. | - | 按特殊订单制造 |
| 硅胶管 | Cole-Parmer | Masterflex L/S 13 | 管路尺寸可根据稀释速率和发酵罐容量进行调整 |
| 储液瓶 | Bellco | 培养基储存瓶 | 20 L |
| 化学试剂 | Sigma-Aldrich | - | 试剂级 |
| 葡萄糖 | Sigma-Aldrich | G5767 | ACS 试剂 |
| NH4Cl | Sigma-Aldrich | A9434 | 分子生物学级别,适用于细胞培养,≥99.5% |
| NaCl | Sigma-Aldrich | 746398 | ACS 试剂,≥99% |
| Na2HPO4·2H2O | Sigma-Aldrich | 4272 | 98.5-101% |
| KH2PO4 | Sigma-Aldrich | 795488 | ACS 试剂,≥99% |
| MgSO4·7H2O | Sigma-Aldrich | 230391 | ACS 试剂,≥98% |
| CaCl2 | Sigma-Aldrich | 793639 | ACS 试剂,≥96% |
| 硫胺素·HCl | Sigma-Aldrich | T4625 | 试剂级,≥99% |
| Na2·琥珀酸钠·6H2O | Sigma-Aldrich | S2378 | ReagentPlus,≥99% |
参考文献
- Rando, O. J., Verstrepen, K. J. Timescales of genetic and epigenetic inheritance. Cell. 128, 655-668 (2007).
- Kim, H. J., et al. Short-term differential adaptation to anaerobic stress via genomic mutations by Escherichia coli strains K-12 and B lacking alcohol dehydrogenase. Front Microbiol. 5, 476(2014).
- Mendizabal, I., Keller, T. E., Zeng, J., Yi, S. V. Epigenetics and evolution. Integr Comp Biol. 54, 31-42 (2014).
- Lee, J. Y., Seo, J., Kim, E. S., Lee, H. S., Kim, P. Adaptive evolution of Corynebacterium glutamicum resistant to oxidative stress and its global gene expression profiling. Biotechnol Lett. 35, 709-717 (2013).
- Lee, J. Y., et al. Artificial oxidative stress-tolerant Corynebacterium glutamicum. AMB Express. 4, 15(2014).
- Narang, A. The steady states of microbial growth on mixtures of substitutable substrates in a chemostat. J Theor Biol. 190, 241-261 (1998).
- Kwon, Y. D., Kim, S., Lee, S. Y., Kim, P. Long-term continuous adaptation of Escherichia coli to high succinate stress and transcriptome analysis of the tolerant strain. J Biosci Bioeng. 111, 26-30 (2011).
- Barrick, J. E., Lenski, R. E. Genome dynamics during experimental evolution. Nat Rev Genet. 14, 827-839 (2013).
- Li, H., et al. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25, 2078-2079 (2009).
- McKenna, A., et al. The Genome Analysis Toolkit: a MapReduce framework for analyzing next-generation DNA sequencing data. Genome Res. 20, 1297-1303 (2010).
- Deatherage, D. E., Barrick, J. E. Identification of mutations in laboratory-evolved microbes from next-generation sequencing data using breseq. Methods Mol Biol. 1151, 165-188 (2014).
访问受限。请登录或开始试用以查看此内容。
重印与许可
