PI(4,5)P2 调控多种细胞功能,但其在细胞质膜中的纳米级组织形式尚不明确。通过使用与Pleckstrin同源结构域融合的双色荧光探针标记PI(4,5)P2,我们描述了一种研究PI(4,5)P2在质膜中纳米尺度空间分布的新方法。
方法文章
利用新型荧光探针对质膜中磷脂酰肌醇4,5-二磷酸进行单分子超分辨率成像 磷脂酰肌醇4,5-二磷酸,质膜,单分子成像,超分辨率显微镜,荧光探针
本文内容
摘要
摘要
细胞膜中的磷脂酰肌醇是具有多种细胞功能的信号脂质。磷脂酰肌醇4,5-二磷酸(PI(4,5)P2)是质膜(PM)中一种关键的磷脂酰肌醇,参与调控离子通道、肌动蛋白动态、胞吐作用、内吞作用、细胞内信号传导以及许多其他细胞过程。然而,由于研究方法的技术限制,PI(4,5)P2在质膜中的空间组织仍存在争议,其纳米尺度分布尚不明确。本文通过利用单分子定位显微镜以及基于Pleckstrin同源(PH)结构域的双色荧光探针,介绍了一种新方法,可用于在固定的膜片以及活细胞中可视化PI(4,5)P2在质膜上的纳米级分布。
引言
磷脂酰肌醇仅占细胞膜脂质的一小部分,但在多种细胞过程中发挥关键作用。它们包括七种成员,由肌醇环在3位rd, 4th 和 5th 位置1磷脂酰肌醇4-磷酸(PI4P)和磷脂酰肌醇4,5-二磷酸(PI(4,5)P₂)2)是两种主要的磷脂酰肌醇,在细胞质膜(PM)中作为决定性脂质相对独立地发挥作用 2,3磷脂酰肌醇-3,4,5-三磷酸(PIP3) 的含量远低于 PI4P 和 PI(4,5)P2,但在包括癌症在内的不同细胞过程中具有独特功能4 和糖尿病5这些脂质与其效应分子及许多其他蛋白质之间存在复杂的分子相互作用。因此,理解这些磷脂酰肌醇在质膜中纳米尺度上的空间分布至关重要。
越来越多的证据表明,局限于质膜特定区域的蛋白质复合物或分子簇可作为信号传导的热点6例如,syntaxin 1a 是一种调控膜融合的关键蛋白7-9,显示质膜(PM)中的簇状结构组织。与syntaxin 1a簇状结构组织的共识观点不同,磷脂酰肌醇在质膜中的空间分布尚存争议。PI(4,5)P₂2 分布模式从均匀分布到10-12大片区域13,14,形成致密的簇集14-18,具体取决于所使用的细胞类型和实验方法。PI(4,5)P₂ 的空间分布组织2 在更高分辨率下也存在不一致性。一项采用受激发射损耗(STED)显微镜的研究 19 已揭示出大量密集的 PI(4,5)P2 PC-12细胞质膜片中的纳米簇(直径约73 nm) 20该结果与使用快速冷冻电子显微镜(EM)的研究不同21,22,一种比化学固定更能有效保持活细胞完整质膜结构的方法。后者显示出明显的PI(4,5)P2;相对浓缩的 PI(4,5)P₂2 在小窝和包被小窝中以及在平坦质膜区域呈均匀分布。此外,纳米尺度的PI(4,5)P₂2 活细胞与固定细胞中膜片的组织结构可能存在差异。我们近期的研究利用单分子定位显微镜(SMLM),在固定和活体的INS-1细胞中探讨了这一问题。23.
单分子定位显微镜(SMLM)基于在任意给定时间仅随机激活一小部分荧光分子,使得单个荧光分子能够被高精度地定位。已有多种超分辨率成像方法采用类似原理,突破了传统光学显微镜的衍射极限,例如光激活定位显微镜(PALM)24、荧光光激活定位显微镜(FPALM)25、随机光学重建显微镜(STORM)26,27 以及直接STORM(dSTORM)28。利用可光切换或可光激活的荧光分子(染料或荧光蛋白),SMLM技术使科学家能够在活细胞中以纳米级分辨率24,29,30并以视频速率进行生物结构成像31,32。
使用PI(4,5)P2 以SMLM技术为例,我们将其用于研究磷脂酰肌醇在质膜上的纳米级分布。PLCδ1(磷脂酶C δ1)的PH结构域可特异性结合PI(4,5)P₂2 是一种用于成像PI(4,5)P的成熟探针2 亚细胞分布与动态33,34 在PM中,我们使用两种荧光蛋白PAmCherry1对这一结构域进行了遗传标记35 和 iRFP36 以生成双色融合蛋白(iRFP-PAmCherry1-PH)PLCδ1) (图1A-B). PAmCherry1 作为 PH 结构域的光激活探针用于 PALM,iRFP 则作为通用指示剂用于在 PALM 采集前识别转染细胞。我们将这种双色荧光探针应用于固定膜片的 SMLM 成像。对于活细胞 PALM 成像,我们标记了 mEOS337 而不是将 PAmCherry1 连接到 PHPLCδ1 结构域以生成 mEOS3.1-PHPLCδ1 由于其更高的光子效率和亮度而被选用图1C-D).
利用这些新型探针在胰岛素分泌型INS-1细胞质膜(PM)中进行SMLM成像38,发现PI(4,5)P2在大多数质膜区域呈均匀标记,同时存在密集的PI(4,5)P2微区,这些微区稀疏地分布于平坦的质膜及部分类似丝状伪足的结构中23。PI(4,5)P2的纳米级分布为重新思考其在活细胞中的功能提供了结构基础。
方案
1. 膜片制备与固定
- 制备标记有 iRFP-PAmCherry1-PHPLCδ1 的质膜片
- 使用标准分子生物学技术制备编码 iRFP-PAmCherry1-PHPLCδ123 的DNA质粒。
- 按照标准的 INS-1 细胞培养方案38,39,将 INS-1 细胞培养于预先涂有 30 µg/ml 纤连蛋白的 #1.5 18 mm 圆形盖玻片上,至细胞融合度达 50–70%。在达到该融合度后的第二天进行转染。
- 使用脂质体转染试剂,按照制造商的说明将 iRFP-PAmCherry1-PHPLCδ1 转染至细胞中。转染后,让细胞继续生长 48 小时。
- 在实验当天,将盖玻片(单面)用约 0.5–1 ml 的 500 µg/ml 多聚-L-赖氨酸(PDL;溶于 dH2O 中)覆盖,孵育 1–2 小时。然后用滤纸从盖玻片边缘吸除多余的 PDL。将盖玻片置于预冷(4 °C)的金属板上备用。
- 用约 0.5–1 ml 含 1 mM EGTA 的冰冻磷酸盐缓冲液(PBS)洗涤生长在盖玻片上的预转染 INS-1 细胞。重复洗涤三次,并吸除 PBS。
- 用镊子将带有培养细胞的盖玻片(细胞面朝下)放置在金属板上已涂有 PDL 的盖玻片上。将金属板置于冰箱(4 °C)中孵育 7–10 分钟,使细胞附着于 PDL 涂层的盖玻片上(图 2)。
注意:为确保细胞更好地附着于 PDL 涂层表面,孵育时间应控制在 7–10 分钟之间。由于冰箱环境干燥,孵育时间不宜过长。 - 从冰箱中取出金属板。用镊子轻轻剥离含有预转染细胞的盖玻片,从而在 PDL 涂层的盖玻片上留下一层薄的细胞质膜片。用约 0.5–1 ml 冰冻 PBS 轻柔洗涤膜片,然后在 4 °C 条件下用约 0.5–1 ml 冰冻的含 4% 多聚甲醛(PFA)和 0.2% 戊二醛(GA)的 PBS 固定 15 分钟。
警示:多聚甲醛和戊二醛具有毒性,应在通风橱中操作,并佩戴皮肤和眼部防护装备。 - 固定后,立即对膜片进行成像(见第 3 节),或将其保存在约 0.5–1 ml PBS 中,置于 4 °C 备用。
注意:固定膜片后,细胞质中的 PH 探针将不再与 PI(4,5)P2 发生平衡结合。已结合的 PH 探针会逐渐从膜片上解离并扩散至溶液中(尽管此过程可能需要数天至数周)。因此,建议在样品制备完成后立即对固定样品进行成像。
- 制备用于 PI(4,5)P2 特异性抗体标记的质膜片
- 将 INS-1 细胞培养于预先涂有 30 µg/ml 纤连蛋白的 #1.5、18 mm 圆形盖玻片上,至细胞融合度达 50%–70%。次日按照步骤 1.1.3 所述方法,用 DNA 质粒转染细胞。
- 重复上述步骤 1.1.4 至 1.1.7 的操作。
注意:以下所有步骤均应在 4 °C 条件下进行。 - 用约 0.5–1 ml 含 50 mM NH4Cl 的冰冻 PBS 将含有固定质膜片的盖玻片洗涤三次。用约 0.5–1 ml 含 0.1% 硼氢化钠的 PBS 孵育 7 分钟以淬灭非特异性荧光,随后用约 0.5–1 ml 不含 50 mM NH4Cl 的 PBS 洗涤。
- 用约 0.5–1 ml 封闭液(含 5% (v/v) 正常山羊血清、5% (v/v) 牛血清白蛋白和 50 mM NH4Cl 的 PBS 溶液)封闭样品 45 分钟。然后在封闭液中加入约 0.5–1 ml 的一抗(PI(4,5)P2 抗体,1:300 稀释),孵育 1 小时。再用含 50 mM NH4Cl 的 PBS 洗涤三次,每次 10 分钟。
- 在封闭缓冲液中加入约 0.5–1 ml 荧光标记的二抗(F(ab')2-山羊抗小鼠抗体,1:300 稀释),孵育 1 小时。随后用约 0.5–1 ml PBS 洗涤三次。
- 用 4% PFA + 0.2% GA 固定 15 分钟,再用 PBS 洗涤三次,每次 7 分钟。随后进入第 3 节进行成像,或保存于约 0.5–1 ml PBS 中,置于 4 °C 备用。
注意:所有样品制备步骤均应在 4 °C 进行。使用 4% PFA + 0.2% GA 固定剂可有效保持质膜中磷脂酰肌醇的生理分布状态。室温制备或仅使用 4% PFA 固定可能导致显著的人工假象(图 4)。
2. 使用 mEOS3.1-PHPLCδ1 进行活细胞成像的细胞培养准备
- 按照先前所述方法制备编码 mEOS3.1-PHPLCδ1 的 DNA 质粒23。
- 将 INS-1 细胞培养于预先涂有 30 µg/ml 纤连蛋白的 #1.5 级 18 mm 圆形盖玻片上,按照标准 INS-1 细胞培养方案培养至细胞融合度达到 50%–70%38,39。
- 次日,使用脂质体转染试剂,按照生产商的说明书将 mEOS3.1-PHPLCδ1 DNA 质粒转染至 INS-1 细胞中。转染后孵育 48 小时,再进行成像。
3. 膜片与活细胞的PALM成像采集
- 膜片PALM图像采集
注意:此处使用基于全内反射荧光(TIRF)显微镜的单分子定位显微成像系统(100X油镜,APO,数值孔径NA = 1.49,工作距离WD 0.12 mm) 23 用于所有图像采集。- 成像前,将1 µl荧光微球溶液加入10 ml PBS + 50 mM MgCl中稀释2向成像室中加入200 µl稀释液(来自步骤1.1.8/1.2.6),作用10分钟,然后用PBS洗涤三次。
- 启动PALM成像系统。在配套的成像软件中,选择 "iRFP 通道" 按钮(642 nm 激光激发,700/75 nm 发射)。在 iRFP 通道中找到表达 PH 探针的细胞膜。
注意:膜片附近应有一个荧光微珠,此条件为后续漂移校正所必需。 - 使用 "捕获" 单击按钮以在iRFP通道中采集细胞膜的传统TIRF图像,作为后续图像重建的参考。设置常规TIRF角度(即,到达临界角后,再旋转1.5度,可通过在TIRF成像角度设置中输入2140来实现。除非另有说明,所有步骤均使用此角度设置。
注意:在此描述的TIRF系统中,3,500为垂直向上角度,2,200为TIRF临界角,2140为常规TIRF角度,即在TIRF临界角基础上增加1.5度。下文3.2.3中提到的窄TIRF角度为2120,即在达到TIRF临界角后再增加2度。 - 切换至PAmCherry1通道,点击RFP通道按钮(561 nm激发,600/50 nm发射滤光片)。调节滚动条以 "AOTF" 将光闸完全向右推到底,以全功率照射561 nm激光10-20秒,漂白背景膜荧光。
- 设置最佳相机参数(2x2 二乘二像素合并) "格式" 标签和快速采集方案在 "ND序列采集" 通常为10,000至40,000张图像,采集速率为20 Hz。
- 开始采集PAmCherry1图像(561 nm激光全功率,50毫秒/帧),同时通过点击以低强度(0.1%–1%)开启405 nm激光进行激活 "立即运行" 按钮。调节405 nm激光的强度,使每帧中空间上分离的单个点易于识别。
注意:在采集过程中,可激活的 PAmCherry1 分子数量逐渐减少。应逐步增加 405 nm 激光强度,以保持每帧图像中单分子信号的最佳密度。 - 持续采集图像,直至没有 PAmCherry1 单分子信号被激活。
- 活细胞中的PALM成像
- 成像前,按照步骤3.1.1所述,将荧光微球稀释后加入成像室孵育10分钟。随后打开相应的成像软件,开始PALM成像。
注意:活细胞成像时使用磁性快拆成像腔室。通过温度控制器在持续灌注细胞外缓冲液的条件下(细胞外溶液:135 mM NaCl,5.6 mM KCl,2.6 mM CaCl₂)将成像区域中心维持在35 °C。2,1.2 mM MgCl2,3 mM 葡萄糖,20 mM HEPES;pH = 7.3。 - 选择GFP通道按钮(525/50 nm发射)。根据mEOS3在488 nm激光激发下产生的绿色荧光,识别表达荧光探针的细胞膜。成像时需确保同时包含附近的荧光微珠,因为后续离线漂移校正需要这些微珠。
- 点击 "捕获" 点击按钮以采集细胞膜在 mEOS3(绿色)通道的 TIRF 图像作为参考图像。对于活细胞成像,通过在 TIRF 角度设置中输入 2120 来使用浅层衰逝波激发照明(达到临界角后,再旋转 2 度)。
注意:这可以最大限度地减少细胞质中未结合的 mEos3-PH 在质膜附近的荧光。 - 切换到 "RFP 通道" 按钮(561 nm 激发,600/50 nm 发射)。使用全功率 561 nm 激光,通过滚动条对膜片的背景荧光进行漂白,持续 10 ~ 20 秒。 "AOTF 垫片" (参见 3.1.4)。
- 单击以开始图像采集 "立即运行" 红色通道中的按钮(561 nm 全功率,设置为 10 毫秒/帧) "相机" 在设置选项卡中,使用405 nm激光同步激活。调节405 nm激光强度,以在每帧中激活空间上分离的点。
注意:随着采集的进行,未转化的mEOS3.1-PHPLCδ1 分子数量缓慢减少。逐渐增加405 nm激光功率以优化单分子信号。成像采集时长取决于实验目的。在正常情况下连续采集图像5分钟。若需要更长时间的采集,应采集多个图像序列,而非单个大型图像序列。每个图像序列的文件大小不应超过4 GB,否则将影响后续的软件分析。
- 成像前,按照步骤3.1.1所述,将荧光微球稀释后加入成像室孵育10分钟。随后打开相应的成像软件,开始PALM成像。
4. SMLM 图像处理与重建
- 将图像文件(.tif 图像堆栈)转移至图像分析工作站。按照先前所述方法37在 Matlab 中启动图像重建程序(自定义编写),然后在主菜单中点击 "File" 选项卡,接着点击 "open",再选择 "new file" 来加载图像堆栈。
- 从每一帧中识别并定位单个分子事件。在 "wavelet" 中设置滤波强度阈值(阈值范围为1-10)。在重建前通过视觉检查验证点检测的最佳参数设置。然后转到 "PALM" 选项卡,点击 "one step process" 以开始图像重建。
注:点检测的强度阈值为任意设定,取决于个人经验。可能需要多次尝试以获得最佳检测阈值,确保既不会捕获过多不合格(信号弱)的点,也不会过滤掉过多合格(信号强)的点。调整其他参数以优化数据分析。此处,邻域距离(在指定距离内相邻帧中的荧光点将被合并)设为 65 nm(1/2 像素宽度),并拟合为单个分子。间隙帧数(在这些帧数范围内且在邻域距离内的单个分子事件将被合并并拟合为一个分子事件)对于 PAmCherry1 成像设为 26 帧(1.3 秒)40。根据单分子探针的特性和采集速率调整这些参数,以避免在 SMLM 中出现过度计数40。在重建过程中使用荧光微球进行漂移校正。- 对于用 iRFP-PAmCherry1-PHPLCδ1 标记的固定膜片成像,将来自同一膜片的完整图像堆栈重建为一幅单一的超分辨率图像37。
- 对于用 mEOS3.1-PHPLCδ1 标记的活细胞样品,将整个图像堆栈分割为多个包含 1,000 帧的较小堆栈,使每 1,000 连续帧堆栈重建为一幅超分辨率图像,时间分辨率为 10 秒。最后,将所有时间序列图像合并为最终的时间序列堆栈23。
注:在活细胞 PALM 成像中,少量被激活的探针可能在漂白前在质膜中移动或从 PI(4,5)P2 上解离。为校正探针的过采样,在图像分析过程中,将邻近帧中 130 nm 范围内(而非 65 nm)的单个分子信号合并为一次发射事件。
- 获得重建图像后,使用 Matlab 中的自定义程序进行进一步图像分析,以量化分子密度、微区密度/大小,并通过配对相关性分析进行簇分析41。
结果
本超分辨率系统的定位不确定性(σ)为 14.73 nm23。TIRF 与 PALM 图像的直接比较表明,空间分辨率得到了显著提升。图 3A-B 展示了在典型膜片和活细胞中标记 PI(4,5)P2 抗体以及 iRFP-PAmCherry1-PHPLCδ1 的代表性 PI(4,5)P2 TIRF 图像。在膜片中使用传统 TIRF 显微镜获得的图像与使用增强型绿色荧光蛋白(EGFP)标记的 PH 结构域(EGFP-PHPLCδ1)在完整活细胞中标记的图像极为相似(图 3C)。所有样品均显示出探针的均匀分布。相比之下,样品固定条件不理想时,会导致 PI(4,5)P2 出现明显的致密簇状聚集,并伴随信号强度下降(图 4)。在最佳固定条件下,固定细胞中 PI(4,5)P2 的超分辨率图像(图 5)显示,质膜(PM)的大部分区域探针呈均一分布,仅有局部浓度梯度。部分富含 PI(4,5)P2 探针的膜区域呈稀疏分布,且大小各异。活细胞 PALM 图像显示的空间分布与固定细胞相似(图 6)。对 PI(4,5)P2 信号随时间变化的详细分析表明,局部区域动态变化迅速,但在大范围内其丰度无明显改变。
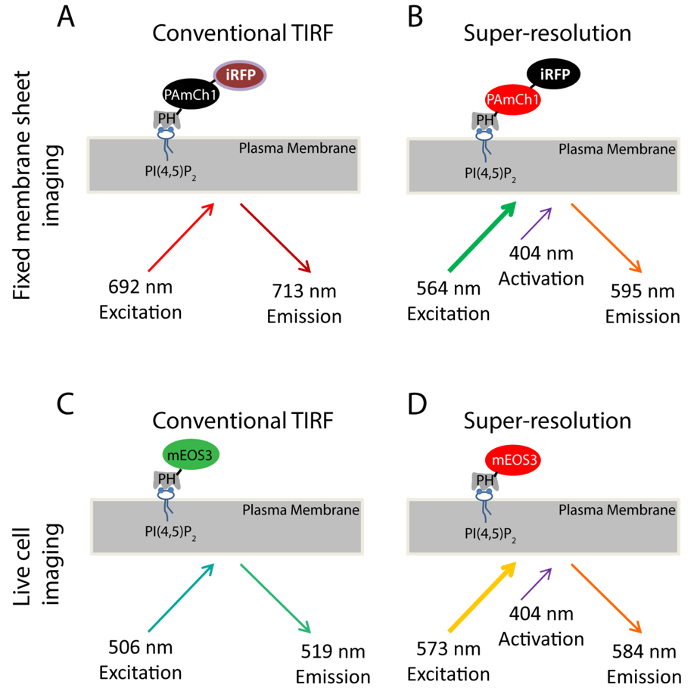
图1. 本研究中使用的荧光探针示意图。 (A-B) 在固定膜片实验中使用的 iRFP-PAmCherry1-PHPLCδ1 探针。在常规全内反射荧光(TIRF)成像过程中(A),使用640 nm激光激发iRFP(激发波长Ex: 692 nm;发射波长Em: 713 nm)。在此条件下获取的TIRF图像作为参考图像,用于与通过光激活定位显微镜(PALM)成像获得的超分辨率图像进行比对(B)。使用405 nm激光对PAmCherry1荧光团进行光激活,并使用561 nm激光激发PAmCherry1(Ex: 564 nm;Em: 595 nm)以进行PALM成像。(C-D) 在活细胞实验中使用的mEos3.1-PHPLCδ1探针。(C)在常规TIRF成像过程中,使用488 nm激光激发mEos3.1(Ex: 506 nm;Em: 519 nm)。(D)经405 nm激光光转化后,mEos3.1转变为红色形式(Ex: 573 nm;Em: 584 nm),并使用561 nm激光进行PALM图像采集。 请点击此处查看该图的放大版本。
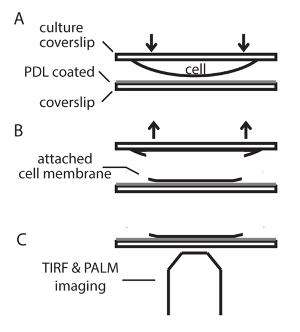
图2. 从INS-1细胞制备细胞膜片的示意图。(A)将培养有细胞的盖玻片细胞面朝下放置于PDL包被的盖玻片上,在4 °C下静置7~10分钟,使细胞附着于PDL包被的盖玻片。(B)用镊子揭去上方的盖玻片,保留附着在PDL预包被盖玻片上的细胞膜片。(C)使用TIRFM和PALM对样品进行成像。请点击此处查看该图的放大版本。
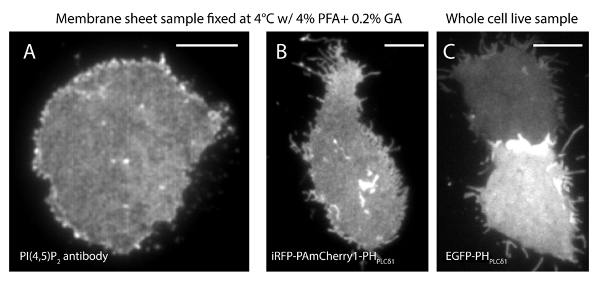
图3. PI(4,5)P2 膜片与完整活细胞在常规全内反射荧光显微镜下的空间分布相似。 (A典型的在膜片固定后获得的TIRF图像 4 °C 用4% PFA和0.2% GA。PI(4,5)P2 用 PI(4,5)P 进行标记2 特异性抗体。B表达 iRFP-PAmCherry1-PH 的 INS-1 细胞的膜片PLCδ1. (C表达EGFP-PH的两个完整活细胞的TIRF图像PLCδ1 在不同层次上。比例尺:(A): 3 µm; (B)和(C): 5 µm. 请点击此处查看此图的放大版本。
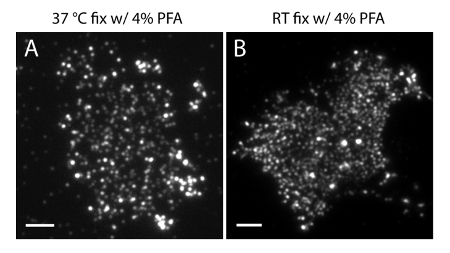
图 4. 膜片中 PI(4,5)P2 的空间分布对常用固定条件敏感。(A)在 37 °C 下仅使用 4% PFA 固定的膜片,并用 PI(4,5)P2 特异性抗体标记(同 图 3A 所示方法)。(B)在室温下仅使用 PFA 固定的膜片,并用 PI(4,5)P2 特异性抗体标记。注意:在全内反射荧光(TIRF)显微镜下,PI(4,5)P2 探针的致密簇状结构清晰可见,与 图 3A 中更为均匀的荧光图像形成对比。比例尺:A–B:3 µm。请点击此处查看此图的放大版本。
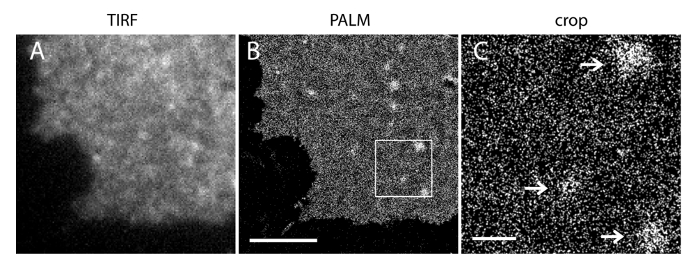
图 5. PI(4,5)P2 探针的 PALM 成像揭示其在 INS-1 细胞质膜中的纳米级分布。 (A)表达 iRFP-PAmCherry1-PHPLCδ1 的 INS-1 细胞膜片的 iRFP 全内反射荧光(TIRF)图像。(B)基于 PAmCherry1 信号重建的同一区域质膜对应的光激活定位显微镜(PALM)图像。注意在主要质膜区域中 PI(4,5)P2 空间分布的均匀性,以及若干 PI(4,5)P2 微区。(C)(B)图中方框区域的放大视图。箭头指示富含 PI(4,5)P2 探针的稀疏分布质膜微区。比例尺:A 和 B:3 µm;C:500 nm。 请点击此处查看该图的放大版本。
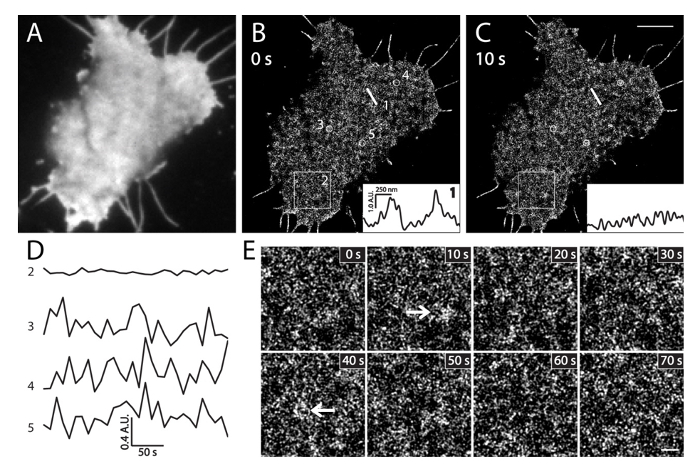
图6. 活体INS-1细胞中的PALM成像。 (API(4,5)P₂的TIRF图像2 在表达 mEos3.1-PH 的活体 INS-1 细胞中PLCδ1在进行PALM成像之前,先在绿色通道中快速采集图像(35 °C). (B) 以10秒为间隔的连续活细胞PALM图像。插图为局部PI(4,5)P₂的强度分布2 同一直线上不同时间点的密度变化B)和(C)。注意其在10秒内显著的局部强度变化。DPI(4,5)P₂ 平均强度变化的时间进程2 在大面积区域(框2,3x3) µm)以及(中的小圆圈(3、4 和 5,直径 500 nm)B) 在5分钟PALM成像期间(每10秒一帧)。注意局部PI(4,5)P₂信号强度的快速波动2 探针(圆圈3、4和5)相较于宽区域(方框2)的变化非常小。E) box2 区域的放大 PALM 图像B在指定时间点。箭头指示 PI(4,5)P2 生理条件下富集的膜片。比例尺: C: 3 µm; E:500 nm。 请点击此处以查看此图的放大版本。
讨论
在 troubleshooting 过程中,有两个步骤需要特别注意:膜片制备和样品固定。如实验方案所述,步骤 1.1.6 中盖玻片的孵育时间对膜片的形成至关重要。在我们的实验条件下,最佳孵育时间为 7–10 分钟(图 2)。孵育时间超过 10 分钟会导致在 PDL 盖玻片上形成完整细胞而非膜片,而孵育时间过短则会导致 PDL 包被的盖玻片上膜片数量减少或完全缺失。如实验方案所述,固定剂的选择及固定时的温度对于维持质膜中 PI(4,5)P2 的分布至关重要。在室温下固定或仅使用 4% PFA 固定可能会扭曲质膜中脂质的正常分布。
通过将PALM显微技术应用于膜脂研究,我们能够观察到磷脂酰肌醇-4,5-二磷酸(PI(4,5)P2)在纳米尺度上的分布,该分子是一种介导多种基本细胞活动的关键磷脂酰肌醇。在INS-1细胞中,PI(4,5)P2呈现出有限浓度梯度的空间分布,这一特征为重新思考这些细胞中脂质-蛋白质相互作用及PI(4,5)P2局部信号事件提供了框架。此外,本研究中开发的方法也可通过使用适当的探针拓展至其他膜磷脂的研究,从而为研究生物过程中磷脂酰肌醇类分子提供了新颖的工具。
本研究中使用膜片技术避开了磷脂形态学研究中的两个主要问题:去垢剂处理以及胞质溶胶可能带来的信号污染。去垢剂常常导致质膜磷脂信号的聚集和显著丢失。对于质膜上丰度较低的磷脂酰肌醇,如PI(3,4,5)P3和PI(3,4)P2,胞质信号的干扰尤为严重23。膜片样品能够在不显著破坏与质膜相关结构(如皮层肌动蛋白网状结构和网格蛋白包被小窝)的前提下,规避上述问题42,43。PI(4,5)P2在质膜中相对均匀的分布,与其他采用GST-PHPLCδ1探针在成纤维细胞膜上进行的快速冷冻电镜研究结果高度一致44。
需要注意的是,不恰当的样品处理条件可能导致误导性结果。首先,固定步骤必须在较低温度(4 °C)下进行,并使用戊二醛(GA)作为固定剂以制备膜片。如图3所示,在无GA的情况下使用PFA固定并施加较高温度,不足以将细胞质膜中的磷脂酰肌醇固定住。这可能会扭曲完整的PI(4,5)P2分布模式,并产生在生理条件下活细胞中无法观察到的尖锐簇状结构。其次,使用PAmCherry1而非其他探针作为超分辨率单分子定位显微镜(SMLM)的探针,对于实现定量PALM成像至关重要。PAmCherry1的优势源于其已被充分表征的单分子光物理特性35,40,45,例如亮度高、光激活效率高,尤其是光闪烁现象极弱。这些特性使我们能够排除由光闪烁引起的潜在簇状伪影,并对膜上PI(4,5)P2的分子密度进行定量分析。
这种方法也存在一些局限性。首先,本研究中使用的膜片法可能无法完全模拟 PI(4,5)P2 的生理分布,因为在成像前细胞已被破坏。然而,我们进行的活细胞 PALM 成像显示 PI(4,5)P2 呈现类似的相对均质分布,支持了膜片样本中观察到的结果。其次,正如我们在先前的研究23中所讨论的,单分子定位显微镜(SMLM)需要专业的成像技术,并需格外注意避免因不同步骤(包括所用探针、样品制备与固定、图像采样和重建)可能引入的成像伪影。最后,尽管基于 PH 结构域的探针和抗体已在磷脂酰肌醇研究中被广泛使用46,47,但仍有可能并非膜中所有的 PI(4,5)P2 都能被该方法检测到。例如,与其他内源性蛋白结合的 PI(4,5)P2 可能无法被 PH 探针或抗体识别,且探针自身可能因空间位阻导致 PI(4,5)P2 被低估。另一种标记 PI(4,5)P2 的方法是使用 Top-Fluor PI(4,5)P248,这是一种在原始 PI(4,5)P2 尾部进行修饰的预标记 PI(4,5)P2 类似物。然而,由于其肌醇环与内源性 PI(4,5)P2 相同,该类似物可在活细胞快速代谢过程中迅速转化为其他磷脂酰肌醇亚型。这引发了一个担忧:在活细胞中,这种预标记的 PI(4,5)P2 类似物是否能真实反映 PI(4,5)P2 本身,而非其代谢产物。因此,尽管存在一些局限性,基于 PH 结构域的探针仍然是目前广泛用于监测细胞质膜上 PI(4,5)P2 分布与动态变化的最佳探针之一。
该方法未来的应用可拓展至其他磷脂酰肌醇的研究,例如PI(3,4,5)P3和PI(3,4)P2。总之,本研究中采用的新型单分子定位显微镜(SMLM)方法为在细胞中研究磷脂酰肌醇开辟了新途径。以PI(4,5)P2为例,我们展示了光激活定位显微镜(PALM)成像在细胞膜分子形态学与定量研究中的独特优势及其局限性。该方法可适用于其他感兴趣的分子,在细胞生物学领域具有广泛的应用前景。
披露
作者无任何利益冲突需要披露。
致谢
本工作由美国国立卫生研究院(NIH)资助,项目编号为R01DK093953(X.L.)、P30NS069271、BRFSG-2014-07(X.L.)。C.J. 部分由美国心脏协会博士前奖学金(14PRE20380168,授予C.J.)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 显微镜 | 尼康 | Ti-U | |
| sCMOS相机 | Andor | Neo | |
| 旋转盘 | 横河 | CSU X-1,10,000 转/分钟 | |
| 405、488、561 和 642 nm 激光的高功率单块式激光合束器 SP | 安捷伦 | MLC400 | 激光原始功率 &以及光纤末端的功率 405 nm:15 mW &和 13 mW 488 nm:45 mW && 42 mW 561 nm:45 mW &40 mW 640 纳米:35 毫瓦 && 16 mW |
| 100倍物镜 | 尼康 | APO 100X 油镜,NA 1.49,工作距离 0.12 毫米 | |
| 尼康采集与分析软件(NIS Element) | 尼康 | ||
| Matlab | MathWorks | ||
| 盖玻片 | Warner | 64-0714 | 第18轮 1.5号盖玻片,毫米级 |
| 纤连蛋白 | Millipore | FC010-5MG | |
| Lipofectamin 3000(转染试剂) | Invitrogen | L3000-008 | |
| 戊二醛 | 电子显微镜科学 | #16120 | |
| PI(4,5)P₂2 1st 抗体 | Santa Cruz | sc-53412 | |
| 二抗 F(ab’)2-山羊抗小鼠Alexa Fluor 647 | Invitrogen | A-21237 | |
| Tetraspeck 微球 | Invitrogen | T7279 | |
| 磁性快速释放成像室 | Warner Instruments | 货号#641994 | |
| 温度控制器 | Warner Instruments | TC-344C | |
| 聚-D-赖氨酸 | Sigma | P6407 | |
| 磷酸盐缓冲液 | Sigma | P4417-100TAB | |
| EGTA | Sigma | 3780 | |
| NH4Cl | Sigma | A0171 | |
| 山羊血清 | Sigma | G9023 | |
| 牛血清白蛋白 | Sigma | A7906 | |
| NaCl | Sigma | S5886 | |
| KCl | Sigma | P5405 | |
| CaCl2•2H2O | Sigma | 223506 | |
| MgCl2•6H2O | Sigma | M9272 | |
| 葡萄糖 | Sigma | G7021 | |
| HEPES | Sigma | H4034 | |
| 甲醛 | Sigma | P6148 |
参考文献
- Di Paolo, G., De Camilli, P. Phosphoinositides in cell regulation and membrane dynamics. Nature. 443, 651-657 (2006).
- Hammond, G. R. V., et al. PI4P And PI(4,5)P(2) Are Essential But Independent Lipid Determinants Of Membrane Identity. Science. 337, New York, N.Y. 727-730 (2012).
- Nakatsu, F., et al. PtdIns4P synthesis by PI4KIIIalpha at the plasma membrane and its impact on plasma membrane identity. J Cell Biol. 199, 1003-1016 (2012).
- Cantley, L. C. The phosphoinositide 3-kinase pathway. Science. 296, 1655-1657 (2002).
- Czech, M. P. Dynamics of phosphoinositides in membrane retrieval and insertion. Annu Rev Physiol. 65, 791-815 (2003).
- Spira, F., et al. Patchwork organization of the yeast plasma membrane into numerous coexisting domains. Nat Cell Biol. 14, 640-648 (2012).
- Barg, S., Knowles, M. K., Chen, X., Midorikawa, M., Almers, W. Syntaxin clusters assemble reversibly at sites of secretory granules in live cells. Proc Natl Acad Sci U S A. 107, 20804-20809 (2010).
- Sieber, J. J., et al. Anatomy and dynamics of a supramolecular membrane protein cluster. Science. 317, 1072-1076 (2007).
- Knowles, M. K., et al. Single secretory granules of live cells recruit syntaxin-1 and synaptosomal associated protein 25 (SNAP-25) in large copy numbers. Proc Natl Acad Sci U S A. 107, 20810-20815 (2010).
- Milosevic, I., et al. Plasmalemmal phosphatidylinositol-4,5-bisphosphate level regulates the releasable vesicle pool size in chromaffin cells. J Neurosci. 25, 2557-2565 (2005).
- van Rheenen, J., Jalink, K. Agonist-induced PIP(2) hydrolysis inhibits cortical actin dynamics: regulation at a global but not at a micrometer scale. Mol Biol Cell. 13 (2), 3257-3267 (2002).
- Hammond, G., Schiavo, G., Irvine, R. Immunocytochemical techniques reveal multiple, distinct cellular pools of PtdIns4P and PtdIns (4, 5) P2. Biochem J. 422, 23-35 (2009).
- Huang, S., et al. Phosphatidylinositol-4,5-bisphosphate-rich plasma membrane patches organize active zones of endocytosis and ruffling in cultured adipocytes. Mol Cell Biol. 24, 9102-9123 (2004).
- James, D. J., Khodthong, C., Kowalchyk, J. A., Martin, T. F. Phosphatidylinositol 4,5-bisphosphate regulates SNARE-dependent membrane fusion. J Cell Biol. 182, 355-366 (2008).
- Laux, T., et al. GAP43, MARCKS, CAP23 modulate PI(4,5)P(2) at plasmalemmal rafts, and regulate cell cortex actin dynamics through a common mechanism. J Cell Biol. 149, 1455-1472 (2000).
- Aoyagi, K., et al. The activation of exocytotic sites by the formation of phosphatidylinositol 4,5-bisphosphate microdomains at syntaxin clusters. J Biol Chem. 280, 17346-17352 (2005).
- Kabachinski, G., Yamaga, M., Kielar-Grevstad, D. M., Bruinsma, S., Martin, T. F. CAPS and Munc13 utilize distinct PIP2-linked mechanisms to promote vesicle exocytosis. Mol Biol Cell. 25, 508-521 (2014).
- Wang, J., Richards, D. A. Segregation of PIP2 and PIP3 into distinct nanoscale regions within the plasma membrane. Biol Open. 1, 857-862 (2012).
- Hell, S. W., Wichmann, J. Breaking the diffraction resolution limit by stimulated emission: stimulated-emission-depletion fluorescence microscopy. Opt Lett. 19, 780-782 (1994).
- van den Bogaart, G., et al. Membrane protein sequestering by ionic protein-lipid interactions. Nature. 479, 552-555 (2011).
- van Rheenen, J., Achame, E. M., Janssen, H., Calafat, J., Jalink, K. PIP2 signaling in lipid domains: a critical re-evaluation. Embo J. 24, 1664-1673 (2005).
- Sato, K., et al. Differential requirements for clathrin in receptor-mediated endocytosis and maintenance of synaptic vesicle pools. Proc Natl Acad Sci U S A. 106, 1139-1144 (2009).
- Ji, C., Zhang, Y., Xu, P., Xu, T., Lou, X. Nanoscale Landscape of Phosphoinositides Revealed by Specific Pleckstrin Homology (PH) Domains Using Single-molecule Superresolution Imaging in the Plasma Membrane. J of Biol Chem. 290, 26978-26993 (2015).
- Betzig, E., et al. Imaging intracellular fluorescent proteins at nanometer resolution. Science. 313, 1642-1645 (2006).
- Hess, S. T., Girirajan, T. P., Mason, M. D. Ultra-high resolution imaging by fluorescence photoactivation localization microscopy. Biophys J. 91, 4258-4272 (2006).
- Rust, M. J., Bates, M., Zhuang, X. Sub-diffraction-limit imaging by stochastic optical reconstruction microscopy (STORM). Nat Methods. 3, 793-795 (2006).
- Xu, K., Zhong, G., Zhuang, X. Actin, spectrin, and associated proteins form a periodic cytoskeletal structure in axons. Science. 339, 452-456 (2013).
- Wombacher, R., et al. Live-cell super-resolution imaging with trimethoprim conjugates. Nat Methods. 7, 717-719 (2010).
- Szymborska, A., et al. Nuclear pore scaffold structure analyzed by super-resolution microscopy and particle averaging. Science. 341, 655-658 (2013).
- Pertsinidis, A., et al. Ultrahigh-resolution imaging reveals formation of neuronal SNARE/Munc18 complexes in situ. Proc Natl Acad Sci U S A. 110, 2812-2820 (2013).
- Shim, S. -H., et al. Super-resolution fluorescence imaging of organelles in live cells with photoswitchable membrane probes. Proc Natl Acad Sci. 109, 13978-13983 (2012).
- Huang, F., et al. Video-rate nanoscopy using sCMOS camera-specific single-molecule localization algorithms. Nat Methods. 10, 653-658 (2013).
- Balla, T., Várnai, P. Visualization of Cellular Phosphoinositide Pools with GFP-Fused Protein-Domains. Curr Protoc Cell Biol. 24, 24(2009).
- Xu, C., Watras, J., Loew, L. M. Kinetic analysis of receptor-activated phosphoinositide turnover. J Cell Biol. 161, 779-791 (2003).
- Subach, F. V., et al. Photoactivatable mCherry for high-resolution two-color fluorescence microscopy. Nat Methods. 6, 153-159 (2009).
- Filonov, G. S., et al. Bright and stable near infra-red fluorescent protein for in vivo imaging. Nature Biotechnol. 29, 757-761 (2011).
- Zhang, M., et al. Rational design of true monomeric and bright photoactivatable fluorescent proteins. Nat Methods. 9, 727-729 (2012).
- Hohmeier, H. E., et al. Isolation of INS-1-derived cell lines with robust ATP-sensitive K+ channel-dependent and -independent glucose-stimulated insulin secretion. Diabetes. 49, 424-430 (2000).
- Dyachok, O., Isakov, Y., Sågetorp, J., Tengholm, A. Oscillations of cyclic AMP in hormone-stimulated insulin-secreting β-cells. Nature. 439, 349-352 (2006).
- Nan, X., et al. Single-molecule superresolution imaging allows quantitative analysis of RAF multimer formation and signaling. Proc Natl Acad Sci U S A. 110, 18519-18524 (2013).
- Sengupta, P., et al. Probing protein heterogeneity in the plasma membrane using PALM and pair correlation analysis. Nat Methods. 8, 969-975 (2011).
- Morone, N., et al. Three-dimensional reconstruction of the membrane skeleton at the plasma membrane interface by electron tomography. J Cell Biol. 174, 851-862 (2006).
- Peters, K. R., Carley, W. W., Palade, G. E. Endothelial plasmalemmal vesicles have a characteristic striped bipolar surface structure. J Cell Biol. 101, 2233-2238 (1985).
- Fujita, A., Cheng, J., Tauchi-Sato, K., Takenawa, T., Fujimoto, T. A distinct pool of phosphatidylinositol 4,5-bisphosphate in caveolae revealed by a nanoscale labeling technique. Proc Natl Acad Sci U S A. 106, 9256-9261 (2009).
- Durisic, N., Laparra-Cuervo, L., Sandoval-Álvarez, Á, Borbely, J. S., Lakadamyali, M. Single-molecule evaluation of fluorescent protein photoactivation efficiency using an in vivo nanotemplate. Nat Methods. 11, 156-162 (2014).
- Thomas, C. L., Steel, J., Prestwich, G. D., Schiavo, G. Generation of phosphatidylinositol-specific antibodies and their characterization. Biochem Soc Trans. 27, 648-652 (1999).
- Várnai, P., Balla, T. Live cell imaging of phosphoinositides with expressed inositide binding protein domains. Methods. 46, 167-176 (2008).
- Honigmann, A., et al. Phosphatidylinositol 4,5-bisphosphate clusters act as molecular beacons for vesicle recruitment. Nature Struct Mol Biol. 20, 679-686 (2013).
重印与许可
