肠系膜传入神经将来自胃肠道的信息传递至大脑,涉及正常的稳态以及病理生理状态。通过将带有附着传入神经的离体肠段固定于器官浴槽中,分离神经并记录基础状态及刺激条件下的神经放电活动,可评估胃肠道传入神经的活性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
传入神经不仅传递有关正常生理功能的信息,还向中枢神经系统传递来自外周的各种器官系统的稳态失衡及病理生理过程的信号。因此,肠系膜传入神经活动增强或“敏化”在内脏高敏感性和腹痛综合征的病理生理机制中被认为具有重要作用。
肠系膜传入神经活动可被测量 体外 在固定于特制器官浴槽中的离体肠段中,分离出内脏神经,使研究人员能够直接评估邻近胃肠道节段的神经活动。可在标准化条件下记录基础状态下的神经活动,也可在肠段扩张期间或经腔内或浆膜侧给予药理学化合物后进行记录。该技术使研究者能够便捷地研究作用于外周神经系统的药物在对照样本中的效应;此外,还可提供关于疾病状态下神经元活动如何改变的重要信息。然而需要注意的是,传入神经元放电活动的测量仅构成复杂神经信号级联过程中的一个中继环节,研究者应谨记不可忽视其他层面的神经元活动。例如, 背根神经节、脊髓或中枢神经系统,以全面阐明健康与疾病状态下的复杂神经元生理学机制。
常用的应用包括研究给予脂多糖后神经元活动的变化,以及在肠易激综合征动物模型中研究传入神经的活动。在更具转化意义的研究中,可将分离的小鼠肠段暴露于肠易激综合征患者的结肠上清液中。此外,最近研究表明,该技术的一种改良方法已可应用于人类结肠组织标本。
引言
感觉信号传导与疼痛感知是一个复杂的过程,源于传入神经、脊髓神经元、上行与下行促进及抑制通路以及多个不同脑区之间 intricate 的相互作用。因此,在疾病状态下,这些层次中一个或多个环节的变化可能导致感觉信号传导异常和内脏疼痛。为了研究感觉信号传导的各个方面,已开发出多种技术,范围从单细胞实验(例如, 神经元钙成像)到整体动物模型(例如, 行为反应(如内脏运动反应)。本文所述技术可使研究人员特异性地评估传入神经活动 体外 从小鼠或大鼠分离的小肠或结肠节段记录内脏传入神经放电。简言之,将一段分离的胃肠道组织(通常为空肠或结肠)置于特制的记录 chamber 中,并以生理 Krebs 溶液灌流。游离腹腔神经丛并将其连接至电极,以记录腹腔或盆腔传入神经的传入性神经放电活动。可记录基础状态下的神经放电,也可在腔内压力逐步升高和/或应用药物化合物的条件下记录放电变化;药物可通过直接加入记录 chamber(浆膜侧)或经腔内灌流液(黏膜侧)施加,以评估其对传入神经放电的影响。 关键词:传入神经放电,胃肠道,空肠,结肠,Krebs 溶液,腹腔神经,盆腔传入神经,腔内压力,药物干预,浆膜侧,黏膜侧 1-6值得注意的是,内脏神经除了感觉传入纤维外,还包含传出纤维和内脏外传入纤维。其中一个主要优势是 离体 内脏神经记录的优势在于,研究人员可以在不受中枢神经系统调节或输入影响的情况下量化神经活动,从而能够研究局部施用化合物对神经活动的直接作用。此外,与使用某些方法时必需的监测生命参数一样,这种技术也便于同步观察生理指标的变化。 在体 方法(见下文)已不再适用。 体外 内脏记录最终比其 体内 对应物
针对其他刺激(如黏膜触碰、使用冯·弗雷毛发探针探测或肠段拉伸)引起的传入神经元活动,可在一种改良的实验装置中进行研究,其中肠道组织被固定并纵向打开(这与我们使用完整肠段的装置不同),如先前一期所述7,8。此外,最近还描述了一种通过钙成像技术在结肠壁内研究结肠传入神经激活的技术,该方法同样使用被固定并纵向打开的肠段9。
该in vivo技术的一种替代方案是测量传入神经进入脊髓附近区域的神经元激活情况。简而言之,将麻醉后的动物置于俯卧位,通过椎板切除术暴露腰骶段脊髓,该节段接受目标传入神经的投射;利用切口处的皮肤构建一个盛有石蜡的灌注槽,并将背根细支搭在铂金双极电极上10,11。该技术还可使研究人员根据神经纤维的传导速度对其进行表征,从而区分无髓鞘的C纤维与薄髓鞘的Aδ纤维。此外,背根细支仅含有感觉传入纤维,而此前提到的内脏大神经则包含传入和传出混合纤维。
记录传入神经放电 体外 使用人体样本也可对分离的肠段进行此类研究,已有两个研究团队分别发表了相关成果 首次人体 记录人类结肠切除标本中传入神经活动的文献 12,13该技术的实施可能更便于将小鼠数据转化为人类状态下的应用,并使研究人员能够轻松鉴定出靶向敏化感觉神经的药物。许多领域专家已深入探讨了表征传入神经活动的临床重要性,以及发现靶向异常传入神经活动的新型治疗试剂的意义。 14-19.
上述体外技术可作为更广为人知的体内传入神经活动测量方法的补充。在进行体内神经活动测量时,可在麻醉动物身上直接测量神经活动,期间识别出目标肠段并进行插管,利用啮齿类动物的腹壁和皮肤构建一个充满液体石蜡的灌注腔20。随后识别出目标传入神经,将其切断并置于双极铂电极上,从而实现神经活动的记录。该技术使研究者能够在存活但被麻醉的动物体内调控传入神经活动;因此,可用于研究神经活动对管腔扩张或静脉注射化合物等干预措施的反应。
如今,转化研究主要集中在人源性上清液的应用例如来自结肠活检样本和培养的外周血单个核细胞 等等。在空肠和/或结肠小鼠传入神经上的作用 21,22研究人员可将上清液直接加入器官浴液或灌流肠段腔内的溶液中,从而研究上清液作用于浆膜侧与黏膜侧对传入神经放电的不同效应。研究表明,来自肠易激综合征患者的结肠黏膜活检组织上清液可导致小鼠结肠传入神经、豚鼠黏膜下神经元及小鼠背根神经节神经元的敏感性增高 21,23,24.
最后,记录神经元活动并不仅限于支配胃肠道的肠系膜和/或盆腔神经元。已有研究证明,可对支配膝关节的感觉神经进行神经记录25,另有研究也表征了膀胱感觉神经的活动26-28,并证实来自膀胱以及胃肠道的盆腔感觉神经存在汇聚现象,可能导致神经元之间的交叉对话29。
访问受限。请登录或开始试用以查看此内容。
方案
以下所述的所有动物实验均经安特卫普大学医学伦理与实验动物使用委员会批准(文件编号 2012-42)。
1. 空肠和结肠传入神经的组织制备
- 空肠传入神经的制备
- 对实验前已获当地伦理委员会批准的青春期或成年啮齿类动物实施安乐死例如,终末镇静后进行心脏穿刺、颈椎脱位, 等等。).
注意:我们采用颈椎脱位法处死动物,因此后续实验无需额外麻醉或术后护理,组织可直接进行后续处理 体外.
注意:年龄已被证明会减弱肠系膜传入机械感受功能 30因此,我们建议研究人员在单个实验过程中严格遵循特定的年龄组。 - 将处死的实验动物置于仰卧位,使用手术刀沿腹壁正中线切开皮肤和腹肌层,切口从剑突延伸至耻骨联合。
- 用冰冷的Krebs溶液灌洗腹腔,以防止腹腔内组织干燥(Krebs溶液成分:120.03 mM NaCl,6.22 mM KCl,1.57 mM NaHCO₃)2PO4,15.43 mM NaHCO₃3,1.21 mM MgSO₄4,11.52 mM D-葡萄糖和1.52 mM CaCl2).
- 使用锋利的剪刀迅速切除整个空肠,从十二指肠空肠曲远端起始处开始,切除约20 cm的小肠段,注意避免损伤周围结构,并完整保留含有空肠血管和传入神经的肠系膜。
注意:仅进行腹腔内空肠解剖时,无需使用体视显微镜,因空肠可用肉眼轻松观察。 - 将切除的空肠置于冰冻的克雷布斯(Krebs)溶液中,并保持在冰上,同时持续用碳酰气(95% O₂ + 5% CO₂)氧合克雷布斯溶液。2,5% CO₂2).
- 用锋利的剪刀将空肠剪成约3厘米长的肠段。观察位于各肠段中央附近的肠系膜束,其中包含血管和内脏神经。
- 使用钝性导管用Krebs溶液冲洗每个肠段,以清除管腔内容物和食糜,因其含有消化酶,会加速组织样本的降解 体外.
注意:冲洗过程中需小心避免损伤环路的管腔,因为管腔的破坏会 绒毛 将导致介质的释放,从而改变传入神经的活动。 - 确定用于测量传入神经活动的节段例如将Treitz韧带或十二指肠空肠曲远端的第一段空肠置于涂有硅胶弹性体层的专用记录室中。
注意:空肠的起始部在解剖学上定义为十二指肠悬韧带(Treitz韧带)跨越小肠的位置,也称十二指肠空肠曲。
注意:实验开始前应提前在记录室底部覆盖一层薄薄的硅胶弹性体。该弹性体层的制备应按照制造商的说明进行。 1. - 以10 ml/min的流速持续向灌流室中灌注温热的含碳合气克雷布斯液,并保持记录室中克雷布斯液的温度恒定 34 °C.
- 将空肠节段安装于器官浴槽中,使口腔端连接提供管腔灌流的注射泵,肛门端连接流出端。轻轻拉伸肠段,但注意避免施加过度张力。使用4/0丝线缝合线将两端牢固地固定在进流和出流接口上。
- 将注射泵连接至口腔端,以10 ml/hr的流速向空肠节段腔内灌注克雷布斯溶液(未氧合,室温)。
- 用昆虫针将固定好的肠段的肠系膜平铺钉在硅胶弹性体底层上。适度展开肠系膜,以优化肠系膜血管束的可视化效果;注意不要对血管束或空肠施加张力。
- 进行测试性梯度扩张(见下文 通过关闭输出端口 直到肠段管腔内压力达到60 mmHg,以确认安装的肠段无管腔内克雷布斯液泄漏。观察管腔内压力是否平稳上升,无中断现象。
- 观察肠段在初始扩张阶段出现的小幅收缩(蠕动波)。如有需要,可通过添加 1 µM 将L型钙通道阻滞剂硝苯地平加入克雷布斯液中。
注意:添加 1 µM 在克雷布斯液中加入阿托品以及硝苯地平,将完全抑制肠段的活动。然而,我们个人并未有过使用阿托品对传入神经记录的影响方面的经验。 - 在体视显微镜下,用两把小镊子轻轻牵拉肠系膜上的脂肪组织,逐步将其剥离,注意避免损伤埋藏在脂肪组织中的血管和传入神经。
- 从空肠远端开始,暴露肠系膜束内的两条血管。
- 在两条血管之间观察传入的空肠神经,其为包裹在脂肪组织中的一条细小白线。当最初难以辨认肠系膜血管和/或传入神经时,仅需使用镊子轻轻剥离脂肪组织,向空肠方向稍作近端解剖。
- 剥离附着在神经上的脂肪组织,游离出数毫米长的空肠系膜神经段。
- 使用锋利的组织剪横断神经。如有需要,用小镊子轻轻牵拉,去除残留的脂肪、结缔组织以及神经外膜。
- 使用显微操作器将连接有带活塞注射器的吸电极尖端放入器官浴槽中;然后通过调节活塞,轻轻从器官浴槽中吸取少量克雷布斯溶液,使电极尖端浸入克雷布斯溶液中(图1)。确保克雷布斯溶液覆盖吸电极内部的金属丝电极。
注意:使用拉针仪在实验开始前制备含有金属丝电极的硼硅酸盐玻璃吸液毛细管。 - 将吸电极的尖端紧靠横断的感觉神经纤维束,将横断的神经纤维束全长吸入毛细管内。
- 将电极尖端移向脂肪组织,同时用力抽吸活塞,将脂肪组织吸入玻璃毛细管内,从而通过机械方式将神经与器官浴液内容物隔离开来,在毛细管内形成“密封”。
- 使用数据采集系统验证传入神经活动的记录 例如,通过执行斜坡式扩张诱导传入神经放电增加(见下文将神经分离并吸入吸电极后,稳定制备状态15分钟,以在正式实验前获得稳定的自发传入神经活动。
- 进行梯度扩张时,关闭输出端口以扩张肠段,导致肠段内压力逐渐升高(最高达60 mmHg)。仅在连续三次梯度扩张(每次间隔15分钟)产生可重复的多单位放电时,才进行目标实验方案。图2).
- 对实验前已获当地伦理委员会批准的青春期或成年啮齿类动物实施安乐死例如,终末镇静后进行心脏穿刺、颈椎脱位, 等等。).
- 腰内脏传入神经(结肠传入神经)的制备
注意:结肠传入神经的解剖需要更细致的分离操作。与之前的“空肠”方案相比,差异如下:- 采用人道方法处死动物,将其置于仰卧位,行正中腹切口,并向腹腔内大量灌注冰冷的Krebs溶液。注:Krebs溶液成分为118 mM NaCl、4.75 mM KCl、1 mM NaH2PO4,22 NaHCO₃3,1.2 mM MgSO₄4,11 mM D-葡萄糖和 2.5 mM CaCl2, 3 µM indomethacin
注意:Krebs 溶液的成分有所调整;添加吲哚美辛是为了防止前列腺素对传入神经活动产生影响。 - 弃去脂肪组织、膀胱和内生殖器官,轻轻将腹腔内的小肠移向一侧。从腹腔中游离结肠远端部分,并连同完整的肠系膜神经一并进行充分的前置牵引。
注意:解剖过程中可包含一些重要解剖标志,以辅助后续组织处理,包括腹主动脉和下腔静脉、左肾以及盆底肌群。
注意:解剖过程中应避免对结肠与腹主动脉之间的结缔组织施加牵拉,因为该区域含有腰内脏神经。 - 将组织片段转移至涂有硅胶弹性体的记录室中。以起源于腹主动脉的左肾动脉为起点,沿腹主动脉向远口方向追踪,经过肠系膜上动脉以及腹腔神经节和肠系膜上神经节,最终到达结肠远端与主动脉之间的连接组织,目标神经即位于此处。
- 识别起源于腹主动脉的肠系膜下动脉。肠系膜下动脉根部可见腰内脏传入神经,该神经与动脉平行走行。图3).
- 神经横断后,轻轻剥离其周围的结缔组织鞘,并将神经分离成若干细小的纤维束。操作时务必与结肠保持安全距离。
- 将其中一根单根神经纤维吸入吸电极内,用周围脂肪组织按前述方法封闭毛细管,并执行所需的实验方案。
- 弃去器官浴中任何多余的组织例如, 肾脏、腹腔血管、肌肉组织),因为这些组织可能干扰传入信号。
注意:硝苯地平(Nifedipine)1µM) 可加入 Krebs 溶液中,以应对因平滑肌细胞收缩引起的自发性肠运动对传入神经信号的干扰。
注意:药物可在三个不同部位给药:1)浆膜侧给药,将目标化合物溶解于灌流记录室的克雷布斯液(Krebs)中;2)器官浴直接给药,在暂时停止灌流时将药物直接加入器官浴;3)腔内给药,将目标化合物溶解于注射器泵中的克雷布斯液内。当连续快速给予化合物的累积剂量时,传入神经可能发生脱敏。
- 采用人道方法处死动物,将其置于仰卧位,行正中腹切口,并向腹腔内大量灌注冰冷的Krebs溶液。注:Krebs溶液成分为118 mM NaCl、4.75 mM KCl、1 mM NaH2PO4,22 NaHCO₃3,1.2 mM MgSO₄4,11 mM D-葡萄糖和 2.5 mM CaCl2, 3 µM indomethacin
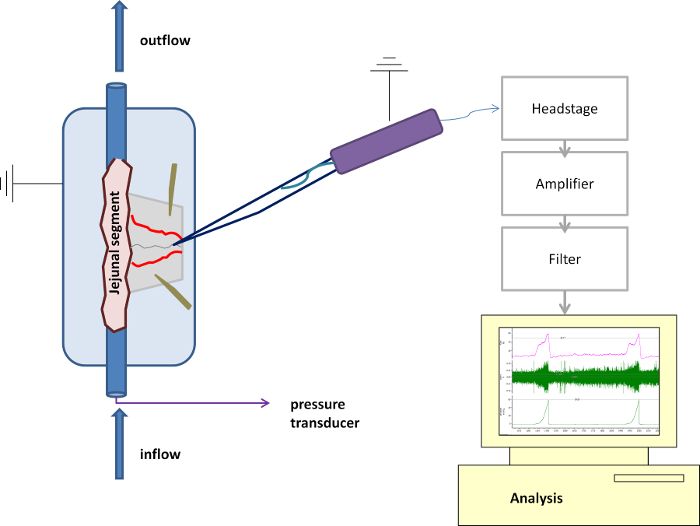
图1:定制记录室与负压电极的示意图。 展示负压电极与记录室就位后的技术装置详细示意图。请点击此处查看该图的放大版本。
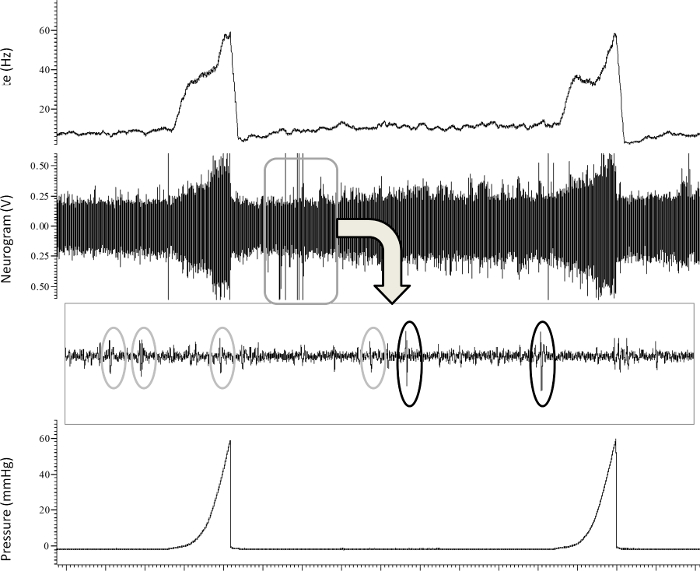
图2:代表性追踪图 体外 记录空肠传入神经活动 典型空肠多单位传入神经活动记录(脉冲/秒)-1)(上图)在基线水平及对两次升压至60 mmHg的扩张刺激的反应(下图),以及随后通过波形标记分析在神经信号中识别出的不同单个放电单位(第三图)。 请点击此处以查看此图的放大版本。
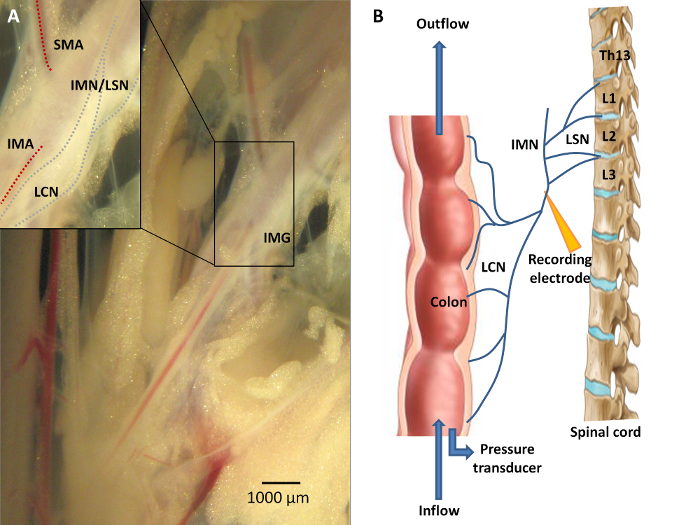
图3:结肠的神经解剖结构。A) 来自结肠的感觉信息通过腰结肠神经(LCN)传向中枢神经系统,LCN 沿着肠系膜下动脉(IMA)附近走行。部分腰结肠神经的纤维沿肠系膜间神经(IMN)走行,形成腰内脏神经(LSN)。肠系膜下神经节(IMG)位于肠系膜下动脉起源于腹主动脉的位置。若研究人员希望研究内脏传出性传入神经活动,则必须在 IMG 的远端进行记录。B) 实验装置的示意图。通过将抽吸电极连接至数据采集系统,在器官浴中对 LCN 进行传入神经记录。在关闭出口端口的同时持续灌注 Krebs 溶液,可实现梯度扩张刺激。请点击此处查看该图的放大版本。
2. 数据采集
- 通过连接至前置放大器的负压电极记录神经活动。将信号放大(增益10k)并滤波(带通500 - 5,000 Hz)20。
注意:实验装置中应包含50/60 Hz噪声消除器,以去除50/60 Hz的电干扰噪声信号。信号将自动数字化,并以20 kHz采样频率进行分析。
3. 分析5,20
- 将传入神经放电报告为整条神经每秒的总脉冲数,或使用专业软件进行进一步分析,因为整体神经活动的多单位记录包含不同形状、幅度和宽度的动作电位,对应于每条传入纤维中的不同神经单位。图2).
- 将单个波形标记与预定义模板进行匹配,以实现对单个神经元信号的区分。在将一个峰电位分配给特定波形标记之前,需满足一定的信噪比要求。 >2:1 应当强制执行。
注意:在波形分析过程中,当分析软件识别出至少10个相似的尖峰时,我们将构建一个新的模板。对于出现频率低于每50个尖峰中1个的波形形状,不构建模板。当某个尖峰至少有80%的点与模板尖峰一致时,通过主成分分析将其匹配至该模板。模板匹配具有操作者依赖性,应始终由同一研究人员以盲法方式进行。 - 通过从固定时间点扩张时的反应中减去基线自发活动(管腔内压力为 0 mmHg 时),计算动作电位反应(管腔内压力从 0 至 20 mmHg 每增加 5 mmHg 为一个增量,20 mmHg 以上每增加 10 mmHg 为一个增量)。使用 10 秒的时间窗测量基线传入放电。
- 使用单单位分析方法,根据纤维在渐进性扩张过程中的放电特征对其进行分类图 4此外,单单位分析可用于研究不同类型单位的化学敏感特性,因为并非所有类型的单位在接触药物或化合物时都会表现出相同的放电活动改变。
- 将纤维分类为低阈值纤维(“LT”,通常在较低扩张压力下放电增加)、高阈值纤维(“HT”,在最高扩张压力下放电增加)、广动态范围纤维(“WDR”,在整个梯度扩张过程中放电增加)或机械不敏感传入纤维(“MIA”,通常对梯度扩张无反应的神经纤维)。 5;20.
- 将20 mmHg压力下的神经放电反应表示为扩张过程中最大放电反应的百分比(LT%),以反映低扩张压力下的放电程度。
注意:因此,LT纤维的特征由LT%表征 > 55%,而HT则由一个特定值定义 <15%。WDR单位的数值范围在15%至55%之间(20)。MIA表现出不受扩张影响的自发传入放电。
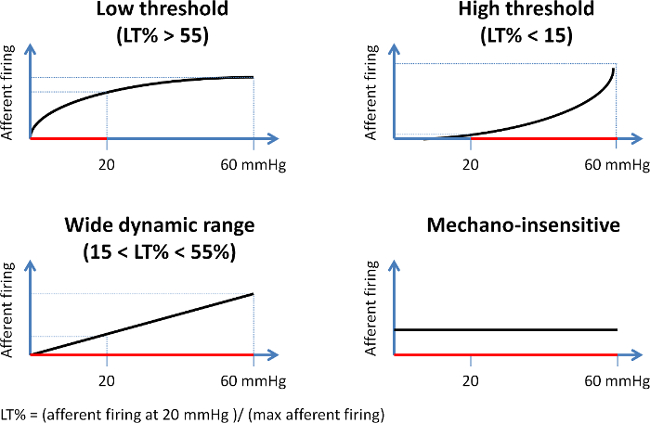
图4:基于机械敏感特性的不同传入纤维单位的示意图。 根据在20 mmHg扩张压力下放电频率占扩张期间最大放电反应的百分比(LT%),将纤维单位进行分类。低阈值纤维(左上图)主要在低扩张压力下表现出神经活动增强,导致LT%超过55%。相反,高阈值单位(右上图)仅在伤害性压力下才出现放电频率增加(LT% < 15)。宽动态范围纤维(左下图)在整个扩张过程中神经活动呈渐进性增加(LT%介于15至55之间),而机械不敏感纤维(右下图)则对逐渐增加的扩张压力无反应。LT%:(20 mmHg时的传入放电 / 传入最大放电)请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
在9只八周龄雄性OF-1小鼠中,测量了空肠传入神经在基础状态及梯度扩张刺激下的神经活动。动物以每笼6只为一组,在标准条件下饲养(温度20 - 22 °C,湿度40 - 50%,12小时光照-黑暗循环),可自由饮用自来水并摄食常规饲料。在管腔内压力为0 mmHg的基础状态下,小鼠空肠节段表现出不规则的自发性传入神经放电(平均自发活动为11.47 ± 3.31 次/秒)。
在进行梯度扩张至60 mmHg时,空肠传入神经活动增加。通常情况下,随着管腔内压力升高,传入神经活动的增加表现为双相反应(图5),即在管腔内压力达到20 mmHg之前,放电活动迅速增加,这主要归因于低阈值纤维放电频率的升高;随后进入平台期,之后从40 mmHg开始出现第二次放电活动增加,代表主要由高阈值纤维被激活所致。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述方案介绍了一种可重复的实验室技术,用于研究啮齿类动物肠系膜传入神经活动,该方法已被本课题组及其他研究团队广泛应用3,4,7,8,12,20,21,31。方案中的关键步骤包括组织的快速分离、将神经束吸入吸电极中,以及通过将周围脂肪组织吸入玻璃毛细管来实现毛细管与器官浴之间的有效“密封”。玻璃毛细管的开口直径应精确确定:开口过小会增加神经束吸入电极的难度,而开口过大则会影响毛细管与脂肪组织之间的“密封”效果,导致背景噪声增加,从而干扰信号分析(信噪比较低)。为了实现可靠的单单位分类,应将内脏大神经传入纤维分置于不同的神经束中,以减少记录中的单位数量。通常建议每次记录中最多包含4至5个单位。因此,研究人员应根据所关注的神经纤维类型及所使用的实验动物,调整毛细管的开口大小。
另一个关键点是实验装置必须具备充分的接地。为了最大限度地减少干扰神经元活动分析的电场,吸电极和记录室应充分接地,并用法拉第笼屏蔽;而所有其他设备,包括记录仪器、注射泵等,均应安装在屏蔽笼外。
通过在空肠或结肠附近记录传入神经活动,可以...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
SN 完成了上述实验,进行了数据分析并起草了手稿。AD 和 JDM 在我们的研究机构中实施了该技术,并协助进行数据分析。HC 协助完成了实验操作。WJ、CK 和 DG 协助在本实验室建立传入神经测量技术,并参与了数据分析与结果解读。SF、JDM 和 BDW 设计了本研究。所有作者均对最终手稿进行了批判性审阅并批准发表。SN 为比利时弗兰德斯科学基金(FWO)的研究员候选人(11G7415N)。本研究得到了弗兰德斯科学基金(FWO)的资助(项目编号:G028615N 和 G034113N)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 氯化钠 (NaCl) | VWR Chemicals | 27,810,295 | 复合克雷布斯溶液 |
| 氯化钾 (KCl) | Acros organics | 196770010 | 复合克雷布斯溶液 |
| 磷酸二氢钠 (NaH2PO4) | VWR Chemicals | 1,063,461,000 | 复合克雷布斯溶液 |
| 碳酸氢钠 (NaHCO3) | Merck | 1,063,291,000 | 复合克雷布斯溶液 |
| 硫酸镁 (MgSO4) | Merck | 1,058,861,000 | 复合克雷布斯溶液 |
| 氯化钙 (CaCl2) | Merck | 23,811,000 | 复合克雷布斯溶液 |
| D-葡萄糖 | VWR Chemicals | 1011175P | 复合克雷布斯溶液 |
| 蒸馏水 | 复合克雷布斯溶液 | ||
| PVC管 | Scientific Laboratory Supplies | 肠段应固定在PVC管上 | |
| 硅胶管 | Scientific Laboratory Supplies | 其余管路建议使用硅胶材质,便于清除管内碎屑 | |
| 丝线 | Pearsall Limited | 10B15S220 | 将肠段固定于PVC管上 |
| 注射泵 | Harvard Apparatus | 55-2222 | 克雷布斯液腔内灌注 |
| 双目显微镜——目镜含10倍放大功能 | Zeiss STEMI 2000 | 传入神经解剖过程中的最佳可视化 | |
| 恒温毯控制单元 | Harvard Apparatus | 507214 | 器官浴槽加热 |
| 定制器官浴槽,底部覆盖Sylgard材料 | |||
| Spike2软件 | 数据记录与分析 | ||
| 昆虫针,500支,不锈钢,直径0.2 mm | Austerlitz昆虫针 minutiens | 传入神经解剖 | |
| 杜蒙特#5镊子,不锈钢,11 cm | World Precision Instrument | 500341 | 传入神经解剖 |
| 弹簧剪,14 cm | World Precision Instrument | 15905 | 传入神经解剖 |
| DB digitimer | NL 108T2/10 | 压力传感器 | |
| 显微操作器 | Narishige | M-3333 | 吸电极的三维操控 |
| 显微操作器 | X-4旋转支架 | 吸电极的三维操控 | |
| 显微操作器 | GJ-8磁性支架 | 吸电极的三维操控 | |
| 光源 | Euromex Microscopes Holland EK-1 | 传入神经解剖过程中的最佳可视化 | |
| CED 1401记录装置 | 传入神经活动记录 | ||
| Humbug 50/60 Hz噪声消除器 | Quest Scientific Instruments | 消除背景噪声 | |
| 输注泵 | Gibson Minipuls 2 | 对固定肠段的器官浴槽进行灌注 | |
| 半电池微电极夹持器,1.5 mm | World Precision Instrument | MEH2SW | 用于分离传入神经纤维的吸电极 |
| 硼硅酸盐玻璃毛细管,300支;外径/内径 1.5/0.84 | World Precision Instrument | 1B150-4 | 用于分离传入神经的毛细管 |
参考文献
- Donovan, J., Grundy, D. Endocannabinoid modulation of jejunal afferent responses to LPS. Neurogastroenterol Motil. 24 (10), 956-e465 (2012).
- Gregersen, H., Jiang, W., Liao, D., Grundy, D. Evidence for stress-dependent mechanoreceptors linking intestinal biomechanics and sensory signal transduction. Exp Physiol. 98 (1), 123-133 (2013).
- Keating, C., et al. Afferent hypersensitivity in a mouse model of post-inflammatory gut dysfunction: role of altered serotonin metabolism. J Physiol. 586 (18), 4517-4530 (2008).
- Liu, C. Y., Jiang, W., Muller, M. H., Grundy, D., Kreis, M. E. Sensitization of mesenteric afferents to chemical and mechanical stimuli following systemic bacterial lipopolysaccharide. Neurogastroenterol Motil. 17 (1), 89-101 (2005).
- Deiteren, A., et al. Mechanisms contributing to visceral hypersensitivity: focus on splanchnic afferent nerve signaling. Neurogastroenterol Motil. 27 (12), 1709-1720 (2015).
- Nullens, S., et al. The effect of prolonged CLP-induced sepsis on mesenteric afferent nerve activity in mice. Neurogastroenterol Motil. 27 (Suppl 2), 22(2015).
- Brierley, S. M., Jones, R. C. III, Gebhart, G. F., Blackshaw, L. A. Splanchnic and pelvic mechanosensory afferents signal different qualities of colonic stimuli in mice. Gastroenterology. 127 (1), 166-178 (2004).
- Feng, B., Gebhart, G. F. In vitro functional characterization of mouse colorectal afferent endings. J Vis Exp. (95), e52310(2015).
- Travis, L., Spencer, N. J. Imaging stretch-activated firing of spinal afferent nerve endings in mouse colon. Front Neurosci. 7, 179(2013).
- De Schepper, H. U., et al. TRPV1 receptor signaling mediates afferent nerve sensitization during colitis-induced motility disorders in rats. Am J Physiol Gastrointest Liver Physiol. 294 (1), G245-G253 (2008).
- Sengupta, J. N., Gebhart, G. F. Characterization of mechanosensitive pelvic nerve afferent fibers innervating the colon of the rat. J Neurophysiol. 71 (6), 2046-2060 (1994).
- Jiang, W., et al. First-in-man': characterising the mechanosensitivity of human colonic afferents. Gut. 60 (2), 281-282 (2011).
- Peiris, M., et al. Human visceral afferent recordings: preliminary report. Gut. 60 (2), 204-208 (2011).
- Brookes, S. J., Spencer, N. J., Costa, M., Zagorodnyuk, V. P. Extrinsic primary afferent signalling in the gut. Nat Rev Gastroenterol Hepatol. 10 (5), 286-296 (2013).
- Bulmer, D. C., Grundy, D. Achieving translation in models of visceral pain. Curr Opin Pharmacol. 11 (6), 575-581 (2011).
- De Winter, B. Y., De Man, J. G. Interplay between inflammation, immune system and neuronal pathways: effect on gastrointestinal motility. World J Gastroenterol. 16 (44), 5523-5535 (2010).
- Akbar, A., Yiangou, Y., Facer, P., Walters, J. R., Anand, P., Ghosh, S. Increased capsaicin receptor TRPV1-expressing sensory fibres in irritable bowel syndrome and their correlation with abdominal pain. Gut. 57 (7), 923-929 (2008).
- De Schepper, H. U., et al. TRPV1 receptors on unmyelinated C-fibres mediate colitis-induced sensitization of pelvic afferent nerve fibres in rats. J Physiol. 586 (21), 5247-5258 (2008).
- Vermeulen, W., et al. Role of TRPV1 and TRPA1 in visceral hypersensitivity to colorectal distension during experimental colitis in rats. Eur J Pharmacol. 698 (1-3), 404-412 (2013).
- Booth, C. E., Shaw, J., Hicks, G. A., Kirkup, A. J., Winchester, W., Grundy, D. Influence of the pattern of jejunal distension on mesenteric afferent sensitivity in the anaesthetized rat. Neurogastroenterol Motil. 20 (2), 149-158 (2008).
- Hughes, P. A., et al. Sensory neuro-immune interactions differ between irritable bowel syndrome subtypes. Gut. 62 (10), 1456-1465 (2013).
- Hughes, P. A., et al. Immune derived opioidergic inhibition of viscerosensory afferents is decreased in Irritable Bowel Syndrome patients. Brain Behav Immun. 42, 191-203 (2014).
- Buhner, S., et al. Neuronal activation by mucosal biopsy supernatants from irritable bowel syndrome patients is linked to visceral sensitivity. Exp Physiol. 99 (10), 1299-1311 (2014).
- Wouters, M. M., et al. Histamine Receptor H1-mediated Sensitization of TRPV1 Mediates Visceral Hypersensitivity and Symptoms in Patients With Irritable Bowel Syndrome. Gastroenterology. , (2016).
- Brenn, D., Richter, F., Schaible, H. G. Sensitization of unmyelinated sensory fibers of the joint nerve to mechanical stimuli by interleukin-6 in the rat: an inflammatory mechanism of joint pain. Arthritis Rheum. 56 (1), 351-359 (2007).
- Christianson, J. A., Liang, R., Ustinova, E. E., Davis, B. M., Fraser, M. O., Pezzone, M. A. Convergence of bladder and colon sensory innervation occurs at the primary afferent level. Pain. 128 (3), 235-243 (2007).
- Daly, D. M., Chess-Williams, R., Chapple, C., Grundy, D. The inhibitory role of acetylcholine and muscarinic receptors in bladder afferent activity. Eur Urol. 58 (1), 22-28 (2010).
- Minagawa, T., Wyndaele, M., Aizawa, N., Igawa, Y., Wyndaele, J. J. Mechanisms of pelvic organ cross-talk: 2. Impact of colorectal distention on afferent nerve activity of the rat bladder. J Urol. 190 (3), 1123-1130 (2013).
- Wyndaele, M., et al. Mechanisms of pelvic organ crosstalk: 1. Peripheral modulation of bladder inhibition by colorectal distention in rats. J Urol. 190 (2), 765-771 (2013).
- Keating, C., Nocchi, L., Yu, Y., Donovan, J., Grundy, D. Ageing and gastrointestinal sensory function: Altered colonic mechanosensory and chemosensory function in the aged mouse. J Physiol. , (2015).
- Valdez-Morales, E. E., et al. Sensitization of Peripheral Sensory Nerves by Mediators From Colonic Biopsies of Diarrhea-Predominant Irritable Bowel Syndrome Patients: A Role for PAR2. Am J Gastroenterol. 108 (10), 1634-1643 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
