本文介绍一种用于在透射光和荧光显微镜下进行活体延时成像的新技术,以体外(ex ovo)培养鸡胚。该浸没式滤纸夹心法是已广泛使用的滤纸载体培养技术1的一种变体,可实现鸡胚在液态培养基中的完全浸没培养。
方法文章
一种用于早期鸡胚长期 Ex Ovo 活体延时成像的浸没式滤纸夹心培养法
* These authors contributed equally
本文内容
摘要
摘要
由于其易得性、低成本、扁平的几何形态以及良好的透明度,ex ovo 鸡胚已成为研究早期胚胎发生过程中形态发生事件(如原肠胚形成2、神经胚形成3-5、体节发生6、心脏弯曲7,8以及脑形成9-13)的重要脊椎动物模型。理解形态发生过程的关键在于通过延时成像对其进行动态追踪。以往对ex ovo 鸡胚发育进行延时成像的记录,往往受限于较短的时间窗口,或需要使用培养箱来控制胚胎周围的温度和湿度14。本文介绍一种新的ex ovo 鸡胚培养技术,可用于透射光显微镜下的高分辨率延时成像。这种“浸没式滤纸三明治”法是成熟的滤纸载体培养技术(EC-culture)1的一种改进,可在无需气候培养箱的条件下实现鸡胚的体外培养。胚胎被夹在两张相同的滤纸载体之间,并完全浸没于一层轻质矿物油覆盖下的简单、温度可控的培养基中。从原条期(Hamburger-Hamilton 5期,HH5)15开始,直至至少28体节期(HH16)15,均可将胚胎以腹侧朝上或背侧朝上的方式培养。该方法可实现约30小时胚胎发育过程的延时成像记录。文中展示了典型的延时图像帧和视频。在形态学上,本法培养的胚胎与标准EC-culture培养的胚胎进行了比较。
浸没式滤纸夹心法为研究早期背侧和腹侧形态发生过程提供了稳定的环境。该方法还支持活体荧光成像和微操作,例如显微手术、微珠植入、显微注射、基因沉默和电穿孔,并具有与浸入式物镜结合用于激光成像(包括光片显微镜)的强大潜力。
引言
胚胎发生自古以来就令人着迷。胚胎的结构与形态是如何以如此精确的时间和空间顺序发育的?由于多种原因,鸡胚已成为胚胎发生研究的经典脊椎动物模型:鸡胚易于获取、成本低廉、在早期阶段透明,并且由于在母体外发育,便于进行实验操作。此外,在早期形态发生事件(如心脏和脑的形成、原肠胚形成、神经胚形成及体节发生)期间,其几何形态几乎呈扁平状15。
形态发生过程若能通过动态方式研究,例如获取时间推移图像,可获得最佳理解。鸡胚可通过透射光显微镜进行可视化观察 在卵内16 但实验操作的可及性较差,且透射光显微成像的可视性有限。因此,已提出多种技术用于鸡胚的培养 体外,无论是全蛋黄培养系统13,17-19 或作为外植体培养1,20-23在全蛋黄培养系统中,胚胎保持在完整的蛋黄上方,整个鸡蛋内容物被转移至另一个容器中进行孵化。该容器可以是替代的蛋壳17,一个培养皿19,或由塑料保鲜膜制成的吊床13,18在全蛋黄培养中,胚胎可理想地培养至孵化,并可进行显微操作。这些技术特别适用于研究血液循环启动后胚胎的发育过程(此时对比度增加),而较早期的胚胎仍难以清晰观察。若将这些早期胚胎从蛋黄中分离并进行培养,则可实现最佳成像效果。 体外 外植体。外植体易于进行实验操作,且培养所需空间较小。多年来,由 Denis New 于 1955 年首创的技术及其多种改良方法一直是鸡胚外植体培养的金标准,使胚胎能够适用于延时显微观察和显微外科干预。20,21尽管纽氏技术取得了巨大成功,但该方法相对繁琐且耗时。当携带胚盘的卵黄膜被拉伸并固定在玻璃环上以达到适当张力时,胚盘常会发生脱落。1此外,胚胎只能以腹面朝上的方式培养。EC(早期鸡胚)培养是一种由 Chapman 和 Collignon 开发的较新近的技术1,通过使用带有中央孔径的滤纸载体,避免了卵黄膜的拉伸。滤纸附着在卵黄膜上,从而维持其自然张力,并像画框一样环绕胚胎1胚胎随后在琼脂-蛋清底层上进行培养,通常以腹面朝上。背侧朝上的培养方式似乎仅适用于HH8时期的胚胎15 以及更晚阶段。许多研究团队已根据自身需求对滤纸载体进行了改良,例如用外科缝合纤维制成的支撑结构替代原有的琼脂-蛋清底部24 或胶原蛋白包被的膜25通常,采用纽氏技术或EC培养法培养的胚胎会将其背侧或腹侧表面暴露于空气中,以促进氧气扩散1,20这些外植体培养物必须置于湿润的环境中,以避免培养基蒸发并防止胚胎干燥。可通过将含有外植体培养物的培养皿放置于盛有湿润滤纸的大号培养皿中进行孵育,从而实现这一条件。1获取这些胚胎的延时成像图像,需要在显微镜周围使用控温培养箱,或使用带有加热盖的温控容器,以防止光路中产生冷凝。14然而,鸡胚也可以发育 体外 完全浸没在培养基中的滤纸培养法25,采用改进的New氏技术,将样本夹在一层重矿物油与蛋清之间2,21,或作为折叠的胚盘外植体在 "康沃尔馅饼培养法"23,26,且不与空气直接接触。
浸没式滤纸三明治法是滤纸载体技术的一种新变体。通过整合早期关于鸡胚培养的研究成果 体外培养,这使得无需使用控温培养箱和加热盖。胚胎被夹在两个相同的(激光切割的)滤纸载体之间24 并在简单的培养基(Pannett-Compton 盐溶液)中完全浸没培养27,28 和稀薄蛋白按3:2比例混合)置于温度可控的容器中。在培养基表面覆盖一层轻质矿物油以防止蒸发2,21 并减少向环境的热量散失。容器底部设有玻璃窗口,整个装置置于 upright 长工作距离变焦显微镜上进行操作。该设置可实现从早期原条阶段至28体节阶段(相当于 Hamburger-Hamilton 5–16期,HH5–16)约30小时胚胎发育过程的高分辨率明场与暗场延时成像。15胚胎可以同样良好地以腹侧或背侧朝上进行培养。因此,胚胎的腹侧(例如, 早期心脏7,8 和体节发生6)和背侧(例如, 晚期原肠胚形成2神经管闭合3-5以及早期脑部9-13)发育。浸没式滤纸夹心法为微手术、珠粒植入、微注射、基因沉默和电穿孔等研究提供了简单且稳定的环境。通过结合激光成像技术(包括光片显微镜)和浸入式物镜,该方法的成像潜力可得到进一步拓展。
方案
所有实验操作均按照荷兰《动物实验法案》进行。
注意:浸没式滤纸夹心法经文献1改良而来。
1. 水下滤纸夹心结构的制备
- 潘内特-科姆普顿(Pannett-Compton,PC)生理盐水27,28
- 配制储备液A(1 L超纯水H2O、121 g NaCl、15.5 g KCl、10.42 g CaCl2·H2O和12.7 g MgCl2·6H2O)与储备液B(1 L超纯水H2O、2.365 g Na2HPO4·2H2O和0.188 g NaH2PO4·2H2O),分别装入洁净的1 L瓶中。4 °C保存。
- 取900 ml超纯水H2O,依次加入40 ml储备液A和60 ml储备液B(按此顺序以避免沉淀),配制1 L PC生理盐水。每周均需使用储备液A和B新鲜配制PC生理盐水。
注:储备液可在4 °C保存数月。无需高压灭菌,也无需添加抗生素或抗真菌剂。
- 受精鸡胚的孵育
- 在加湿孵育箱中将鸡蛋侧放,于37.5 °C孵育至所需发育阶段。
注:实验前鸡蛋储存时间不应超过两周(建议储存于12 - 15 °C),否则孵化率将显著下降。
- 在加湿孵育箱中将鸡蛋侧放,于37.5 °C孵育至所需发育阶段。
- 滤纸载体(改良自1)
- 如有条件,使用激光切割机从厚层析滤纸上切割出沙漏形状的滤纸载体(28 mm × 22 mm),中间部分宽度由22 mm逐渐收窄至10.4 mm。在中央切割出一个椭圆形孔(10.6 mm × 5.5 mm),椭圆长轴方向与滤纸载体的长边平行(图1-M)。
- 可选:制作一个具有正确尺寸的纸板模板,用铅笔将模板轮廓及中央孔洞描画至厚层析滤纸上,再用精细剪刀剪出滤纸载体。
- 为每个需进行外植的胚胎准备两个相同的滤纸载体。额外多准备若干滤纸载体作为备用,以防外植过程中胚胎丢失。
- 如有条件,使用激光切割机从厚层析滤纸上切割出沙漏形状的滤纸载体(28 mm × 22 mm),中间部分宽度由22 mm逐渐收窄至10.4 mm。在中央切割出一个椭圆形孔(10.6 mm × 5.5 mm),椭圆长轴方向与滤纸载体的长边平行(图1-M)。
- 温控油浴装置(实验当天操作)
- 将温控烧杯置于直立式变倍显微镜的电动X-Y载物台中央,并将烧杯连接至其温度控制器。
- 将四个大号不锈钢环(外径30 mm,高4 mm,壁厚1.5 mm)放入一个6 cm培养皿中作为配重,再将该培养皿置于温控烧杯中央。
注:此培养皿仅用于占位,以调节油面高度。 - 向温控烧杯中加入130 ml轻质矿物油。必要时调节油面高度,使其位于6 cm培养皿上缘下方约3 mm处。
- 从温控烧杯中取出6 cm培养皿,并将温度设定为40 °C。
2. 水下滤纸夹心结构的制备
- 实验当天的培养基
- 将30 ml PC-生理盐水(按步骤1.1.1至1.1.2制备)倒入50 ml离心管中。每两个待分离的胚胎需准备一支装有30 ml PC-生理盐水的50 ml离心管。
- 将一枚未孵化的鸡蛋小心地敲入一个10 cm的培养皿中。
- 用塑料移液管沿培养皿壁移动并吸取稀薄蛋清,收集稀薄蛋清。每枚取两个胚胎所需的稀薄蛋清,收集30 ml至50 ml离心管中。确保仅获取稀薄蛋清。
注意:通常 3 - 4 枚鸡蛋可收获约 30 ml 稀薄蛋清。 - 将20 ml稀释的蛋清倒入每个装有PC-生理盐水的50 ml离心管中(按步骤2.1.1制备)。
- 将PC-生理盐水与稀薄蛋清轻轻翻转混匀数次。静置数分钟,检查混合液(此后称为培养基)是否澄清。如果培养基不澄清,需从储备液中重新配制新鲜的PC-生理盐水,并采集新鲜的稀薄蛋清。
- 在新鲜的6 cm塑料培养皿中尽可能远地放置两个小型不锈钢环(外径20 mm,高4 mm,壁厚1.5 mm,环上间隙6.5 mm),然后使用25 ml塑料移液管加入22 ml培养基(按步骤1.4.1至1.4.4配制)图1-H确保积聚在培养基表面的碎片保留在离心管中。
- 使用塑料移液管去除培养基中的任何碎片或气泡。
- 在10 cm的培养皿中加入75 ml PC-生理盐水(用于步骤2.15)。
- 从孵育箱中取出一枚鸡蛋,将其侧放在实验台上静置1分钟,使胚胎上浮至蛋黄顶部。
- 小心地将鸡蛋打入培养皿中(图1-A). 将一小片细质滤纸的边缘浸入浓稠的蛋清中,如有必要,轻轻牵拉以使胚盘居中。
- 使用塑料移液管(将管尖剪掉以方便吸取浓稠的蛋清)从培养皿中移除大部分稀薄和浓稠的蛋清。
- 在胚胎周围的浓稠蛋白中,用一小片纸巾轻轻擦去浓稠蛋白,动作方向由中心向外,从而形成一个窗口图1-B)。防止滤纸粘附到卵黄膜上。
- 使用镊子,将滤纸载体小心地放置在胚胎周围的卵黄膜上,使椭圆形孔的长轴与胚胎的头尾轴平行(图1-C).
- 用指甲剪的一侧尖端穿过靠近滤纸载体的卵黄膜,迅速沿整个滤纸载体周围剪开图1-D).
- 使用镊子沿胚胎前后轴方向平行倾斜地将滤纸载体从卵黄上提起图1-E).
- 将滤纸载体翻转,使胚胎的腹侧朝上,浸入PC生理盐水中。沿胚胎的前后轴以倾斜方向将滤纸载体浸入。
- 用塑料移液管将PC-生理盐水轻轻冲洗,去除仍附着在卵黄膜和胚盘上的所有卵黄。始终保持滤纸载体完全浸没在液体中(图1-F).
- 沿胚胎的前后轴以斜向方向从PC-生理盐水中取出滤纸载体,并用滤纸边缘轻触吸去多余液体。
- 将滤纸水平持握,使胚胎的腹面朝上,用第二把镊子将另一张滤纸载体置于第一张之上,两张滤纸的孔洞应完全对齐,从而将胚胎夹在两层滤纸之间图1-G).
- 立即将滤纸载体夹心沿胚胎的前后轴方向倾斜浸入培养基中,放置于两个钢环之间的区域图1-H).
- 用两个钢圈覆盖在原有的两个钢圈上方,固定滤纸三明治结构,确保含有胚胎的孔洞完全暴露不被遮盖(图1-I).
- 检查培养基液面高度,确保上层隔片刚好浸没在培养基中。如有必要,可添加或移除少量培养基。
- 将培养皿小心地置于控温油浴的中央,并在油浴中将三个大号不锈钢环(外径 30 mm,高 4 mm,壁厚 1.5 mm)放置在培养皿周围,以实现培养皿的侧向固定。确保不锈钢环与培养皿的侧壁相接触图1-J).
- 用塑料移液管缓慢地将约6 ml轻质矿物油加入培养基表面,使培养基被一层连续的矿物油覆盖(图1-K).
- 设置延时成像采集。
注意:以五个重叠的子图像(图块)对胚胎进行水平全景成像,可实现高倍率(5倍物镜)下的精细成像,同时获得形态学的整体概览29-303至10分钟的成像间隔可实现对形态变化的精细追踪31,以及获取小的z轴堆栈(5到7个不同层面,层间距离为 30 µm)可补偿胚胎的大部分增厚和转动30选择对比度最高的Z平面,再进行后续处理32 将单帧图像合成为延时电影(有关图像采集的详细信息,请参见代表性结果部分)。
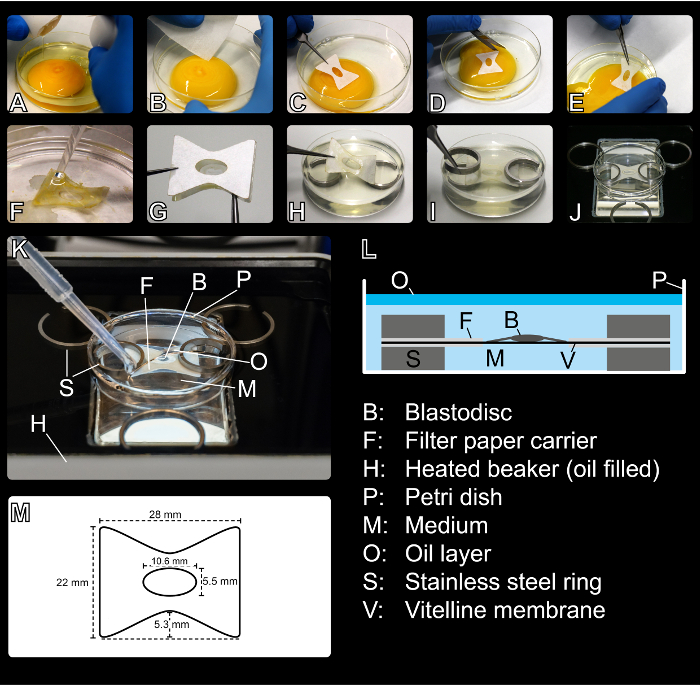
图1:设置浸没式滤纸三明治装置。 (A) 将一枚鸡蛋打入培养皿中。(B) 使用塑料移液管(图中未显示)移除培养皿中大部分浓蛋白和稀蛋白,然后用纸巾轻轻擦拭浓蛋白,在胚胎周围形成一个窗口。(C) 将一张滤纸载体放置在卵黄表面的胚盘周围。(D) 将滤纸载体从周围的卵黄膜上剪下,并(E) 从卵黄顶部取出。(F) 在PC生理盐水浴中小心洗去残留的卵黄。(G) 用第二张相同的滤纸载体将胚胎夹在中间,形成“三明治”结构。(H) 将滤纸三明治浸入培养基中,并放置在两个不锈钢金属环上(胚胎背侧或腹侧朝上)。(I) 上方再用两个金属环固定三明治结构。(J) 将含有胚胎的培养皿转移至温控油浴中。不锈钢环从侧面稳定培养皿。(K) 在培养基表面覆盖一层矿物油。(L) 浸没式滤纸三明治结构的示意图。(M) 用于浸没式滤纸三明治的滤纸载体尺寸。请点击此处查看该图的放大版本。
结果
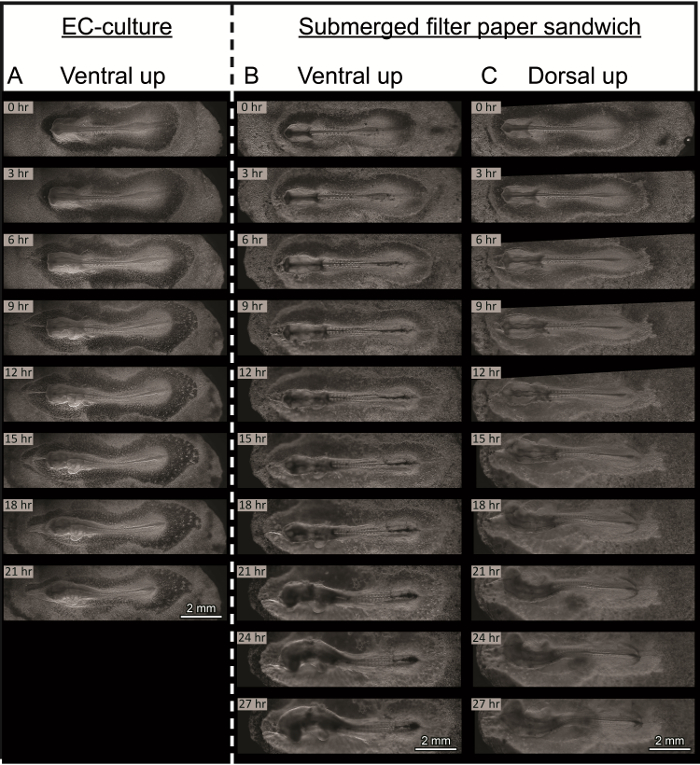
图2: EC培养1与浸没式滤纸夹心培养中胚胎的形态学比较。 选取的延时摄影帧显示了每3小时的胚胎发育情况。各帧已调整大小,以展示胚胎整体形态。胚胎均按7体节期(HH9)15进行年龄匹配。0小时表示每次实验的起始时间。头端始终朝左。图像采用暗场照明采集。(A) EC培养1中的胚胎,腹侧朝上培养于琼脂-蛋清底层1,33上。由于胚胎在Z轴方向受到限制,可获得高质量图像。(B和C) 两个在浸没式滤纸夹心中培养的胚胎:(B) 腹侧朝上,(C) 背侧朝上。滤纸夹心中的胚胎至少在27小时内发育无明显差异,能够形成功能性血液循环、头颈部弯曲,并成功完成体轴扭转。请点击此处查看该图的放大版本。
延时成像的获取依赖于可用的显微镜系统。本研究使用了长工作距离的直立变倍显微镜,变倍系数设置为5倍。结合目镜的16倍放大倍数,总放大倍数达到80倍,理论分辨率为1.3 µm/像素(根据显微镜软件说明)30。为了扩大视野,胚胎以五个子图像(图块)组成的水平全景图形式进行成像。因此,定义了一个由五个重叠图块组成的图块区域29。该图块区域被定位,以完全覆盖滤纸载体椭圆形开口的水平延伸范围(图2B - 0小时)。每个图块的尺寸为2,048 × 2,048像素,覆盖约2.7 mm的视野,图块之间以10%的重叠度采集,最终拼接成约12 mm × 2.7 mm的全景视野。在采集各个图块时,电动x-y载物台相对于物镜以约1.75 mm/sec的速度移动29。实时图像聚焦于前部体节前中胚层以及最新形成的体节(本研究团队的研究重点)。为补偿胚胎在z轴方向上的增厚和卷曲,每个时间点均采集小的z轴层扫图像(5至7个不同焦平面,间距为30 µm)30。这些焦平面围绕体节前中胚层前端的最佳焦平面进行选择。延时成像的持续时间设定为50小时,成像时间间隔选择为3、4或10分钟31。通过每5至10小时重新对焦,并围绕新的最佳焦平面重新定义z轴层扫范围,可进一步提高延时成像的质量。实验结束后,整个时间序列图像被手动编辑,筛选出包含最佳焦平面的图像子集,并保存至独立文件夹32。这些图像子集按时间顺序拼接,形成具有最佳聚焦效果的完整时间序列图像。该完整时间序列中每幅图像的各个图块在不进行明暗校正的情况下进行拼接与融合30,延时图像帧以100%尺寸、95%压缩率导出为JPEG格式图像32。随后将延时图像帧作为图像序列导入专业视频编辑软件中。对细节的100%放大画面进行稳定化处理,并根据需要调整整体对比度。最终的延时视频采用H.264编码,以MPEG-4容器格式导出。视频以每秒15帧(fps)的帧率播放,分辨率为1,920 × 1,080像素。
图2展示了在EC培养1中的胚胎(图2A)与在浸没式滤纸三明治培养法中的两个胚胎之间的比较,其中一个胚胎腹侧朝上培养(图2B),另一个背侧朝上培养(图2C)。所有胚胎均处于七体节阶段(HH9)15,并以4分钟(图2A和2B)或10分钟(图2C)的时间分辨率进行成像。图中显示了每隔3小时的代表性帧。由于胚胎位于稳定的琼脂-蛋清底层上,EC培养(图2A)实现了非常稳定的成像效果1,33。在整个延时成像过程中,整个胚胎始终保持在同一焦平面上。这种方法可能有利于短期实验(数小时)以及非常早期的胚胎观察,但其在z轴方向对胚胎施加了较强的限制,可能长期阻碍胚胎正常的三维发育。在培养初期,这种限制仅导致胚胎头部出现轻微的侧向扁平化,相较于腹侧朝上培养的滤纸三明治法中的胚胎(比较图2A与2B在0小时的图像);随后,头部的翻转受到抑制(图2A - 21小时),心跳减慢,血液循环几乎停止。完整的EC培养胚胎延时成像过程见补充影片1。该影片上方图层面显示胚胎的整体视图,左下方面板以全分辨率展示心脏发育过程,右下方则详细显示前体节中胚层分节形成体节的过程。
另一方面,置于浸没式滤纸三明治中的胚胎,其三维扩展仅受到周围膜自然张力的限制。这些胚胎可培养为腹侧朝上(图2B)或背侧朝上(图2C)。无论何种方式,胚胎均表现出持续的体节发生,头部发生转动,并形成头颈部弯曲及功能性血液循环。滤纸三明治中的两个胚胎均以分节中胚层为成像焦点,因此随着胚胎生长、增厚并开始转动,头部部分逐渐移出焦平面,而中胚层的分节区域始终保持在焦点内(比较 图2B 和 图2C 中21小时至27小时的图像)。补充影片2 展示了 图2B 所示胚胎的完整延时成像视频,成像时间间隔为4分钟。该视频的上方面板显示了胚胎的完整概览。胚胎发育被连续成像达46小时,但在约30小时后,由于胚胎组织整体增厚和转动,分节中胚层的焦点逐渐丢失。左下方面板以全分辨率展示了从延时成像帧中获取的心脏早期发育过程。通过中线两侧成对心脏原基的融合,形成一条近乎笔直的管状结构,随后开始搏动并向右侧弯曲。右下方面板以全分辨率展示了最新形成的体节及前体节中胚层前端,并追踪了新体节随时间的形成过程。补充影片3 展示了另一枚在浸没式滤纸三明治中腹侧朝上培养和成像的胚胎,成像时间间隔为4分钟。该视频记录了胚胎从HH5-6期发育至约HH1415期的过程,培养时间约为27小时。头褶形成并逐渐向后延伸;心脏由两侧原基发育而成,开始搏动并向右侧弯曲;最初三到四个体节同时形成,随后额外的体节从前体节中胚层前端依次出芽。下方面板以全分辨率显示了胚胎的头部区域,可高倍观察头褶及心脏早期形成的细节。由于胚胎具有透明性,可在未来头部区域观察到神经管的闭合过程。补充影片4 在下方面板中以全分辨率展示了同一胚胎在整个成像期间体节形成的全过程。补充影片5 展示了背侧朝上培养的胚胎(图2C)的完整延时成像视频,成像时间间隔为10分钟。上方面板显示了胚胎从七个体节期(HH9)发育至约HH16-17期的过程,而下方面板则裁剪以全分辨率展示该阶段早期脑部的形态变化。可观察到神经管的局部膨大,进而导致前脑、中脑和后脑的区域化,这些区域将在后续阶段进一步划分为胚胎脑的五个亚区13。此外,视泡的生长过程也清晰可见。在培养约30小时后,胚胎开始死亡。
为了验证浸没式滤纸三明治培养法与显微外科操作的兼容性,将数个聚苯乙烯微珠(直径约 40 µm)植入鸡胚的体节前中胚层内或其附近区域,该鸡胚采用浸没式滤纸三明治培养体系。微珠经 PBS 洗涤以去除保存缓冲液,随后在向培养基表面覆盖轻质矿物油之前进行植入(参见方案部分的步骤 2.18)。在显微镜目镜观察下,使用玻璃巴斯德吸管将微珠转移至胚胎表面。用针灸针轻轻刮擦内胚层,形成五个小孔。使用一种自制的 J 形工具(通过在火焰中拉伸并弯曲玻璃巴斯德吸管制成)操控微珠,并小心将其推入小孔中直至固定不动。其中三个孔各植入一颗微珠(图 3A - 0 小时和 3B*),另外两个孔各植入两颗微珠(图 3A - 0 小时)。图 3A 展示了微珠显微外科植入后鸡胚发育过程中的部分延时成像帧。三颗微珠成功整合至目标位置的组织中,并在整个实验过程中以高分辨率记录其移动情况(图 3B)。胚胎的发育似乎未因操作或微珠的存在而受到明显影响。完整的延时录像见补充视频 6。成像时间间隔为 4 分钟。
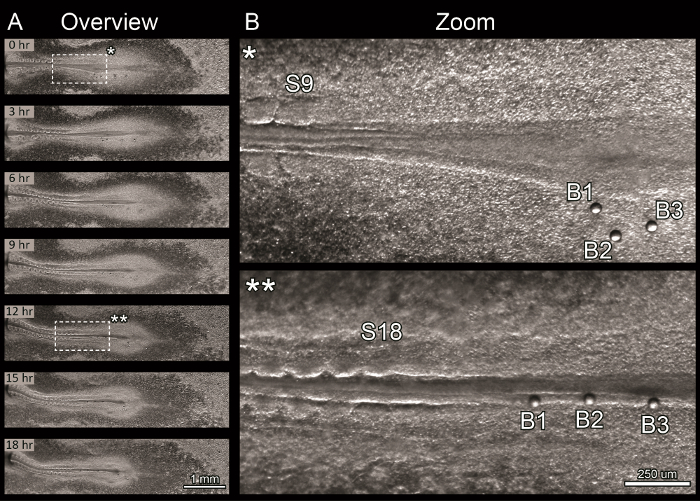
图3: 微珠植入后的延时成像。 原理验证实验,展示了浸没式滤纸夹心法与微珠植入的兼容性。胚胎头部位于左侧,但在本实验中未进行成像。图像采用暗场照明采集。(A) 植入七颗微珠(直径约40 µm)后,每隔3小时拍摄的延时图像序列。胚胎持续伸长并不断形成新的体节。其中三颗微珠似乎已正确附着,并随着组织流动在18小时培养期间向内侧移动。其余四颗微珠在培养6至9小时之间从孔中脱落,并向后方漂移。(B) 实验开始时(0小时,B*)及培养12小时后(B**)植入前体节中胚层的三颗单个微珠(B1至B3)的详细视图。图中标注了刚形成的体节数量(B*中为S9,B**中为S18)。请点击此处查看该图的放大版本。
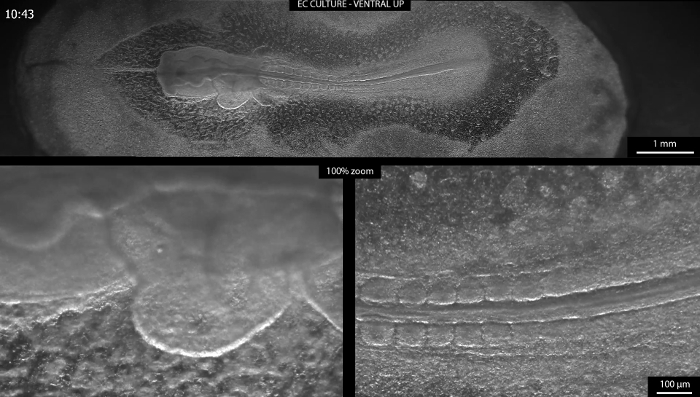
补充视频 1: EC 培养腹侧朝上。 胚胎在 EC 培养1条件下,从七体节期(HH9)15开始,腹侧朝上培养于琼脂-蛋清底层1,33上。成像时间间隔为 4 分钟。相对时间显示在左上角。由于胚胎在 z 方向上受到限制,因此能够获得高质量图像。21 小时后,心跳和血流几乎停止,胚胎开始解体。上方面板显示胚胎的缩放后整体视图,而下方两个面板以全分辨率(100% 放大)分别展示心脏发育(左面板)和前体节中胚层的体节分割(右面板)。 (右键点击可下载)。
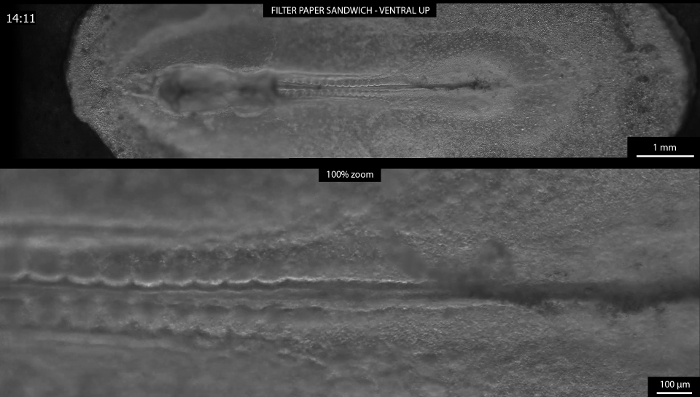
补充视频 2: 滤纸夹心法,浸没,腹面朝上。 从七体节期(HH9)开始在浸没式纸夹法中培养的胚胎15 此后,腹侧朝上。成像时间间隔为4 min。相对时间以小时和分钟显示在左上角,每24小时重新计时。上方图板连续展示了胚胎在46小时内的发育过程概览(已调整大小)。左下图板以全分辨率(100%缩放)显示图像采集前10小时内早期心脏发育情况。右下图板以全分辨率(100%缩放)展示中胚层分节过程,持续约30小时的发育过程,直至因胚胎组织整体增厚和翻转导致失焦。 (右键单击以下载)。
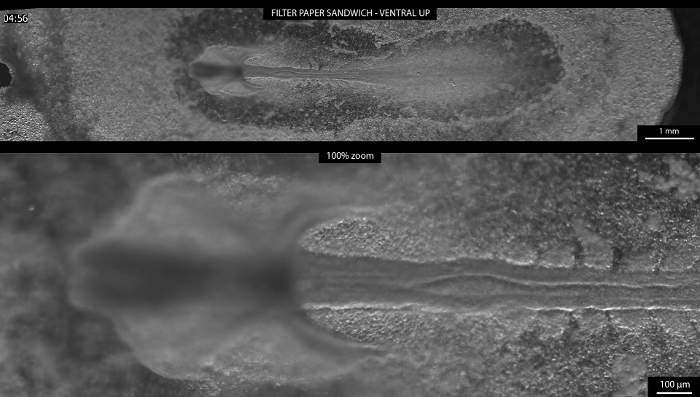
补充视频 3: 头褶形成。 胚胎在浸没式滤纸三明治法中培养,腹面朝上,从头突/头褶阶段(HH5-6)15 培养至约22体节阶段(HH14)15,培养时间约为27小时。成像时间间隔为4分钟。相对时间以小时和分钟显示在左上角,超过24小时后重新计时。上图显示胚胎发育的缩略全貌图。下图显示胚胎头部区域的全分辨率图像(100%放大)。可观察到头褶的形成、早期心脏的发育以及神经管的闭合过程。(右键点击可下载)
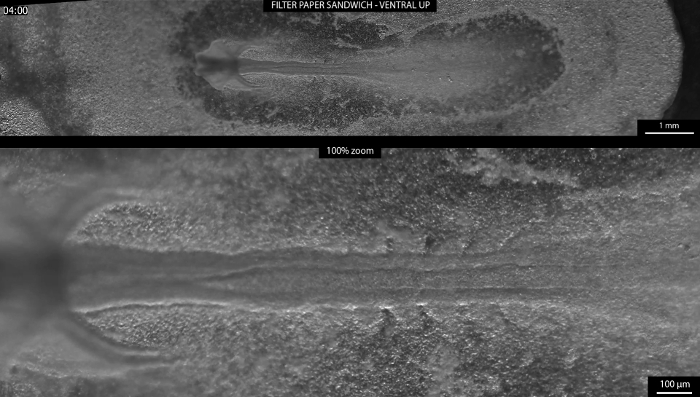
补充视频 4: 体节发生。 胚胎在浸没式滤纸夹心装置中腹面朝上培养,从头突/头褶阶段(HH5-6)15 培养至约22个体节阶段(HH14)15,培养时间约为27小时。成像时间间隔为4分钟。相对时间以小时和分钟显示在左上角,并在24小时后重新计时。上图显示胚胎发育的缩放后整体概览。下图以全分辨率(100%放大)展示正在分节的轴旁中胚层。(右键点击可下载)。
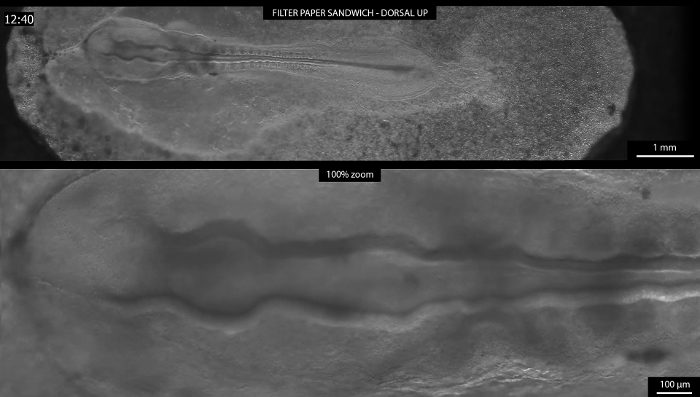
补充视频 5: 滤纸夹心法培养,胚胎背侧朝上,完全浸没于培养液中。 胚胎从七体节期(HH9)15 开始,背侧朝上置于浸没的滤纸夹心中培养,直至约 HH16–17 期15。成像时间间隔为 10 分钟。左上角显示以小时和分钟为单位的相对时间,每满 24 小时重新计时。上图显示胚胎发育的整体缩略图(已调整大小)。下图以全分辨率(100% 放大)展示早期脑部的形态变化。胚胎在培养约 30 小时后死亡。(右键点击可下载)
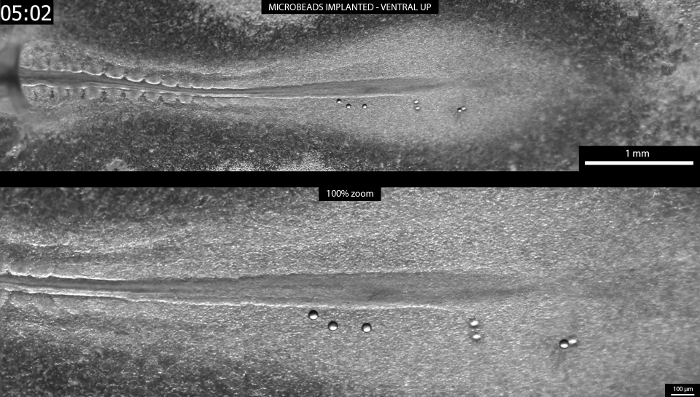
补充视频 6: 微珠已植入。 胚胎在浸没式滤纸夹心装置中腹面朝上培养,从九体节期(HH9-10)开始,持续约19小时15。成像时间间隔为4分钟。左上角显示相对时间,单位为小时和分钟。上图显示尾部区域的缩略概览图,其中七个微珠已植入前体节中胚层。下图显示植入微珠区域的全分辨率图像(100%缩放)。 (右键点击可下载)
讨论
作为成熟的EC培养法1的一种新变体,浸没式滤纸夹心法通过消除在显微镜周围配置温湿度控制培养箱的需要,促进了对早期鸡胚离体(ex ovo)进行长期明场和暗场延时成像。胚胎不再培养于半固态的琼脂-蛋清基底上,而是完全浸没在由PC盐水和稀释蛋清组成的简单培养基中。培养基表面覆盖一层轻质矿物油,可最大限度减少蒸发和热量散失。胚胎可轻松地以背侧朝上或腹侧朝上方式培养,且在质量上无明显差异。如本文所示,采用浸没式滤纸夹心法培养的胚胎可方便地进行显微外科操作,例如植入经形态发生素浸泡的微珠。未来应用还包括活体荧光成像、显微注射与电穿孔、基因沉默等技术,以操控和研究腹侧(例如,早期心脏发育和体节发生)及背侧(例如,晚期原肠胚形成、神经管闭合和早期脑发育)发育过程中多种形态发生事件。若将盛放滤纸夹心的培养皿替换为灌流室,则可在矿物油层下方更换培养基,实现药物的时间依赖性处理。浸没式滤纸夹心法与基于激光的成像技术(包括光片显微镜)及浸没物镜联用时,将展现出其最大的成像潜力。
以下段落将讨论制备浸没式滤纸三明治过程中可能遇到的一些难点。尽管将胚胎从卵黄转移至滤纸三明治仅需适度训练,但多个步骤仍可能显著影响培养中胚胎的质量。在将滤纸载体放置到卵黄上之前,应清除胚胎周围卵黄膜上的浓稠蛋白物质,以确保滤纸与卵黄膜之间的连接足够牢固,能够耐受在PC盐水中清洗时的应力。携带胚胎的滤纸在穿过液/气界面时应尽可能减少次数,以最小化对膜结构的张力。一旦进入PC盐水进行清洗,整个滤纸载体必须始终保持完全浸没状态。在PC盐水中的停留时间必须控制在约30至60秒内,因为卵黄膜在此时间过长后会开始从滤纸上脱离。尽管如此,胚胎的清洁仍需彻底执行,因为残留的卵黄物质后续会遮挡胚胎的视野。清洗过程中,切勿将移液管的液流直接对准胚胎,而应始终沿径向远离胚胎方向冲洗。从PC盐水中取出胚胎后,务必保持滤纸水平持握,以最小化对胚胎膜的张力。随后,使用第二张滤纸载体固定胚胎。一旦放置第二张滤纸载体,应避免产生任何侧向张力,以防两张滤纸载体发生相对位移而撕裂胚胎膜。当将滤纸三明治移入培养基时,也应仅穿过一次气/液界面,以减少对膜的应力。用于从上方固定滤纸三明治的第二对不锈钢环应缓慢放置,且不得施加任何压力,以最小化对胚胎膜的压缩。胚胎明区的微小破裂通常在培养的第一小时内可自行愈合,但若胚胎受损,则应在向培养基上方加入油层前,始终更换为新的样本。
为了对整个胚胎或多个样本进行高分辨率时间序列成像,显微镜必须配备由显微镜软件控制的电动 x-y 载物台。x-y 载物台的移动速度必须尽可能低,以避免对胚胎造成损伤以及培养基和油层中产生湍流,从而影响图像质量。在获取本文所示的时间序列影像时,电动 x-y 载物台的移动速度约为 1.75 mm/s。未来,可通过先将载物台移动至目标位置,再经过短暂静置以消除振动和湍流后进行图像采集,从而进一步提高成像质量。
作为一种局限性,潜在使用者应注意,若使用无浸入式物镜的正置显微镜,则该培养方法需要相对较长的工作距离(约1 cm)。此工作距离是由胚胎上方的培养基层和矿物油层所导致的。在6 cm的培养皿中,油层厚度约为1 - 1.5 mm,胚胎则浸没于培养基中约4 mm深处。根据物镜直径的不同,6 cm培养皿的上边缘也可能限制对胚胎的接近。此问题可通过使用更大的培养皿来避免。
通过减小液体层的厚度,可略微增加从上方起算的工作距离。此外,通过将胚胎进一步下移至培养皿底部,并减小加热烧杯玻璃窗口的厚度,可最大限度缩短从下方起算的工作距离。尽管本方案已针对直立式长工作距离变倍显微镜进行优化,但也可适配倒置显微镜使用。后续使用者应注意,将胚胎在培养液中浸没过深可能导致氧气(O2)扩散问题;但初步实验表明,只要胚胎周围存在足够大的培养液储层,且滤纸夹心结构未被压紧至培养皿底部,有限的扩散似乎不会构成问题。
另一个限制是温度控制。通过将加热烧杯的控制器温度调节至 40 °C,当培养基被矿物油覆盖时,胚胎周围培养基的温度可稳定在 37.5 °C 左右。这表明在加热元件和温度传感器所在的烧杯底部与胚胎所在位置之间存在能量损失。通过重新定位温度传感器并重新分布加热元件,可优化温度控制。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢荷兰ZonMW-VICI基金(项目编号:918.11.635)提供的经费支持。作者还要感谢阿姆斯特丹自由大学(Vrije Universiteit Amsterdam)设备车间的技术人员在实验装置部件设计与加工过程中提供的实用建议,感谢荷兰蔡司公司(Carl Zeiss Netherlands)的Jarno Voortman在显微成像技术方面的有益指导。Marjolein Blaauboer在本论文多个草稿的审阅过程中提供了宝贵的批评性意见,给予了极大的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Milli-Q 参考水纯化系统 | Millipore | Z00QSV0WW | |
| Duran 实验室瓶(带盖),1 L | Sigma-Aldrich/Duran | Z305200-10EA | |
| 名称 | 公司 | 货号 | 评论 |
| 溶液A | |||
| NaCl | 默克密理博 | 1064041000 | |
| KCl | 默克密理博 | 1049361000 | |
| CaCl2·H2O | Merck Millipore | 1023821000 | |
| MgCl2·6H2O | 默克/西格玛奥德里奇 | 13152-1KG-D | |
| 名称 | 公司 | 目录编号 | 评论 |
| 溶液B | |||
| Na2高倍镜4·2H2O | 默克 | 1065801000 | |
| NaH2PO4·2H2O | 默克 | 1063420250 | |
| 名称 | 公司 | 目录编号 | 评论 |
| Whatman 定性滤纸,595 型 | Sigma-Aldrich | 10311611 | |
| 激光切割机 MLS-90120-C130,CO2-激光,130 W,波长10.6 µm | 微型激光系统 | ||
| Tork 超柔面巾纸 | Tork | 140280 | |
| 乳胶手套 | Sigma-Aldrich | Z645613 | |
| EMDAMED | EMDA 300.131 | ||
| 移液管 | Sigma-Aldrich | Z350613 | |
| VWR | WITG5.480.003 | ||
| Accu-jet pro 移液器控制器 | BrandTech Scientific | 26332 | |
| 血清学塑料移液管,25 毫升 | Sigma-Aldrich | CLS4251 | |
| 塑料文件袋 | |||
| 鸡蛋孵化箱 - 孵化箱型号 Cip Cip 40 | Fiem | ||
| 受精鸡卵(Gallus gallus) | Drost BV(Loosdrecht,NL) | ||
| 10 cm 组织培养皿 | Sigma-Aldrich | P5731 | |
| Greiner Bio-one | 664160 | ||
| 6 cm 培养皿 | Sigma-Aldrich | P5481 | |
| 50 ml 离心管,Greiner 离心管或 Cellstar 离心管 | Sigma-Aldrich | T2318 | |
| greiner bio-one | 227261 | ||
| 名称 | 公司 | 目录编号 | 评论 |
| 不锈钢环,定制 | |||
| 大环,外径 30 mm,高 4 mm,壁厚 1.5 mm | |||
| 外径 20 mm、高 4 mm、壁厚 1.5 mm、环上留有 6.5 mm 间隙的小环 | |||
| 指甲剪 | |||
| 镊子,Dumont #5,Inox | Fine Science Tools,F.S.T. | 11251-20 | |
| 用于裁剪滤纸的精细、锋利的剪刀 | VWR | 21-102 | |
| M3516 Sigma-Aldrich 矿物油 | Sigma-Aldrich | CAS 编号 8042-47-5 | |
| 名称 | 公司 | 目录编号 | 评论 |
| EC培养用琼脂底部 | |||
| 琼脂糖 | Sigma-Aldrich | A9539 SIGMA | |
| NaCl | Sigma-Aldrich | S7653 SIGMA-ALDRICH | |
| 名称 | 公司 | 货号 | 评论 |
| 微珠植入 | |||
| Polybead 样品试剂盒 III(45 µm beads 被使用) | Polysciences, Inc. | 16905-1 | |
| 针灸针:型号 J,0.12×30,No.02 毫米 | SEIRIN | 型号 J,编号 0.02,0.12×30 mm | |
| PBS,pH 7.4 | Thermo Fisher Scientific | 10010023 | |
| 名称 | 公司 | 目录编号 | 评论 |
| 温度控制烧杯 | |||
| 带M4螺纹外壳的RTD温度传感器 RTD-850M | Omega | RTD-850M | |
| 密封式RTD传感器 HSRTD-3-100-A-3M | Omega | HSRTD-3-100-A-1M | |
| 热敏电阻和RTD延长线 EXTT-3CU-26S-50 | Omega | EXTT-3CU-26S-50 | |
| 用于热电偶、三线制RTD和热敏电阻的3针迷你连接器 MTP-U-M | Omega | MTP-U-M | |
| Kapton(聚酰亚胺薄膜)绝缘柔性加热器 KHLV-103/(10)-P | Omega | KHLV-103/(10)-P | |
| 温度/过程控制器 CNi16D24-C4EIT-DC | Omega | CNi16D24-C4EIT-DC | |
| 定制铝制烧杯,以聚甲醛隔离(设计图见第2页) | |||
| 名称 | 公司 | 货号 | 评论 |
| 显微镜设置 | |||
| Axio Zoom.V16 配 ApoTome.2 ZEN | 卡尔·蔡司股份公司 | 495010-0009-000 | |
| 物镜 PlanNeoFluar Z 1.0X/0.25 FWD 56 毫米 | 卡尔·蔡司股份公司 | 435281-9100-000 | |
| 手动旋转控制 MARC | 卡尔·蔡司股份公司 | 435604-0000-000 | |
| 透射照明顶部 450 毫特 | 卡尔·蔡司股份公司 | 435500-9000-000 | |
| 电动测量载台 S 150x100 mot;CAN (D) | 卡尔·蔡司股份公司 | 435465-9020-000 | |
| 插入 S 型板,玻璃,237x157x3 毫米(D) | 卡尔·蔡司股份公司 | 435465-9053-000 | |
| 控制器 EMS 3 | 卡尔·蔡司股份公司 | 435610-9010-000 | |
| 系统控制面板 SYCOP 3 | 卡尔·蔡司股份公司 | 435611-9010-000 | |
| 滨松ORCA Flash 4.0相机 | 滨松 | C11440-22CU | |
| 显微镜高端工作站 Xeon 四核 多语言 | 卡尔·蔡司股份公司 | 490004-0025-000 | |
| 语言包 Windows 7 x64 旗舰版 英语 美国 | 卡尔蔡司股份公司 | 410373-0200-000 | |
| LCD TFT 显示器 HP ZR2440w 24" | 卡尔蔡司股份公司 | 410350-2403-000 | 不再提供 |
| ZEN pro 2012 硬件许可证密钥 | 卡尔·蔡司股份公司 | 410135-1002-120 | 不再提供 |
| ZEN 软件驱动器 Hamamatsu 相机硬件授权密钥 | 卡尔·蔡司股份公司 | 410136-1045-110 | |
| ZEN 模块 Z 轴层扫 | 卡尔·蔡司股份公司 | 410136-0030-110 | |
| ZEN 模块 图像拼接/位置 | 卡尔·蔡司股份公司 | 410136-1025-110 | |
| ZEN 模块:时间推移 | 卡尔·蔡司股份公司 | 410136-1031-110 | |
| ZEN 模块实验设计器 | 卡尔·蔡司股份公司 | 410136-1022-110 | |
| ZEN Desk 2012 硬件授权密钥 | 卡尔·蔡司股份公司 | 410135-1004-120 | 不再提供 |
参考文献
- Chapman, S. C., Collignon, J., Schoenwolf, G. C., Lumsden, A. Improved method for chick whole-embryo culture using a filter paper carrier. Dev. Dyn. 220 (3), 284-289 (2001).
- Rozbicki, E., et al. Myosin-II-mediated cell shape changes and cell intercalation contribute to primitive streak formation. Nat. Cell Biol. 17 (4), 397-408 (2015).
- Smith, J. L., Schoenwolf, G. C. Neurulation: Coming to closure. Trends Neurosci. 20 (97), 510-517 (1997).
- Schoenwolf, G. C., Sheard, P. Shaping and bending of the avian neural plate as analysed with a fluorescent-histochemical marker. Development. 105 (1), 17-25 (1989).
- Colas, J. F., Schoenwolf, G. C. Towards a cellular and molecular understanding of neurulation. Dev. Dyn. 221 (2), 117-145 (2001).
- Pourquié, O. The chick embryo: a leading model in somitogenesis studies. Mech. Dev. 121 (9), 1069-1079 (2004).
- Maenner, J. Cardiac looping in the chick embryo: A morphological review with special reference to terminological and biomechanical aspects of the looping process. Anat. Rec. 259 (3), 248-262 (2000).
- Wittig, J. G., Münsterberg, A. The Early Stages of Heart Development Insights from Chicken Embryos. J. Cardiovasc. Dev. Dis. 3 (2), (2016).
- Layer, P. G., Alber, R. Patterning of chick brain vesicles as revealed by peanut agglutinin and cholinesterases. Development. 109 (3), 613-624 (1990).
- Nakamura, H., Nakano, K. E., Igawa, H. H., Takagi, S., Fujisawa, H. Plasticity and rigidity of differentiation of brain vesicles studied in quail-chick chimeras. Cell Differ. 19 (3), 187-193 (1986).
- Garcia-Lopez, R., Pombero, A., Martinez, S. Fate map of the chick embryo neural tube. Dev. Growth Differ. 51 (3), 145-165 (2009).
- Andermatt, I., Stoeckli, E. T. RNAi-based gene silencing in chicken brain development. Methods Mol. Biol. 1082, 253-266 (2014).
- Tufan, A. C., Akdogan, I., Adiguzel, E. Shell-less culture of the chick embryo as a model system in the study of developmental neurobiology. Neuroanatomy. 3 (1), 8-11 (2004).
- Endo, Y. Chick embryo culture and electroporation. Curr. Protoc. Cell Biol. , Unit 19.15(2012).
- Hamburger, V., Hamilton, H. L. A series of normal stages in the development of the chick embryo. J. Morphol. 88 (1), 49-92 (1951).
- Kulesa, P. M., Bailey, C. M., Cooper, C., Fraser, S. E. In Ovo Live Imaging of Avian Embryos. Cold Spring Harb. Protoc. 2010 (6), (2010).
- Borwompinyo, S., Brake, J., Mozdziak, P. E., Petitte, J. N. Culture of chicken embryos in surrogate eggshells. Poult Sci. 84 (9), 1477-1482 (2005).
- Yalcin, H. C., Shekhar, A., Rane, A. A., Butcher, J. T. An ex-ovo Chicken Embryo Culture System Suitable for Imaging and Microsurgery Applications. J. Vis. Exp. (44), e2154(2010).
- Auerbach, R., Folkman, J. A simple procedure for the long-term cultivation of chicken embryos. Dev. Biol. 41 (2), 391-394 (1974).
- New, D. A. T. A New Technique for the Cultivation of the Chick Embryo in vitro. J. Embryol. Exp. Morphol. 3 (4), 320-331 (1955).
- Stern, C. D., Bachvarova, R. Early chick embryos in vitro. Int. J. Dev. Biol. 41 (2), 379-387 (1997).
- Nagai, H., Lin, M. C., Sheng, G. A modified cornish pasty method for ex ovo culture of the chick embryo. Genesis. 49 (1), 46-52 (2011).
- Connolly, D., McNaugbton, L. A., Krumlauf, R., Cooke, J. Improved in vitro development of the chick embryo using roller-tube culture. Trends Genet. 11 (7), 259-260 (1995).
- Rupp, P. A., Rongish, B. J., Czirok, A., Little, C. D. Culturing of avian embryos for time-lapse imaging. Biotechniques. 34 (2), 274-278 (2003).
- Martins, G. G., Rifes, P., Amaândio, R., Rodrigues, G., Palmeirim, I., Thorsteinsdóttir, S. Dynamic 3D cell rearrangements guided by a fibronectin matrix underlie somitogenesis. PLoS One. 4 (10), e7429(2009).
- Nagai, H., Sezaki, M., Nakamura, H., Sheng, G. Extending the limits of avian embryo culture with the modified Cornish pasty and whole-embryo transplantation methods. Methods. 66 (3), 441-446 (2014).
- Pannett, C., Compton, A. The Cultivation of Tissues in Saline Embryonic Juice. Lancet. 203 (5243), 381-384 (1924).
- Voiculescu, O., Papanayotou, C., Stern, C. D. Spatially and temporally controlled electroporation of early chick embryos. Nat. Protoc. 3 (3), 419-426 (2008).
- Carl Zeiss Microscopy. GmbH Software Guide ZEN 2 - The Tiles & Positions Module. , Available from: http://applications.zeiss.com/C125792900358A3F/0/9943124DA6FFBA5DC1257E9300412F8B/$FILE/ZEN2_Tiles_and_Positions_Module_Software_Guide.pdf (2015).
- Carl Zeiss Microscopy. GmbH ZEN 2 - (blue edition) - Software Guide. , V1.0 en, Available from: https://www.unige.ch/medecine/bioimaging/files/3914/3765/2064/ZEN_2_blue_edition_-_Software_Guide.pdf (2014).
- Carl Zeiss Microscopy. GmbH Quick Guide ZEN 2 - Acquiring multidimensional images. , Available from: http://applications.zeiss.com/C125792900358A3F/0/5D9162DBD5AF85DDC1257E35005A68A6/$FILE/ZEN_2-Acquiring_multidimensional_images.pdf (2014).
- Carl Zeiss Microscopy. GmbH Quick Guide ZEN 2 - Importing and exporting images. , Available from: http://applications.zeiss.com/C125792900358A3F/0/CF6F8A3FE82E5870C1257E35005AF3E9/$FILE/ZEN_2-Importing_and_exporting_images.pdf (2014).
- Darnell, D. K., Schoenwolf, G. C. Culture of Avian Embryos. Dev. Biol. Protoc. Vol. I. 135, 31-38 (2000).
重印与许可
